Stawonogi obejmują owady, pająki, skorpiony, kleszcze, kraby, rozwielitki, wije i wiele innych zwierząt o wspólnym pochodzeniu. Ich różnorodność opiera się na rozpoznawalnej konstrukcji: segmentowanym ciele, zewnętrznym oskórku i członowanych przydatkach. Ten plan pozwolił wykształcić organizmy o bardzo odmiennych rozmiarach, sposobach odżywiania i środowiskach życia. Zrozumienie stawonogów wymaga połączenia anatomii z rozwojem, systematyką i ekologią. [1, 2]
Znaczenie tej grupy dobrze widać w zależnościach między organizmami. Stawonogi uczestniczą w zapylaniu, obiegu materii, biologicznym ograniczaniu roślinożerców i przekazywaniu energii w sieciach pokarmowych. Są także przedmiotem hodowli, połowów i badań naukowych. Niektóre gatunki uszkadzają uprawy lub przenoszą patogeny; te szczególne role trzeba opisywać na poziomie właściwych gatunków i procesów. [3, 4, 5]
Kompendium prowadzi od podstaw rozpoznawania przez mechanizmy działania organizmu do interpretacji danych o różnorodności i ochronie. Nazwy naukowe pomagają uniknąć niejednoznaczności nazw potocznych. Wartości liczbowe zachowują rok publikacji lub okres pomiarów oraz zakres, którego dotyczą. Data opracowania, 13 listopada 2026 r., oznacza datę sprawdzenia przywołanych źródeł, nie datę wykonania wszystkich opisywanych badań.
Szczególnej uwagi wymagają dwa rozróżnienia. Liczba opisanych gatunków jest stanem poznania taksonomicznego, a estymacja całkowitego bogactwa uwzględnia również gatunki jeszcze nieopisane. Podobnie spadek biomasy w określonej sieci stanowisk nie jest odsetkiem gatunków wymarłych na całym świecie. Zachowanie tych różnic pozwala oceniać zarówno skalę sukcesu ewolucyjnego stawonogów, jak i realność udokumentowanych zagrożeń.
Część IPochodzenie oraz budowa i rozwój
Rozdział 1Czym są stawonogi
Stawonogi, czyli zwierzęta zaliczane do typu Arthropoda, łączy określony plan budowy: segmentacja ciała, zewnętrzny szkielet oraz parzyste, członowane przydatki. Do przydatków należą nie tylko odnóża służące chodzeniu, lecz także czułki i liczne części aparatu gębowego. Zewnętrzny wygląd może być bardzo różny, ponieważ poszczególne odcinki ciała i przydatki zostały w toku ewolucji przystosowane do innych zadań. Krab, motyl, skorpion i krocionóg nie są zatem zestawem przypadkowo podobnych bezkręgowców, lecz przedstawicielami jednej wielkiej linii ewolucyjnej. [2]
Stawonogi należą do zwierząt dwubocznie symetrycznych oraz do pierwoustych. Współczesna systematyka umieszcza je wśród Ecdysozoa, czyli wylinkowców. Wspólną cechą tego szerszego zespołu zwierząt jest okresowe zrzucanie oskórka. Pokrewieństwa w obrębie wylinkowców nie należy jednak utożsamiać z prostym podobieństwem kształtu: nicienie również należą do Ecdysozoa, ale nie są stawonogami. Najbliższe szerzej omawiane otoczenie ewolucyjne stawonogów obejmuje pazurnice i niesporczaki, zaliczane wraz z nimi do Panarthropoda; szczegóły relacji między tymi liniami bywają przedmiotem analiz. [1]
Podstawowa reguła rozpoznawania jest praktyczna: trzeba oceniać zestaw cech, a nie samo występowanie „pancerza”, wielu nóg czy niewielkich rozmiarów. Muszla ślimaka nie jest stawonogowym oskórkiem, a podłużna segmentowana dżdżownica należy do pierścienic. Z kolei beznoga larwa muchy nadal pozostaje owadem. Cechy diagnostyczne opisują plan budowy grupy i jego pochodzenie, a nie niezmienny wygląd każdego osobnika na każdym etapie życia. [2, 6]
Rozdział 2Systematyka i historia ewolucji
Systematyka i pokrewieństwa
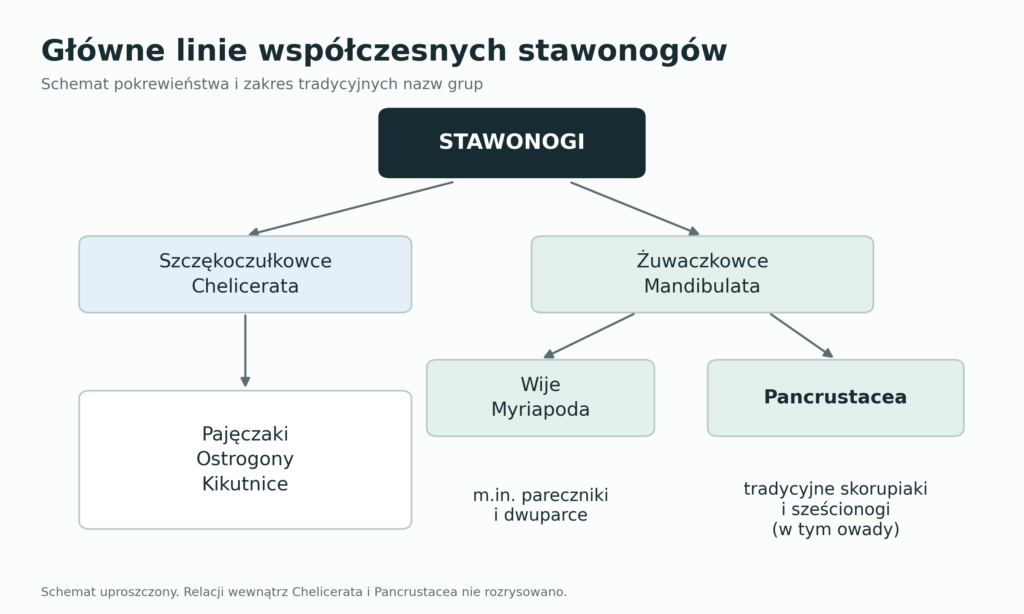
W obrębie współczesnych stawonogów wyróżnia się dwie podstawowe linie: szczękoczułkowce, Chelicerata, oraz żuwaczkowce, Mandibulata. Do żuwaczkowców należą wije, Myriapoda, i Pancrustacea. Nazwa tej ostatniej grupy obejmuje tradycyjnie rozumiane skorupiaki wraz z sześcionogami. Owady są częścią sześcionogów; nie wszystkie sześcionogi są owadami w ścisłym znaczeniu. Do pozostałych linii sześcionogów zalicza się między innymi skoczogonki. [1, 7]
Najważniejsza korekta względem wielu dawnych schematów szkolnych dotyczy skorupiaków. Wyniki badań molekularnych wskazują, że sześcionogi wywodzą się z wnętrza ewolucyjnej różnorodności tradycyjnych skorupiaków. „Skorupiaki” rozumiane jako wszystkie te zwierzęta z wyłączeniem sześcionogów nie obejmują wszystkich potomków wspólnego przodka, a więc stanowią grupę parafiletyczną. Ich nazwa nadal pozostaje użyteczna w opisach budowy i ekologii, o ile jasno określono przyjęte znaczenie. Nie należy przedstawiać owadów, skorupiaków i wijów jako trzech całkowicie niezależnych, równorzędnych gałęzi bez zaznaczenia Pancrustacea. [7]
Szczękoczułkowce obejmują między innymi pająki, skorpiony, roztocze, kosarze, ostrogony i kikutnice. Tradycyjna grupa pajęczaków pozostaje wygodna w opisie zwierząt lądowych, lecz jej monofiletyczność jest kwestią badawczą. Obszerna analiza z 2022 roku, obejmująca dane genomowe i transkryptomiczne wszystkich żyjących rzędów szczękoczułkowców, umieściła ostrogony wewnątrz tradycyjnie pojmowanych pajęczaków. Autorzy wcześniejszej pracy integrującej morfologię, skamieniałości i wybrane dane molekularne uzyskiwali odmienne wyniki. [8, 9]
Dla czytelnika kompendium wynika z tego ważna zasada interpretacyjna. Grupa użyteczna do rozpoznawania zwierząt w terenie nie zawsze odpowiada bezspornie ustalonemu kladowi. Kladem nazywamy wspólnego przodka i wszystkich jego potomków. Tabela porównująca owady, pajęczaki i skorupiaki może więc dobrze porządkować cechy, ale nie powinna być automatycznie odczytywana jako kompletne drzewo pokrewieństw. Wątpliwości dotyczące wybranych rozgałęzień nie podważają przy tym dobrze udokumentowanej wspólnoty pochodzenia stawonogów. [1, 7, 8, 9]
Historia zapisana w skamieniałościach
Zapis kopalny dokumentuje obecność i różnicowanie się stawonogów we wczesnym kambrze. W syntezie paleontologicznej Daley i współautorów pierwsze ślady przypisywane całkowitej grupie Euarthropoda datowano na około 537 mln lat, pojawienie się trylobitów na około 521 mln lat, a ważne zespoły skamieniałości zachowujące miękkie części ciała na okres od około 518 mln lat. Wartości te należy traktować jako przybliżone datowania omawianych zapisów kopalnych, a nie dokładne „daty narodzin” całego typu. [10]
Skamieniałości zachowane w wyjątkowo sprzyjających warunkach pozwalają odtwarzać stopniowe powstawanie charakterystycznej budowy. Wymarłe radiodonty, do których należy słynny Anomalocaris, pomagają badać ewolucję aparatu głowowego, przydatków i segmentacji. Nie są po prostu „dzisiejszymi krewetkami z kambru”. Podobnie trylobity stanowią wymarłą linię o własnej historii, a nie larwalny lub prymitywny etap współczesnych skorupiaków. [10]
Najstarsze znalezisko danej grupy wyznacza minimalny wiek jej udokumentowanej obecności. Sama linia może być starsza, ponieważ zachowanie szczątków, ich odsłonięcie i rozpoznanie są niepełne. Z kolei zegary molekularne szacują czas rozdzielenia linii na podstawie różnic genetycznych i kalibracji kopalnych. Wynik zależy od danych i modelu; nie jest bezpośrednim odczytem daty z DNA. Dlatego należy odróżniać wiek konkretnej skamieniałości, pierwsze znane wystąpienie oraz oszacowany wiek ewolucyjny. [1, 10]
Rozdział 3Jak powstawał plan budowy stawonogów
Korona i pień drzewa ewolucyjnego
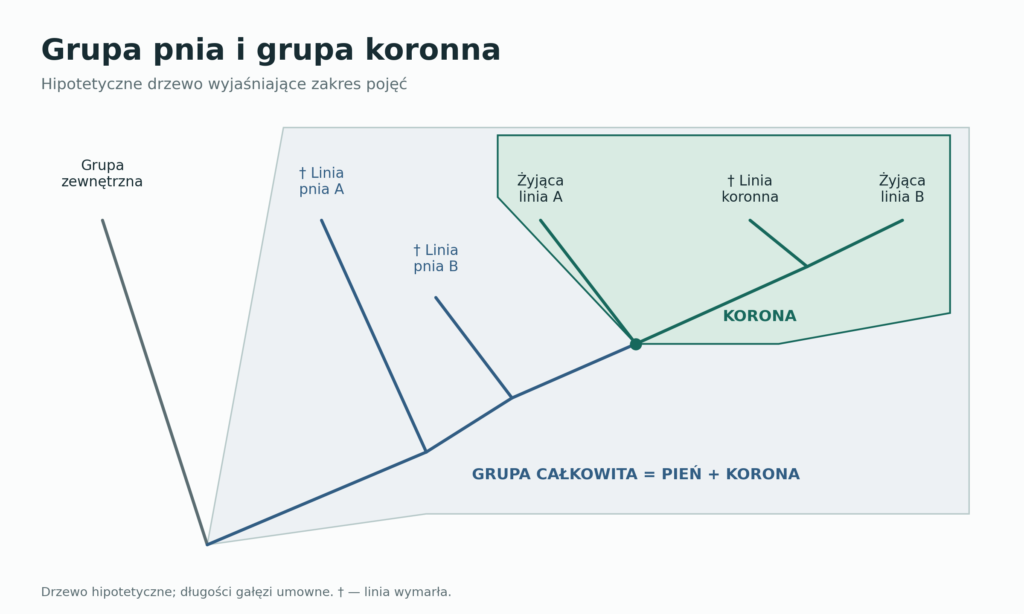
Pojęcie grupy koronnej pozwala dokładniej opisać relację między dzisiejszymi stawonogami a formami kopalnymi. Korona obejmuje najmłodszego wspólnego przodka wszystkich żyjących przedstawicieli rozpatrywanej grupy oraz wszystkich jego potomków, również wymarłych. Grupa pnia obejmuje natomiast wymarłe linie spoza korony, bliżej z nią spokrewnione niż z innymi żyjącymi grupami. Pień i korona tworzą razem grupę całkowitą. Zaliczenie skamieniałości do pnia nie oznacza rozpoznania bezpośredniego przodka dzisiejszych zwierząt. Może to być boczna gałąź, która zachowała określony zestaw dawnych cech i wykształciła własne specjalizacje. [11]
Podział ten nie jest prostą granicą czasu. Przedstawiciele pnia mogli współistnieć z przedstawicielami korony, a wymarły gatunek może należeć do korony. W analizie drzewa rozstrzyga pozycja rozgałęzienia, nie sam wiek skały ani wrażenie „prymitywnego” wyglądu. Pozwala to uniknąć przedstawiania ewolucji jako szeregu gatunków ustawionych od niedoskonałych do doskonałych. [11]
Skamieniałości wczesnych krewnych stawonogów dokumentują różne kombinacje organizacji głowy, przydatków i osłony ciała. Zestaw cech rozpoznawany u współczesnych przedstawicieli nie musiał pojawić się jednocześnie. Analizy grup pnia pomagają odtwarzać kolejność przekształceń, takich jak różnicowanie przydatków głowowych i powstawanie w pełni członowanej osłony. Poszczególne wymarłe formy stanowią dowody określonych połączeń cech. Ich położenie na drzewie jest jednak hipotezą wynikającą z porównania anatomii, a zakres niektórych nazw i szczegółowe relacje pozostają przedmiotem dyskusji. [12]
Skamieniałość jako wynik zachowania i utraty informacji
Rekonstrukcja wymarłego zwierzęcia wymaga rozróżnienia cechy nieobecnej za życia od cechy niezachowanej. Tafonomia bada procesy, które wpływają na szczątki między śmiercią organizmu a ich odnalezieniem. Szczególnie użyteczne są doświadczenia rozkładu współczesnych zwierząt: pozwalają sprawdzić, które struktury rozpadają się, odłączają lub pozostają rozpoznawalne. Dzięki temu izolowany przydatek nie musi być traktowany jak dowolny, mało informacyjny fragment. Jego szczegóły mogą przetrwać dłużej niż połączenie z resztą ciała. [13]
W badaniu opublikowanym w 2025 roku obserwowano przez dziesięć dni rozkład dwóch gatunków krewetek. Drobne szczecinki na przydatkach pozostawały dobrze zachowane także wtedy, gdy same przydatki pękały lub odłączały się od ciała. Wynik wspiera ostrożne wykorzystanie podobnych szczegółów w porównywaniu kopalnych radiodontów. Nie dowodzi jednak identycznego przebiegu rozkładu u wszystkich wymarłych stawonogów. Eksperyment odtwarza wybrane warunki i etapy przemian; nie zastępuje oceny skały, sposobu zachowania i anatomii konkretnego znaleziska. [13]
Homologia i zmiana tożsamości przydatków
Homologia odnosi się do wspólnego pochodzenia struktur, a nie do jednakowej funkcji. Przy porównywaniu głowy stawonogów znaczenie mają pozycja przydatków, ich unerwienie oraz rozwój zarodkowy. Czułki owadów i szczękoczułki szczękoczułkowców należą do odpowiadającego sobie odcinka związanego z drugim segmentem mózgu, mimo wyraźnie odmiennego wyglądu i działania. Taka odpowiedniość nie wynika z zewnętrznego podobieństwa narządów. Wymaga zestawienia niezależnych danych, szczególnie gdy segmenty zlały się w zwartą głowę, a dawne granice przestały być widoczne. [14]
Mechanizm różnicowania kolejnych przydatków można badać doświadczalnie. U skorupiaka Parhyale hawaiensis pierwsza para przydatków tułowiowych pełni funkcję szczękonóży, uczestniczących w manipulowaniu pokarmem. W doświadczeniu Pavlopoulosa i współautorów wymuszona aktywność genu Ultrabithorax, oznaczanego skrótem Ubx, zmieniała cechy przednich przydatków w kierunku tożsamości bardziej tylnych odnóży. Zaobserwowano między innymi przekształcenia szczękonóży w struktury bardziej przypominające nogi. Był to test funkcji genu, wykraczający poza samo stwierdzenie jego obecności w danej tkance. [15]
Doświadczenie pokazuje, jak zmiana regulacji rozwoju może uczestniczyć w przesuwaniu granic funkcjonalnych odcinków ciała, czyli tagm. Nie oznacza, że jeden gen samodzielnie koduje gotową nogę albo cały aparat gębowy. Istotne są miejsce, czas i poziom jego działania oraz współpraca z innymi elementami programu rozwojowego. W badaniu nawet niska lub przejściowa aktywność Ubx nie wykluczała rozwoju szczękonóży. Odpowiedniość przydatków i ich specjalizacja są zatem problemami powiązanymi, lecz odrębnymi. [15]
Skrzydło jako innowacja rozwojowa i mechaniczna
Pochodzenie skrzydeł owadów dobrze pokazuje, dlaczego trzeba oddzielać obserwację od historycznej interpretacji. Bruce i Patel porównali skutki wyłączenia genów kształtujących odnóża u Parhyale hawaiensis z wynikami poznanymi u owadów. Zaproponowali, że część dawnych członów nasadowych odnóża została włączona w ścianę ciała, a związany z nią boczny wyrostek uczestniczył w powstaniu skrzydła. Jest to model oparty na porównaniach rozwojowych, nie bezpośrednia obserwacja pierwszego uskrzydlonego owada. [16]
Linz i Tomoyasu uzyskali wcześniej u chrząszcza Tribolium wyniki wspierające udział dwóch obszarów tkanek w tworzeniu skrzydła: grzbietowego i bocznego. Badali struktury o wspólnym programie rozwojowym oraz skrzydła powstające w nietypowych miejscach po zaburzeniu regulacji genetycznej. Zestawienie tych prac pokazuje, że podobne wyniki mogą wymagać dyskusji o tym, jak definiować pochodzenie tkanki i jej kolejne przekształcenia. Bezpieczniej przedstawiać konkurujące interpretacje z opisem dowodów niż ogłaszać jednozdaniowe, ostateczne rozwiązanie genezy skrzydła. [16, 17]
Funkcjonalna innowacja obejmuje również sposób przechowywania narządu lotu. U biedronki siedmiokropki, Coccinella septempunctata, błoniaste skrzydła tylne muszą zapewniać sztywność potrzebną podczas lotu i jednocześnie składać się pod pokrywami. Badacze zastosowali przezroczystą sztuczną pokrywę, szybkie filmowanie i mikrotomografię, aby zobaczyć mechanizm ukryty podczas zwykłej obserwacji. W składaniu współdziałają ruchy odwłoka, powierzchnia pokrywy oraz geometria sprężystych żyłek. Układ pozwala pogodzić wymagania, których nie spełniłoby proste zwiększanie sztywności całego skrzydła. Jest to wyjaśnienie działania konkretnej konstrukcji, odrębne od hipotezy o najdawniejszym pochodzeniu skrzydeł. [18]
Przeobrażenie jako zmiana organizacji wzrostu
Pogłębione wyjaśnienie przeobrażenia dotyczy także podziału nakładów między wzrost a różnicowanie struktur dorosłego osobnika. Manthey i współautorzy w 2024 roku zestawili dane o względnym tempie wzrostu 33 gatunków: 21 o przeobrażeniu niezupełnym i 12 o przeobrażeniu zupełnym. W tej próbie druga grupa rosła szybciej. Autorzy połączyli analizę porównawczą z modelem sprawdzającym, kiedy czasowe rozdzielenie wzrostu i różnicowania może być korzystne. To nowe pytanie względem prostego porównania pokarmu larwy i dorosłego owada. [19]
Wyniki wspierają hipotezę, że przeobrażenie zupełne mogło ograniczyć pewne rozwojowe koszty szybkiego wzrostu. Analiza obejmuje jednak określoną próbę gatunków, a model przyjmuje wybrane zależności między wzrostem, różnicowaniem i ryzykiem śmierci. Nie ustala jednej przyczyny historycznego powstania poczwarki ani nie dowodzi przewagi każdego owada holometabolicznego w każdych warunkach. Jej wartość polega na sformułowaniu mechanizmu, który można porównywać z kolejnymi danymi. [19]
| Pytanie | Rodzaj dowodu | Wniosek | Ograniczenie |
|---|---|---|---|
| Co zachowuje skamieniałość | Eksperyment rozkładu | Szczegóły mogą przetrwać rozpad | Wybrane warunki i gatunki [13] |
| Skąd specjalizacja przydatka | Zmiana aktywności Ubx | Regulacja wpływa na tożsamość | Nie odtwarza całej ewolucji [15] |
| Jak działa składanie skrzydła | Filmowanie i mikrotomografia | Współdziałają różne struktury | Wynik dla badanego układu [18] |
| Co sprzyja przeobrażeniu | Porównanie i model | Możliwa korzyść wzrostowa | Hipoteza z założeniami [19] |
Rozdział 4Główne grupy i ich rozpoznawanie
Poniższe cechy dotyczą przede wszystkim typowej budowy dorosłych osobników. Redukcje przydatków, przekształcenia pasożytnicze i stadia larwalne wymagają dodatkowych kluczy identyfikacyjnych. [20]
| Grupa | Typowe części ciała | Czułki | Odnóża lokomotoryczne | Cechy pomocne w rozpoznaniu |
|---|---|---|---|---|
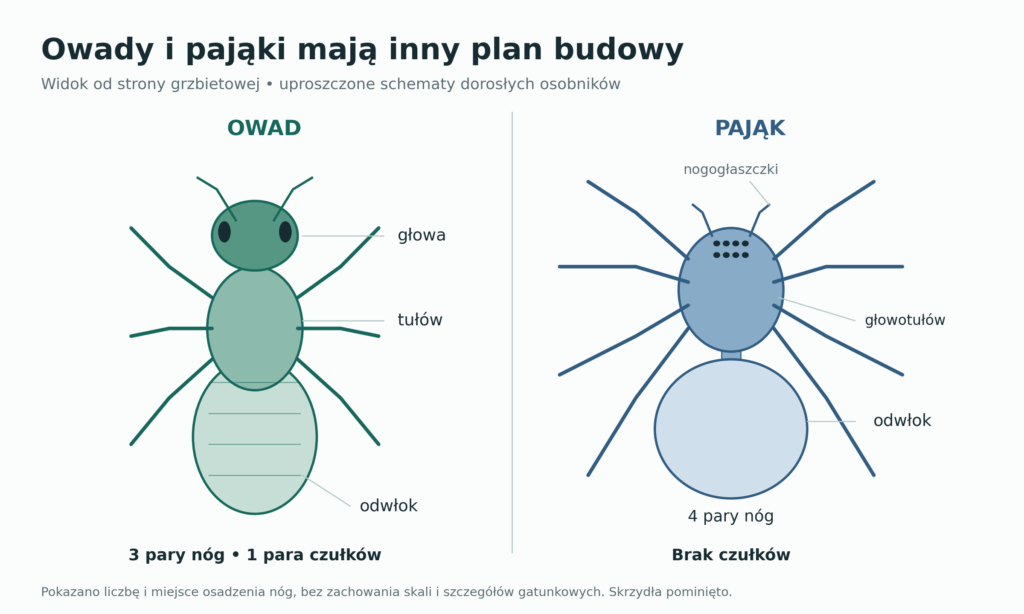
| Owady | Głowa, tułów, odwłok | Jedna para | Trzy pary na tułowiu | Skrzydła występują u części grup; larwy mogą wyglądać zupełnie inaczej |
| Pajęczaki w ujęciu tradycyjnym | Zwykle prosoma i opistosoma, nie zawsze wyraźnie oddzielone | Brak | Zwykle cztery pary u dorosłych | Szczękoczułki i nogogłaszczki; skrzydeł brak |
| Skorupiaki w ujęciu tradycyjnym | Układ zmienny; często głowotułów i odwłok | Zwykle dwie pary; u części form redukcja | Liczba i funkcje bardzo zmienne | Wiele form wodnych; także lądowe równonogi |
| Pareczniki | Głowa i wielosegmentowy tułów | Jedna para | Jedna para na segmentach krocznych | Pierwsze przydatki tułowia tworzą szczękonóża jadowe |
| Dwuparce | Głowa i wieloczłonowy tułów | Jedna para | Dwie pary na większości diplosegmentów | Przednie i końcowe odcinki ciała odbiegają od tej reguły |
Źródła i doprecyzowania do tabeli: [20, 21, 22].
W przypadku dwuparców często powtarza się zbyt uproszczone stwierdzenie, że „każdy segment ma cztery nogi”. Większa część tułowia rzeczywiście tworzy jednostki nazywane diplosegmentami, związane z dwiema parami odnóży. Odcinki przednie mają jednak inną budowę. Do rozpoznania wystarcza więc sformułowanie „dwie pary na większości jednostek tułowia”, bez zamieniania reguły dominującej w regułę bez wyjątków. [21]
Pareczniki mają odmienny aparat łowny. Ich szczękonóża powstały z pierwszej pary przydatków tułowia i służą do wprowadzania jadu. To dobry przykład ewolucyjnej zmiany funkcji: struktury wywodzące się z odnóży mogą przestać uczestniczyć w chodzeniu, a zacząć służyć zdobywaniu pokarmu. Nazwa „stonoga” używana potocznie nie mówi ani o rzeczywistej liczbie nóg, ani o poprawnym przyporządkowaniu zwierzęcia. [22]
Liczba nóg i granice uogólnień
Nazwy zwyczajowe łatwo utrwalają błędne wyobrażenia. Nie każdy krocionóg ma tysiąc nóg, ale również zdanie „żaden dwuparzec nie ma tysiąca nóg” jest już nieaktualne. W 2021 roku opisano australijski gatunek Eumillipes persephone. Jedna ze zbadanych samic miała 1306 nóg i 330 pierścieni ciała. Był to wynik dotyczący konkretnego okazu; nie oznacza stałej liczby nóg u wszystkich osobników tego gatunku. [23]
Właśnie takie szczegóły rozstrzygają o jakości biologicznego opisu. Cecha typowa, maksimum zbadanej próby, rekord opisany w publikacji i właściwość wszystkich osobników to cztery różne rodzaje informacji. Należy rozróżniać je również wtedy, gdy krótsze, kategoryczne zdanie brzmiałoby efektowniej.
Rozdział 5Segmentacja i szkielet zewnętrzny
Segmentacja i specjalizacja przydatków
Segmenty ciała stawonoga mogą łączyć się w większe odcinki funkcjonalne, czyli tagmy. U owada głowa skupia aparat gębowy i ważne narządy zmysłów, tułów jest głównym ośrodkiem lokomocji, a odwłok zawiera znaczną część narządów trzewnych i rozrodczych. Granice segmentów bywają z zewnątrz słabo widoczne. Ich zatarcie nie oznacza, że segmentowa organizacja całkowicie zniknęła. [2]
W obrębie jednego planu budowy powstaje wiele odmian narządów. Aparat gębowy może rozdrabniać stały pokarm, przekłuwać tkanki i pobierać płyny albo umożliwiać pobieranie nektaru. Nogi mogą być przystosowane do biegania, skakania, chwytania, kopania czy pływania. Zależność między kształtem i funkcją pomaga rozumieć biologię zwierzęcia, ale sama nie wystarcza do określenia jego pokrewieństwa: podobne zadanie może prowadzić do powstania podobnych struktur w różnych liniach. [25]
U owadów ewentualne skrzydła są związane z tułowiem, podobnie jak trzy pary nóg. Brak skrzydeł nie wyklucza przynależności do owadów. Nie należy również traktować gąsieniczych posuwek na odwłoku jako dodatkowych par typowych, członowanych nóg tułowiowych. Różnica ta wyjaśnia, dlaczego widoczna liczba podpór ciała gąsienicy może pozornie przeczyć szkolnej definicji owada. [6, 25]
Oskórek jako złożony materiał
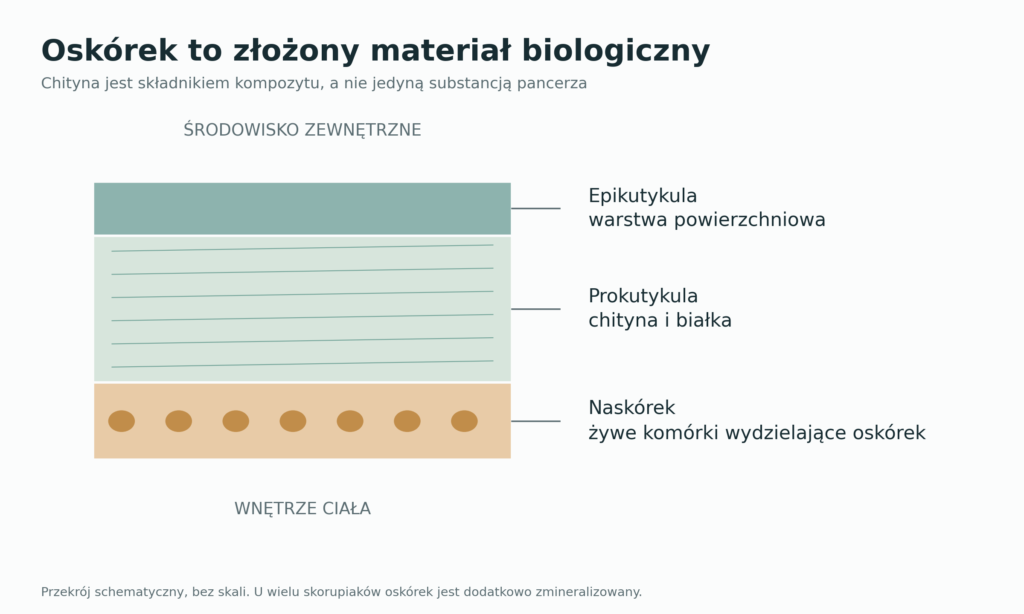
Stawonogowy szkielet zewnętrzny jest wytwarzany przez żywe komórki naskórka. Sam oskórek stanowi wydzieloną przez nie strukturę zewnątrzkomórkową. Jego właściwości wynikają ze współdziałania składników białkowych, chityny i innych substancji. Sformułowanie „pancerz z chityny” jest użytecznym skrótem, ale nie oznacza, że cała osłona składa się z czystej chityny. U wielu skorupiaków znaczenie mechaniczne ma dodatkowa mineralizacja. [26, 27]
Budowa oskórka jest warstwowa. Zewnętrzna epikutykula uczestniczy między innymi w ograniczaniu utraty wody, natomiast grubsza prokutykula zawiera kompleks chitynowo-białkowy. Poszczególne obszary różnią się grubością i stopniem usztywnienia. Twarde płytki mogą osłaniać narządy, podczas gdy bardziej elastyczne połączenia umożliwiają zginanie ciała i odnóży. Zwierzę nie jest więc zamknięte w jednolitym, nieruchomym pudełku. [26]
Oskórek jest zarazem punktem przyczepu mięśni i powierzchnią kontaktu ze środowiskiem. W jego obrębie znajdują się struktury czuciowe. Musi zatem jednocześnie chronić, przenosić obciążenia, umożliwiać ruch oraz dopuszczać odbieranie bodźców. Jego skuteczność wynika z lokalnego zróżnicowania materiału i budowy, a nie z jednakowej maksymalnej twardości na całej powierzchni. [27]
Rozdział 6Linienie i wzrost
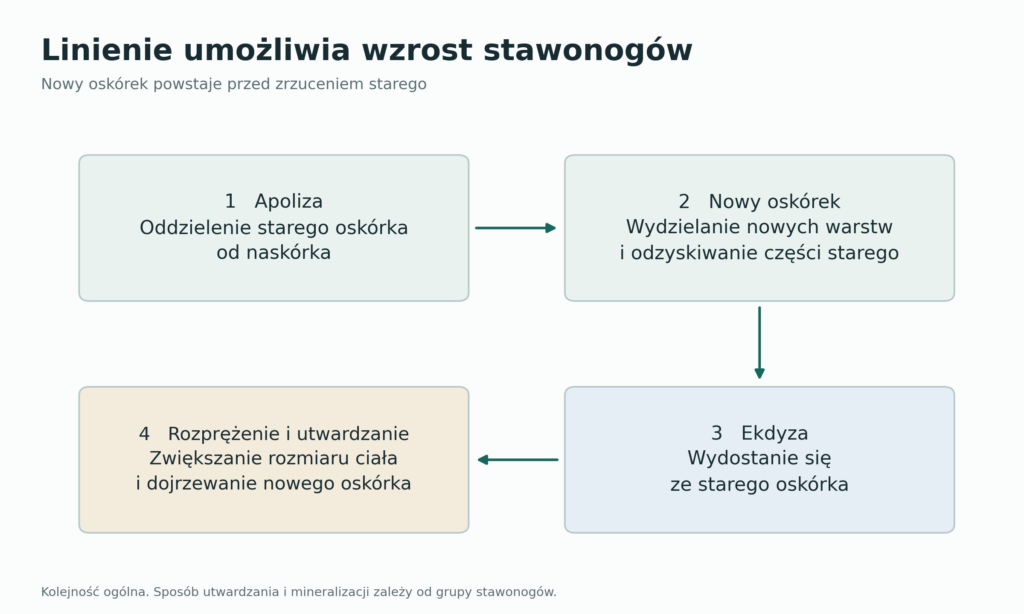
Sztywny oskórek nie może powiększać się nieograniczenie wraz ze zwierzęciem. Wzrost wymaga jego okresowej wymiany. Proces zaczyna się od oddzielenia starego oskórka od naskórka, czyli apolizy. Pod dotychczasową osłoną powstaje nowa. Część materiału starego oskórka jest rozkładana i odzyskiwana, a następnie zwierzę zrzuca pozostałą wylinkę. Samo wydostanie się z niej nazywamy ekdyzą. [28]
Nowa osłona początkowo pozostaje podatna na rozciąganie. Zwierzę zwiększa jej objętość, po czym oskórek stopniowo uzyskuje właściwości potrzebne do podtrzymywania i ochrony ciała. U owadów ważnym procesem jest sklerotyzacja, czyli usztywnianie związane z przemianami składników białkowych. W okresie tuż po linieniu ochrona mechaniczna jest słabsza, co tłumaczy częste ukrywanie się zwierząt podczas tego etapu. [28]
Linienie wymaga koordynacji hormonalnej i nerwowej. Uczestniczą w niej ekdysteroidy oraz sygnały peptydowe sterujące kolejnymi zachowaniami potrzebnymi do opuszczenia wylinki. Regulacja nie jest identyczna u wszystkich stawonogów: u dziesięcionogów istotną rolę odgrywają między innymi neurohormony hamujące aktywność narządu odpowiedzialnego za produkcję hormonów linienia. Nie należy więc mechanicznie przenosić pełnego schematu poznanego u owadów na kraby czy pająki. [29]
Wylinka nie jest martwym osobnikiem. Zachowuje jednak elementy jego zewnętrznej budowy, dlatego może być przydatna w rozpoznawaniu grupy i dokumentowaniu rozwoju. Jej obecność świadczy o odbytym linieniu, ale sama nie mówi, ile razy dane zwierzę będzie jeszcze linieć. O tym decyduje biologia gatunku i aktualne stadium rozwojowe. [28, 29]
Rozdział 7Fizjologia i narządy zmysłów
Krążenie i wymiana gazowa
U stawonogów występuje otwarty układ krążenia. Hemolimfa opuszcza część naczyń i przepływa przez przestrzenie jamy ciała określanej jako hemocel, kontaktując się z narządami. „Otwarty” nie znaczy jednak „pozbawiony kierunku i kontroli”. U owadów pracuje grzbietowe naczynie kurczliwe, a przepływ w niektórych przydatkach wspomagają dodatkowe narządy pulsujące. Przegrody i rozmieszczenie tkanek wpływają na trasy przemieszczania płynu. [30]
Hemolimfa rozprowadza składniki odżywcze i hormony, uczestniczy w obronie organizmu oraz w przemieszczaniu produktów metabolizmu. Zmiany jej ciśnienia mogą pomagać podczas linienia i rozprostowywania skrzydeł. Jej funkcji nie należy sprowadzać do „krwi bez czerwonego barwnika”. U typowego owada transport tlenu do tkanek odbywa się przede wszystkim układem tchawkowym, dlatego powiązanie oddychania z krążeniem różni się od znanego u ssaków. [30, 31]
Tchawki są rozgałęzionymi przewodami doprowadzającymi powietrze w głąb ciała. Kontakt ze środowiskiem zapewniają przetchlinki, a najdrobniejsze zakończenia docierają w pobliże komórek. Wymiana gazów może wykorzystywać dyfuzję oraz wentylację związaną z ruchami ciała. Badania szarańczy pokazują, że nie jest to jedynie bierne przesączanie się tlenu: przepływ może być aktywnie wspomagany, zależnie od zapotrzebowania metabolicznego. [31]
Inne grupy wykształciły odmienne rozwiązania. Wiele wodnych skorupiaków oddycha skrzelami. Pająki mogą mieć płucotchawki, tchawki albo kombinację obu tych narządów. W płucotchawkach wymiana gazowa zachodzi przez cienkie powierzchnie licznych blaszek, pomiędzy którymi znajdują się przestrzenie powietrzne. Nie wolno jednak rozszerzać zdania „pająki mają płucotchawki” na wszystkie pajęczaki: narządy oddechowe są zróżnicowane także w obrębie tej tradycyjnej grupy. [2, 24]
Ruch oraz barwniki oddechowe
Odnóże stawonoga jest układem ruchomych członów, połączeń i działających wewnątrz mięśni. Rozmieszczenie elementów decyduje o kierunku oraz zakresie ruchu. Szczególnie interesujące rozwiązanie występuje u pająków: w części najważniejszych stawów prostowanie odnóża wykorzystuje wzrost ciśnienia hemolimfy, podczas gdy zginanie zapewniają mięśnie. Nie oznacza to, że pająk porusza nogami „bez mięśni”. Jego lokomocja łączy mechanizmy mięśniowe i hydrauliczne, a proporcja ich znaczenia zależy od rozpatrywanego stawu oraz ruchu. [32]
Modelowanie opublikowane w 2026 roku analizowało przepływ hemolimfy i zginanie stawu między golenią a nadstopiem na podstawie właściwości pająka Cupiennius salei. Wyniki wskazują, że kanały wypełnione hemolimfą mogą umożliwiać szybkie zginanie, mimo ograniczonej przestrzeni współdzielonej z mięśniami. To przykład współczesnego badania funkcji narządu: jego zrozumienie wymaga połączenia anatomii, właściwości płynu i mechaniki, a nie wyłącznie opisu zewnętrznego kształtu nogi. [32]
Podobnej ostrożności wymaga opisywanie barwy hemolimfy. U wielu stawonogów tlen wiąże hemocyjanina, białko zawierające miedź. U niektórych grup występują jednak hemoglobiny. W obrębie Pancrustacea historia tych białek obejmuje ich utratę, zachowanie lub wtórne wykorzystanie w określonych warunkach; nie da się jej sprowadzić do zdania, że wszystkie stawonogi mają „niebieską krew”. [33]
Zestawienie tych wyjątków pomaga również poprawnie rozumieć tchawkowe oddychanie owadów. Układ tchawkowy jest ich podstawowym rozwiązaniem transportu gazów, lecz nie uzasadnia twierdzenia, że białka wiążące tlen nigdy u nich nie występują. Hemoglobiny są znane między innymi u niektórych owadów rozwijających się w warunkach niedoboru tlenu. U innych linii obecność hemocyjaniny może zależeć od stadium rozwojowego. Prawidłowy opis powinien oddzielać dominujący mechanizm działania od rozpoznanych wyjątków. [33]
Trawienie i gospodarowanie wodą
Budowa układu pokarmowego odpowiada właściwościom pokarmu i sposobowi jego pobierania. U owadów przewód pokarmowy dzieli się na odcinki o odmiennych zadaniach. Aparat gębowy wstępnie przygotowuje lub pobiera pokarm, lecz samo trawienie i wchłanianie zależy od narządów wewnętrznych. Dlatego podobny pokarm nie musi oznaczać identycznego sposobu jego przetwarzania, a rozpoznanie diety wymaga znajomości konkretnej grupy. [25]
U większości owadów ważną część układu wydalniczego tworzą cewki Malpighiego. Są to drobne przewody kontaktujące się z hemolimfą i uchodzące do przewodu pokarmowego. Uczestniczą w usuwaniu produktów metabolizmu oraz w regulacji gospodarki wodnej i jonowej. Ich czynności nie są jednak ograniczone do jednego zadania. W wybranych liniach odkryto dodatkowe funkcje wydzielnicze, związane między innymi z wytwarzaniem materiałów ochronnych. Takie specjalizacje opisują określone gatunki, nie wszystkie owady. [34]
Nie istnieje jeden identyczny „narząd wydalniczy stawonogów”. U skorupiaków występują między innymi gruczoły czułkowe, nazywane również zielonymi. Różnorodność rozwiązań przypomina, że wspólne pochodzenie i podobny szkielet zewnętrzny nie oznaczają jednakowej anatomii wszystkich narządów. [35]
Układ nerwowy i narządy zmysłów
W podstawowym planie organizacji układu nerwowego stawonogów mózg łączy się z brzusznym łańcuszkiem nerwowym. Zwoje związane z kolejnymi odcinkami ciała mogą pozostawać wyraźne albo łączyć się w większe ośrodki. U owadów kontrola ruchów nóg i skrzydeł wiąże się z ośrodkami tułowiowymi, a informacje z receptorów są przetwarzane w różnych częściach układu. Nie należy zatem wyobrażać sobie, że każde pojedyncze działanie wymaga identycznej drogi przez jeden centralny „punkt sterowania”. [36]
Receptory mechaniczne odbierają dotyk, ruchy powietrza lub drgania; chemoreceptory reagują na substancje chemiczne, a fotoreceptory na światło. Narządy czucia nie są ograniczone do głowy. U owadów występują także na odnóżach i innych częściach ciała, co pozwala oceniać podłoże, pokarm oraz warunki otoczenia bez polegania wyłącznie na wzroku. Wrażenia zmysłowe trzeba interpretować zgodnie z możliwościami danego gatunku, bez zakładania, że zwierzę postrzega świat tak samo jak człowiek. [37]
Oko złożone składa się z jednostek optycznych nazywanych ommatidiami. Ich liczba, wielkość, rozmieszczenie i połączenia nerwowe wpływają na czułość oraz rozdzielczość widzenia. Nie ma jednego uniwersalnego „obrazu widzianego przez owada”, który można wiarygodnie pokazać jako zestaw identycznych fotografii w sześciokątach. Układ wzrokowy przetwarza sygnały zależnie od budowy oka i potrzeb zwierzęcia. Różnice między gatunkami mogą być równie istotne jak różnice między owadem a kręgowcem. [38]
| Funkcja | Rozwiązanie | Przykładowy zakres występowania | Doprecyzowanie |
|---|---|---|---|
| Wymiana gazowa | Tchawki | Owady | Udział dyfuzji i wentylacji zależy od warunków [31] |
| Wymiana gazowa | Skrzela | Wiele wodnych skorupiaków | Nie dotyczy wszystkich form lądowych [2] |
| Wymiana gazowa | Płucotchawki lub tchawki | Pająki | Układ narządów jest zróżnicowany [24] |
| Transport substancji | Hemolimfa i otwarty układ krążenia | Stawonogi | Otwarty układ zachowuje uporządkowany przepływ [30] |
| Wydalanie i regulacja jonów | Cewki Malpighiego | Większość owadów | Nie są uniwersalne dla całego typu [34] |
| Wydalanie i gospodarka wodna | Gruczoły czułkowe | Wybrane skorupiaki | Jedno z kilku rozwiązań w tej grupie [35] |
Rozdział 8Obrona organizmu i odporność owadów
Powierzchnia ciała jako miejsce kontaktu z patogenem
Ochronne znaczenie oskórka obejmuje więcej niż mechaniczne zatrzymanie drobnoustroju. Substancje obecne na powierzchni wpływają na przyczepianie się i kiełkowanie zarodników grzybów. Grzyby chorobotwórcze dla owadów mogą przenikać przez oskórek, wykorzystując wyspecjalizowane struktury infekcyjne, nacisk mechaniczny oraz enzymy rozkładające jego składniki. O wyniku kontaktu decyduje więc relacja między właściwościami gospodarza a zdolnościami konkretnego patogenu. Sama obecność szkieletu zewnętrznego nie przesądza o odporności na zakażenie. [39]
Ważne jest także odróżnienie doświadczenia z ekstraktem powierzchniowym od badania żywego zwierzęcia. Zahamowanie wzrostu grzyba przez wysokie stężenie substancji w laboratorium nie dowodzi, że na ciele owada występuje ona w skutecznym stężeniu. Linienie lub czyszczenie powierzchni może usuwać część materiału zakaźnego, zanim patogen przedostanie się głębiej. Skuteczność zależy jednak od gospodarza, grzyba i momentu kontaktu, dlatego procesów tych nie należy przedstawiać jako pewnej ochrony przed każdą infekcją. [39]
Rozpoznanie zagrożenia i mobilizacja odpowiedzi
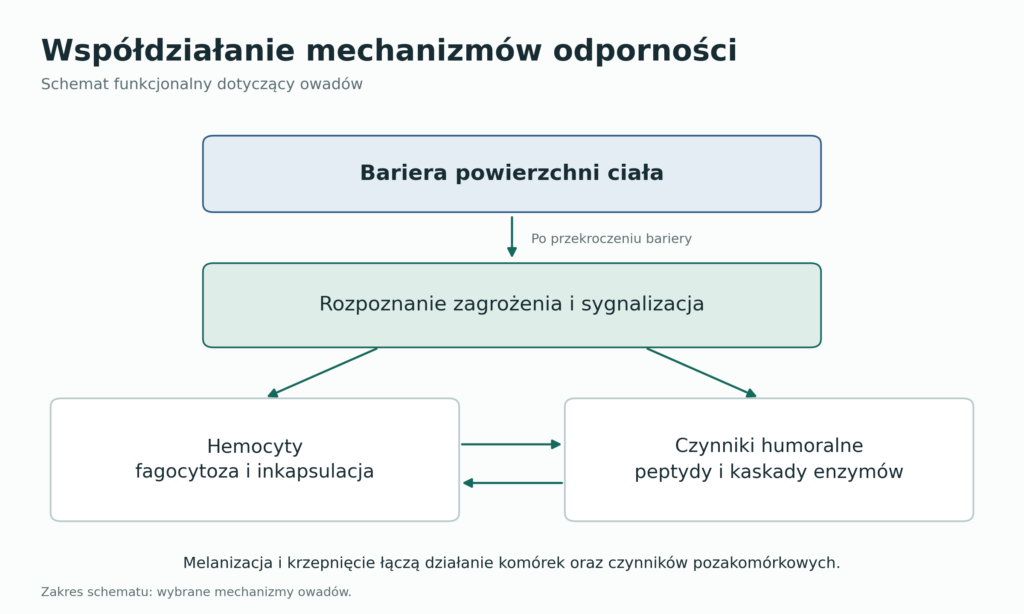
Odporność wrodzona owadów opiera się na wykrywaniu charakterystycznych składników drobnoustrojów i uruchamianiu odpowiednich reakcji. Receptory rozpoznające takie wzorce mogą znajdować się na komórkach albo występować w płynach ustrojowych. Sygnał jest następnie przekazywany przez sieci regulacyjne; dobrze poznane przykłady to szlaki Toll i Imd. Ich aktywacja może zwiększać wytwarzanie czynników przeciwdrobnoustrojowych oraz zmieniać działanie komórek obronnych. Nie jest to jedna reakcja jednakowa wobec wszystkich bakterii, grzybów i pasożytów. [40]
W odpowiedzi uczestniczą hemocyty, ciało tłuszczowe, jelito i inne tkanki. Ciało tłuszczowe, oprócz funkcji metabolicznych, jest ważnym miejscem produkcji czynników obronnych, w tym peptydów przeciwdrobnoustrojowych. Podział na odpowiedź komórkową i humoralną, czyli związaną z czynnikami obecnymi w płynach, ułatwia opis, ale nie tworzy dwóch niezależnych systemów. Komórki wytwarzają cząsteczki działające poza nimi, a sygnały krążące w hemolimfie regulują aktywność komórek. Szczegóły poznane u gatunku modelowego wymagają sprawdzenia przed przeniesieniem na inne owady. [40]
Hemocyty i kontrolowana melanizacja
Hemocyty mogą pochłaniać niewielkie obiekty w procesie fagocytozy. Przy dużej liczbie drobnoustrojów uczestniczą w tworzeniu skupień nazywanych nodulami, natomiast większe ciała obce, w tym jaja niektórych parazytoidów, mogą być otaczane osłoną komórkową. Proces ten określa się jako inkapsulację. Są to różne sposoby ograniczania zagrożenia, związane między innymi z jego rozmiarem i dostępnością dla komórek. Nazwy oraz udział poszczególnych typów hemocytów różnią się między badanymi grupami; schematu opracowanego dla muszki nie należy automatycznie traktować jako pełnego atlasu komórek wszystkich owadów. [41]
Z obroną wiąże się również zamykanie uszkodzeń. Krzepnięcie hemolimfy ogranicza jej utratę i może zatrzymywać mikroorganizmy przy ranie. Hemocyty współpracują przy tym z czynnikami pozakomórkowymi. Procesy naprawy i zwalczania zakażenia częściowo korzystają ze wspólnych elementów, ale nie są synonimami. Podobnie osłona powstająca wokół obcego obiektu może zawierać melaninę, lecz komórkowa inkapsulacja nie zawsze musi prowadzić do wyraźnego ciemnienia. [41]
Melanizacja obronna polega na uruchomieniu reakcji związanych z wytwarzaniem melaniny oraz reaktywnych produktów pośrednich. Ważnym etapem jest aktywacja proenzymu profenolooksydazy do fenolooksydazy przez regulowaną kaskadę enzymatyczną. Reakcja może uczestniczyć w ograniczaniu drobnoustrojów i pasożytów oraz w umacnianiu zamknięcia rany. Jej działanie nie sprowadza się do naniesienia czarnego barwnika na intruza: istotna jest także chemia zachodząca podczas powstawania osłony. [42]
Takie reakcje wymagają kontroli przestrzennej i biochemicznej. Inhibitory enzymów, w tym serpiny, pomagają regulować kaskady prowadzące do melanizacji. Ciemna plama nie pozwala więc sama określić rodzaju zakażenia ani skuteczności całej odpowiedzi. Melanina uczestniczy również w innych procesach fizjologicznych; wygląd oskórka i melanizacja zachodząca w odpowiedzi na patogen wymagają odrębnego wyjaśnienia. Zestawienie tych zjawisk jest użyteczne, o ile nie utożsamia wszystkich form ciemnienia z aktywną chorobą. [42]
Wcześniejszy kontakt może zmienić późniejszą odpowiedź
Określenie „odporność wrodzona” nie oznacza, że przebieg wcześniejszych infekcji nigdy nie wpływa na dalszą ochronę. W doświadczeniach na Drosophila melanogaster wstrzyknięcie niewielkiej dawki bakterii Streptococcus pneumoniae albo bakterii zabitych termicznie poprawiało przeżywanie późniejszego zakażenia tym samym drobnoustrojem. Ochrona zależała od fagocytów i nie rozciągała się po prostu na wszystkie sprawdzane patogeny. Zjawisko określa się jako priming odpornościowy, czyli przygotowanie lub uwrażliwienie odpowiedzi. [43]
Eksperyment nie wykazał powstania układu przeciwciał odpowiadającego odporności nabytej kręgowców. Pokazał natomiast trwałą zmianę funkcjonowania określonej odpowiedzi w wybranym układzie gospodarz–patogen. Takie rozróżnienie chroni przed dwoma uproszczeniami: zaprzeczaniem wszelkim efektom wcześniejszego kontaktu oraz nazywaniem każdego z nich odpowiednikiem szczepienia ssaka. Dla interpretacji potrzebne są informacje o badanym gatunku, czynniku zakaźnym i sposobie oceny ochrony. [43]
Obrona chemiczna i zachowanie jako uzupełnienie ochrony
Obrona przed drapieżnikiem może korzystać z chemii i precyzyjnej mechaniki, choć ma inny bezpośredni cel niż zwalczanie zakażenia. U chrząszczy z plemienia Brachinini wyrzut gorącej wydzieliny zawierającej chinony powstaje dzięki reakcjom w wyspecjalizowanej komorze gruczołu. Badanie żywych chrząszczy metodą obrazowania rentgenowskiego ujawniło pulsacyjny przebieg procesu. Autorzy powiązali go z działaniem struktur oskórkowych na granicy zbiornika i komory reakcyjnej oraz sprzężeniem mechanicznym wywoływanym przez wzrost ciśnienia. Przykład ten pokazuje współpracę reakcji chemicznej z budową narządu, bez potrzeby przypisywania całej ochrony jednej „silnej substancji”. [44]
W innych sytuacjach zachowanie pomaga kierować substancje przeciwdrobnoustrojowe do miejsca kontaktu z patogenem. Tragust i współautorzy wykazali u mrówek Lasius neglectus, że pielęgnowanie czerwiu narażonego na grzyb obejmuje zarówno usuwanie zarodników, jak i odkażanie własną wydzieliną jadową, której głównym aktywnym składnikiem jest kwas mrówkowy. Robotnice pobierają wydzielinę aparatem gębowym, a następnie rozprowadzają ją podczas czyszczenia potomstwa. Działanie ogranicza rozwój zarodników pozostających na powierzchni i zebranych podczas pielęgnacji. Jest to konkretny mechanizm odporności społecznej, w którym fizjologia osobnika współdziała z opieką nad innymi członkami kolonii. [45]
| Mechanizm | Główny poziom działania | Przykład funkcji | Zakres wniosku |
|---|---|---|---|
| Ochrona powierzchni | Oskórek | Ograniczenie wnikania | Zależna od patogenu [39] |
| Fagocytoza i inkapsulacja | Hemocyty | Usuwanie lub izolacja | Różne cele i komórki [41] |
| Melanizacja | Kaskada enzymatyczna | Reakcja przy intruzie lub ranie | Wymaga regulacji [42] |
| Wyrzut wydzieliny | Gruczoł obronny | Odstraszanie napastnika | Badane chrząszcze [44] |
| Czyszczenie z odkażaniem | Zachowanie społeczne | Ochrona czerwiu | Wykazany układ mrówka–grzyb [45] |
Rozdział 9Rozród i rozwój w rytmie sezonów
Rozwój od jaja do postaci dorosłej
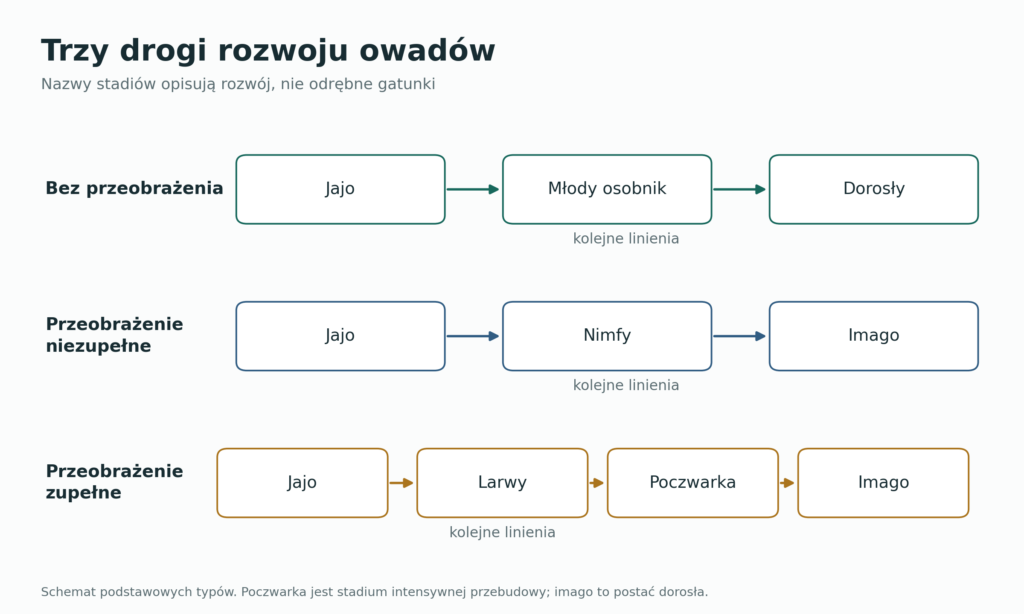
Wygląd zwierzęcia może silnie zmieniać się w ciągu życia. W przypadku owadów pomocny jest podział na rozwój bez przeobrażenia, przeobrażenie niezupełne i przeobrażenie zupełne. W pierwszym modelu młode osobniki przypominają dorosłe. W drugim stadia młodociane, nazywane nimfami, przechodzą kolejne linienia, a rozwój nie obejmuje poczwarki. W trzecim między larwą i postacią dorosłą występuje poczwarka. Dorosłego owada określamy mianem imago. Podstawowy schemat nie obejmuje wszystkich szczególnych modyfikacji cyklu. [46]
| Typ rozwoju | Podstawowa sekwencja | Przykłady | Cecha rozstrzygająca |
|---|---|---|---|
| Bez przeobrażenia | Jajo → młody osobnik → dorosły | Rybiki | Brak stadium poczwarki; niewielkie różnice planu budowy |
| Przeobrażenie niezupełne | Jajo → nimfy → imago | Ważki, prostoskrzydłe | Brak poczwarki, stopniowe powstawanie cech dorosłych |
| Przeobrażenie zupełne | Jajo → larwy → poczwarka → imago | Motyle, chrząszcze, muchówki, błonkówki | Poczwarka pomiędzy larwą a imago |
Podstawą tabeli są opracowania o ewolucji i biologii przeobrażenia. U części owadów bez przeobrażenia linienia występują również po osiągnięciu dojrzałości. [46, 47]
Poczwarka nie jest martwym ani biologicznie bezczynnym stadium. W jej organizmie zachodzą rozległe zmiany: niektóre tkanki ulegają przebudowie, inne zanikają, a struktury właściwe postaci dorosłej rozwijają się z odpowiednich zawiązków. Popularny obraz całkowitego „rozpuszczenia gąsienicy” zaciera tę złożoność. Zewnętrzny bezruch nie opisuje intensywności procesów wewnętrznych. Stadium to wiąże się również z określonymi kosztami, w tym ekspozycją na drapieżniki i patogeny oraz potrzebą zabezpieczenia przebudowy organizmu. [47]
Przebieg rozwoju jest koordynowany przez układ hormonalny. U owadów ekdysteroidy uczestniczą w uruchamianiu procesów związanych z linieniem, a hormon juwenilny wpływa na charakter odpowiedzi tkanek i utrzymanie cech młodocianych. Znaczenie ma stadium, stan tkanek i współdziałanie szlaków regulacyjnych. Objaśnienie „jeden hormon powoduje wzrost, drugi zamienia larwę w dorosłego” byłoby zbyt schematyczne. Poznanie receptorów i regulowanych przez nie genów pozwoliło połączyć opis widocznych stadiów z mechanizmami molekularnymi. [48]
Różnica między larwą a dorosłym ma konsekwencje ekologiczne. Gąsienica i motyl mogą potrzebować różnych zasobów. Roślina żywicielska gąsienicy zapewnia warunki wzrostu, natomiast kwitnące rośliny mogą dostarczać pokarmu imago. Ochrona jednego stadium nie zabezpiecza automatycznie całego cyklu. Ta sama zasada dotyczy organizmów, których młode stadia rozwijają się w wodzie, a dorosłe wykorzystują środowisko lądowe. [6, 49]
Obserwując rozwój, trzeba odróżniać stadium od wieku wyrażonego w dniach. Dwie larwy tego samego gatunku mogą mieć różne tempo wzrostu zależnie od warunków. Również duży rozmiar ciała nie wystarcza do stwierdzenia dojrzałości. W praktycznym opisie lepiej zapisać rozpoznane stadium i okoliczności obserwacji niż przypisywać zwierzęciu nieznany wiek. Kolejne linienia wyznaczają odcinki rozwoju, ale liczba i długość tych odcinków nie są jedną stałą dla wszystkich stawonogów.
Zapłodnienie i miejsce rozwoju zarodka
U większości stawonogów występują odrębne samce i samice. Rozród płciowy obejmuje połączenie gamet, ale sposób ich przekazywania oraz miejsce zapłodnienia różnią się między grupami. Zapłodnienie wewnętrzne jest rozpowszechnione, jednak nie stanowi cechy bezwzględnie wspólnej wszystkim stawonogom. Większość składa jaja. Nie należy zatem opisywać całego typu jednym modelem zaczerpniętym wyłącznie z biologii motyla, pająka lub raka. [50]
Jajorodność i zapłodnienie odpowiadają na różne pytania. Pierwsza informuje, że samica składa jaja, druga dotyczy połączenia komórki jajowej z plemnikiem. Jajo może rozpocząć rozwój także bez zapłodnienia. Z kolei żyworodność oznacza wydawanie na świat rozwiniętych młodych zamiast składania jaj na zewnątrz. U mszyc występują pokolenia żyworodne, a w cyklach obejmujących fazę płciową również samice składające jaja. Zmiana strategii może więc zachodzić w obrębie jednego gatunku. [51]
Partenogeneza mszyc i rozwielitek
Partenogeneza, czyli dzieworództwo, polega na rozwoju potomstwa z niezapłodnionych komórek jajowych. Nie jest synonimem obojnactwa ani samozapłodnienia. U wielu mszyc kolejne pokolenia samic mogą powstawać partenogenetycznie, a później pojawiają się formy uczestniczące w rozrodzie płciowym. Na zmianę wpływają sygnały środowiska, między innymi długość dnia. W takich cyklach część informacji o warunkach oddziałuje na potomstwo przez fizjologię matki. Nie wszystkie linie mszyc realizują jednak identyczny cykl, dlatego nie należy narzucać całej grupie jednego kalendarza rozrodu. [51]
U rozwielitek Daphnia często występuje cykliczna partenogeneza. Samice wytwarzają jaja rozwijające się bez zapłodnienia i umieszczają je w komorze lęgowej pod pancerzykiem. Młode opuszczają tę komorę po zakończeniu odpowiedniego etapu rozwoju. W cyklu płciowym pojawiają się samce oraz jaja wymagające zapłodnienia; występują także linie rozmnażające się obligatoryjnie partenogenetycznie. Rozwój jaj w komorze lęgowej nie powinien być automatycznie utożsamiany z takim samym typem żyworodności jak u mszyc. [52]
Naprzemienne korzystanie z rozrodu partenogenetycznego i płciowego pozwala rozdzielić dwa aspekty historii populacji: zwiększanie liczby osobników w ramach istniejącej linii oraz powstawanie nowych kombinacji genetycznych w rozrodzie płciowym. Nie oznacza to, że rozmnażanie bez udziału samców jest zawsze korzystniejsze. Jego znaczenie zależy od środowiska i biologii danej linii. Opis rodzaju Daphnia powinien zachowywać różnicę między typowym cyklem a wyjątkami występującymi w jego obrębie. [52]
Opieka rodzicielska
Złożenie jaj nie musi kończyć udziału rodzica w rozwoju potomstwa. Dobrze zbadanym przykładem jest skorek pospolity Forficula auricularia. Samica przebywa przy jajach i je pielęgnuje. Boos i współautorzy eksperymentalnie porównali lęgi z matką i bez niej oraz z ekspozycją na zarodniki pleśni i bez takiej ekspozycji. Korzyść z obecności matki dla powodzenia wylęgu była większa przy kontakcie jaj z pleśnią. Samice zwiększały wtedy czas pielęgnowania jaj. [53]
Wyniki wskazują, że opieka może chronić potomstwo również przed mikroorganizmami. Autorzy wiązali działanie pielęgnacji z mechanicznym usuwaniem zarodników i nanoszeniem substancji na powierzchnię jaj. Nie jest to dowód identycznego mechanizmu u wszystkich owadów opiekujących się potomstwem. Pokazuje natomiast, dlaczego zachowanie rodzica stanowi część biologii rozrodu, obok liczby jaj i sposobu zapłodnienia. Samą obecność dorosłego przy jajach warto odróżniać od wykazanego doświadczalnie wpływu tej obecności na rozwój młodych. [53]
Eusocjalność
Najbardziej złożone społeczeństwa owadów obejmują wspólną opiekę nad potomstwem, nakładanie się pokoleń oraz podział funkcji rozrodczych: część osobników rozmnaża się, a inne w większym stopniu uczestniczą w utrzymaniu kolonii. Wspólne miejsce gniazdowania łączy te działania. Taki układ określa się jako eusocjalność. Występuje u mrówek i termitów, a także u części pszczół i os. Nie jest cechą wszystkich owadów ani nawet wszystkich pszczół. [54]
Samo skupienie licznych osobników przy pokarmie nie świadczy o eusocjalności. Nie wystarcza również to, że samica opiekuje się własnymi jajami. Trzeba uwzględnić organizację reprodukcji i relacje między pokoleniami. Dzięki temu można odróżnić opiekę rodzicielską, wspólne użytkowanie miejsca i społeczeństwo z rozrodczym podziałem pracy. Kategorie te opisują odmienne sposoby życia; nie tworzą rankingu, w którym każdy samotniczy gatunek miałby być organizmem mniej doskonałym. [54]
Rytm sezonów i diapauza
Przetrwanie niekorzystnego sezonu wymaga dostosowania rozwoju do warunków środowiska. Jednym z mechanizmów jest diapauza, czyli regulowane zahamowanie określonych procesów rozwojowych lub rozrodczych. Może być obowiązkowym elementem cyklu albo odpowiedzią na sygnały środowiskowe. Długość dnia pomaga przewidywać nadchodzący sezon, a temperatura współuczestniczy w regulacji odpowiedzi. Diapauza nie jest więc po prostu synonimem chwilowej nieruchomości w zimnie. [55]
Gatunki różnią się stadium, w którym przechodzą okres spoczynku, oraz sygnałami rozpoczynającymi i kończącymi ten stan. Poznane mechanizmy obejmują współdziałanie zegara biologicznego, regulacji hormonalnej i zmian fizjologicznych. Nie wszystkie zależności są jednak równie dobrze wyjaśnione: wiele danych pochodzi z wybranych organizmów modelowych i stref klimatycznych. Przy opisie konkretnego gatunku nie wystarcza ogólne zdanie, że „owady zimują jako jaja” albo „wszystkie przesypiają zimę”. [55]
Z punktu widzenia obserwatora sezonowość oznacza potrzebę planowania terminów. Gatunek obecny w siedlisku może pozostawać przez znaczną część roku trudny do zauważenia. Brak dorosłych na kwiatach zimą nie świadczy o braku jego stadiów w glebie, roślinach czy innych schronieniach. Z tego powodu porównywanie obserwacji z różnych miesięcy wymaga znajomości fenologii, czyli czasowego przebiegu zjawisk biologicznych. [56]
Część IIRóżnorodność i środowiska życia
Rozdział 10Owady jako mozaika strategii życiowych
Rozpoznanie rzędu owadów jest punktem wyjścia do zrozumienia ich biologii, lecz nie zastępuje rozpoznania gatunku i stadium rozwoju. Drapieżna larwa, dorosły osobnik odwiedzający kwiaty i poczwarka ukryta w glebie mogą reprezentować jeden gatunek, którego kolejne potrzeby są zupełnie inne. W porównywaniu rzędów szczególnie użyteczne są budowa skrzydeł, sposób pobierania pokarmu oraz relacja między środowiskiem larwy i dorosłego owada. Cechy te tworzą zestaw wskazówek; pojedynczy szczegół rzadko wystarcza do pewnej identyfikacji. [57, 58, 59]
Chrząszcze i znaczenie pokryw
Chrząszcze, Coleoptera, wyróżnia przekształcenie przedniej pary skrzydeł w pokrywy. U typowych dorosłych osobników osłaniają one złożone skrzydła tylne i grzbiet odwłoka. Charakterystyczna linia styku pokryw jest dobrym punktem orientacyjnym, choć u kusakowatych pokrywy są krótkie i pozostawiają znaczną część odwłoka odsłoniętą. Samo posiadanie mocnej osłony nie wyjaśnia diety: w obrębie chrząszczy występują roślinożercy, drapieżniki, grzybożercy oraz zwierzęta wykorzystujące martwą materię organiczną. [57]
Ta różnorodność przekłada się na znaczenie gospodarcze. Roślinożerny ryjkowiec, drapieżna biedronka i chrząszcz uczestniczący w rozkładzie drewna wymagają odmiennych opisów, nawet jeżeli wszystkie mają gryzący aparat gębowy. Larwy mogą być miękkie i łukowato wygięte, smukłe i ruchliwe albo silnie wydłużone. Dlatego odnalezienie larwy w glebie samo w sobie nie uzasadnia uznania jej za szkodnika korzeni. Znaczenie ma identyfikacja i rzeczywiście obserwowany sposób żerowania. [57]
Muchówki i redukcja skrzydeł
Muchówki, Diptera, obejmują znacznie więcej zwierząt niż potocznie rozumiane muchy domowe: należą do nich również komary, ochotki, bzygowate czy łowikowate. U uskrzydlonych postaci dorosłych funkcję powierzchni nośnej pełni przednia para skrzydeł, a tylna tworzy przezmianki. Te niewielkie, ruchliwe narządy dostarczają informacji potrzebnej do stabilizacji lotu. Zestaw „jedna para skrzydeł plus przezmianki” jest bardziej użyteczny w rozpoznawaniu muchówek niż ich wielkość lub ubarwienie. [58]
Larwy muchówek są pozbawione typowych członowanych nóg tułowiowych. Rozwijają się w bardzo różnych miejscach: wodzie, wilgotnej glebie, tkankach roślin i zwierząt lub rozkładającym się materiale. Także dorosłe osobniki różnią się dietą, od pobierających płyny roślinne po drapieżne i krwiopijne. Nie można zatem przypisać całemu rzędowi jednej roli sanitarnej. Ocena znaczenia konkretnej muchówki wymaga połączenia nazwy gatunku, stadium życia i rodzaju kontaktu z otoczeniem. [58]
Błonkówki i odmienne sposoby odżywiania potomstwa
Błonkówki, Hymenoptera, obejmują między innymi pszczoły, mrówki, osy i rośliniarki. U form uskrzydlonych drobne haczyki mogą sprzęgać skrzydło tylne z przednim. Słynna wąska „talia” charakteryzuje wiele dobrze znanych błonkówek, lecz nie rośliniarki o szerokim połączeniu odcinków ciała. Larwa przypominająca gąsienicę na liściu może więc należeć do błonkówek, a nie motyli. [60]
W obrębie tego rzędu wyraźnie widać różnicę między roślinożernością, drapieżnictwem i rozwojem parazytoidalnym. Część błonkówek dostarcza potomstwu upolowane zwierzęta; larwy innych rozwijają się kosztem określonego gospodarza i ostatecznie powodują jego śmierć. Jeszcze inne wykorzystują tkanki roślinne. Znajomość pokarmu dorosłego osobnika nie pozwala bezpośrednio przewidzieć pokarmu jego larwy. Właśnie dlatego drobna błonkówka spotkana na kwiecie może uczestniczyć w zupełnie innych zależnościach ekologicznych niż znajdująca się obok pszczoła. [60]
Motyle i granice potocznych podziałów
Motyle, Lepidoptera, rozpoznaje się między innymi po łuskach pokrywających skrzydła większości dorosłych osobników. Łuski współtworzą ubarwienie, które może uczestniczyć w rozpoznawaniu partnerów. W wielu liniach aparat gębowy dorosłego motyla tworzy zwijaną ssawkę, jednak występują też formy z aparatem zredukowanym oraz przedstawiciele zachowujący gryzące elementy aparatu gębowego. Gąsienice zwykle pobierają pokarm stały. Ich żerowanie może obejmować liście, wnętrza łodyg, korzenie lub inne tkanki. [61]
Podział na motyle dzienne i „ćmy” ma praktyczną wartość, ale nie oznacza dwóch równorzędnych i szczelnie rozdzielonych gałęzi ewolucyjnych. Również nocna aktywność, szare ubarwienie czy dachowate ułożenie skrzydeł nie są bezwyjątkowym zestawem cech wszystkich ciem. W profesjonalnym opisie lepiej podać rozpoznaną rodzinę albo nazwę gatunku, a porę aktywności potraktować jako osobną informację o biologii zwierzęcia. [61]
Pluskwiaki i wyspecjalizowane pobieranie płynów
U pluskwiaków różnoskrzydłych, Heteroptera, aparat kłująco-ssący zawiera cienkie elementy służące nakłuwaniu i pobieraniu płynów, osłonięte przez wargę dolną. U wielu uskrzydlonych form przednie skrzydło ma część nasadową bardziej usztywnioną i część końcową błoniastą. Takie półpokrywy różnią się od pokryw chrząszczy. Ich ułożenie na grzbiecie często daje charakterystyczny zarys przypominający literę X. Nie należy jednak utożsamiać tej cechy z całym szerszym rzędem Hemiptera. [62]
Podobny aparat gębowy umożliwia wykorzystywanie odmiennych zasobów. Wśród różnoskrzydłych są gatunki odżywiające się roślinami, drapieżniki chwytające bezkręgowce oraz krwiopijne pasożyty kręgowców. Niektóre żyją na powierzchni wody, inne pod nią, a wiele na lądzie. Nazwa „pluskwiak” nie jest więc synonimem pluskwy domowej ani określeniem każdego drobnego zwierzęcia mogącego ukłuć człowieka. [62]
Ważki i jętki między wodą a powietrzem
Ważki, Odonata, są drapieżne zarówno w stadium wodnej larwy, jak i postaci dorosłej. Sposób zdobywania pokarmu zmienia się jednak zasadniczo. Larwa posługuje się wysuwaną maską, utworzoną z przekształconej wargi dolnej. Dorosły owad chwyta ofiarę w locie, wykorzystując między innymi odnóża. Ta sama linia rozwojowa łączy zatem drapieżnika dna lub roślinności wodnej z ruchliwym łowcą przestrzeni nad zbiornikiem. [63]
W rozpoznawaniu larw przydatne są też różnice oddechowe. U typowych larw ważek równoskrzydłych widoczne są trzy listkowate przydatki na końcu odwłoka, uczestniczące w wymianie gazowej. U ważek różnoskrzydłych struktury skrzelowe znajdują się wewnątrz końcowego odcinka jelita, przez który przepływa woda. Opis „larwa ważki ma skrzela na końcu ciała” jest zatem zbyt nieprecyzyjny, jeżeli nie wskazuje, o którą grupę chodzi. [63]
Jętki, Ephemeroptera, ilustrują szczególny wariant rozwoju: po opuszczeniu środowiska wodnego pojawia się uskrzydlone stadium subimago, które następnie linieje do imago. Obecność skrzydeł nie musi więc oznaczać zakończenia wszystkich linień. To istotny wyjątek przy interpretacji ogólnej biologii owadów uskrzydlonych. Krótkie życie dorosłej jętki również nie opisuje długości całego cyklu; wcześniejsze stadia wodne mogą zajmować znacznie więcej czasu. Nie można oceniać długości życia gatunku wyłącznie na podstawie krótkiego okresu rójki nad rzeką. [64]
Prostoskrzydłe oraz siatkoskrzydłe i chruściki
U prostoskrzydłych, Orthoptera, ważnym narządem lokomocji są często powiększone tylne nogi umożliwiające skoki. U wielu form przednie skrzydła są węższe i bardziej skórzaste, a tylne rozkładają się wachlarzowato. Liczne gatunki wytwarzają i odbierają dźwięki, co czyni je dobrym przykładem komunikacji wykorzystującej inne bodźce niż barwy. Młode osobniki stopniowo nabywają cechy dorosłych; zewnętrzne zawiązki skrzydeł mogą pomagać w rozpoznaniu stadium. Sam brak rozwiniętych skrzydeł nie wystarcza jednak do odróżnienia młodego osobnika od dorosłej formy o skrzydłach zredukowanych. [65]
Siatkoskrzydłe, Neuroptera, obejmują między innymi złotookowate i mrówkolwowate. Drapieżne larwy złotooków wykorzystują wydłużone, zakrzywione elementy aparatu gębowego do chwytania drobnych ofiar i pobierania ich zawartości. Larwy niektórych mrówkolwów budują w sypkim podłożu lejkowate pułapki. U dorosłych siatkoskrzydłych zwraca uwagę gęsta sieć żyłek na błoniastych skrzydłach. Nie wszystkie osobniki dorosłe żywią się tak samo jak larwy: w części grup pobierają także nektar, pyłek lub spadź. [59]
Chruściki, Trichoptera, pokazują inne zastosowanie wydzieliny przędnej. Wiele larw buduje przenośne domki z ziaren mineralnych lub fragmentów roślin spojonych jedwabiem. Inne tworzą przytwierdzone konstrukcje i sieci służące wychwytywaniu pokarmu z płynącej wody. Domek jest wytworem zachowania zwierzęcia, nie częścią jego oskórka. Jego wygląd może pomóc w rozpoznaniu, ale nie należy zakładać, że każda larwa chruścika ma identyczny sposób budowania schronienia. Dorosłe zwykle mają owłosione skrzydła układane dachowato nad ciałem. [66]
Porównanie wybranych grup owadów
| Grupa | Pomocna cecha dorosłego | Przeobrażenie | Ważna uwaga |
|---|---|---|---|
| Chrząszcze Coleoptera | Przednie skrzydła jako pokrywy | Zupełne | Pokrywy bywają skrócone |
| Muchówki Diptera | Jedna para skrzydeł i przezmianki | Zupełne | Dieta bardzo zróżnicowana |
| Błonkówki Hymenoptera | Skrzydła często sprzęgnięte haczykami | Zupełne | Rośliniarki bez wąskiej talii |
| Motyle Lepidoptera | Skrzydła zwykle pokryte łuskami | Zupełne | Dorosłe nie zawsze mają ssawkę |
| Różnoskrzydłe Heteroptera | Kłujka i często półpokrywy | Niezupełne | Część szerszego rzędu Hemiptera |
| Ważki Odonata | Dwie pary silnie użyłkowanych skrzydeł | Niezupełne | Drapieżne larwy wodne |
| Jętki Ephemeroptera | Delikatne skrzydła i nitki odwłokowe | Niezupełne | Uskrzydlone subimago linieje |
| Prostoskrzydłe Orthoptera | Tylne nogi często skoczne | Niezupełne | Wiele gatunków komunikuje dźwiękami |
| Siatkoskrzydłe Neuroptera | Liczne żyłki poprzeczne skrzydeł | Zupełne | Larwy wielu grup są drapieżne |
| Chruściki Trichoptera | Skrzydła owłosione i dachowate | Zupełne | Różne konstrukcje larwalne |
Tabela przedstawia wybrane grupy i typowe cechy; nie jest pełnym kluczem taksonomicznym. Informacje o skrzydłach odnoszą się do form, u których są one rozwinięte. [57, 58, 59, 60, 61, 62, 63, 64, 65, 66]
Termity jako przykład zmiany klasyfikacji
Termity bywają nazywane „białymi mrówkami”, ale ich pokrewieństwo prowadzi do karaczanów. Badania molekularne wykazały umiejscowienie termitów wewnątrz tej linii, co uzasadnia uwzględnianie ich w Blattodea. Podobieństwa do mrówek dotyczą między innymi życia społecznego i podziału funkcji w kolonii, a nie bliskiej przynależności do tej samej rodziny. To szczególnie czytelny przykład różnicy między podobieństwem ekologicznym a wspólnym pochodzeniem. [67]
W starszych źródłach termity często figurują jako odrębny rząd Isoptera. Czytelnik może zatem spotkać odmienne rangi przy opisie tych samych zwierząt. Porównując dawne opracowania z nowszymi, należy sprawdzić zakres nazwy, zamiast uznawać każdą zmianę liczby rzędów za odkrycie albo wymarcie kolejnej grupy. Zmiana systematyczna może odzwierciedlać nowe rozumienie relacji między od dawna znanymi organizmami. [67]
Rozdział 11Pajęczaki i różnorodność sposobów życia
Pająki jako łowcy i użytkownicy jedwabiu
Pająki, Araneae, zdobywają pokarm za pomocą różnych strategii: budują sieci, polują z zasadzki, aktywnie poszukują ofiar lub chwytają je skokiem. Nieobecność sieci łownej nie wyklucza przynależności do pająków. U części gatunków ważne są drgania przekazywane przez podłoże i nici, u innych wzrok. Przykładem tej drugiej strategii są skakunowate, Salticidae, których duże oczy i zachowania łowieckie wiążą się ze śledzeniem potencjalnej ofiary. [68, 69]
Szczególnie interesujący jest rodzaj Portia. Opisane skakuny tej grupy potrafią polować na inne pająki, wykorzystując podchodzenie, zasadzki i wkraczanie do cudzych sieci. Takie obserwacje pokazują, że etykieta „owadożerny” nie wyczerpuje biologii wszystkich pająków. Zarazem możliwości rozpoznane u wyspecjalizowanego rodzaju nie powinny być automatycznie przypisywane każdemu małemu pająkowi spotkanemu na ścianie. [69]
Wielu pająkom zdobywanie pokarmu ułatwia wstępne trawienie poza ciałem. Wydzieliny trawienne działają na tkanki ofiary, a następnie zwierzę pobiera upłynniony pokarm. Sieć jest tylko jednym z elementów tego procesu. Niektóre pająki owijają zdobycz nićmi, inne opierają się przede wszystkim na bezpośrednim pochwyceniu i działaniu jadu. Zróżnicowanie dotyczy więc zarówno wykrywania ofiary, jej obezwładniania, jak i późniejszego przetwarzania pokarmu. [68]
Jedwab powstaje w gruczołach, z których materiał jest wyprowadzany przez aparaty przędne. Jego właściwości zależą od składu i sposobu formowania włókna. Różne rodzaje nici mogą służyć budowie konstrukcji nośnej sieci, chwytaniu ofiar, mocowaniu, owijaniu jaj i tworzeniu schronień. Pojedyncza sieć może zatem łączyć materiały o odmiennych cechach mechanicznych. Oceniając „wytrzymałość pajęczyny”, trzeba określić, jaki rodzaj jedwabiu i jaką właściwość rzeczywiście zmierzono. [70]
Przędza ma również znaczenie poza polowaniem. Nić asekuracyjna pozwala przemieszczać się i ogranicza skutki spadania, a kokon osłania jaja. Takie zastosowania pomagają zrozumieć, dlaczego pająk niebudujący typowej sieci kolistej nadal potrzebuje aparatu przędnego. Redukowanie całej biologii jedwabiu do widocznej między gałęziami pułapki pomija dużą część funkcji tej wydzieliny. [70]
U pogońcowatych, Lycosidae, samica może nosić kokon przyczepiony do kądziołków przędnych, a po wykluciu młode przez pewien czas pozostają na jej grzbiecie. To przykład opieki nad potomstwem możliwy do zaobserwowania bez przypisywania zwierzętom ludzkich intencji. Pogońcowate obejmują zarówno aktywnie wędrujących łowców, jak i formy korzystające z nor. Samo zobaczenie szybko biegnącego pająka na ziemi nie wystarcza jednak do oznaczenia gatunku. [71]
Kosarze jako odrębna linia
Kosarze, Opiliones, są często brane za pająki ze względu na liczbę nóg i podobne miejsca występowania. U typowego kosarza części ciała łączą się szeroko, bez wąskiego przewężenia charakterystycznego dla pająków. Kosarze nie wytwarzają jedwabiu i nie wykorzystują aparatu jadowego do chwytania zdobyczy. Wiele żyje w wilgotnej ściółce, pod korą lub kamieniami. Długie nogi części gatunków są łatwo dostrzegalne, lecz sam ich rozmiar nie stanowi pełnej diagnozy taksonomicznej. [72]
Ich sposób odżywiania także nie jest jednolity. Oprócz pobierania drobnych bezkręgowców znane jest wykorzystywanie szczątków zwierzęcych i materiału roślinnego. Rozwój po wykluciu prowadzi przez kolejne linienia osobników przypominających zmniejszone postacie dorosłe. W opisie terenowym warto zatem zanotować nie tylko liczbę nóg, lecz także kształt całego ciała, miejsce znalezienia i rzeczywistą aktywność zwierzęcia. Te informacje ograniczają pomyłki wynikające z potocznej nazwy „pająk o długich nogach”. [72]
Zaleszczotki jako drobni drapieżcy
Zaleszczotki, Pseudoscorpiones, przypominają miniaturowe skorpiony przede wszystkim dzięki dużym szczypcowatym nogogłaszczkom. Nie mają jednak charakterystycznej wydłużonej części odwłoka zakończonej kolcem jadowym. Ich spłaszczona budowa ułatwia korzystanie ze szczelin pod korą i innych ciasnych kryjówek. Polują na drobne bezkręgowce, a u wielu gatunków gruczoły jadowe znajdują się w obrębie szczypiec nogogłaszczków. [73]
Nieoczywistą cechą zaleszczotków jest wytwarzanie jedwabiu przez struktury związane ze szczękoczułkami. Miejsce jego wyprowadzania różni się więc od aparatu przędnego pająków. Wiele zaleszczotków wykorzystuje większe zwierzęta jako środek transportu: przyczepia się do ich ciała i przemieszcza wraz z nimi. Taką forezę należy odróżniać od odżywiania się kosztem nosiciela. Sam widok małego stawonoga uczepionego większego nie dowodzi jeszcze pasożytnictwa. [73]
Skorpiony i odbieranie bodźców z podłoża
Skorpiony, Scorpiones, łączą szczypcowate nogogłaszczki z aparatem jadowym na końcu tylnej części ciała. Szczypce służą do manipulowania zdobyczą, a sposób obezwładniania zależy od sytuacji i gatunku. W orientacji ważne są bodźce mechaniczne oraz chemiczne. Na spodzie ciała znajdują się charakterystyczne narządy grzebieniowe, pectines, uczestniczące w odbieraniu informacji z podłoża. [74]
Rozród skorpionów obejmuje przekazywanie spermatoforu, czyli pakietu nasienia pozostawianego przez samca. Młode rodzą się żywe i początkowo mogą przebywać na grzbiecie matki. Obecność szczypiec nie oznacza więc, że całe życie skorpiona sprowadza się do polowania: jego biologia obejmuje rozbudowane zachowania rozrodcze i opiekę nad młodymi. Dobrym językiem opisu jest wskazanie konkretnej funkcji narządu i obserwowanego zachowania, bez oceniania całej grupy przez pryzmat wyglądu przypominającego broń. [74]
Roztocze poza stereotypem pasożyta
Roztocze obejmują liczne formy wolno żyjące oraz pasożytnicze. Wśród ich zasobów pokarmowych znajdują się drobne bezkręgowce, grzyby, tkanki roślinne, materia organiczna i płyny zwierzęce. Występują w glebie, ściółce, na roślinach, w wodach oraz na innych organizmach. Tak szerokiego zróżnicowania nie da się oddać opisem jednej typowej diety. Kleszcze stanowią dobrze znany przykład wyspecjalizowania w pobieraniu krwi kręgowców, lecz nie reprezentują sposobu odżywiania wszystkich roztoczy. [75, 76]
Przy rozpoznawaniu ważne są stadium i budowa aparatu gębowego. Typowa larwa roztocza ma trzy pary nóg, podczas gdy późniejsze stadia wielu grup mają ich cztery. Kontur ciała i zatarte z zewnątrz granice jego odcinków mogą utrudniać zastosowanie szkolnego schematu pajęczaka. Wiarygodne oznaczenie drobnych form często wymaga powiększenia oraz cech dostępnych dopiero w specjalistycznym kluczu. Z samego koloru i wielkości nie należy wnioskować, czy obserwowany roztocz jest pasożytem, drapieżnikiem czy konsumentem grzybów. [75, 76]
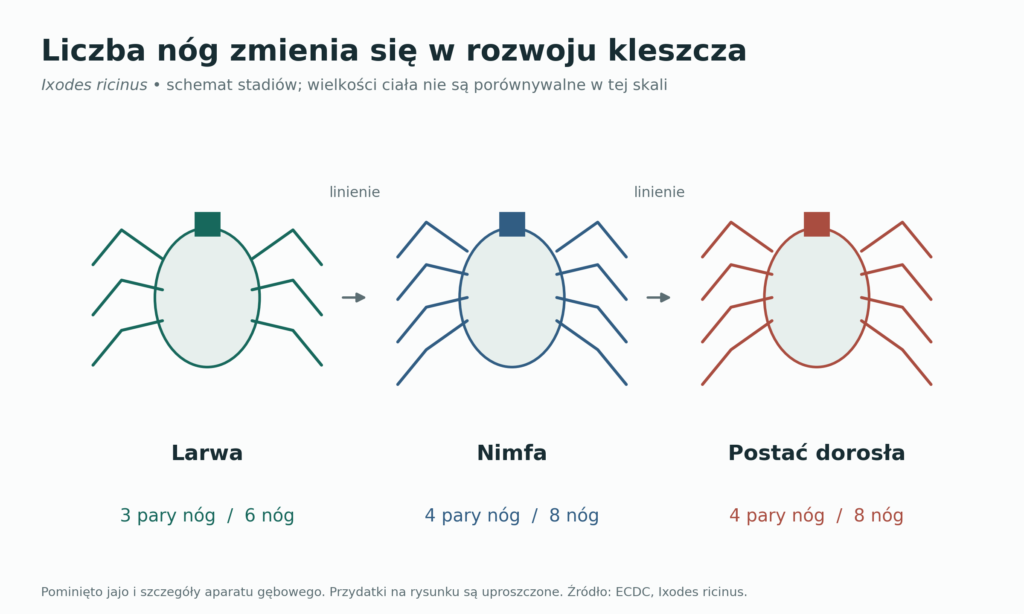
Jeszcze dalej idącym wyjątkiem od reguły ośmiu nóg są szpeciele, Eriophyoidea. Te drobne roztocze mają tylko dwie pary odnóży umieszczonych w przedniej części wydłużonego ciała. Liczba nóg nie usuwa ich z pajęczaków: jest wynikiem przekształcenia planu budowy. W identyfikacji analizuje się między innymi kształt tarczki grzbietowej i układ drobnych struktur powierzchni. Tak wyspecjalizowanych zwierząt nie da się poprawnie oznaczać wyłącznie według uproszczonej zasady „sześć nóg oznacza owada, osiem pajęczaka”. [77]
Szpeciele dostarczają też przykładu przekształcania środowiska przez żerującego stawonoga. Aceria hibisci pobiera zawartość komórek rośliny, a jego żerowaniu mogą towarzyszyć nieprawidłowe wyrośla tkanek hibiskusa. Galas lub inna zmiana rośliny jest reakcją organizmu gospodarza, nie osobnym stadium rozwojowym roztocza. Podobny wygląd zmiany nie dowodzi jednak obecności tego samego sprawcy: wyrośla mogą być związane również z innymi stawonogami i czynnikami biologicznymi. Diagnoza powinna łączyć wygląd uszkodzenia z identyfikacją organizmu, który je wywołał. [78]
| Grupa | Pomocna cecha | Przykładowa strategia | Czego nie utożsamiać |
|---|---|---|---|
| Pająki Araneae | Aparat przędny | Sieć, zasadzka lub aktywne polowanie | Brak sieci nie wyklucza pająka |
| Kosarze Opiliones | Szerokie połączenie części ciała | Drapieżnictwo lub zbieranie pokarmu | Długie nogi nie oznaczają pająka |
| Zaleszczotki Pseudoscorpiones | Szczypce, brak skorpionowego zakończenia ciała | Polowanie w drobnych kryjówkach | Foreza nie jest sama w sobie pasożytnictwem |
| Skorpiony Scorpiones | Szczypce i końcowy aparat jadowy | Łowiectwo i odbiór drgań | Szczypce są nogogłaszczkami |
| Roztocze | Bardzo zróżnicowany aparat gębowy | Wiele typów odżywiania | Nie wszystkie są pasożytami |
Zestawienie dotyczy rozpoznawania i ekologii tradycyjnie wyróżnianych grup pajęczaków, a nie rozstrzygnięcia ich wewnętrznej filogenezy. [68, 70, 72, 73, 74, 75, 76]
Rozdział 12Morskie szczękoczułkowce
Ostrogony
Ostrogony bywają nazywane po angielsku horseshoe crabs, lecz nie są krabami. Należą do szczękoczułkowców. Ich duża tarcza i końcowy telson nadają ciału charakterystyczny zarys, który łatwo prowadzi do niewłaściwych analogii. Telson nie jest skorpionowym kolcem jadowym. Pomaga między innymi w odwracaniu ciała po przewróceniu na grzbiet. Podobny zewnętrzny kształt zakończenia ciała nie przesądza więc o identycznej funkcji. [80]
W przypadku ostrogona amerykańskiego, Limulus polyphemus, istotnym elementem cyklu jest składanie jaj na wybrzeżach. Ochrona tego zwierzęcia wiąże się również z zależnościami między jego rozrodem a zasobami pokarmowymi innych organizmów, w tym ptaków. Ostrogon jest dobrym przypomnieniem, że szeroko rozpoznawalne zwierzę może należeć do grupy taksonomicznej zupełnie innej niż sugeruje jego potoczna nazwa. [80]
Kikutnice
Kikutnice, Pycnogonida, są morskimi stawonogami o silnie rozwiniętych odnóżach i niewielkiej centralnej części ciała. W badaniu opublikowanym w 2017 roku wykazano szczególny mechanizm transportu tlenu: skurcze rozgałęzionego układu uchyłków jelita napędzają przepływy płynu jelitowego i hemolimfy. Perystaltyka uczestniczy zatem w zadaniu, które w schematycznym opisie fizjologii kojarzy się przede wszystkim z pracą serca. [81]
Nie oznacza to utożsamienia jelita z sercem ani zniesienia podziału narządów według funkcji. Pokazuje natomiast, że organizm może wykorzystywać tę samą strukturę w kilku powiązanych procesach. Wspólne określenie „otwarty układ krążenia” obejmuje różne szczegółowe mechanizmy, których poznanie wymaga bezpośrednich obserwacji fizjologicznych. Wynik dotyczący kikutnic jest konkretnym przykładem takiego zróżnicowania, a nie uniwersalnym modelem wszystkich szczękoczułkowców. [81]
Rozdział 13Wije i życie w przestrzeniach podłoża
Wije, Myriapoda, obejmują pareczniki, dwuparce, skąponogi i pierwowije. Dwie ostatnie grupy są znacznie drobniejsze i mniej widoczne w codziennych obserwacjach. U pierwowijów czułki są długie i nitkowate, natomiast skąponogi mają charakterystyczne czułki rozgałęzione. Ich obecność przypomina, że „wije” nie oznaczają wyłącznie dużych krocionogów i szybko biegających pareczników. Do poznania różnorodności tej grupy potrzebna jest obserwacja gleby i ściółki w skali drobniejszych organizmów. [82]
Różne funkcje odnóży parecznika
U pareczników najbardziej znaną specjalizacją są jadowe szczękonóża z przodu ciała. Mniej oczywista jest odmienność ostatniej pary odnóży. W zależności od linii może ona uczestniczyć w odbieraniu bodźców, obronie i zachowaniach związanych z rozrodem; często nie pełni typowej funkcji napędowej podczas chodzenia. Wydłużenie ostatnich odnóży nie musi więc oznaczać po prostu wydajniejszego biegu. [83]
Przegląd porównawczy wykazał duże zróżnicowanie ich kształtów, uzbrojenia powierzchni i struktur czuciowych. Niektóre są cienkie i wydłużone, inne masywne lub wyraźnie przekształcone. Dla identyfikacji ważne bywają różnice między płciami. Ten przykład dobrze pokazuje, dlaczego zliczenie nóg nie wystarcza do pełnego opisu wija: trzeba również rozpoznać ich rozmieszczenie, budowę i funkcję. Końcowe przydatki ciała dostarczają informacji, których nie zawiera ogólny schemat wielosegmentowego tułowia. [83]
Przybywanie segmentów podczas rozwoju
U dwuparców wzrost może obejmować pojawianie się kolejnych segmentów i odnóży w toku rozwoju po wykluciu. Proces ten nazywa się anamorfozą. Nie zachodzi jednak w jednym identycznym rytmie we wszystkich liniach. W euanamorfozie nowe segmenty mogą przybywać także po osiągnięciu dojrzałości płciowej. W hemianamorfozie ich dodawanie ustaje, choć linienia trwają dalej. W teloanamorfozie stadium kończące przyrost segmentów jest zarazem ostatnim stadium rozwojowym. [84]
Praktyczny wniosek dotyczy porównywania okazów. Mniejsza liczba segmentów może wynikać ze stadium rozwoju, a nie z przynależności do innego gatunku. Rekordu liczby nóg nie należy przedstawiać jako stałej właściwości wszystkich osobników. W opisie obserwacji warto podać rozmiar, stadium, a jeśli jest znana — także płeć zwierzęcia. Biologia rozwoju tłumaczy tu zmienność, która przy oglądaniu pojedynczej fotografii może zostać pomylona z różnicą taksonomiczną. [84]
Obrona chemiczna dwuparców
U wielu dwuparców ważną część ochrony przed drapieżnikami stanowią wydzieliny chemiczne. Ich skład różni się między liniami ewolucyjnymi; badania łączące filogenomikę i analizy chemiczne pozwalają odtwarzać powstawanie złożonych systemów obronnych. Nie istnieje jeden uniwersalny „jad krocionoga”. Wydzielina uwalniana na powierzchnię ciała lub w pobliże napastnika jest innym rozwiązaniem niż wprowadzanie jadu przez szczękonóża parecznika. [85]
Porównanie tych grup wymaga również rozdzielenia obrony od pobierania pokarmu. Dwuparce wykorzystujące rozkładający się materiał roślinny nie pełnią tej samej roli co pareczniki polujące na bezkręgowce. Obie grupy często spotyka się jednak w wilgotnych mikrosiedliskach, pod drewnem, kamieniami lub w ściółce. Ich współwystępowanie w jednym kawałku podłoża nie oznacza identycznej funkcji ekologicznej. [86]
| Grupa wijów | Cecha pomocna | Typowy kierunek specjalizacji | Ważne ograniczenie |
|---|---|---|---|
| Pareczniki Chilopoda | Jedna para nóg na odcinkach krocznych | Drapieżnictwo i szczękonóża jadowe | Ostatnia para nóg bywa wyspecjalizowana |
| Dwuparce Diplopoda | Dwie pary nóg na większości diplosegmentów | Wykorzystywanie materii organicznej | Liczba segmentów może rosnąć z wiekiem |
| Skąponogi Pauropoda | Rozgałęzione czułki | Życie w drobnych przestrzeniach gleby | Potrzebne znaczne powiększenie |
| Pierwowije Symphyla | Nitkowate czułki i smukłe ciało | Życie w podłożu | Nie są młodymi parecznikami |
Tabela zestawia cechy orientacyjne, a nie pełną diagnozę gatunkową. Nie wszystkie wymienione właściwości da się wiarygodnie ocenić na zwykłej fotografii terenowej. [82, 83, 84, 86]
Rozdział 14Skorupiaki od planktonu do brzegu lasu
Skorupiaki obejmują znacznie więcej form niż raki, kraby i krewetki. Drobne organizmy planktonowe, zwierzęta żyjące między ziarnami osadu, osiadłe filtratory oraz mieszkańcy wilgotnej ściółki pokazują, jak szeroki zakres funkcji może przyjmować stawonogowy plan budowy. W ich rozpoznawaniu przydaje się ogląd całego zestawu przydatków: czułków, narządów pobierania pokarmu, odnóży tułowia i odwłoka. Poszczególne pary mogą służyć pływaniu, chodzeniu, chwytaniu, wentylacji albo rozrodowi. Liczba widocznych „nóg” na zdjęciu bywa zatem mniej użyteczna niż ustalenie, z którego odcinka ciała wyrastają. [87]
W poniższym przeglądzie nazwa skorupiaki służy opisywaniu organizmów tradycyjnie tak określanych. Ich relacje z sześcionogami przedstawiono w rozdziale o systematyce. Zestawienie ekologiczne nie nadaje wszystkim wymienionym grupom jednakowej rangi taksonomicznej. Podobnie terminy plankton i bentos opisują sposób życia: pierwszy wiąże się z tonią wodną i przemieszczaniem zależnym od ruchów wody, drugi z dnem. W obrębie dużych grup skorupiaków występują organizmy zajmujące różne części środowiska, dlatego sam rozmiar ciała ani potoczna nazwa nie wystarczają do przewidzenia ich roli. [88, 89]
Widłonogi i znaczenie drobnych organizmów
Widłonogi, czyli Copepoda, zasiedlają morza, wody słodkie, przestrzenie między ziarnami osadu, zbiorniki podziemne i niewielkie nagromadzenia wody związane z roślinnością. Smithsonian opisuje zarówno gatunki wolno żyjące, jak i związane z innymi zwierzętami. Część jest pasożytami. Obraz „drobnego pływaka zjadającego glony” odnosi się więc do określonych przedstawicieli, a nie do wszystkich widłonogów. Ich znaczenie w sieciach pokarmowych wynika między innymi z przekazywania materii od drobnych producentów i konsumentów do większych zwierząt. [88]
Widłonogi dobrze pokazują również, że niewielki rozmiar nie oznacza małego zróżnicowania sposobów życia. Badania Natural History Museum obejmują powtarzające się zasiedlanie wód słodkich przez linie pochodzenia morskiego oraz powstawanie pasożytnictwa. Dwa podobnie drobne skorupiaki mogą zatem mieć zupełnie inne wymagania: jeden korzysta z otwartej toni, drugi z przestrzeni między ziarnami osadu, a trzeci z określonego gospodarza. Dla badań różnorodności oznacza to konieczność pobierania prób z odpowiednich mikrosiedlisk. Próbka planktonu nie przedstawia automatycznie całej lokalnej fauny widłonogów. [89]
Sposób zdobywania pokarmu zależy również od mechaniki przepływu wody. Wśród strategii zooplanktonu omawianych przez Kiørboe są wytwarzanie prądu pokarmowego, aktywne poszukiwanie ofiar i oczekiwanie na ich zbliżenie. Poruszanie przydatkami może zwiększać częstość kontaktu z cząstkami, lecz wymaga energii i zmienia sygnały odbierane przez drapieżniki. Oczekiwanie ogranicza niektóre koszty, ale zależy od ruchliwości potencjalnej ofiary. Nie istnieje zatem jedna strategia najlepsza w każdym środowisku. [90]
Takie spojrzenie pozwala wyjaśnić, dlaczego podobne stężenie pokarmu nie musi zapewniać jednakowych warunków różnym konsumentom. Ważne są rozmiar cząstek, ich ruch, możliwość rozpoznania oraz sposób wychwytywania. Określenie „filtrator” może być użytecznym skrótem funkcjonalnym, lecz nie powinno sugerować, że wszystkie planktonowe skorupiaki działają jak bierne sito. Przy porównywaniu gatunków trzeba sprawdzić rzeczywisty mechanizm pobierania pokarmu. Wynika z niego zarówno dostępność zasobów, jak i koszt oraz ryzyko żerowania. [90]
Skrzelonogi i życie w zbiornikach okresowych
Skrzelonogi, Branchiopoda, obejmują między innymi rozwielitki, przekopnice oraz solowce. Charakterystyczne dla wielu przedstawicieli są spłaszczone przydatki tułowiowe, uczestniczące w przemieszczaniu wody, pobieraniu pokarmu i wymianie gazowej. W obrębie grupy występują konsumenci glonów i zawiesiny organicznej, a także drapieżniki. Jej przedstawiciele zajmują przede wszystkim wody śródlądowe, w tym zbiorniki okresowe oraz silnie zasolone. Określenie „skorupiak słodkowodny” nie powinno więc zastępować opisu rzeczywistych wymagań wszystkich skrzelonogów. [91]
U gatunku Branchinecta lynchi, opisywanego przez amerykańską służbę ochrony przyrody, przetrwanie wysychania zbiornika opiera się na odpornych jajach spoczynkowych. Pozostają one w podłożu po zakończeniu okresu wodnego, a wykluwanie następuje po powrocie sprzyjających warunków. Organizm nie musi przeżyć suchej pory jako aktywnie żerujący dorosły. To zasadnicza różnica między odpornością określonego stadium a odpornością całego cyklu życiowego. Zachowanie niecki okresowego zbiornika ma zatem znaczenie także wtedy, gdy powierzchnia jest sucha i nie widać w niej zwierząt. [92]
Małżoraczki i zapis środowiska
Małżoraczki, Ostracoda, mają charakterystyczny dwuklapowy pancerzyk. Zewnętrzne podobieństwo do bardzo małych małży nie świadczy o pokrewieństwie z mięczakami: wewnątrz osłony znajduje się stawonóg z członowanymi przydatkami. Klapy łączą się po stronie grzbietowej, a ich powierzchnia może zachowywać ślady przyczepów mięśni. Budowa pancerzyka jest ważna zarówno dla rozpoznawania współczesnych osobników, jak i badania materiału kopalnego. [93]
Zmineralizowane elementy osłony stosunkowo często zachowują się w osadach. British Geological Survey opisuje małżoraczki z bardzo różnych środowisk wodnych, od niewielkich zbiorników po głębiny morskie, oraz ich zastosowanie w odtwarzaniu dawnych warunków. Interpretacja takiego materiału wymaga znajomości ekologii rozpoznanych form i sposobu powstania osadu. Pojedyncza skorupka bez właściwego kontekstu nie stanowi samodzielnego termometru ani miernika zasolenia. Trzeba też odróżniać zespół żyjący w danym miejscu od szczątków, które mogły zostać przemieszczone. [93]
Wąsonogi i przejście do życia osiadłego
Pąkle i kaczenice należą do wąsonogów. Ich wygląd dorosły łatwo przesłania skorupiacze pochodzenie, lecz ujawnia je rozwój. U badanych wąsonogów Thoracica po stadiach pływika występuje wyspecjalizowana larwa cyprydalna, która poszukuje miejsca osiedlenia. Następnie organizm przytwierdza się do podłoża i przechodzi głęboką przebudowę. W badaniu Maruzza i współautorów dokumentowano między innymi zmianę ustawienia tułowia, przebudowę mięśni, zrzucenie osłony larwalnej oraz powstawanie elementów osłony osobnika młodocianego. [94]
Dorosłe formy objęte tym opisem pobierają zawieszone cząstki za pomocą wysuwanych przydatków. Mobilność larwy i osiadłość dorosłego pełnią odmienne funkcje w jednym cyklu: rozprzestrzenianie oraz wybór podłoża przypadają na inny etap niż długotrwałe żerowanie. U analizowanego gatunku larwa cyprydalna nie pobiera pokarmu, więc do chwili rozpoczęcia żerowania po osiedleniu korzysta z ograniczonych zapasów. Przebudowa ciała wiąże się zatem z konkretnym ograniczeniem energetycznym. [94]
Pancerzowce i zróżnicowane przydatki
Wśród pancerzowców, Malacostraca, znajdują się między innymi dziesięcionogi, obunogi i równonogi. U dziesięcionogów pięć par odnóży tułowiowych tworzy charakterystyczny zestaw związany przede wszystkim z lokomocją; część może być zakończona szczypcami. Inne przydatki są przekształcone w narządy związane z pobieraniem pokarmu. Nazwa „dziesięcionogi” odnosi się więc do określonego zespołu odnóży, a nie do wszystkich par przydatków na całym ciele. Takie liczenie pomaga uniknąć błędu, w którym szczypce uznaje się za dodatkowe kończyny niezwiązane z resztą planu budowy. [95, 96]
Pustelniki ilustrują inną specjalizację: ochronę miękkiego odwłoka za pomocą pustej muszli ślimaka. Muszla pochodzi od innego zwierzęcia, podczas gdy oskórek pustelnika podlega własnemu cyklowi linienia. Gdy dotychczasowe schronienie staje się nieodpowiednie, skorupiak może poszukiwać większego. Australian Museum opisuje ocenianie potencjalnych muszli przez ich obracanie i sprawdzanie. Wzrost łączy się tu z dostępnością zewnętrznego zasobu, którego zwierzę samo nie wytwarza. [97]
Nie należy także przypisywać wszystkim dziesięcionogom jednego typu diety. Opisywany przez muzeum Pagurus sinuatus zjada padlinę, ale może również polować. Krab błękitny Callinectes sapidus, omówiony w materiałach NOAA, korzysta z różnorodnych bezkręgowców, ryb, materiału roślinnego i detrytusu. Taka rozpiętość diety pozwala łączyć różne drogi przepływu materii w jednym zespole dennym. Konkretna rola zależy jednak od gatunku, wielkości osobnika oraz dostępności zasobów, dlatego nazwa rzędu nie wystarcza do odtworzenia sieci pokarmowej. [97, 98]
Szczętki, potocznie nazywane krylem, wprowadzają do tego przeglądu perspektywę otwartego oceanu. U kryla antarktycznego Euphausia superba rozwój obejmuje opadanie jaj i późniejsze przemieszczanie larw ku płytszym warstwom. Młode osobniki korzystają z pokarmu związanego z dolną powierzchnią lodu morskiego. Zmiana warunków lodowych może więc oddziaływać szczególnie silnie na określone etapy życia, nawet jeśli dorosłe zwierzęta obserwuje się w otwartej wodzie. Oceniając wymagania gatunku, trzeba śledzić pełny cykl oraz pionową strukturę środowiska. [99]
| Grupa | Przykładowe środowisko | Cecha istotna funkcjonalnie | Na co uważać w opisie |
|---|---|---|---|
| Widłonogi | Toń, osady, wody podziemne | Wiele sposobów żerowania | Nie wszystkie są wolno żyjącym planktonem [88, 89] |
| Skrzelonogi | Wody śródlądowe i okresowe | Zróżnicowane przydatki tułowiowe | Odporne stadium nie oznacza odporności dorosłego [91, 92] |
| Małżoraczki | Dno i toń różnych wód | Dwuklapowy pancerzyk | Podobieństwo do małża jest powierzchowne [93] |
| Wąsonogi Thoracica | Podłoża w środowisku morskim | Larwa osiedlająca się przed przebudową | Osiadłość nie obejmuje wszystkich stadiów [94] |
| Dziesięcionogi | Morza i wody śródlądowe | Pięć par określonych odnóży tułowia | Przydatków całego ciała jest więcej [96] |
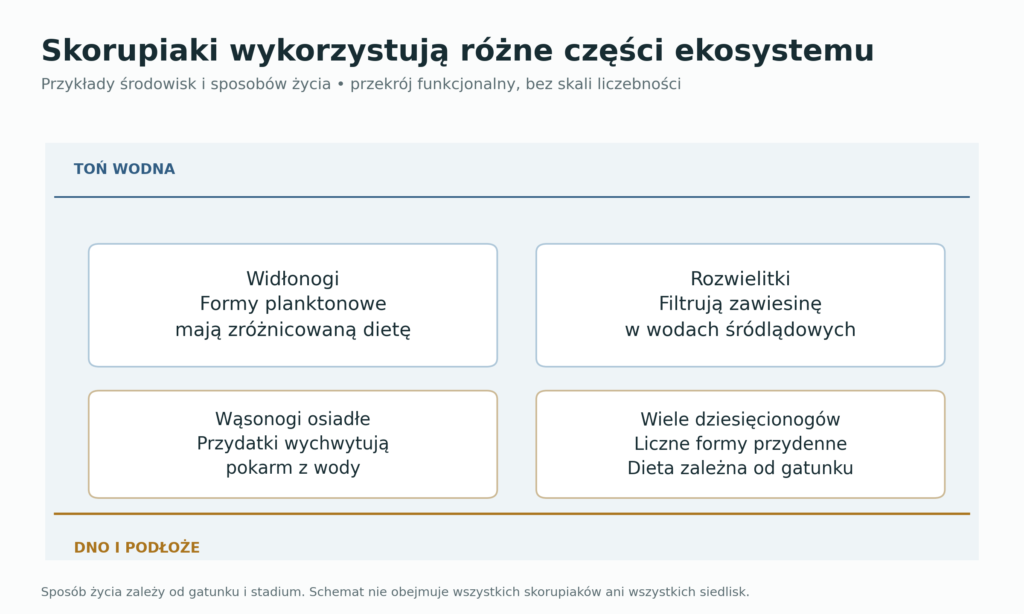
Rozdział 15Przystosowania do życia w różnych środowiskach
Środowisko działa na organizm przez konkretne procesy: wymianę gazów, przepływ wody, transport jonów, dostępność energii i tempo reakcji biochemicznych. Dlatego informacja, że zwierzę żyje w wodzie, na pustyni albo w chłodnym klimacie, jest dopiero początkiem wyjaśnienia. Należy ustalić, jakie wyzwanie pokonuje, którym narządem lub zachowaniem i w jakim stadium rozwoju. Zestawienie osmoregulacji skorupiaków, oddychania wodnego owada oraz odporności cyst ujawnia odmienne mechanizmy, które prowadzą do podobnego skutku: utrzymania funkcji organizmu w określonych warunkach. [101, 102, 103]
Zasolenie i praca skrzeli
Wymiana wody i soli między ciałem a otoczeniem nie zatrzymuje się wraz z zanurzeniem zwierzęcia. Przy różnicy stężeń organizm musi ograniczać niekorzystne przepływy albo je kompensować. U skorupiaków ważnym miejscem tej regulacji są skrzela. Nabłonki skrzelowe mogą aktywnie transportować jony, a szczegółowy mechanizm zależy od gatunku i zakresu zasolenia, do którego jest przystosowany. Skrzela uczestniczą również w regulacji równowagi kwasowo-zasadowej i usuwaniu amoniaku. Ich roli nie wyczerpuje dostarczanie tlenu. [101]
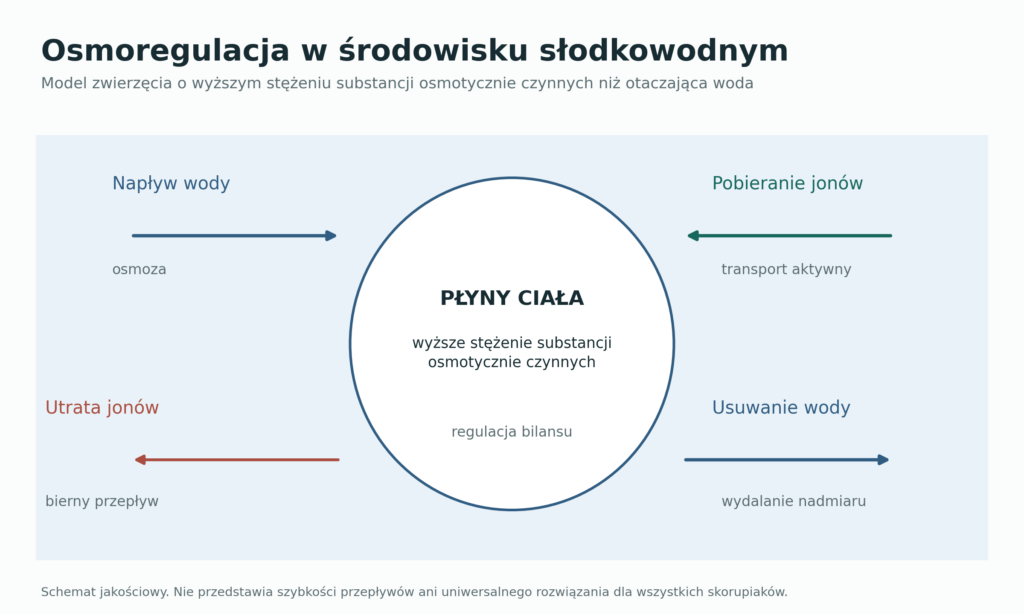
Plastron jako fizyczne skrzele
Wodny pluskwiak Aphelocheirus aestivalis wykorzystuje w stadium dorosłym plastron: cienką warstwę gazu utrzymywaną przy powierzchni ciała przez drobne włoski. Warstwa ta łączy się z układem tchawkowym. Tlen może przenikać z wody do gazu, a następnie do tchawek. Jest to rozwiązanie odmienne od zwykłego zapasu powietrza, który po zużyciu wymaga odnowienia przy powierzchni. W badaniu Seymoura i współautorów bezpośrednio mierzono warunki tlenowe w plastronie i otaczającej wodzie. [102]
Wydajność takiego narządu zależy od ruchu wody wokół ciała i zapotrzebowania zwierzęcia. Cienka warstwa graniczna ułatwia wymianę, natomiast w wodzie stojącej opór dyfuzyjny wzrasta. Z tego powodu schemat „owad oddycha pod wodą” wymaga uzupełnienia o warunki przepływu oraz aktywność osobnika. Nawet bardzo wyspecjalizowane przystosowanie ma granice fizyczne; sam jego opis nie dowodzi odporności na niedotlenienie każdego zbiornika. [102]
Życie lądowe skorupiaków
Przegląd Marina i Tiunova rozróżnia drobne skorupiaki funkcjonujące w mikroskopijnych warstwach wody od większych form aktywnych na lądzie. Wilgotna gleba, mech i ściółka mogą wyglądać na środowisko suche, a jednocześnie zawierać przestrzenie wodne istotne dla bardzo małych zwierząt. Znalezienie widłonoga w glebie nie oznacza więc automatycznie, że jego fizjologia odpowiada fizjologii owada poruszającego się w suchym powietrzu. O sposobie życia rozstrzyga skala, w której organizm kontaktuje się z otoczeniem. [95]
Niezależność dorosłego od stałego zanurzenia nie przesądza również o niezależności rozrodu od wody. Wśród lądowych dziesięcionogów są formy, których larwy rozwijają się w morzu, oraz linie związane z wodami śródlądowymi i skróconym rozwojem. Przy porównywaniu stopnia przystosowania do lądu trzeba zatem opisać przynajmniej oddychanie, utrzymanie bilansu wodnego i miejsce rozwoju potomstwa. Sama obserwacja dorosłego kraba daleko od brzegu mówi o jego aktywności, ale nie odtwarza wszystkich zależności cyklu życiowego. [95]
U równonogów lądowych utrzymanie bilansu wodnego obejmuje także zachowanie. Broly i współautorzy wykazali doświadczalnie, że skupianie się osobników Porcellio scaber ogranicza utratę wody w przeliczeniu na pojedyncze zwierzę. Korzyść zmieniała się wraz z wielkością skupiska i nie rosła jednakowo przy każdym kolejnym osobniku. Taki wynik łączy biologię społeczną z prostą geometrią powierzchni narażonej na wysychanie. Zgrupowanie pod kamieniem może więc pełnić funkcję fizjologiczną, choć nie tworzy kolonii o organizacji znanej u mrówek. [104]
Przetrwanie wysuszenia w stadium spoczynkowym
U solowca Artemia franciscana odporność na wysuszenie wiąże się z zarodkiem zamkniętym w cystach oraz odpowiednim stanem fizjologicznym. W pracy opublikowanej w 2025 r. Rey-Alfonso i współautorzy badali udział trehalozy, cukru związanego z ochroną struktur komórkowych. Za pomocą interferencji RNA osłabiali procesy jej syntezy lub transportu. Ograniczenie nagromadzenia trehalozy pogarszało przeżywanie przez zarodki warunków wysuszenia i zamarzania. Był to eksperyment dotyczący funkcji określonych procesów, a nie tylko wykrycie obecności cukru. [103]
Rozróżnienie korelacji i mechanizmu jest tu szczególnie pouczające. Sama informacja, że odporny organizm zawiera daną substancję, pozwala zaproponować hipotezę. Dopiero celowe zaburzenie jej wytwarzania lub transportu i porównanie skutków z kontrolą dostarcza silniejszych przesłanek o udziale w odporności. Wyniku nie należy jednak przenosić na każde stadium solowca ani na wszystkie stawonogi. Tolerancja zarodka w odpowiednio przygotowanej cyście nie jest tożsama z tolerancją pływającego dorosłego osobnika. [103]
Ochrona przed skutkami zimna
W warunkach zimowych nie wszystkie owady stosują identyczną strategię. U larw chrząszcza Dendroides canadensis, badanego przez Wen i współautorów, białka przeciwzamarzaniowe współdziałały z trehalozą. Autorzy wykazali także wpływ tych białek na ograniczanie krystalizacji samej trehalozy w niskiej temperaturze. Wynik pokazuje, że ochrona płynów ustrojowych nie musi wynikać z działania pojedynczego „naturalnego płynu niezamarzającego”; znaczenie mają interakcje kilku składników i ich stan fizyczny. [105]
Przeżycie zimy wymaga ponadto dopasowania fizjologii do miejsca oraz terminu. Wnioskowanie o tolerancji na podstawie jednej temperatury pomiaru pomija długość ekspozycji, wcześniejsze przygotowanie organizmu i stadium rozwoju. Warto też odróżniać unikanie tworzenia lodu od zdolności znoszenia jego kontrolowanego powstawania. Te rozwiązania mają odmienne konsekwencje, nawet jeżeli oba pozwalają zwierzętom przetrwać okres chłodu. Badanie wspomnianego chrząszcza dotyczyło organizmu unikającego zamarzania, więc nie stanowi uniwersalnego modelu wszystkich zimujących stawonogów. [105]
| Wyzwanie | Przykład mechanizmu | Organizm lub grupa | Zakres wniosku |
|---|---|---|---|
| Zmienne zasolenie | Transport jonów przez nabłonek skrzeli | Badane skorupiaki | Zakres tolerancji jest gatunkowo zróżnicowany [101] |
| Oddychanie pod wodą | Wymiana gazów przez plastron | Dorosły Aphelocheirus aestivalis | Skuteczność zależy od przepływu i zapotrzebowania [102] |
| Utrata wody na lądzie | Tworzenie skupisk | Porcellio scaber | Wynik eksperymentalny dla określonych warunków [104] |
| Wysychanie zbiornika | Odporne stadium spoczynkowe | Branchinecta lynchi | Ochrony wymaga także okresowo sucha niecka [92] |
| Wysuszenie zarodka | Synteza i transport trehalozy | Cysty Artemia franciscana | Nie opisuje tolerancji dorosłego [103] |
| Niska temperatura | Współdziałanie białek i cukru | Larwy Dendroides canadensis | Przykład strategii unikania zamarzania [105] |
Część IIIEkologia i relacje z człowiekiem
Rozdział 16Role ekologiczne w glebie i wodzie
Znaczenie stawonogów ujawnia się dopiero wtedy, gdy rozpatrujemy je jako uczestników procesów, a nie wyłącznie zbiór gatunków. Owady przenoszą pyłek między kwiatami, drobne skorupiaki zjadają plankton, a roztocze i skoczogonki uczestniczą w glebowych sieciach pokarmowych. Stawonogi są zarazem pokarmem dla innych zwierząt. Ten sam organizm może więc ograniczać liczebność jednych gatunków, umożliwiać rozwój innych i sam podlegać presji drapieżników. Rola ekologiczna nie wynika automatycznie z przynależności do rzędu czy rodziny; trzeba uwzględnić gatunek, stadium rozwoju i środowisko. [100, 106, 107]
Przykład pokazuje, dlaczego określenia „pożyteczny” i „szkodliwy” wymagają kontekstu. Owad żerujący na uprawie może powodować stratę ekonomiczną, ale równocześnie stanowić pokarm dla ptaków i miejsce rozwoju parazytoidów. Drapieżnik może zjadać zarówno organizmy uszkadzające rośliny, jak i inne drapieżniki. Ocena przyrodnicza opisuje zależności, natomiast gospodarcza odnosi je do konkretnego celu człowieka. Mieszanie tych perspektyw prowadzi do uproszczonego podziału przyrody na gatunki potrzebne i niepotrzebne. [108, 109]
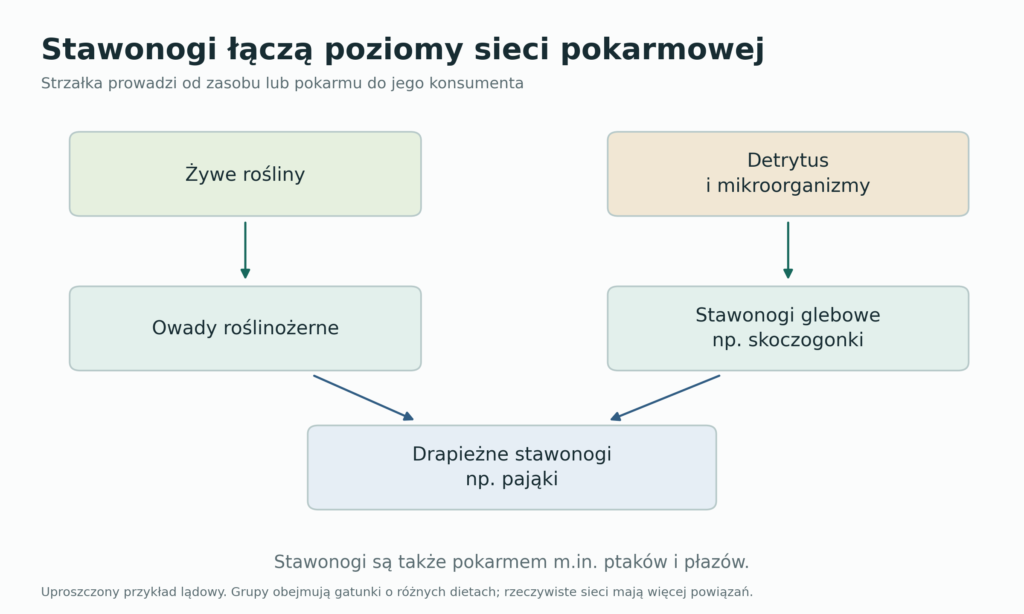
Gleba i obieg materii
Gleba nie jest biernym podłożem. Zawiera połączone przestrzenie zamieszkiwane przez mikroorganizmy oraz liczne zwierzęta. Skoczogonki i roztocze odżywiają się różnymi zasobami, w tym mikroorganizmami związanymi z rozkładającą się materią; niektóre są drapieżne. Większe stawonogi mogą rozdrabniać szczątki i zmieniać dostępność materiału dla mikroorganizmów. Nie należy jednak przypisywać wszystkim mieszkańcom ściółki jednakowej diety ani nazywać każdego z nich bezpośrednim rozkładaczem martwych liści. [107, 110]
Badanie rozkładu wymaga ostrożnej interpretacji metod. W doświadczeniach często umieszcza się materiał roślinny w woreczkach o różnej wielkości oczek. Porównanie utraty masy ma wskazywać wpływ dostępu zwierząt. Kampichler i Bruckner w analizie z 2009 r. zwracali uwagę, że zmiana oczek wpływa także na warunki samego doświadczenia. Różnicy między wariantami nie zawsze można więc przypisać wyłącznie zwierzętom. To dobry przykład problemu kontroli eksperymentalnej, a nie argument, że glebowe stawonogi są ekologicznie nieistotne. [111]
Nowsza metaanaliza Chenga i współautorów z 2023 r. dotyczyła gałązek, łodyg i korzeni, a nie ściółki liściowej. W zestawie 268 porównań dostęp stawonogów wiązał się średnio z większą utratą masy, lecz efekt różnił się zależnie od środowiska, czasu doświadczenia i użytej siatki. Autorzy wskazali też luki geograficzne danych. Wyniku pojedynczej syntezy nie powinno się zamieniać w twierdzenie, że stawonogi odpowiadają za stały procent całego rozkładu we wszystkich glebach Ziemi. [110]
Wody śródlądowe i ocean
Rozwielitki z rodzaju Daphnia są drobnymi skorupiakami planktonowymi, które pobierają zawieszone cząstki pokarmu, w tym fitoplankton. Stanowią zarazem pokarm dla ryb i bezkręgowych drapieżników. Łączą więc produkcję pierwotną z wyższymi poziomami sieci pokarmowej. Intensywne żerowanie rozwielitek może wpływać na przejrzystość wody, ale skutek zależy także od warunków zbiornika i presji drapieżników. Samo stwierdzenie obecności rozwielitek nie jest pełną oceną jakości wody. [100]
Granica między wodą i lądem nie zamyka przepływu energii. Owady, których młode stadia żyją w wodzie, po przeobrażeniu stają się dostępne dla lądowych drapieżników. Z kolei stawonogi spadające z roślinności nadrzecznej trafiają do jadłospisu ryb. Nakano i Murakami udokumentowali taką sezonową wymianę zasobów między strumieniem i przylegającym lasem. Znaczenie miało nie tylko to, ile pokarmu napływało, lecz również kiedy pojawiał się względem lokalnych niedoborów. [49]
Morskie widłonogi uczestniczą zarówno w sieciach pokarmowych, jak i w przemieszczaniu węgla. Badanie Jónasdóttir i współautorów opisało mechanizm sezonowego transportu lipidów przez Calanus finmarchicus schodzące na zimowanie w głębsze warstwy północnego Atlantyku. Oddychanie i wykorzystanie zapasów na głębokości zmieniają miejsce obiegu zawartego w nich węgla. Jest to konkretny mechanizm regionalny; nie oznacza, że pojedynczy gatunek odpowiada za całość oceanicznego magazynowania węgla. [112]
Stawonogi jako wskaźniki środowiska
Fauna bezkręgowców dennych należy do biologicznych elementów uwzględnianych przy ocenie stanu wód w europejskim systemie monitoringu. W takich ocenach znaczenie mają skład zespołu i jego odniesienie do warunków oczekiwanych w danym typie wód. Nie sprowadza się to do znalezienia jednego „gatunku czystej wody”. Ponadto bezkręgowce denne obejmują także organizmy nienależące do stawonogów, na przykład mięczaki i pierścienice. Utożsamianie całego makrozoobentosu z larwami owadów byłoby błędem. [113]
Z praktycznego punktu widzenia bioindykacja wymaga odpowiedzi na pytanie, jaki układ porównujemy. Innego zestawu organizmów oczekuje się w górskim potoku, innego w nizinnej rzece i innego na dnie jeziora. Wynik interpretuje się wraz z informacjami o siedlisku, a nie jako automatyczny ranking wszystkich wód. Obserwacja przyrodnicza może zwrócić uwagę na zmianę, natomiast formalna ocena wymaga ujednoliconego pobierania prób i odpowiedniej identyfikacji. [113]
Rozdział 17Pająki w sieciach pokarmowych: skala drapieżnictwa i biokontrola
Globalna masa pająków i ich ofiar
Nyffeler i Birkhofer oszacowali w 2017 r., że światowy zasób pająków odpowiada około 25 mln ton świeżej biomasy, a masa ofiar zabijanych przez nie w ciągu roku wynosi 400–800 mln ton świeżej masy. Obliczenia łączyły dane terenowe, powierzchnie biomów oraz dwa podejścia do szacowania drapieżnictwa. Zakres rocznej masy ofiar odzwierciedla przyjęte dane i założenia, a nie 95-procentowy przedział ufności. Obejmuje także zabite zwierzęta, których pająki nie zjadły w całości. Jest to globalna ekstrapolacja. [114]
Roczny przepływ może przewyższać stojącą biomasę wielokrotnie żerujących drapieżników. [114]
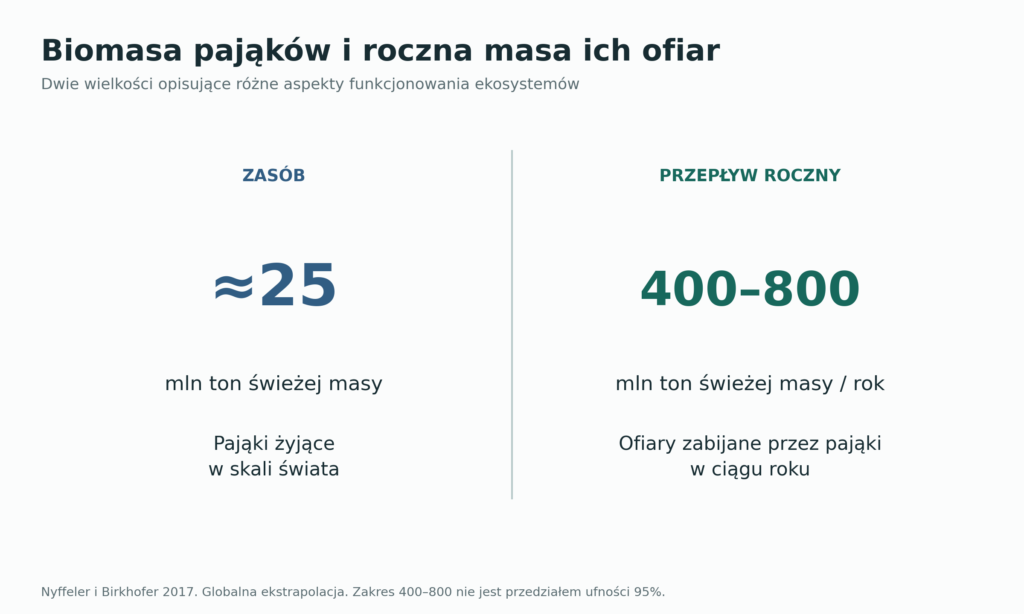
Od drapieżnictwa do ograniczania szkodników
Wpływ na rolnictwo oceniono odrębnymi metodami. Metaanaliza Michalko i współautorów objęła 58 opublikowanych badań z okresu 1970–2017. Wykazała dodatni średni efekt większego zagęszczenia pająków na ograniczanie szkodników oraz mniejszy dodatni efekt ich różnorodności taksonomicznej. Autorzy zestawili doświadczenia dotyczące różnych upraw i grup szkodników; skuteczność nie była jednakowa we wszystkich systemach. Dokładne wielkości efektów i ich przedziały podano w tabeli porównującej trzy badania. Wyniki uzasadniają uwzględnianie pająków w biologicznej ochronie upraw, lecz nie określają jednego procentu redukcji szkodników, który można przyjąć dla dowolnego pola. [115]
W tym przypadku zastosowano standaryzowaną wielkość efektu Hedgesa, oznaczoną w publikacji literą d. Miary tej rodziny odnoszą różnicę średnich do zmienności wyników i uwzględniają korektę obciążenia związanego z małą próbą. Pozwalają zestawiać doświadczenia prowadzone w różnych skalach pomiarowych. Nie są udziałem procentowym: wartość 0,89 nie oznacza ani 89% zabitych szkodników, ani 89-procentowego wzrostu plonu. Podstawy statystyczne takich estymatorów opisał Hedges. Interpretacja biologiczna nadal wymaga znajomości mierzonej odpowiedzi; sama wspólna skala nie zamienia różnych procesów w ten sam proces. [116]
Praktyczny sens tego rozróżnienia można pokazać na hipotetycznym projekcie: ocenę liczby szkodników należy oddzielić od oceny uszkodzeń roślin i od pomiaru zebranego plonu. Są to kolejne pytania o działanie układu. Wykres ograniczania szkodników odpowiada na pierwsze z nich; odpowiedzi na pozostałe wymagają dodatkowych pomiarów. Taka konstrukcja analizy pozwala ustalić, na którym etapie oczekiwana korzyść pojawia się albo zanika.
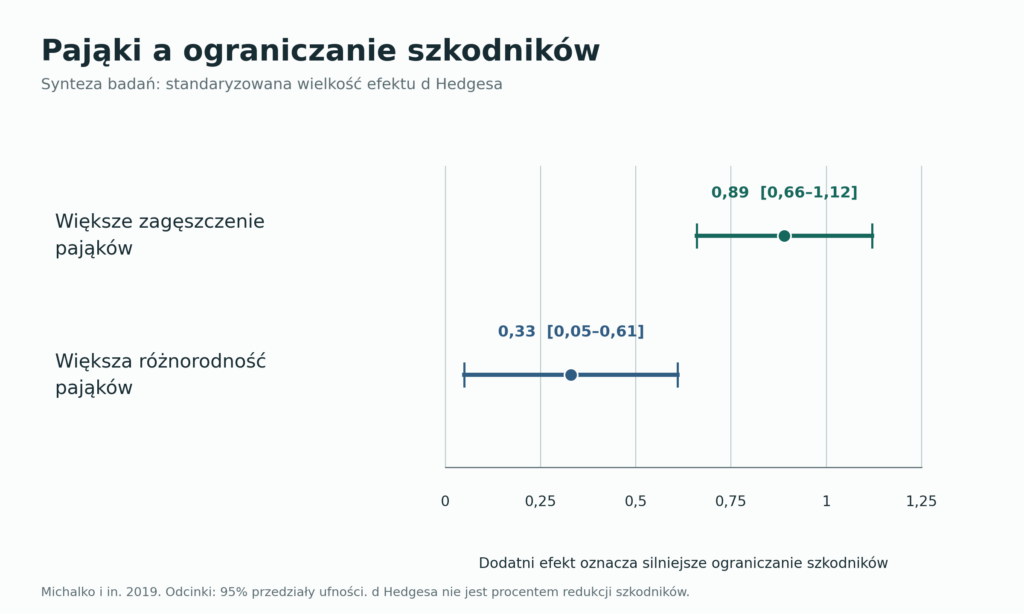
Drapieżnik zmienia także zachowanie ofiary
Ekologiczne oddziaływanie pająka nie kończy się na bezpośrednio zabitych zwierzętach. Schmitz i współautorzy zbadali układ roślin, roślinożernych prostoskrzydłych i pająków w terenowych mezokosmosach, czyli wydzielonych fragmentach środowiska doświadczalnego. Porównali pająki zdolne do polowania z osobnikami, którym unieruchomiono szczękoczułki, zachowując ich obecność jako sygnał zagrożenia. Uwzględnili również wariant bez pająków. Roślinożercy zmieniali czas przeznaczany na żerowanie w obu wariantach z drapieżnikiem. Zmniejszało się ich oddziaływanie na biomasę traw. Podobne następstwa mogły więc powstawać zarówno wskutek bezpośredniego polowania, jak i reakcji na ryzyko. [117]
Ten eksperyment pomaga rozumieć kaskadę troficzną, w której oddziaływanie przechodzi między poziomami sieci pokarmowej. Zmiana zachowania roślinożercy może przenieść wpływ drapieżnika na rośliny. Nie trzeba przy tym zakładać, że wszystkie osobniki reagują tak samo ani że sam strach zawsze poprawia ich przeżycie. W omawianym doświadczeniu wariant z ryzykiem również wiązał się ze zwiększoną śmiertelnością roślinożerców. Mechanizm należy zatem badać poprzez zachowanie, przeżywalność i odpowiedź roślin, zamiast utożsamiać go wyłącznie z liczbą udanych ataków. [117]
Rozdział 18Zachowanie oraz relacje między organizmami
Informacja przekazywana w kolonii
Zachowanie stawonogów obejmuje zarówno reakcje pojedynczego organizmu, jak i wymianę informacji między osobnikami. Dobrze poznanym przykładem jest taniec wywijany pszczoły miodnej. Ruchy robotnicy przekazują innym zbieraczkom informacje związane z kierunkiem, odległością i jakością zasobu. Jest to konkretna, mierzalna forma komunikacji przestrzennej. Nie należy jednak przenosić jej opisu na wszystkie pszczoły, z których wiele prowadzi samotny tryb życia. [54, 118]
Eksperyment Dong i współautorów pokazał, że doświadczenie społeczne wpływa na dokładność tego sygnału. Pszczoły, które przed pierwszym własnym tańcem nie mogły śledzić tańców innych robotnic, popełniały większe błędy kierunku i kodowania odległości. Niektóre niedokładności zmniejszały się z doświadczeniem, lecz błąd kodowania odległości utrzymywał się w badaniu. Wynik łączy rozwój zachowania z warunkami społecznymi: sama obecność wrodzonego programu nie wyjaśnia całej precyzji komunikacji. Nie jest to dowód na identyczną zdolność uczenia u wszystkich owadów. [118]
Współpraca metaboliczna z bakteriami
Relacje z innymi organizmami mogą dotyczyć także wnętrza ciała. U wielu mszyc bakterie Buchnera żyją w wyspecjalizowanych komórkach gospodarza i uczestniczą w zaopatrywaniu go w aminokwasy niezbędne. Ma to znaczenie przy pokarmie opartym na sokach roślinnych, których skład nie pokrywa automatycznie wszystkich potrzeb zwierzęcia. W badanych układach usunięcie symbionta silnie pogarszało wzrost i rozród mszyc. Symbioza jest więc częścią funkcjonowania organizmu, a nie przypadkowym współwystępowaniem bakterii i owada. [119]
U mszycy grochowej Acyrthosiphon pisum badania biochemiczne wykazały uzupełnianie szlaków syntezy aminokwasów przez obu partnerów. Frakcja komórek gospodarza pozbawiona bakterii zwiększała produkcję wybranych aminokwasów przez preparaty Buchnera. Obraz „bakteria wykonuje wszystko, owad tylko odbiera gotowy produkt” byłby zatem niepełny. Integracja obejmuje wymianę metabolitów i działanie enzymów gospodarza. Wynik dotyczy konkretnego układu eksperymentalnego; inne symbiozy wymagają własnego rozpoznania. [120]
Symbiont może zmieniać rozród
Wolbachia to inny przykład bakterii wewnątrzkomórkowych związanych ze stawonogami. W wielu układach są przekazywane przez jaja gospodarza i mogą zmieniać wynik rozmnażania. Opisano między innymi niezgodność cytoplazmatyczną, indukowanie partenogenezy, feminizację i zabijanie samców. Wystąpienie danego efektu zależy od kombinacji szczepu bakterii oraz gospodarza. Nie są to cztery obowiązkowe skutki obecności Wolbachia u każdego zakażonego zwierzęcia. [121]
Przykład ten porządkuje znaczenie słowa „symbioza”, używanego w literaturze również w szerokim sensie trwałego związku organizmów. Obecność mikroorganizmu nie dowodzi obustronnej korzyści. W analizie trzeba osobno pytać o skutek dla przeżycia gospodarza, jego rozrodu oraz rozprzestrzeniania się bakterii. Zależność może sprzyjać jednemu partnerowi, a obciążać drugiego; jej ocena wymaga pomiaru, a nie samej nazwy relacji. [121]
Mrówki i ich grzybowe ogrody
U mrówek hodujących grzyby współzależności tworzą układ kilku partnerów. Mrówki pielęgnują grzyba stanowiącego pokarm; uprawa bywa atakowana przez wyspecjalizowane grzyby pasożytnicze. U badanych mrówek wykazano ponadto struktury oskórka i gruczoły związane z utrzymywaniem bakterii wytwarzających substancje hamujące pasożyty ogrodu. Ochrona zasobu łączy zatem zachowanie, anatomię i aktywność drobnoustrojów. [122]
Badania ogrodów mrówek wykazały obecność grzyba Escovopsis, którego rozwój może zagrażać hodowanemu grzybowi. Ogród nie jest sterylną monokulturą, lecz środowiskiem biologicznych interakcji. Warto rozdzielać partnera pokarmowego, jego antagonistę i mikroorganizmy uczestniczące w ochronie. Taki model pomaga zrozumieć, dlaczego opis diety samej mrówki nie wyczerpuje opisu jej ekologii. [123]
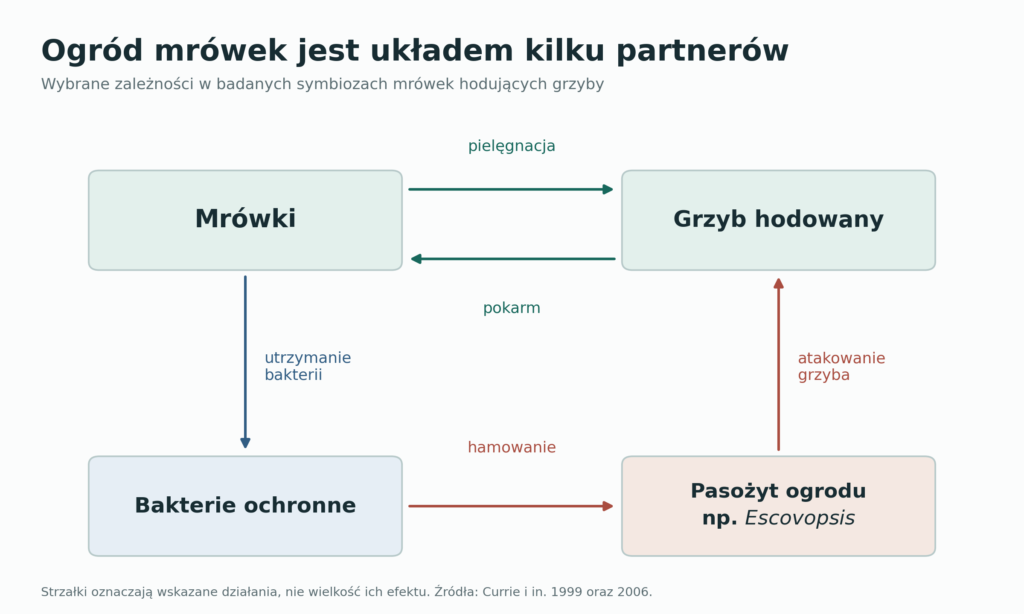
Rozdział 19Zapylanie i rolnictwo
Zapylanie oraz właściwe odczytywanie statystyk
Zapylanie oznacza przeniesienie pyłku w miejsce, w którym może rozpocząć się proces prowadzący do zapłodnienia. W przypadku roślin okrytonasiennych jest to znamię słupka. Odwiedzenie kwiatu przez owada nie przesądza jeszcze o skuteczności zapylenia: znaczenie mają kontakt z odpowiednimi częściami kwiatu, ilość przeniesionego zgodnego pyłku i późniejsze zawiązywanie nasion lub owoców. Dlatego liczba wizyt, skuteczność pojedynczej wizyty i uzyskany plon są odrębnymi miarami. [106]
Ollerton, Winfree i Tarrant oszacowali w 2011 r., że zwierzęta zapylają około 87,5% gatunków roślin okrytonasiennych. Wynik uzyskano na podstawie danych o zbiorowiskach roślinnych i korekty uwzględniającej różnice różnorodności między szerokościami geograficznymi. Był to szacunek globalny, a nie bezpośrednia obserwacja każdego gatunku. Nie oznacza też, że każdy osobnik każdej z tych roślin jest całkowicie niezdolny do wydania nasion bez udziału zwierząt. [124]
W 2023 r. Tong i współautorzy, stosując inne podejście obliczeniowe, uzyskali około 90%. Wychodzili między innymi od rozpoznania linii roślin zapylanych przez wiatr lub wodę. Różnica między 87,5% a 90% pokazuje zależność wyniku od danych i metody. Nie dokumentuje wzrostu udziału zapylania przez zwierzęta między 2011 a 2023 r. Bezpiecznym uogólnieniem jest stwierdzenie, że dotyczy ono zdecydowanej większości gatunków okrytonasiennych. Zapylaczami bywają również ptaki i ssaki, więc odsetka tego nie należy przypisywać wyłącznie owadom. [125]
Poniższa tabela porządkuje często mylone wskaźniki z oceny IPBES opublikowanej w 2016 r. Każdy odpowiada na inne pytanie.
| Wskaźnik IPBES | Wartość | Co jest liczone |
|---|---|---|
| Główne typy upraw korzystające w pewnym stopniu z zapylania przez zwierzęta | ponad 75% | Typy upraw; korzyść może dotyczyć wielkości lub jakości plonu |
| Udział upraw częściowo zależnych od zapylaczy w globalnym wolumenie produkcji roślinnej | 35% | Cała produkcja tych upraw, również część niezależna od zapylania |
| Produkcja bezpośrednio przypisywana zapylaniu przez zwierzęta | 5–8% | Szacowany udział w globalnym wolumenie produkcji roślinnej |
| Roczna wartość produkcji bezpośrednio przypisywanej zapylaniu | 235–577 mld USD | Wycena w dolarach amerykańskich z 2015 r. |
Źródło tabeli: IPBES 2016, kluczowe wnioski 2–3 oraz rozwinięcie dotyczące wartości zapylania. Są to wyniki oceny opublikowanej w 2016 r., a nie aktualizacja cen do 2026 r. Z liczby 35% nie wynika, że utrata zapylaczy zlikwidowałaby dokładnie 35% całej produkcji. [3]
Pszczoła miodna jest jednym z zapylaczy. W syntezie Rader i współautorów, obejmującej 39 badań terenowych, owady spoza grupy pszczół odpowiadały za 39% wizyt na kwiatach badanych upraw. Zbiorowość ta obejmowała między innymi muchówki, chrząszcze, motyle i osy. Wartość opisuje zestaw badań, a nie uniwersalny udział w każdym sadzie czy na każdym kontynencie. Pokazuje natomiast, że ochrona zapylania wymaga uwzględnienia większej różnorodności niż jeden hodowany gatunek. [106]
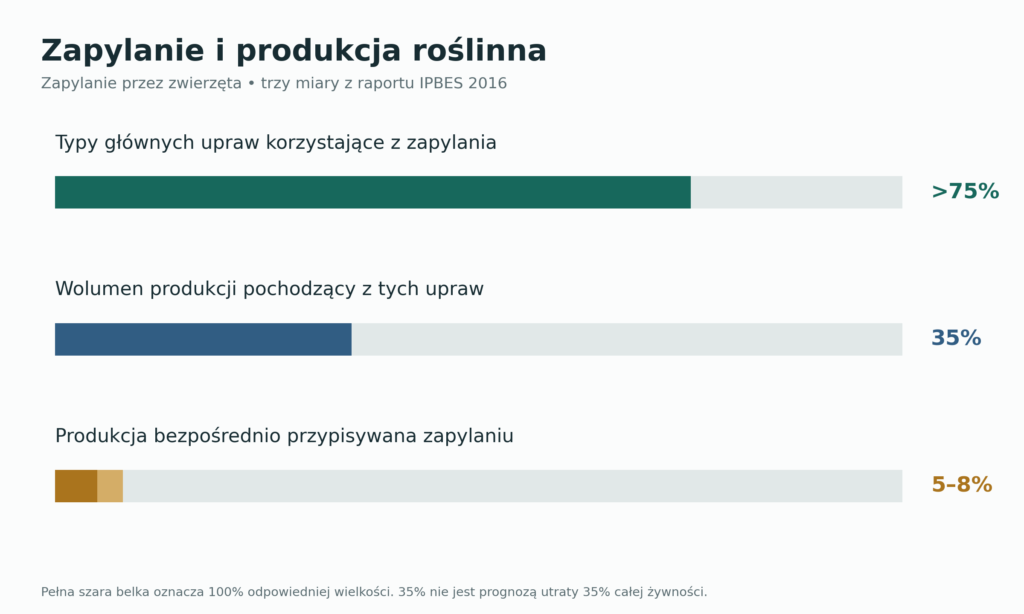
Drapieżnictwo i biologiczne ograniczanie szkodników
Stawonogi roślinożerne korzystają z tkanek, soków lub nasion roślin. Część może stać się szkodnikami upraw, zwłaszcza gdy w odpowiednim momencie osiąga dużą liczebność. Zjadają je między innymi drapieżne chrząszcze, pająki i larwy niektórych muchówek. Inną strategię stosują parazytoidy: ich stadia młodociane rozwijają się na żywicielu albo w jego ciele i ostatecznie powodują jego śmierć. Jest to istotna różnica względem pasożytnictwa, w którego definicji śmierć żywiciela nie jest koniecznym zakończeniem rozwoju pasożyta. [109]
Synteza Dainese i współautorów z 2019 r. obejmowała 89 badań z 1475 stanowisk. Bogactwo gatunkowe zapylaczy oraz naturalnych wrogów szkodników wspierało odpowiednie usługi ekosystemowe także po uwzględnieniu liczebności i dominacji poszczególnych gatunków. Wynik podkreśla, że sama obecność dużej liczby osobników jednego gatunku nie opisuje całego potencjału funkcjonalnego zespołu. Różne organizmy mogą działać w odmiennych miejscach, terminach i warunkach. Nie daje to jednak podstaw do obiecywania jednakowego wzrostu plonu po każdej zmianie siedliska. [4]
Granice takiej prognozy ujawnia analiza Karpa i współautorów z 2018 r., oparta na 132 badaniach z 6759 stanowisk. Udział siedlisk poza uprawami w otoczeniu pól nie miał jednego, powtarzalnego związku z liczebnością szkodników, ich wrogów i rozmiarem strat we wszystkich analizowanych systemach. Kontekst uprawy i lokalne zarządzanie miały znaczenie. Z tego powodu profesjonalna ochrona roślin opiera decyzje na rozpoznaniu organizmów i monitorowaniu sytuacji, a nie na samym założeniu, że każdy pas zieleni automatycznie rozwiąże problem. [108]
W praktyce należy rozdzielić trzy obserwacje: obecność naturalnego wroga, jego aktywność wobec szkodnika oraz faktyczne ograniczenie szkód. Są powiązane, ale nie równoważne. Zdjęcie biedronki na liściu potwierdza obecność chrząszcza; nie mierzy jeszcze liczby zjedzonych mszyc ani ocalonego plonu. Takie rozróżnienie pomaga oceniać zarówno sukcesy ochrony biologicznej, jak i jej ograniczenia. [4, 108]
Rozdział 20Migracje owadów oraz współdziałanie zapylaczy
Biliony migrantów nad jednym regionem
Hu i współautorzy oszacowali średnio 3,37 biliona owadów przemieszczających się rocznie nad około 70 tys. km² południowej Wielkiej Brytanii, w warstwie powietrza 150–1200 m nad ziemią. Analiza dotyczyła lat 2000–2009 i łączyła radarowe obserwacje większych owadów z informacjami z odłowów małych owadów w powietrzu. Roczne oszacowania mieściły się między 1,92 a 5,01 biliona. To rozstęp między latami, nie przedział ufności średniej. Dane opisują migracyjny przepływ nad regionem, nie liczbę owadów jednocześnie żyjących na jego powierzchni. Bilion oznacza tutaj 10¹²; angielskie trillion nie odpowiada polskiemu trylionowi. [126]
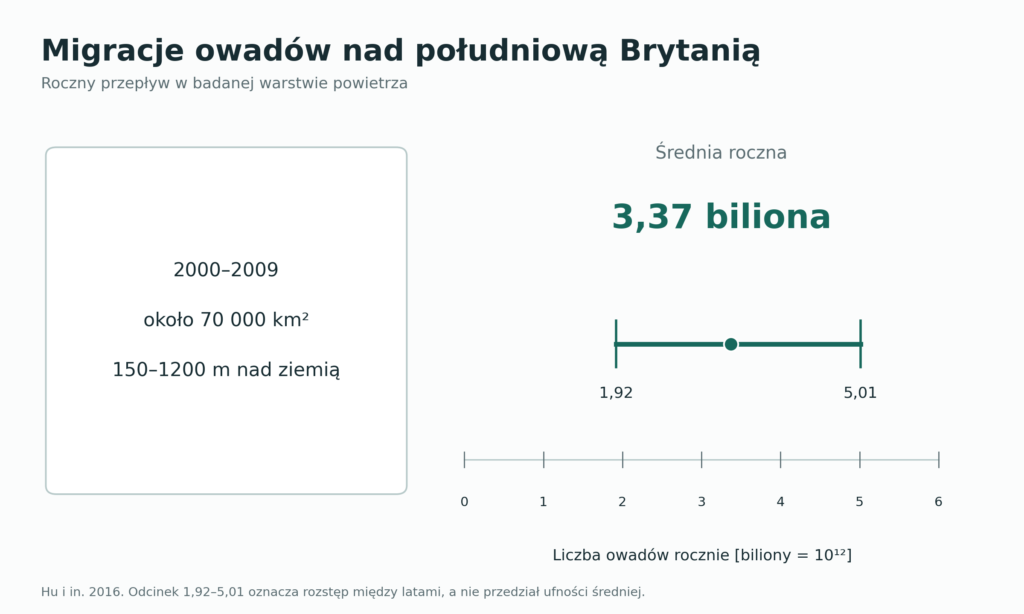
Wiatr i aktywne sterowanie lotem
Przemieszczanie na dużej wysokości nie musi oznaczać biernego unoszenia. Chapman i współautorzy wykazali za pomocą radaru entomologicznego, że duże owady migrujące zarówno w dzień, jak i nocą wykorzystują wiatry korzystne dla sezonowego kierunku wędrówki. Przyjmują również kierunki aktywnego lotu częściowo ograniczające znoszenie przez wiatr boczny. Jest to zachowanie pozwalające lepiej wykorzystywać przemieszczającą się masę powietrza. Kierunek, w którym owad jest zwrócony, i kierunek jego ruchu względem ziemi nie muszą być identyczne. [127]
Rozróżnienie tych dwóch kierunków jest ważne przy czytaniu map migracji. Tor nad powierzchnią wynika z połączenia ruchu owada względem powietrza z ruchem samego powietrza. Oceniając mechanizm, trzeba zatem zestawić pomiar lotu z informacją meteorologiczną. Badanie orientacji pozwala wyjaśnić, dlaczego określone warunki sprzyjają sezonowemu przemieszczaniu. Sama duża liczba rejestrowanych owadów opisuje natomiast intensywność przepływu. Są to uzupełniające się pytania badawcze. [127]
Ten sam owad pełni różne funkcje w kolejnych stadiach
Migracje bzygowatych łączą problem przemieszczania z zapylaniem i ograniczaniem szkodników. Wotton i współautorzy badali sezonowe przeloty migrujących bzygów nad południową Wielką Brytanią. Dorosłe owady odwiedzają kwiaty, natomiast larwy rozpatrywanych gatunków polują na mszyce. Autorzy zestawili przemieszczanie migrantów z transportem pyłku i składników odżywczych oraz funkcjami wykonywanymi przez miejscowe potomstwo. Biologiczne znaczenie przelotu może więc ujawniać się zarówno podczas aktywności dorosłych, jak i po ich rozrodzie. Nie należy rozszerzać mszycożerności tych gatunków na wszystkie bzygowate. [128]
Z takiego cyklu wynika praktyczne pytanie o ciągłość warunków życia: czy miejsce zapewnia zasoby dla dorosłych i odpowiednie warunki dla larw? Sama fotografia owada na kwiecie dokumentuje tylko jedną z jego aktywności. W badaniu funkcji ekologicznych potrzebne jest powiązanie stadium, miejsca i czasu obserwacji. Przypadek bzygów pokazuje, dlaczego określenia „zapylacz” i „drapieżnik” mogą opisywać różne stadia tego samego gatunku. [128]
Dzikie owady i pszczoła miodna
Garibaldi i współautorzy analizowali zależności między odwiedzinami kwiatów a zawiązywaniem owoców w badaniu obejmującym 41 systemów upraw na świecie. Większa aktywność dzikich owadów wiązała się z lepszym zawiązywaniem owoców także przy uwzględnieniu odwiedzin pszczół miodnych. Wnioskiem była uzupełniająca rola tych grup. Obecność zarządzanych rodzin pszczoły miodnej nie wyczerpywała korzyści związanych z dzikimi owadami. Pytanie o zapylanie upraw wymaga więc rozpoznania całego zespołu odwiedzającego kwiaty, a nie tylko liczby ustawionych uli. [129]
Warto zachować znaczenie mierzonej odpowiedzi: zawiązywanie owoców dotyczy tego, jaka część kwiatów rozpoczyna tworzenie owoców. Nie jest automatycznie masą finalnego zbioru. Połączenie obserwacji odwiedzin z wynikiem rozmnażania roślin pozwala badać funkcję zapylaczy, ale przejście do gospodarczej oceny plonu wymaga dodatkowego pomiaru. Nie wystarczy również policzyć wszystkich przylotów łącznie, jeśli pytanie dotyczy wkładu poszczególnych grup. [129]
Interakcje między gatunkami mogą zmieniać skuteczność zapylania
Badanie Brittain i współautorów w kalifornijskich sadach migdałowych wskazuje konkretny mechanizm współdziałania. W sadach, gdzie występowały także pszczoły spoza rodzaju Apis, pszczoły miodne wykonywały większy udział przelotów pomiędzy rzędami różnych odmian. Pojedyncze odwiedziny częściej prowadziły do wzrostu łagiewki pyłkowej do podstawy szyjki słupka, a udział zawiązanych owoców był większy. Rozmieszczenie odmian ma tu znaczenie, ponieważ skuteczny przepływ zgodnego pyłku wymaga jego przenoszenia między odpowiednimi roślinami. [130]
Znaczenie różnorodności obejmuje zatem również zmianę zachowania dominującego zapylacza. Dodatkowy gatunek nie musi tylko dostarczać własnych odwiedzin: może wpływać na to, jak poruszają się inne owady. Jest to przykład możliwej synergii, czyli wspólnego działania, którego nie opisuje proste dodawanie odrębnych wkładów. Autorzy badali określoną uprawę i układ sadów; mechanizm stanowi sprawdzalną hipotezę dla kolejnych systemów, a nie gotowy współczynnik przyrostu plonu wszystkich roślin. [130]
Jak połączyć różnorodność z pomiarem produkcji
W późniejszym badaniu Garibaldiego i współautorów zastosowano wspólny protokół obserwacji owadów odwiedzających kwiaty oraz pomiarów plonu. Projekt obejmował 344 pola i 33 systemy upraw, badane w latach 2010–2014, przede wszystkim w Afryce, Azji i Ameryce Łacińskiej. System oznaczał określoną uprawę, region i rok przy porównywalnym zarządzaniu. Dzięki tej konstrukcji można było osobno rozpatrywać zagęszczenie owadów odwiedzających kwiaty, ich bogactwo gatunkowe i wielkość pola. Na większych polach korzyści związane ze zwiększonym zagęszczeniem były zależne od wysokiego bogactwa zapylaczy. [131]
Autorzy definiowali lukę plonowania jako różnicę między polami o wysokim i niskim plonie w obrębie danego systemu. Taki punkt odniesienia dotyczy rzeczywistych gospodarstw. Nie jest teoretycznym maksimum fotosyntezy ani obietnicą identycznego wyniku po jednym zabiegu. Dla porównań ważna jest również jednostka: odwiedziny kwiatów, zawiązywanie owoców i masa zbioru z hektara mierzą kolejne etapy procesu, dlatego powinny zachować odrębne nazwy. [131]
Trzy badania, różne miary procesu
| Badanie i miara | Wynik | Zakres odniesienia | Znaczenie zakresu |
|---|---|---|---|
| Nyffeler i Birkhofer: biomasa pająków [114] | Około 25 mln t świeżej masy | Globalny zasób | Oszacowanie punktowe |
| Nyffeler i Birkhofer: zabite ofiary [114] | 400–800 mln t świeżej masy/rok | Globalny przepływ roczny | Zakres oszacowań, nie 95% CI |
| Michalko i in.: większe zagęszczenie pająków [115] | d = 0,89; 95% CI: 0,66–1,12 | Ograniczanie szkodników | Przedział ufności wielkości efektu |
| Michalko i in.: większa różnorodność pająków [115] | d = 0,33; 95% CI: 0,05–0,61 | Ograniczanie szkodników | Przedział ufności wielkości efektu |
| Hu i in.: roczna liczba migrantów [126] | Średnio 3,37 biliona; 1,92–5,01 biliona | Południowa Wielka Brytania, 2000–2009 | Minimum–maksimum między latami |
Rozdział 21Znaczenie dla nauki oraz gospodarki i zdrowia
Gospodarka i nauka
Skorupiaki są także bezpośrednim źródłem żywności. Według raportu FAO The State of World Fisheries and Aquaculture 2024 światowa akwakultura wyprodukowała w 2022 r. 12 751 410 ton skorupiaków, czyli około 12,75 mln ton masy żywej. Stanowiło to 13,5% akwakulturowej produkcji zwierząt wodnych. Mianownik wyklucza glony; licznik nie obejmuje skorupiaków poławianych ze środowiska naturalnego. Liczba opisuje produkcję, a nie stan dzikich populacji i nie udział skorupiaków w całej przyrodzie. [5]
Te rozróżnienia są szczególnie ważne przy porównywaniu danych gospodarczych z ekologicznymi. Masa żywa hodowanych zwierząt, masa ich części jadalnych i biomasa wyrażona w masie węgla stanowią różne miary. Nie można ich bezpośrednio sumować ani zestawiać na jednej osi bez przeliczeń. Podobnie wartość produkcji na pierwszym etapie sprzedaży nie jest równoznaczna z wartością detaliczną produktów. Każda tabela powinna zachowywać definicję używaną przez źródło. [5]
Stawonogi są ważnymi organizmami modelowymi. Badania na Drosophila pozwoliły poznawać mechanizmy zegara biologicznego; prace Halla, Rosbasha i Younga nagrodzono Noblem w dziedzinie fizjologii lub medycyny w 2017 r. Model umożliwia prowadzenie doświadczeń, które pomagają wyjaśniać działanie mechanizmów wspólnych dla wielu zwierząt. Zbieżność mechanizmu nie oznacza jednak, że wszystkie wyniki eksperymentów na muszkach można bezpośrednio przenieść na człowieka. [132]
Rozwielitki mają odmienny zestaw zalet badawczych. Ich cykliczna partenogeneza pozwala w odpowiednich warunkach porównywać osobniki o bardzo podobnym tle genetycznym, a jednocześnie śledzić wpływ środowiska. Są wykorzystywane między innymi w badaniach ekotoksykologicznych, plastyczności fenotypowej oraz relacji gospodarz–pasożyt. Użycie rozwielitki jako modelu nie czyni jej „prostą wersją” każdego skorupiaka. Przydatność modelu zawsze zależy od pytania badawczego. [133]
Zdrowie publiczne
Niektóre stawonogi przenoszą patogeny. Trzeba rozdzielić wektor, patogen i chorobę: komar jest wektorem, wirus albo pasożyt jest czynnikiem zakaźnym, a choroba to skutek zakażenia w organizmie gospodarza. Samo występowanie potencjalnego wektora nie dowodzi lokalnej transmisji. Potrzebne są informacje o obecności odpowiedniego patogenu oraz warunkach umożliwiających jego przekazanie. [134]
WHO w zestawieniu z 26 września 2024 r. podawała, że choroby wektorowe odpowiadają za ponad 17% chorób zakaźnych i powodują ponad 700 tys. zgonów rocznie. Nie jest to jednak liczba odnosząca się wyłącznie do stawonogów: w szerokiej kategorii używanej przez WHO ujęto również schistosomatozę z udziałem ślimaków wodnych. Dlatego nie wolno podpisywać tego wskaźnika „zgony powodowane przez stawonogi”. Jest to ponadto informacja z datowanego zestawienia, a nie pełna tabela wyników epidemiologicznych za rok 2026. [134]
Kleszcz pospolity Ixodes ricinus jest europejskim przykładem pajęczaka o znaczeniu medycznym i weterynaryjnym. Według ECDC może przenosić między innymi krętki z kompleksu Borrelia burgdorferi sensu lato i wirusa kleszczowego zapalenia mózgu. Jego stadia mają różną liczbę nóg: larwa trzy pary, nimfa i osobnik dorosły cztery pary. To ważny wyjątek od uproszczonej reguły rozpoznawania pajęczaków wyłącznie po ośmiu nogach. [79]
W opisie ryzyka należy unikać dwóch skrajności: traktowania wszystkich spotykanych stawonogów jako zagrożenia oraz bagatelizowania gatunków rzeczywiście uczestniczących w transmisji. Rzetelny materiał edukacyjny identyfikuje określony gatunek lub grupę wektorów, konkretny patogen i właściwy obszar. Dane o innym regionie albo o innym gatunku nie zastępują lokalnego nadzoru epidemiologicznego.
Rozdział 22Przykłady z polskich krajobrazów
Polskie ogrody, pola, lasy i wody pozwalają obserwować odmienne role stawonogów bez potrzeby odwoływania się do egzotycznych rekordów. Poniższa tabela zestawia przykłady, a nie zamkniętą listę krajowej fauny. Nazwa rodzaju lub rodziny jest celowa tam, gdzie cechy biologiczne różnią się między gatunkami i oznaczenie do gatunku wymaga specjalisty.
| Przykład | Rola lub cecha istotna ekologicznie | Ważne doprecyzowanie |
|---|---|---|
| Murarka ogrodowa Osmia bicornis | Samotnicza pszczoła wykorzystywana w zapylaniu sadów; gniazduje w istniejących otworach | Nie tworzy rodziny o organizacji odpowiadającej rodzinie pszczoły miodnej [135] |
| Biedronki | Larwy i dorosłe wielu gatunków zjadają mszyce oraz inne drobne bezkręgowce | Nie wszystkie gatunki mają jednakową dietę [56] |
| Biegaczowate | Wiele gatunków prowadzi drapieżny tryb życia, część zimuje w glebie i ściółce | Określenie rodziny nie upoważnia do przypisania tej samej diety każdemu gatunkowi [56] |
| Rozwielitki Daphnia | Konsumenci zawiesiny planktonowej i pokarm dla drapieżników wodnych | Ocena funkcji zależy od gatunku, sezonu i struktury sieci pokarmowej [100] |
| Kleszcz pospolity Ixodes ricinus | Krwiopijny pajęczak korzystający z różnych gospodarzy w cyklu życiowym | Potencjalny wektor nie oznacza osobnika zakażonego każdym wymienianym patogenem [79] |
| Rak pręgowaty Faxonius limosus | Północnoamerykański skorupiak obcy w Polsce | W starszych i części urzędowych materiałów figuruje jako Orconectes limosus [136, 137] |
Instytut Ogrodnictwa opisuje u murarki ogrodowej transport pyłku na szczoteczce po brzusznej stronie odwłoka oraz budowę komórek gniazdowych oddzielanych przegrodami. Gatunek dobrze pokazuje, jak budowa ciała i zachowanie wpływają na relacje z roślinami. Pozwala też oddzielić dwie rzeczy: wykorzystanie wybranego gatunku w sadzie oraz ochronę całej różnorodności dzikich zapylaczy. Osiągnięcie pierwszego celu nie gwarantuje automatycznie osiągnięcia drugiego. [135]
Rak pręgowaty obrazuje inne powiązanie biologii z działalnością człowieka. GDOŚ opisuje jego północnoamerykańskie pochodzenie, celowe wprowadzenie do Europy oraz zagrożenie dla raka szlachetnego wynikające między innymi z konkurencji i przenoszenia dżumy raczej. Przykład nie upoważnia do twierdzenia, że każdy gatunek obcy wywiera identyczny wpływ. Wymaga natomiast zachowania rozróżnienia między obcym pochodzeniem, zdolnością do rozprzestrzeniania i udokumentowaną szkodą. [136]
Rozdział 23Pełny cykl życia jako podstawa ochrony polskich siedlisk
Miejsce spotkania dorosłego stawonoga nie musi zapewniać warunków potrzebnych jego potomstwu. W ocenie siedliska trzeba połączyć zasoby pokarmowe, miejsca rozwoju, schronienia oraz ich rozmieszczenie. Takie podejście sprawdzili Turlure i współautorzy w badaniach motyli w belgijskich Ardenach: informacje o zasobach właściwych poszczególnym gatunkom i ich przestrzennym układzie wyjaśniały badane cechy populacji lepiej niż sam typ roślinności. Przeniesienie tej zasady do polskich krajobrazów oznacza zmianę pytania. Zamiast poprzestawać na stwierdzeniu, że owad występuje „na łące” lub „w lesie”, należy ustalić, które elementy tego środowiska umożliwiają mu przejście kolejnych stadiów. Poniższe przykłady pokazują cztery odmienne zależności; nie stanowią jednego programu ochronnego dla wszystkich gatunków. [138]
Modraszek telejus: łąka łączy roślinę i kolonię mrówek
U modraszka telejusa Phengaris teleius kolejne etapy rozwoju wymagają zasadniczo odmiennych gospodarzy. Młode gąsienice korzystają z kwiatostanów krwiściągu lekarskiego Sanguisorba officinalis. Dalszy rozwój wymaga przyjęcia gąsienicy przez odpowiednie mrówki z rodzaju Myrmica. W ich gnieździe żywi się ona potomstwem gospodarzy i później przepoczwarcza. Zależność ta jest pasożytnictwem społecznym, a nie obustronnie korzystną współpracą. Samo posadzenie rośliny żywicielskiej nie odtwarza zatem kompletnego siedliska. Potrzebne jest również sąsiedztwo kolonii gospodarzy. [139]
Nie należy przypisywać telejusowi jednego, niezmiennego gatunku mrówki gospodarza. Witek i współautorzy wykazali w badanej metapopulacji w południowej Polsce przeżywanie larw w koloniach czterech gatunków: Myrmica scabrinodis, M. rubra, M. ruginodis i M. rugulosa. Ich znaczenie różniło się między stanowiskami. Wynik ten koryguje uproszczony schemat „jeden motyl — jedna mrówka”, ale nie dowodzi, że każda kolonia dowolnej wścieklicy jest odpowiednia. Odtwarzanie siedliska wymaga rozpoznania lokalnych zależności. Obecność mrówek na powierzchni łąki jest przydatną informacją, lecz bez oznaczenia i oceny ich roli nie potwierdza dostępności gospodarzy larwalnych. [140]
Polska metodyka GIOŚ uwzględnia zarówno roślinę żywicielską, jak i dostępność mrówek oraz przekształcenia roślinności. Ma to biologiczne uzasadnienie: wzrost pokrycia przez wysokie byliny i krzewy zmienia warunki przy powierzchni gleby, czyli środowisko kolonii gospodarzy. Również pozornie korzystne zachowanie krwiściągu nie wystarcza, jeżeli pozostałe składniki układu zanikają. Z kolei koszenie w czasie, gdy jaja i młode gąsienice znajdują się w kwiatostanach, usuwa ich miejsce rozwoju. Plan gospodarowania powinien więc uwzględniać rzeczywistą lokalną fenologię, stan roślinności i stosunki wodne. Podawanie jednej daty koszenia dla wszystkich polskich stanowisk zacierałoby różnice, które są istotne dla skuteczności ochrony. [141]
Potrzebę rozdzielnego oceniania tych składników pokazuje trzyletni eksperyment na czterech węgierskich łąkach. Kőrösi i współautorzy porównali różne terminy i częstości koszenia oraz pozostawienie powierzchni bez zabiegów. Reakcje dorosłych motyli, krwiściągu, mrówek i nawłoci nie były jednakowe: wariant korzystny dla jednego elementu nie musiał najlepiej ograniczać innego. W tamtych warunkach pojedyncze koszenie jesienne sprzyjało motylom i roślinie żywicielskiej, natomiast dwa koszenia skuteczniej ograniczały nawłoć. To wynik określonego eksperymentu, nie gotowa recepta dla dowolnej polskiej łąki. Jego praktyczne znaczenie polega na potrzebie równoczesnego śledzenia kilku elementów układu i sprawdzania skutków zabiegów po ich wykonaniu. [142]
Znaczenie ma też otoczenie płatu. Badania Popovicia i Nowickiego w Serbii powiązały koszenie ze zwiększoną skłonnością telejusów do opuszczania płatów, lecz zarazem z krótszymi przemieszczeniami między nimi. Większa ruchliwość nie oznaczała więc automatycznie lepszego połączenia populacji. Autorzy interpretowali część przemieszczeń jako reakcję na utratę zasobów. Dla oceny polskich stanowisk jest to uzasadnienie, aby obok powierzchni łąki rozpatrywać dostępność sąsiednich płatów i pozostawionych fragmentów siedliska. [139]
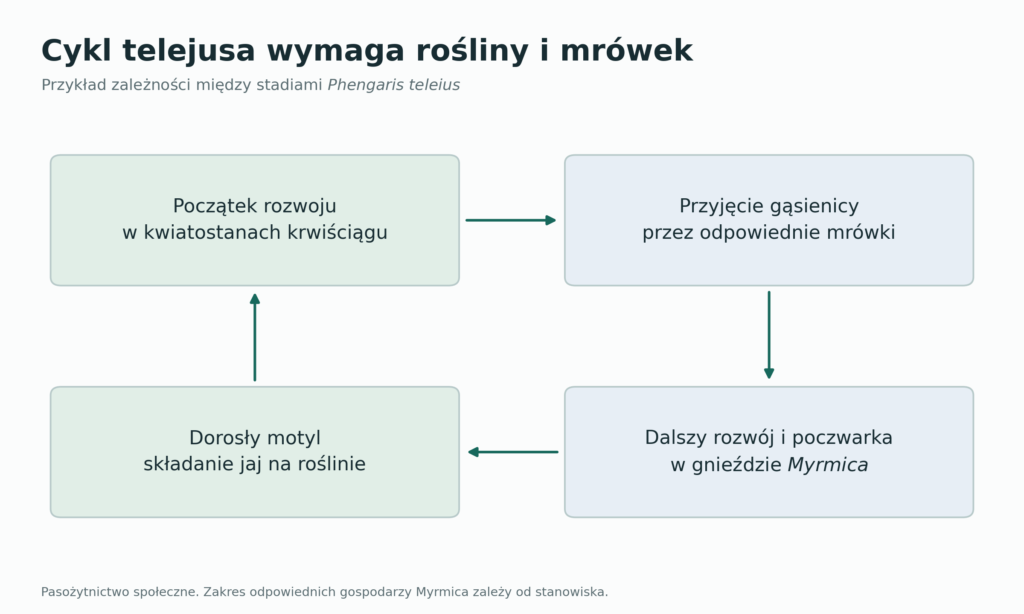
Jelonek rogacz: znaczenie tego, co pozostaje przy ziemi
U jelonka rogacza Lucanus cervus najbardziej widoczne samce reprezentują tylko część cyklu życia. Larwy rozwijają się w rozkładającym się drewnie przy powierzchni gruntu lub pod nią, między innymi w obrębie pniaków i korzeni. Z tego powodu samo zachowanie koron drzew albo pozostawienie cienkich gałęzi nie opisuje dostępności całej bazy rozwojowej. W dokumentacji siedliska znaczenie mają rodzaj i rozmiary pozostałości drzewnych, stopień rozkładu oraz położenie względem gleby. Duży odpowiedni substrat może służyć kolejnym osobnikom przez dłuższy czas. Jego usunięcie przerywa ciągłość zasobu, którego nie odtwarza natychmiast posadzenie młodego drzewa. [143]
Kuźmiński i współautorzy przeanalizowali dane z obszarów zarządzanych przez Lasy Państwowe, zebrane pierwotnie w latach 2006–2007 i weryfikowane terenowo do 2018 r. Potwierdzili 176 stanowisk w 47 nadleśnictwach. Zdecydowana większość powiązań z drzewami dotyczyła dębów. Liczby te opisują zakres i wynik konkretnego badania, a nie aktualny spis wszystkich stanowisk w Polsce. Autorzy korzystali z obserwacji dorosłych, szczątków i śladów; nie prowadzili wykopywania larw przy pniach. Dlatego związku stwierdzenia chrząszcza z określonym drzewem nie należy każdorazowo utożsamiać z bezpośrednim potwierdzeniem żerowania larw w jego korzeniach. Ta różnica ma znaczenie przy interpretacji nawet obszernej inwentaryzacji. [144]
Badanie Tiniego i współautorów we włoskim lesie pokazało, jak można rozdzielić miejsce odwiedzane przez samicę od miejsca rzeczywiście wykorzystywanego do rozwoju. Naukowcy zestawili śledzenie przemieszczania się samic z późniejszym stwierdzaniem dorosłych wychodzących z wytypowanych fragmentów substratu. Potwierdzone miejsca różniły się postacią martwego drewna i jego właściwościami. Była to niewielka, wstępna próba, więc nie ustalała uniwersalnych wartości granicznych średnicy pnia czy zwarcia koron. Pokazuje jednak, dlaczego pojedynczy parametr, taki jak ilość drewna na hektarze, nie zastępuje informacji o jakości i rzeczywistym wykorzystaniu poszczególnych obiektów. Nie wynika z niej także, że należy rozkopywać pniaki w celu uzyskania pewniejszej obserwacji. [145]
Porównanie europejskich populacji przeprowadzone przez Harvey i współautorów ujawniło zróżnicowanie powiązań siedliskowych oraz czasu trwania rozwoju larwalnego. Nie ma zatem podstaw, aby każdemu jelonkowi przypisywać identyczną liczbę lat spędzanych w drewnie. Przy planowaniu ochrony istotniejsza jest ciągłość odpowiednich miejsc rozwoju niż uproszczony kalendarz jednego pokolenia. Obejmuje ona istniejące substraty oraz drzewa, które w przyszłości dostarczą kolejnych. Dla krajobrazu z rozproszonymi starymi drzewami oznacza to potrzebę patrzenia poza pojedynczy okazały dąb: utrata sąsiednich zasobów może ograniczyć możliwości utrzymania populacji, mimo że najbardziej widoczne drzewo nadal pozostaje na miejscu. [146]
Nadobnica alpejska: atrakcyjne drewno może nie zapewniać rozwoju
Nadobnica alpejska Rosalia alpina pokazuje, że dla owada znaczenie mają jednocześnie materiał i warunki jego ekspozycji. Jest związana między innymi z martwymi lub zamierającymi, nasłonecznionymi bukami. Badania porównujące metody monitorowania wykazały, że liczba obserwowanych dorosłych przy poszczególnych pniach zależała od objętości drewna, nasłonecznienia i stopnia rozkładu. Drzewa nie były więc jednakowymi jednostkami obserwacyjnymi. Ochrony takich mikrosiedlisk nie można sprowadzić do prostego zliczenia pni ani utożsamić każdej sterty drewna z równoważnym miejscem rozwoju. Również intensywne skupienie dorosłych może odzwierciedlać atrakcyjność konkretnego obiektu, a nie dużą produktywność otaczającego lasu. [147]
Adamski i współautorzy zbadali w Bieszczadach mechanizm związany ze składowaniem drewna bukowego. Stosy przyciągały nadobnice, podczas gdy okres przechowywania drewna był znacznie krótszy od czasu potrzebnego do zakończenia rozwoju larwalnego. Wywóz i przetworzenie zasiedlonego materiału mogą zatem zniszczyć potomstwo. Autorzy uznali takie stosy za funkcjonujące pułapki ekologiczne: miejsce dostarcza sygnałów skłaniających do wyboru siedliska, ale jego późniejszy los uniemożliwia osiągnięcie oczekiwanego wyniku rozrodu. Jednocześnie zaznaczyli, że skala oddziaływania tego mechanizmu na parametry demograficzne populacji nie została oszacowana. Udokumentowane przyciąganie do stosów nie jest więc podstawą do podania wymyślonego procentu ginących larw czy całej populacji. [148]
Kolejna praca tego zespołu analizowała rozmieszczenie składów w polskiej części Bieszczadów i potencjalny przestrzenny zasięg ich oddziaływania. Obserwacje z lat 2014–2016 połączono z wariantami odległości opartymi na danych o możliwościach przemieszczania się gatunku. Wynik zależał od przyjętego promienia, dlatego wyznaczone powierzchnie były modelami potencjalnej ekspozycji, a nie mapą udowodnionej śmierci każdego osobnika. Wniosek dotyczący siedliska jest szerszy niż ochrona pojedynczego drzewa: zagrożenie może powstawać w sąsiedztwie odpowiedniego lasu i przyciągać owady poza bezpieczne substraty. Ocena stanowiska powinna obejmować także sposób użytkowania jego otoczenia. [149]
Polska opinia Państwowej Rady Ochrony Przyrody z 2024 r. zwraca uwagę również na martwe części żyjących drzew, w tym odsłonięte martwice i obumarłe grube konary. To istotne doprecyzowanie: drzewo nie musi być martwe w całości, aby zawierało potencjalne mikrosiedlisko larw. Dokument wskazuje także, że przemieszczanie zasiedlonego drewna może zmienić warunki mikroklimatyczne. Oceniając trwałość siedliska, trzeba więc uwzględnić nie tylko zachowanie samego materiału, ale również warunki w miejscu, gdzie ma on pozostać. Jest to kwestia biologii rozwoju, niezależna od łatwości sfotografowania dorosłego chrząszcza. [150]
Zalotka większa: roślinność i woda jako połączone środowisko
Zalotka większa Leucorrhinia pectoralis pozwala prześledzić wymagania gatunku na granicy środowiska wodnego i lądowego. GIOŚ opisuje jej preferencję względem zbiorników w pośrednich stadiach sukcesji, z umiarkowanie obfitą lub dość obfitą roślinnością. Dwa zbiorniki o podobnej powierzchni mogą więc różnić się przydatnością: samo zachowanie lustra wody nie oddaje struktury siedliska. W opisie stanowiska trzeba uwzględnić mozaikę roślin i wolnej wody oraz kierunek zmian zarastania. Z tej charakterystyki nie wynika jednak jeden docelowy procent pokrycia roślinnością, który należałoby mechanicznie stosować we wszystkich polskich zbiornikach. [151]
W badaniu siedmiu potorfii i strefy brzeżnej torfowiska Krugłe Bagno na Polesiu Zachodnim Buczyńska i Buczyński analizowali larwalne zespoły ważek, chrząszczy i chruścików. Pokrycie torfowcami było istotnym czynnikiem różnicującym badane owady, ale poszczególne grupy reagowały także na inne cechy środowiska. Zalotkę większą stwierdzano zarówno w potorfiach, jak i w strefie brzeżnej. Badanie pokazuje wartość istniejących wtórnych zbiorników dla określonych organizmów, nie dowodzi natomiast, że wydobycie torfu poprawia stan torfowisk. Z ochronnego punktu widzenia ważne jest rozpoznanie zastanej mozaiki mikrosiedlisk oraz organizmów, które z niej korzystają, zanim zostanie ona ujednolicona przez zabieg. [152]
Również obecność ryb wymaga oceny bardziej szczegółowej niż proste „są” albo „nie ma”. Mauersberger badał rozród zalotki większej w 38 zbiornikach północno-wschodnich Niemiec. Stwierdził, że gatunek może kończyć rozwój w wodach zasiedlonych przez ryby, lecz liczba wylinek zależała od ich zagęszczenia i składu gatunkowego; szczególnie niekorzystne wyniki dotyczyły zbiorników z dominacją okonia. Nie oznacza to bezpieczeństwa dowolnego zarybiania. Wynik podważa natomiast kategoryczne twierdzenie, że nawet pojedyncza ryba automatycznie wyklucza rozród zalotki. Dla polskiego stanowiska potrzebne są własne dane o zespole ryb i sukcesie rozwoju ważki, a nie sam opis wody jako rybnej lub bezrybnej. [153]
Ważnym rozróżnieniem jest obecność dorosłych i potwierdzenie zakończenia rozwoju wodnego. Raebel i współautorzy, porównując stadia ważek w brytyjskich stawach krajobrazu rolniczego, wykazali, że wyniki obserwacji dorosłych nie są zamienne z wynikami dotyczącymi larw i wylinek. Samica może składać jaja w zbiorniku, w którym późniejsze warunki nie pozwolą potomstwu osiągnąć stadium dorosłego. Prawidłowo rozpoznana wylinka po ostatnim linieniu jest znacznie mocniejszym świadectwem lokalnego zakończenia rozwoju larwalnego niż przelot dorosłego. Nadal nie stanowi jednak dowodu, że cały następny cykl rozrodczy również zakończy się pomyślnie. [154]
Brak znalezionych wylinek wymaga ostrożniejszego wniosku. Bried i współautorzy, analizując równoległe obserwacje dorosłych i wylinek we Francji, wykazali, że wykrywalność wylinek bywa niższa. Poszukiwania mogą przeoczyć obecny gatunek, a zatem sama zmiana obserwowanego stadium nie usuwa wszystkich błędów pomiaru. Dokumentacja powinna zachować informację o zakresie przeszukania brzegu i terminie wizyty. W ochronie mikrosiedlisk potrzebne są oba elementy rozumowania: pozytywny dowód ukończenia rozwoju ma dużą wartość, ale jego niewykrycie podczas pojedynczej kontroli nie rozstrzyga o nieprzydatności zbiornika. [155]
Co właściwie podlega zachowaniu
| Układ | Zasób związany z rozwojem | Czego nie wystarczy stwierdzić | Pytanie terenowe |
|---|---|---|---|
| Telejus | Krwiściąg i gospodarze Myrmica [141] | Obecności kwiatów | Czy oba zasoby współwystępują? |
| Jelonek | Rozkładające się drewno przy gruncie [143] | Obecności starych koron | Czy utrzymuje się substrat larw? |
| Nadobnica | Odpowiednie drewno i ekspozycja [147] | Skupienia dorosłych na stosie | Jaki będzie dalszy los drewna? |
| Zalotka | Zbiornik z odpowiednią roślinnością [151] | Przelotu dorosłej ważki | Czy potwierdzono lokalny rozwój? |
Ocena siedliska powinna łączyć jego strukturę z dostępnością zasobów potrzebnych w kolejnych stadiach życia. Przestrzenne rozdzielenie tych zasobów może ograniczać ich wykorzystanie. [138]
Część IVMonitoring i dane w ochronie przyrody
Rozdział 24Liczebność i biomasa na tle różnorodności
Jak czytać statystyki dotyczące stawonogów
Nie istnieje pojedyncza liczba, która opisywałaby kondycję całego typu Arthropoda. Liczba gatunków, liczebność osobników, biomasa i ryzyko wymarcia odpowiadają na różne pytania. Ich rozróżnienie jest konieczne, aby dane przedstawiane w artykule zachowały znaczenie biologiczne.
Bogactwo gatunkowe oznacza liczbę gatunków w określonym zbiorze: próbce, siedlisku, regionie albo na świecie. Liczba formalnie opisanych gatunków jest stanem wiedzy taksonomicznej, natomiast szacunek liczby wszystkich gatunków obejmuje także organizmy jeszcze nieopisane. Różnica między tymi wielkościami nie jest wynikiem bezpośredniego policzenia nieznanych gatunków. Powstaje na podstawie modeli, porównań i ekstrapolacji, których założenia trzeba osobno oceniać.
Liczebność to liczba osobników. Można ją odnosić do powierzchni, objętości lub całego obszaru. Wynik odłowu wymaga ostrożniejszego nazwania: liczba osobników w pułapce zależy również od ich aktywności oraz skuteczności urządzenia. Taki pomiar może być bardzo przydatny w monitoringu, ale nie zawsze jest prostym spisem populacji. Na przykład dwukrotnie większa liczba zwierząt w pułapce nie musi oznaczać dwukrotnie większej liczebności na danym terenie.
Biomasa jest masą organizmów. Należy wskazać, czy chodzi o masę świeżą, suchą, czy masę zawartego w organizmach węgla. Tych jednostek nie wolno zamieniać bez przyjęcia dodatkowych współczynników. W publikacjach porównujących wielkie grupy organizmów często stosuje się masę węgla, zapisywaną jako t C, Mt C albo Gt C. Jeden Mt to milion ton, a jeden Gt to miliard ton. Z kolei procentowy spadek biomasy nie jest automatycznie takim samym spadkiem liczby osobników: zmiana przeciętnej wielkości ciała może rozdzielić te dwa trendy.
Ryzyko wymarcia dotyczy perspektyw przetrwania gatunku. Nie oznacza procentu utraconych osobników ani odsetka gatunków, które już wymarły. Podobnie zanik gatunku na pojedynczym stanowisku nie oznacza jego globalnego wymarcia. Lokalne i globalne zmiany trzeba opisywać odrębnie.
Przed porównaniem dwóch wyników należy zatem ustalić: co policzono, na jakim obszarze, w jakim okresie, jaką metodą i z jaką niepewnością. Istotne są również punkty odniesienia. Procentowy wzrost po wcześniejszym załamaniu populacji może oznaczać tylko częściową odbudowę. Również niezmieniona łączna liczebność może maskować zastępowanie jednych gatunków przez inne. Są to konsekwencje sposobu definiowania wskaźników, a nie argumenty za pomijaniem danych.
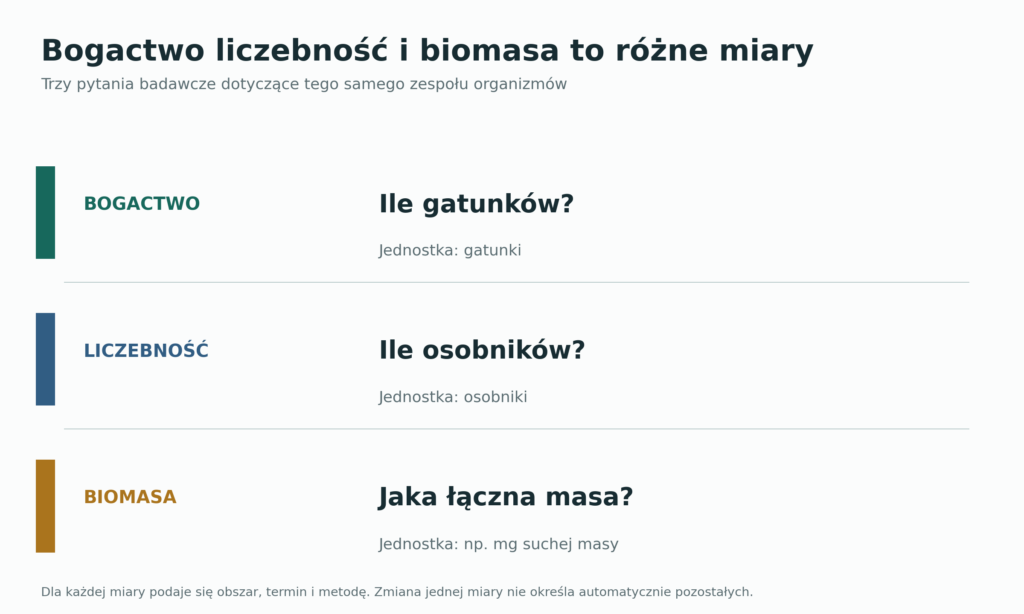
Ile gatunków pozostaje niepoznanych
W przeglądzie Nigela Storka z 2018 r. roboczy szacunek światowego bogactwa owadów wynosił około 5,5 mln gatunków, a wszystkich stawonogów lądowych około 7 mln. Wartości te stanowią syntezę kilku podejść; nie są wynikiem pełnego spisu. Autor zestawiał je z około milionem nazwanych gatunków owadów i wskazywał, że zdecydowana większość ich rzeczywistej różnorodności mogła pozostawać nieopisana. Wielkości historycznej nie należy przedstawiać jako dokładnego, aktualizowanego na bieżąco stanu katalogów. [156]
W pracy poprzedzającej ten przegląd zakres zestawianych oszacowań wynosił 2,6–7,8 mln gatunków owadów oraz 5,9–7,8 mln gatunków stawonogów lądowych. To zakres uzyskany z rozpatrywanych metod, a nie uniwersalny przedział ufności dla jednej próby. Co równie istotne, szacunek lądowy nie obejmuje całej różnorodności morskich skorupiaków. [157]
Praktyczny wniosek jest prosty: nawet bardzo rozbudowane kompendium opisuje grupę, której katalog pozostaje niekompletny. Odkrycie nowego gatunku, rozdzielenie zespołu gatunków kryptycznych i uznanie dwóch nazw za synonimy mogą zmieniać bilans w różnych kierunkach. Podawanie pozornie precyzyjnej liczby wszystkich stawonogów bez daty i definicji byłoby więc mylące.
Biomasa i liczebność na świecie
Synteza Rosenberga i współautorów z 2023 r., oparta na tysiącach ocen z około 500 stanowisk, oszacowała suchą biomasę stawonogów lądowych na około 300 mln ton, z zakresem niepewności 100–500 mln ton. Dla liczebności przyjęto rząd wielkości 10¹⁹ osobników, z zakresem 0,5–2 × 10¹⁹. Zdecydowaną większość osobników stanowią organizmy glebowe; około 95% liczebności tej części zespołu przypisano roztoczom i skoczogonkom. Dane o części nadziemnej są słabsze niż o glebie. Autorzy ostrzegają również przed nierównomiernym rozmieszczeniem stanowisk i błędami ekstrapolacji. [158]
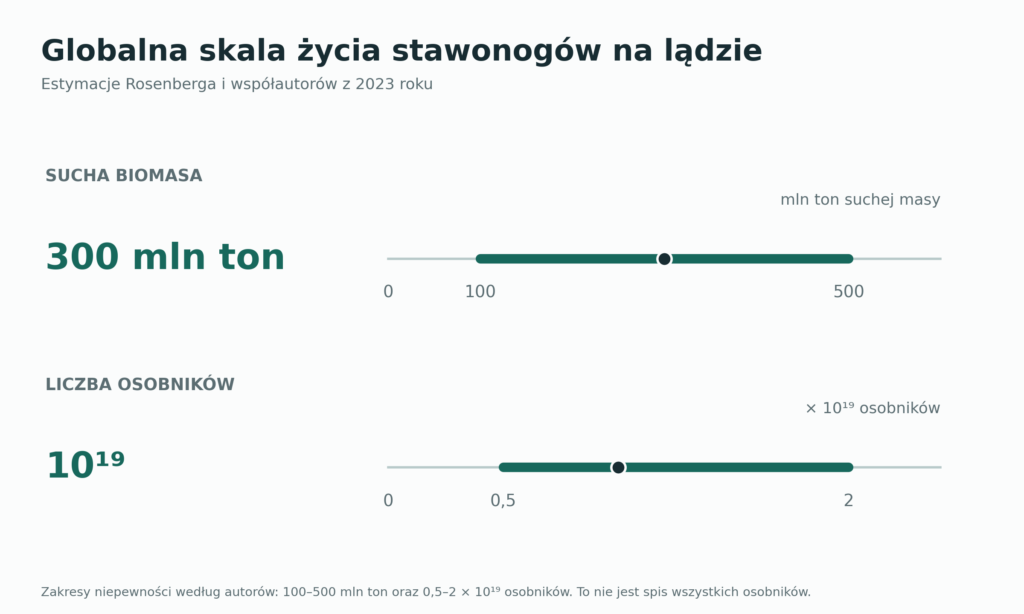
W historycznym zestawieniu Bar-Ona i współautorów z 2018 r. biomasę lądowych stawonogów oceniano na około 0,2 Gt C, a morskich na około 1 Gt C. Te wartości wyrażają masę węgla. Nie są odpowiednikami 0,2 i 1 miliarda ton świeżych zwierząt. Nowszy bilans lądowy i wcześniejszy bilans biosfery mają różny zakres i podstawy oszacowania; nie należy z ich różnicy wyliczać trendu populacyjnego. [159]
Szczególnie dobrze ilustrują skalę zjawiska mrówki. Schultheiss i współautorzy, na podstawie 489 badań, oszacowali ich globalną liczebność na około 20 biliardów, czyli 2 × 10¹⁶ osobników, a biomasę na około 12 mln ton węgla. W zapisie bardziej szczegółowym wynik wynosił (19,8 ± 5) × 10¹⁵ osobników oraz 12,3 ± 3,1 Mt C; autorzy podali średnią i błąd standardowy. Nie jest to przedział ufności 95%. Oszacowanie nie obejmuje dobrze wszystkich siedlisk podziemnych ani wszystkich stadiów i kast rozrodczych. Popularne twierdzenie, że mrówki ważą tyle samo co cała ludzkość, nie znajduje potwierdzenia w tym wyniku. [160]
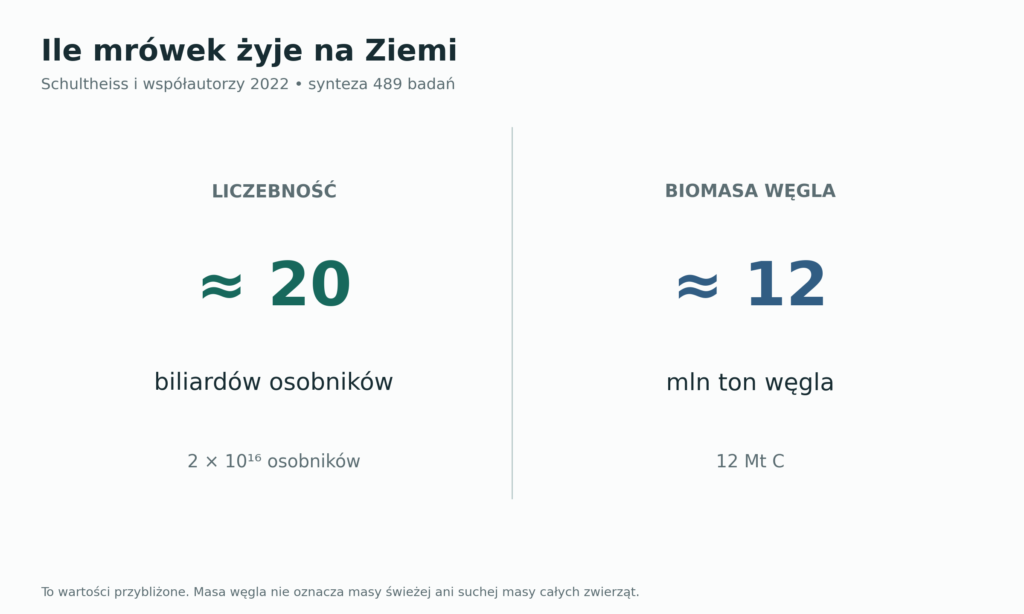
| Wielkość | Wartość | Zakres i data publikacji | Jak interpretować |
|---|---|---|---|
| Szacowane bogactwo owadów | ok. 5,5 mln gatunków | Świat; 2018 [156] | Estymacja obejmująca gatunki nieopisane |
| Szacowane bogactwo stawonogów lądowych | ok. 7 mln gatunków | Lądy; 2018 [156] | Nie obejmuje wszystkich stawonogów wodnych |
| Sucha biomasa stawonogów lądowych | ok. 300 mln ton; zakres 100–500 | Lądy; 2023 [158] | Zakres niepewności według autorów |
| Liczebność stawonogów lądowych | ok. 10¹⁹; zakres 0,5–2 × 10¹⁹ | Lądy; 2023 [158] | Globalna ekstrapolacja, dominacja organizmów glebowych |
| Liczebność mrówek | ok. 20 biliardów | Świat; 2022 [160] | Zaokrąglone oszacowanie; nie pełny spis |
| Biomasa mrówek | ok. 12 Mt C | Świat; 2022 [160] | Masa węgla, nie masa świeża ani całkowita sucha |
Data w tabeli oznacza rok publikacji. Nie oznacza, że wszystkie pomiary terenowe przeprowadzono właśnie w tym roku. Sumowanie wierszy byłoby błędem: mrówki są już częścią stawonogów lądowych, a bogactwo gatunkowe i liczebność mają odmienne jednostki.
Rozdział 25Zmiany populacji i ich przyczyny
Udokumentowane spadki
W badaniu Hallmanna i współautorów z 2017 r. analizowano odłowy owadów latających w 63 obszarach chronionych Niemiec w latach 1989–2016. Modelowany spadek sezonowej biomasy wyniósł około 76,7%, a w środku lata około 82%. Materiał obejmował 96 kombinacji stanowisko–rok, nie ciągły coroczny monitoring wszystkich 63 miejsc. Wynik dokumentuje poważne zmniejszenie biomasy w badanym systemie. Nie oznacza, że 76,7% gatunków wymarło ani że taki sam odsetek wszystkich owadów zniknął na całej Ziemi. Samo badanie nie rozstrzygnęło też, jaka pojedyncza przyczyna odpowiada za obserwowany spadek. [161]
Inne niemieckie badanie, opublikowane przez Seibolda i współautorów w 2019 r., objęło okres 2008–2017 oraz 150 stanowisk trawiastych i 140 leśnych. Na corocznie badanych terenach trawiastych stwierdzono spadki biomasy, liczebności i liczby gatunków odpowiednio o 67%, 78% i 34%. W trzydziestu corocznie badanych stanowiskach leśnych zmniejszyła się biomasa i liczba gatunków, bez analogicznego spadku łącznej liczebności. To przykład, w którym wskaźniki nie zachowują się jednakowo. Związek trendów z otaczającym krajobrazem wskazywał również, że analiza samej działki może nie wyjaśniać procesów zachodzących w większej skali. [162]
Nowsze dane dla motyli dziennych pochodzą ze Stanów Zjednoczonych. Edwards i współautorzy w 2025 r. zestawili około 12,6 mln obserwacji osobników, uzyskanych w 35 programach monitoringu. Dla kontynentalnej, zwartej części USA oszacowano 22% spadku łącznej liczebności w latach 2000–2020. Zbiór obejmował 554 gatunki, ale tylko dla 342 ilość danych wystarczała do wyznaczenia osobnych trendów. Wniosek jest mocny dla analizowanej grupy i obszaru; nie stanowi globalnego wskaźnika dla wszystkich owadów. [163]
| Badanie | Co mierzono | Wynik | Czego wynik nie oznacza |
|---|---|---|---|
| Hallmann i in. 2017 [161] | Biomasa owadów latających w niemieckich obszarach chronionych, 1989–2016 | Około −76,7% sezonowo | Nie jest to procent wymarłych gatunków |
| Seibold i in. 2019 [162] | Stawonogi na corocznie badanych terenach trawiastych Niemiec, 2008–2017 | Biomasa −67%; liczebność −78%; liczba gatunków −34% | Trzy wskaźniki nie są zamienne |
| Edwards i in. 2025 [163] | Łączna liczebność motyli dziennych w zwartej części USA, 2000–2020 | Około −22% | Nie jest to trend całego typu Arthropoda |
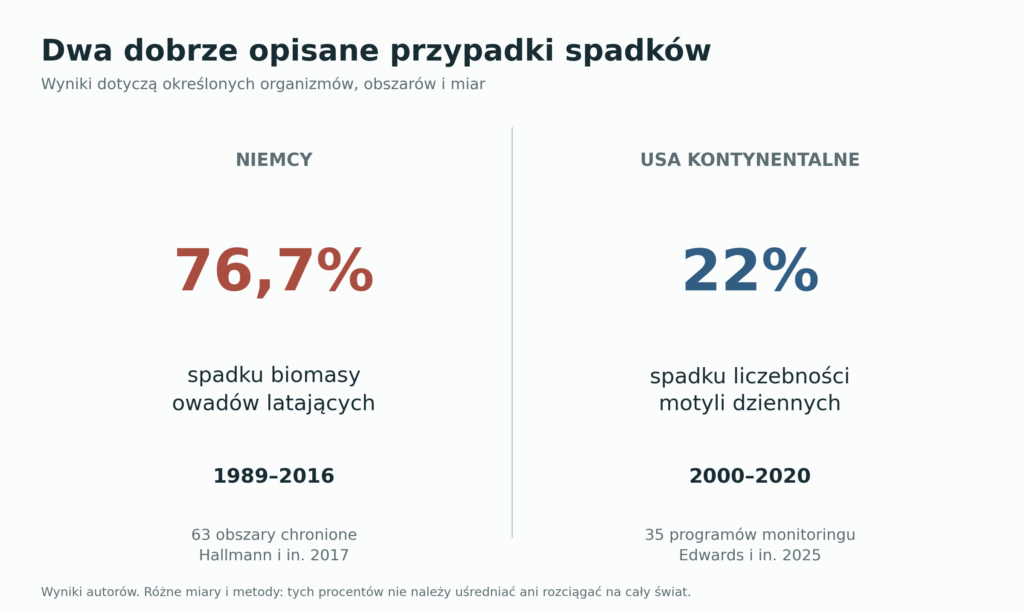
Aktualizacja oceny źródeł
Często cytowana metaanaliza van Klinka i współautorów z 2020 r. podawała średnio około 9% spadku liczebności owadów lądowych i 11% wzrostu słodkowodnych na dekadę. [164] 22 stycznia 2026 r. czasopismo „Science” opublikowało dotyczące tej pracy redakcyjne ostrzeżenie Expression of Concern. Istnienie i powiązanie komunikatu potwierdza rekord PubMed. [165] Wcześniejsze zawiadomienie redakcji „Ecology” zwracało uwagę na aktualizacje i zastrzeżenia wobec jakości zbioru InsectChange. [166]
Dlatego tych dwóch wskaźników nie należy przedstawiać jako bezspornego, aktualnego bilansu globalnego. Ostrzeżenie redakcyjne nie jest automatycznie wycofaniem artykułu, ale jest istotną informacją o wiarygodności podstaw jego interpretacji. Wyniki tej pracy wymagają uwzględnienia ostrzeżenia przy każdej ponownej interpretacji.
Obraz środowisk wodnych także wymaga rozróżnienia okresów. Haase i współautorzy w 2023 r. przeanalizowali 1816 szeregów czasowych zespołów bezkręgowców słodkowodnych z 22 krajów Europy, obejmujących lata 1968–2020. Stwierdzili wcześniejszą odbudowę części wskaźników, lecz przyrost bogactwa taksonomicznego wyhamował około początku lat 2010. Badanie obejmowało bezkręgowce, a więc zakres szerszy niż stawonogi. Wskazuje, że poprawa obserwowana w całym długim szeregu może współistnieć z jej zatrzymaniem w końcowej części. [167]
Warto też oddzielać opis stanu od wyjaśnienia przyczyn. Wykrycie spadku wymaga wiarygodnego monitoringu; przypisanie go konkretnemu czynnikowi dodatkowo wymaga odpowiedniego projektu badania. Współwystępowanie intensywnego rolnictwa i spadków może wyznaczać ważną hipotezę, lecz samo nie rozdziela wpływu pestycydów, zmian roślinności, struktury krajobrazu oraz pogody. Rzetelna prezentacja pozostawia te zależności widoczne zamiast zastępować je jedną uniwersalną przyczyną.
Najważniejsze zagrożenia
Przegląd Wagnera i współautorów z 2021 r. wskazuje, że presje działają jednocześnie: przekształcanie siedlisk, intensyfikacja rolnictwa, zmiana klimatu, gatunki obce i zanieczyszczenia mogą się nakładać. Znaczenie poszczególnych czynników zależy od regionu, grupy i etapu życia. Część gatunków utrzymuje się lub zwiększa liczebność, dlatego ogólna narracja o identycznym losie wszystkich owadów byłaby niezgodna z dostępną wiedzą. [168]
W analizie Outhwaite i współautorów z 2022 r. połączenie intensywnego użytkowania rolniczego z silniejszym historycznym ociepleniem wiązało się z niemal o połowę mniejszą liczebnością i o 27% mniejszym bogactwem zespołów owadów względem przyjętych siedlisk odniesienia. To porównanie zespołów w różnych warunkach, a nie bezpośrednia informacja, że połowa wszystkich owadów zniknęła w określonym przedziale czasu. Otaczające siedliska naturalne łagodziły część obserwowanych zależności, szczególnie w systemach rolnictwa o małej intensywności. [169]
Znaczenie ma także sztuczne światło nocą. Boyes i współautorzy porównali dobrane parami oświetlone i nieoświetlone stanowiska w południowej Anglii. W oświetlonych żywopłotach liczebność gąsienic ciem była o 47% niższa, a na trawiastych obrzeżach o 33% niższa. Wynik dotyczy określonych siedlisk i stadium larwalnego; nie jest uniwersalnym współczynnikiem wpływu każdej lampy na wszystkie owady. Pokazuje jednak, że badanie samych dorosłych owadów przyciąganych do źródła światła może przeoczyć ważny fragment oddziaływania. [170]
Rozdział 26Od presji środowiskowej do sprawdzonej ochrony
Mechanizm jest równie ważny jak nazwa zagrożenia
Ta sama ogólna kategoria presji może oddziaływać przez odmienne mechanizmy. Rozdrobnienie siedliska zmienia wielkość płatów, ich izolację i udział stref brzegowych. Wyniki wieloletnich eksperymentów nad fragmentacją pokazują, że skala i czas od przekształcenia mają znaczenie dla oceny następstw. U stawonogów interpretacja wymaga dodatkowo uwzględnienia zdolności przemieszczania się, potrzeb pokarmowych i mikrośrodowiska poszczególnych stadiów. Zestawienie poniżej łączy udokumentowane zależności z przykładowym sposobem ich badania; nie przypisuje wszystkim gatunkom jednakowej wrażliwości. [171]
| Presja | Badany mechanizm | Użyteczna odpowiedź | Ograniczenie interpretacji |
|---|---|---|---|
| Fragmentacja siedlisk | Izolacja i zmiany warunków w płatach | Zajęcie stanowisk, skład zespołu | Skutek zależy od skali i czasu [171] |
| Ocieplenie i przesuszenie | Zmiana warunków sezonu aktywności | Trendy populacji wraz z danymi pogodowymi | Współdziałają inne zmiany środowiska [172] |
| Sztuczne światło nocą | Zaburzenia nocnych odwiedzin kwiatów | Wizyty zapylaczy i zawiązywanie owoców | Efekt zależy od badanego układu [173] |
| Narażenie na pestycydy | Kontakt z pozostałościami w pokarmie | Pozostałości oraz rozwój kolonii | Wynik jednego gatunku nie opisuje wszystkich [174] |
Badanie zależności klimatycznych wymaga zachowania tej samej ostrożności co badanie użytkowania terenu. Forister i współautorzy zestawili wieloletnie obserwacje motyli zachodnich Stanów Zjednoczonych z warunkami klimatycznymi i wykazali związek spadków między innymi z cieplejszymi jesieniami. Taki wynik uzasadnia analizę sezonu i regionu; nie ustanawia jednej temperatury granicznej wspólnej dla wszystkich owadów. [172]
Eksperyment Knop i współautorów pokazuje z kolei, że skutki światła można badać na poziomie relacji między organizmami. Porównywano nocne odwiedziny kwiatów oraz wynik rozmnażania roślin w oświetlonych i ciemnych zbiorowiskach. Sama liczba owadów zgromadzonych przy lampie nie odpowiada na pytanie, jak działa otaczająca ją sieć zapylania. [173]
Studium badawcze trzmiele w krajobrazie rolniczym
Nicholson i współautorzy badali 316 kolonii trzmiela ziemnego Bombus terrestris na 106 stanowiskach w ośmiu krajach Europy. Publikacja ukazała się online w 2023 r., a w tomie czasopisma w 2024 r. Ryzyko wyliczano z pozostałości pestycydów w pyłku, z uwzględnieniem ich toksyczności. W porównaniu grupy powyżej 90. percentyla ryzyka z grupą poniżej 25. percentyla autorzy podali o 34% mniejszą maksymalną masę kolonii, o 52% mniejszą całkowitą produkcję osobników i o 47% mniejszą produkcję nowych królowych. Porównanie obejmowało odpowiednio 30 i 79 kolonii oraz oszacowania z modeli. Masa obejmowała zwierzęta, czerw i zapasy. Wyniki dotyczą okresu kwitnienia badanych upraw, nie pełnego cyklu kolonii ani zmiany całej europejskiej populacji. [174]
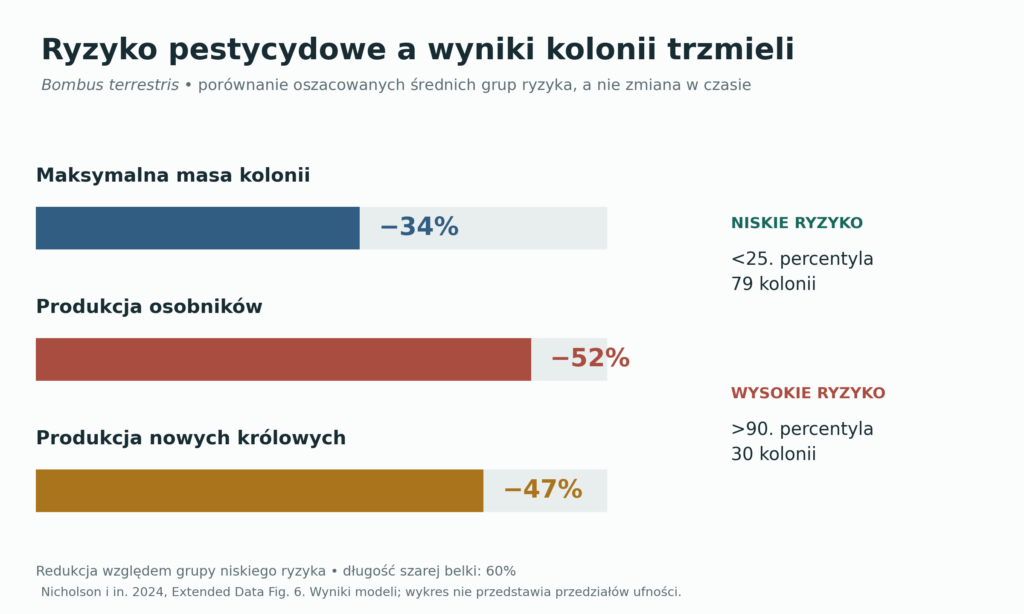
Jak rozpoznać skutek działania ochronnego
Zrozumienie mechanizmu pomaga ustalić, co powinno oznaczać powodzenie ochrony. W obszarze podzielonym na małe płaty ważne może być utrzymanie kilku połączonych populacji, a nie tylko jednorazowy wzrost liczby osobników na jednym stanowisku. Jeżeli skutki izolacji ujawniają się z opóźnieniem, krótka kontrola po zabiegu nie rozstrzyga o trwałości efektu. Z tych powodów cele przestrzenne i horyzont oceny należy zapisać przed analizą wyników. To praktyczna konsekwencja rozróżnienia chwilowej reakcji od długotrwałego utrzymania zespołu. [171]
Ocenę zabiegu warto zaplanować przed jego rozpoczęciem. Schemat BACI zestawia pomiary przed oddziaływaniem i po nim w miejscu poddanym działaniu oraz w miejscu kontrolnym. Istotą jest porównanie zmian, a nie samo stwierdzenie, że po zabiegu odnotowano więcej zwierząt. Underwood pokazał, dlaczego replikacja w czasie i wykorzystanie kilku miejsc porównawczych zwiększają możliwości oddzielenia skutku oddziaływania od naturalnej zmienności przestrzennej. [175]
Przykładowo wzrost liczby obserwowanych owadów po odtworzeniu roślinności może zbiegać się z wyjątkowo korzystnym sezonem w całym regionie. Kontrole pomagają sprawdzić, czy zmiana w miejscu działania wyróżnia się na tym tle. Jest to ilustracja projektu badania, nie wynik konkretnego eksperymentu. Wniosek pozostaje zależny od porównywalności stanowisk, powtórzeń i biologicznego uzasadnienia wybranej miary sukcesu. [175]
Jednostką niezależnej replikacji nie zawsze jest pojedyncza złapana sztuka. W badaniu zabiegu wykonywanego na łące wiele pułapek w obrębie tej samej łąki może opisywać zróżnicowanie wewnątrz jednego obiektu, zamiast zastępować wiele niezależnych łąk. Pominięcie tej struktury prowadzi do pseudoreplikacji. Hurlbert omówił jej konsekwencje dla eksperymentów ekologicznych: pozornie wielka próba może sugerować znacznie silniejsze dowody, niż faktycznie zapewnia układ badania. [176]
Skala niezależnej replikacji powinna odpowiadać skali interwencji. [176]
Rozdział 27Ochrona i jakość danych
Ryzyko wymarcia
Globalna analiza Sayer i współautorów, opublikowana w 2025 r., objęła wybrane grupy zwierząt słodkowodnych. Dla dziesięcionogów słodkowodnych, takich jak kraby, raki i krewetki, najlepszy szacunek odsetka gatunków zagrożonych wyniósł 30%, a dla ważek 16%. Jednocześnie odpowiednio 39% i 29% gatunków miało status niedostatecznych danych. Zakresy możliwego odsetka zagrożonych były przez to szerokie: 18–58% i 11–41%. Nie wolno rozszerzać wartości dla tych grup na wszystkie skorupiaki, wszystkie owady lub cały typ stawonogów. Kategoria niedostatecznych danych nie oznacza bezpieczeństwa gatunku. [177]
| Grupa | Najlepszy szacunek odsetka zagrożonych | Zakres wynikający z braków danych | Odsetek gatunków z niedostatecznymi danymi |
|---|---|---|---|
| Dziesięcionogi słodkowodne | 30% | 18–58% | 39% |
| Ważki | 16% | 11–41% | 29% |
Źródło: Sayer i in. 2025 [177]. Zakresy nie są prognozą liczby przyszłych wymarć ani zwykłym błędem pomiaru; pokazują znaczenie niepewnego statusu gatunków z niedostatecznymi danymi.
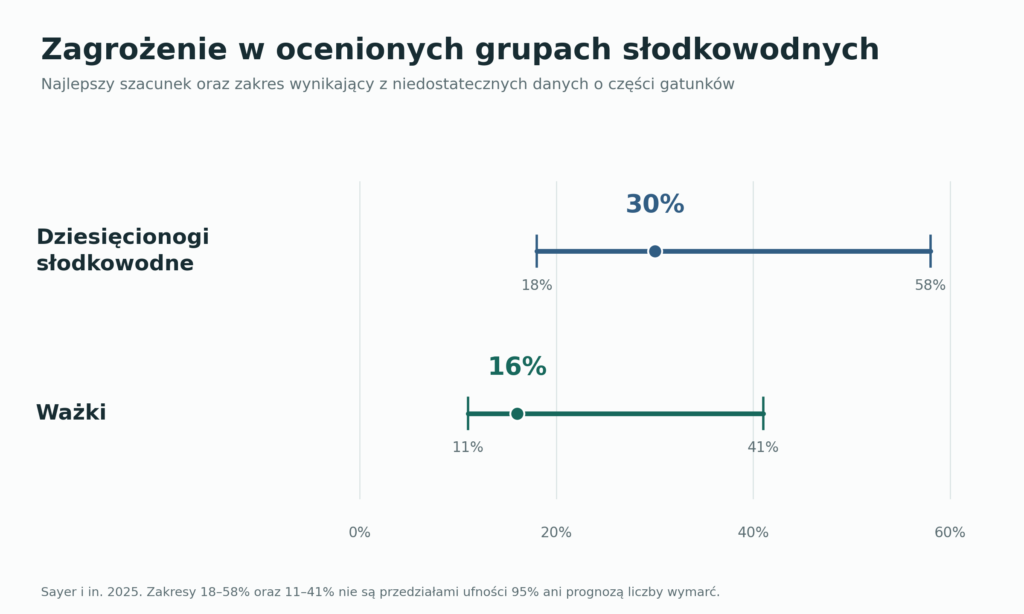
Ochrona w skali krajobrazu
Z przytoczonych badań wynika potrzeba ochrony całego środowiska życia, a nie tylko dorosłych zwierząt widocznych na kwiatach. To synteza wniosków, nie nowy wynik pojedynczego eksperymentu. Plan dla konkretnego miejsca powinien najpierw ustalić, jakie organizmy mają być chronione, gdzie się rozmnażają, czym żywią się ich stadia rozwojowe i jakie presje są rzeczywiście obecne. [168, 169, 170]
Ochrona siedliska może oznaczać zachowanie roślin żywicielskich, ciągłości zadrzewień, wilgotnych zakątków, martwego drewna albo odcinków rzek o dobrej jakości wody. Żadne z tych działań nie jest jednak zamiennikiem wszystkich pozostałych. Zabieg korzystny dla jednej grupy wymaga oceny w kontekście innych funkcji miejsca. Na przykład ochrona owadów związanych z roślinnością otwartą może potrzebować innego sposobu użytkowania niż ochrona organizmów starego lasu.
Efekty działań należy oceniać w zaplanowanym monitoringu z miejscami porównawczymi. Zasady takiego projektu wyjaśnia rozdział „Od presji środowiskowej do sprawdzonej ochrony”.
Najważniejszym ograniczeniem pozostaje niepełny monitoring. Nie powinno ono prowadzić ani do alarmistycznego przeliczania lokalnych wyników na całą planetę, ani do lekceważenia udokumentowanych spadków. Profesjonalna ochrona opiera decyzje na najlepszych dostępnych danych, a równocześnie zachowuje możliwość ich korekty.
Ogród i najbliższe otoczenie
Warunki potrzebne stawonogom obejmują więcej niż kwiaty dostępne przez kilka tygodni. Ważne są również miejsca rozrodu, schronienia oraz możliwość przeżycia okresu niekorzystnej pogody. PIORiN wskazuje, że suche łodygi, część opadłych liści, martwe drewno i fragmenty nieprzekopanej gleby mogą zapewniać miejsca zimowania różnym grupom. Nie znaczy to, że każdy ogród wymaga identycznego sposobu zarządzania; potrzebna jest różnorodność mikrośrodowisk dostosowana do miejsca. [56]
„Hotel dla owadów” wspiera tylko określone strategie gniazdowania. Badanie MacIvora i Packera prowadzone w Toronto wykazało, że takie konstrukcje mogą zasiedlać także obce gatunki pszczół i osy, a wynik zależy od składu lokalnej fauny oraz pasożytnictwa. Nie należy przenosić szczegółowych proporcji z Kanady na polskie warunki. Z badania wynika jednak uzasadniona ostrożność wobec obietnicy, że każda skrzynka automatycznie zwiększa liczebność rodzimych zapylaczy. [178]
Przy ograniczaniu szkodników warto uwzględniać skutki dla organizmów niebędących celem zabiegu. Uniwersytecki program UC IPM podkreśla, że część pestycydów może zabijać naturalnych wrogów i zapylacze albo zaburzać ich aktywność. Wybór działań powinien wynikać z rozpoznania problemu, obserwacji jego skali oraz oceny dostępnych metod. Ogólne kompendium nie zastępuje instrukcji dotyczących konkretnej uprawy i zarejestrowanego środka; pozwala natomiast rozumieć, dlaczego skuteczność działania i jego selektywność są dwiema odrębnymi cechami. [179]
Jak dokumentować obserwacje bez nadinterpretacji
Użyteczna obserwacja zawiera datę, miejsce, opis siedliska i materiał pozwalający sprawdzić oznaczenie. Warto zapisać, czy widziano osobnika dorosłego, larwę, wylinkę czy ślady żerowania. Własną niepewność należy zachować w notatce: oznaczenie do rodziny jest lepsze niż wymyślona nazwa gatunkowa. Szczególnie małe, podobne do siebie gatunki często wymagają obejrzenia cech niewidocznych na zwykłym zdjęciu.
Jednorazowa obserwacja opisuje zdarzenie. Do oceny trendu potrzebna jest porównywalność kolejnych pomiarów. Jeżeli w jednym roku oglądamy ogród przez godzinę, a w drugim przez całe lato, większa liczba wpisów nie dowodzi wzrostu populacji. Analogicznie brak fotografii gatunku nie jest dowodem jego wyginięcia. To podstawowe ograniczenia wnioskowania, które warto stosować zarówno przy własnych zapiskach, jak i przy lekturze głośnych komunikatów o zmianach przyrody.
Jak przedstawiać dane bez pozornej precyzji
Na wykresie warto pokazywać zakres niepewności równie wyraźnie jak oszacowanie centralne. Punkt bez zakresu może sugerować, że znamy wartość dokładniej, niż wynika to z badania. Nie oznacza to jednak, że wszystkie zakresy mają identyczne znaczenie. Przedział ufności, błąd standardowy, zakres różnych oszacowań i granice wynikające z braków danych odpowiadają na odmienne pytania. W podpisie trzeba zachować nazwę używaną przez autorów albo wyraźnie objaśnić jej uproszczenie.
Indeks zaczynający się od 100 ułatwia pokazanie względnej zmiany, ale usuwa informację o wyjściowej liczbie organizmów. Dwa siedliska mogą stracić po 20% osobników, choć w jednym strata wynosi setki, a w drugim miliony. W samym indeksie wygląda to tak samo. Dlatego wykres indeksowy powinien informować, że przedstawia zmianę względną, i nie udawać wykresu liczby wszystkich zwierząt.
Także procentów nie zawsze można dodawać. W czysto rachunkowym przykładzie spadek ze 100 do 80 to 20%, lecz powrót z 80 do 100 wymaga wzrostu o 25%. Przy powtarzaniu rocznej zmiany podstawa obliczenia jest aktualizowana co roku. Z tego powodu nie należy bez sprawdzenia mnożyć wskaźnika rocznego przez liczbę lat ani dzielić całkowitego spadku przez długość badania.
Wreszcie dwa punkty końcowe nie opisują przebiegu całego procesu. Połączenie ich ozdobną gładką krzywą tworzyłoby wizualne wrażenie danych, których nie posiadamy. Jeżeli znamy tylko modelowany wynik łączny, uczciwa grafika może pokazywać dwa słupki, wskaźnik zmiany albo punkt z zakresem. Pełny szereg roczny wymaga rzeczywistych obserwacji lub jawnie opisanych przewidywań modelu.
Część VBadania i narzędzia czytelnika
Rozdział 28Jak naukowcy badają różnorodność stawonogów
Wynik badania zależy nie tylko od tego, co występuje w środowisku, lecz także od tego, co zastosowana metoda pozwala wykryć. Projekt powinien zaczynać się od pytania: czy celem jest rozpoznanie składu gatunkowego, śledzenie zmian aktywności, oszacowanie zagęszczenia, porównanie biomasy, czy wykrycie konkretnego gatunku? Nie istnieje jeden rodzaj próby, który równie dobrze odpowiada na wszystkie te pytania. Zasadę tę uwidaczniają przeglądy pułapek naziemnych i pułapek przechwytujących owady w locie: szczegóły konstrukcji i rozmieszczenia wpływają na uzyskany materiał. [180, 181]
Odłów jako wynik zachowania i metody
Pułapka gruntowa ma otwór na poziomie podłoża i przechwytuje przemieszczające się zwierzęta. Jej wynik łączy lokalną liczebność z aktywnością ruchową, dlatego w literaturze używa się pojęcia activity-density. Saska i współautorzy analizowali wpływ temperatury na takie odłowy. Gdy zwierzęta stają się aktywniejsze, do pułapek może trafić ich więcej, nawet jeśli rzeczywiste zagęszczenie nie wzrosło proporcjonalnie. Również porównanie dwóch gatunków wymaga ostrożności: większy udział w odłowie może wynikać z większej ruchliwości. [182]
Dla porównywalności trzeba rejestrować średnicę i konstrukcję pułapki, czas działania, rozmieszczenie, stan zachowania próby i warunki siedliskowe. Brak części tych informacji może uniemożliwić późniejsze połączenie danych. Brown i Matthews podkreślili ten problem w przeglądzie metod: duży zbiór wyników nie usuwa automatycznie różnic w sposobie ich uzyskania. Standaryzacja ma zatem znaczenie już w terenie, a nie dopiero podczas analizy statystycznej. [180]
Pułapka Malaise’a przechwytuje głównie aktywnie latające owady. W wielu próbach dominują muchówki i błonkówki, lecz skład zależy od konstrukcji, ustawienia, otaczającej roślinności i zachowania poszczególnych gatunków. Umieszczenie podobnego urządzenia przy gruncie oraz w koronach drzew może ujawnić odmienne zespoły. Są to użyteczne dane o wybranej części fauny, a nie bezpośredni spis wszystkich stawonogów żyjących na danej powierzchni. Interpretację należy wiązać z faktycznym zakresem działania urządzenia. [181]
Próby gleby i dna zbiorników
Drobne zwierzęta ściółki można oddzielać od podłoża w aparacie Berlesego–Tullgrena. Próbka jest stopniowo ogrzewana i wysuszana od góry, a przemieszczające się bezkręgowce trafiają do pojemnika poniżej. Metoda wykorzystuje reakcję organizmów na zmianę warunków, więc nie jest tym samym co bezpośrednie policzenie wszystkich zwierząt w nieprzetworzonej próbce. Wynik należy wiązać z pobraną objętością lub powierzchnią materiału oraz procedurą ekstrakcji. Zachowanie dokumentacji pozwala później odróżnić zmianę badanego zespołu od zmiany warunków uzyskiwania próby. [183]
W wodach płynących stosuje się między innymi pobieranie organizmów z dna do siatki umieszczonej zgodnie z kierunkiem przepływu. Protokoły EPA rozróżniają podejście ukierunkowane na określony typ siedliska i procedury uwzględniające ich większą różnorodność. Dobór metody powinien wynikać z naturalnej charakterystyki badanego systemu oraz celu porównania. Ważne są wielkość oczek, obszar pobrania, rozmieszczenie podprób i opis podłoża. Zmiana tych parametrów może zmienić zestaw zatrzymanych organizmów, zanim jeszcze rozpocznie się ich identyfikacja. [184]
| Metoda | Co przede wszystkim obejmuje | Ważny parametr porównania | Główne ograniczenie |
|---|---|---|---|
| Pułapki gruntowe | Faunę aktywną na powierzchni | Czas pracy i konstrukcja | Odłów zależy także od ruchliwości [180, 182] |
| Pułapki Malaise’a | Wybrane owady latające | Położenie i orientacja | Różne grupy mają różną wykrywalność [181] |
| Ekstrakcja ściółki | Drobne bezkręgowce próbki | Wielkość próby i przebieg ekstrakcji | Wykorzystuje reakcję na ogrzewanie i suszenie [183] |
| Siatka do prób dennych | Organizmy danego odcinka dna | Siedlisko, oczka i wysiłek pobierania | Nie obejmuje jednakowo całego zbiornika [184] |
Identyfikacja morfologiczna i kod DNA
Oznaczenie morfologiczne polega na porównaniu cech z wiarygodnymi diagnozami i kluczami. Kodowanie DNA, czyli barcoding, wykorzystuje odpowiedni fragment sekwencji i porównanie z materiałem referencyjnym. Klasyczna praca Heberta i współautorów z 2003 r. badała przydatność fragmentu mitochondrialnego genu COI do identyfikacji zwierząt. Taki zapis pomaga łączyć osobniki o odmiennym wyglądzie lub stadia, których oznaczanie morfologiczne jest trudne, o ile istnieje właściwe odniesienie w bazie. [185]
Należy jednak odróżnić rozpoznanie materiału należącego do opisanego gatunku od wyznaczenia granic gatunku nowego. Taksonomia integratywna, opisana programowo przez Dayrata, zestawia informacje morfologiczne, genetyczne, ekologiczne, geograficzne i rozwojowe. Rozbieżność sekwencji jest przesłanką do badania, lecz sama etykieta nadana grupie podobnych odczytów nie zastępuje diagnozy taksonomicznej. Warto pytać, czy różnice są powtarzalne, jak układają się między populacjami i czy zgadzają się z innymi danymi. [186]
Materiał referencyjny pozostaje ważny także przy nowoczesnych analizach molekularnych. Program NEON łączy oznaczanie biegaczowatych, kontrolę części identyfikacji przez ekspertów, zachowywanie okazów i kodowanie DNA wybranych osobników. Dzięki temu można wrócić do konkretnego zwierzęcia, sprawdzić nazwę oraz powiązać sekwencję z miejscem i datą zbioru. Dobrze opisany okaz jest punktem odniesienia pozwalającym korygować wcześniejsze oznaczenia; anonimowa sekwencja bez dokumentacji ma mniejszą wartość weryfikacyjną. [187]
Metabarcoding i DNA środowiskowe
Metabarcoding pozwala analizować wiele taksonów w jednej mieszaninie materiału genetycznego. Mieszanina może pochodzić ze zbiorczej próby organizmów albo z DNA środowiskowego. Pojęcia te odnoszą się do różnych elementów postępowania: eDNA opisuje pochodzenie materiału, a metabarcoding sposób identyfikowania wielu składników. W badaniach stawonogów ważnym ograniczeniem pozostaje różna skuteczność namnażania fragmentów DNA z poszczególnych taksonów oraz niejednakowa ilość materiału wnoszona przez organizmy o różnej wielkości. [188]
Elbrecht i Leese w doświadczeniu z makrobezkręgowcami słodkowodnymi wykazali, że podobna biomasa różnych taksonów nie musi dawać podobnej liczby odczytów sekwencjonowania. Wyniku nie można więc automatycznie przeliczyć na liczbę osobników. Dużo odczytów może oznaczać między innymi skuteczniejszą amplifikację albo większą ilość tkanki. Jest to ograniczenie interpretacji określonej procedury, a nie dowód bezużyteczności metod molekularnych. Ocena obecności taksonów, ilości materiału genetycznego i rzeczywistego zagęszczenia wymaga odrębnej walidacji. [188]
DNA w próbce wody ma również wymiar przestrzenny. Deiner i współautorzy wykazali w badaniu zlewni, że rzeka przenosi materiał genetyczny pochodzący z różnych części krajobrazu, w tym ze środowisk lądowych. Odczyt DNA owada w wodzie może więc wnosić informację o otoczeniu rzeki, lecz nie dowodzi, że żywy osobnik znajdował się dokładnie w miejscu pobrania próbki. Przepływ staje się zarazem zaletą i źródłem trudności: scala informacje z większego obszaru, a jednocześnie osłabia precyzję lokalizacji pojedynczego organizmu. [189]
Dokumentacja umożliwiająca ponowną ocenę
Profesjonalny wynik badania powinien umożliwiać odtworzenie drogi od stanowiska do wniosku. Potrzebne są nazwa metody, jednostka wysiłku, daty, zasięg przestrzenny, poziom identyfikacji, sposób kontroli oznaczeń i informacja o brakujących danych. Tak zbudowany zapis pozostaje użyteczny również wtedy, gdy w przyszłości zmienią się nazwy gatunków lub pojawią dokładniejsze narzędzia. Archiwizacja okazów i danych pozwala rozszerzyć analizę bez udawania, że pierwotna metoda wykrywała wszystko. [180, 187]
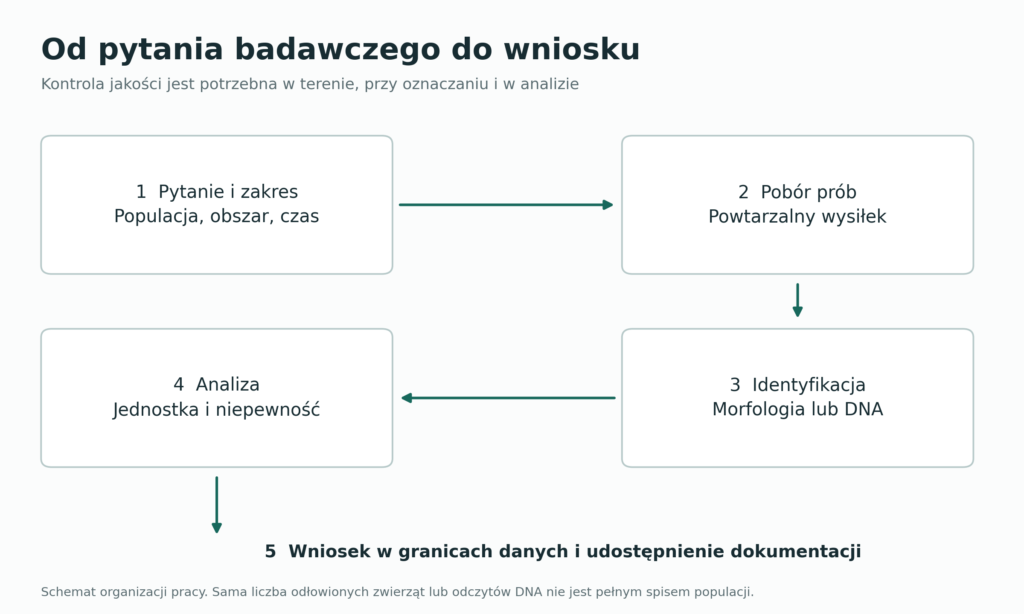
Rozdział 29Jak oceniać siłę dowodów
Od pytania badawczego do porównania
Wiarygodność wyniku zaczyna się od zgodności pomiędzy pytaniem a sposobem zbierania danych. Spis gatunków w rezerwacie, pomiar masy owadów w pułapce i eksperyment nad rozwojem kolonii trzmiela opisują inne fragmenty przyrody. Dopiero wyraźne określenie badanego zbioru pozwala ustalić, do jakich organizmów i miejsc odnosi się wniosek. W literaturze o spadkach owadów szczególne znaczenie mają dobór stanowisk, wykrywalność, długość monitoringu i przesunięcia sezonowej aktywności. Słabość jednego z tych elementów może ograniczać interpretację nawet bardzo dużej liczby rekordów. [190]
Profesjonalna lektura zaczyna się zatem od metod, a nie od najbardziej efektownego procentu w streszczeniu. Trzeba sprawdzić, czy badacze wracali do tych samych miejsc, czy odłowy trwały jednakowo długo i czy obserwowali porównywalne stadia rozwojowe. Jeżeli okres aktywności owadów przesuwa się względem kalendarza, stała data kontroli nie zawsze oznacza stały fragment cyklu biologicznego. Ma to szczególne znaczenie przy krótkich badaniach sezonowych. [190]
Równa liczba prób nie gwarantuje równej wiedzy
Dwa zbiory po tyle samo osobników mogą przedstawiać różnorodność z odmienną kompletnością. W ubogim zespole taka próba może objąć większość często spotykanych gatunków, podczas gdy w bardzo bogatym nadal będzie pomijała wiele rzadkich. Chao i Jost zaproponowali porównywanie bogactwa przy podobnej kompletności prób, zamiast ograniczania się do identycznej liczby zebranych osobników. W tym celu łączy się rarefakcję, czyli statystyczne sprowadzanie większej próby do mniejszego wysiłku, z ostrożną ekstrapolacją. [191]
Ważne jest także znaczenie samej kompletności. W tym podejściu opisuje ona część całkowitej liczebności zespołu reprezentowaną przez wykryte gatunki; nie jest prostym odsetkiem wszystkich jego gatunków. Zespół może mieć wysoki udział rozpoznanych osobników i jednocześnie wiele niewykrytych gatunków bardzo rzadkich. Dlatego formalna metoda porównania nie znosi potrzeby sprawdzenia, jakie organizmy dana technika odłowu w ogóle obejmuje. [191]
Niewykrycie i rzeczywista nieobecność
Brak stwierdzenia gatunku jest najpierw wynikiem konkretnej kontroli. Zwierzę mogło być nieaktywne, ukryte, zbyt nieliczne albo znajdować się poza zasięgiem użytej metody. Modele zajęcia stanowisk rozdzielają prawdopodobieństwo występowania od prawdopodobieństwa wykrycia. Podstawowa koncepcja została formalnie przedstawiona przez MacKenziego i współautorów i ma zastosowanie znacznie szersze niż grupa zwierząt wykorzystana w ich przykładzie. [192]
W praktyce powtórzone kontrole pozwalają wykorzystać historię wykryć i niewykryć, zamiast uznawać każde zero za dowód lokalnego zaniku. Wymaga to jednak projektu zgodnego z założeniami modelu, w tym odpowiedniego wyznaczenia okresu, w którym status stanowiska jest traktowany jako stały. Nie można naprawić dowolnie zebranej dokumentacji samą nazwą zaawansowanej metody. Dla czytelnika kompendium najważniejszy jest prosty wniosek: mapa obserwacji i mapa rzeczywistego występowania nie muszą być tożsame. [192]
Stała liczba gatunków może ukrywać przebudowę zespołu
Bogactwo gatunkowe informuje o długości listy, a skład gatunkowy o jej zawartości. Dornelas i współautorzy wykazali w analizie szeregów czasowych zespołów organizmów, że brak jednokierunkowego spadku lokalnego bogactwa może współwystępować z systematyczną zmianą składu. Wynik obejmował różne grupy organizmów; nie był globalnym spisem stawonogów. Jego znaczenie metodologiczne polega na pokazaniu, że te dwa aspekty różnorodności należy mierzyć osobno. [193]
Można to zobaczyć w czysto rachunkowym przykładzie: jeśli z lokalnej listy ubywają dwa gatunki, a pojawiają się dwa inne, bogactwo pozostaje niezmienione. Nie wynika z tego jednak zachowanie dawnych relacji pokarmowych ani identycznej wartości ochronnej siedliska. To ilustracja logiczna, a nie dane terenowe. W ocenie stawonogów warto więc odnotowywać również tożsamość przybywających i zanikających gatunków oraz cechy ich biologii. [193]
Punkt odniesienia i pamięć krajobrazu
Początek szeregu pomiarowego nie musi odpowiadać stanowi przed przekształceniem siedliska. Wieloletni monitoring rozpoczynany na już osuszonym torfowisku lub w uproszczonym krajobrazie rolniczym opisuje zmiany względem takiego właśnie stanu. Soga i Gaston omawiają zjawisko przesuwających się punktów odniesienia: kolejne pokolenia mogą uznawać przyrodę poznaną we własnej młodości za zwyczajny poziom różnorodności, choć wcześniej była ona odmienna. [194]
Wspomnienia, kolekcje muzealne i dawne opracowania mogą pomagać w rekonstrukcji historii, lecz nie mają automatycznie tej samej wartości pomiarowej co powtarzalne badanie terenowe. Wybór punktu odniesienia powinien być jawny. Cel ochrony, taki jak odtworzenie określonego siedliska, jest dodatkowo decyzją o pożądanym stanie, a nie prostym odczytem pojedynczego wykresu. [194]
Długość obserwacji także ma znaczenie. Silne wahania między latami utrudniają odróżnienie kierunkowej zmiany od krótkiego epizodu. Analiza White'a pokazuje, dlaczego wymagana długość monitoringu zależy od właściwości populacji oraz oczekiwanej siły trendu. Ponieważ analizowane przykłady dotyczyły kręgowców, nie przenosimy ich liczbowego progu na stawonogi. Zachowujemy wniosek projektowy: czas badania i jego zdolność wykrycia zmiany trzeba oceniać dla konkretnego układu. [195]
Co naprawdę oznacza niepewność
Odchylenie standardowe opisuje rozrzut obserwacji, natomiast błąd standardowy dotyczy precyzji oszacowania, na przykład średniej. Mały błąd standardowy może współistnieć z dużym zróżnicowaniem osobników lub stanowisk. Zwiększanie liczby właściwie dobranych obserwacji zwykle poprawia precyzję średniej, ale samo w sobie nie usuwa systematycznego pomijania siedlisk. Symbol „±” wymaga zatem objaśnienia. Bez niego czytelnik nie wie, czy ogląda zmienność biologiczną, czy niepewność estymacji. [196]
Przedział ufności również ma znaczenie wynikające z metody jego wyznaczenia i założeń analizy. Nie należy automatycznie interpretować go jako przedziału obejmującego określony procent wszystkich osobników. Wysoka wartość p nie dowodzi braku biologicznego efektu, a niska nie przesądza o jego dużym znaczeniu. Ocena powinna łączyć wielkość oszacowanej zmiany, zakres niepewności, jakość projektu i zgodność różnych linii dowodowych. [197]
Praktyczne pytanie brzmi: czy dane pozwalają rozróżnić zmiany ważne biologicznie? Gdy przedział obejmuje zarówno niewielki wzrost, jak i duży spadek, samo określenie wyniku jako „nieistotnego” ukrywa zasadniczy brak precyzji. Jednocześnie bardzo duża próba może wykrywać niewielkie różnice. Z tego powodu tabelom i wykresom powinno towarzyszyć wyjaśnienie znaczenia efektu dla badanego procesu, a nie tylko oznaczenie poziomu istotności. [197]
Jak czytać wynik badania
| Element wyniku | Pytanie kontrolne | Co zapisać | Typowa pułapka |
|---|---|---|---|
| Badana grupa | Jakie taksony i stadia uwzględniono? | Nazwa grupy i zakres oznaczeń | Uogólnienie z motyli na wszystkie stawonogi |
| Miara | Gatunki, osobniki, masa czy zajęte stanowiska? | Jednostka i definicja wskaźnika | Zamiana spadku biomasy na wymieranie gatunków |
| Przestrzeń | Gdzie zbierano dane? | Region i sposób doboru stanowisk | Przedstawienie kilku lokalizacji jako całego świata |
| Czas | Kiedy wykonano pomiary? | Okres obserwacji oraz rok publikacji | Uznanie daty wydania za datę końca badania |
| Wysiłek | Czy próby są porównywalne? | Czas odłowu, liczba kontroli, kompletność | Więcej rekordów uznane za wzrost populacji |
| Model | Co jest pomiarem, a co oszacowaniem? | Założenia i sposób agregacji | Traktowanie ekstrapolacji jak pełnego spisu |
| Niepewność | Co oznaczają kreski lub „±”? | SEM, przedział ufności albo inny zakres | Nazywanie każdego zakresu przedziałem ufności |
| Status źródła | Czy opublikowano korektę lub ostrzeżenie? | Wersja publikacji i komunikaty redakcji | Cytowanie liczby bez późniejszych zastrzeżeń |
Tabela stanowi redakcyjną syntezę zasad odczytywania wyników, a nie dodatkowy zbiór danych o populacjach. Oddziela opis próby od interpretacji oraz identyfikuje informacje, które powinny towarzyszyć liczbie także po jej przeniesieniu do artykułu popularnonaukowego. [190, 191, 196, 197]
Rozdział 30Rozpoznawanie i dokumentowanie obserwacji
Rozpoznawanie zaczyna się od ustalenia, co rzeczywiście widać. Należy odróżnić nogi kroczne od czułków, nogogłaszczków i przydatków aparatu gębowego. Przydatki mogą być małe, schowane pod ciałem albo przekształcone. Dlatego fotografia z góry bywa niewystarczająca, a uszkodzony osobnik może nie mieć pełnego zestawu nóg. Oznaczenie powinno wynikać z połączenia kilku cech: podziału ciała, miejsca osadzenia przydatków, ich liczby oraz stadium rozwoju. [20, 24]
Drugim krokiem jest określenie dokładności, na którą pozwalają dane. Rozpoznanie pająka jako pająka jest innym zadaniem niż odróżnienie dwóch blisko spokrewnionych gatunków. Tylko część gatunków można pewnie identyfikować na podstawie wyraźnego wzoru barwnego. Jeśli klucz wymaga cechy niewidocznej na zdjęciu, nie należy jej domniemywać. Informacja „pająk z rodziny krzyżakowatych” może być bardziej wartościowa niż błędna, lecz pozornie precyzyjna nazwa gatunkowa.
Zdjęcie dokumentacyjne powinno zachowywać cechy, na których oparto oznaczenie. Przydatne są różne ujęcia, orientacyjna skala oraz notatka o siedlisku. Rozmiar oceniony bez punktu odniesienia łatwo przecenić, szczególnie na fotografii makro. W opisie warto rozdzielić wielkość samego ciała od rozpiętości nóg czy skrzydeł. Są to różne wymiary i nie powinny występować w jednej tabeli pod wspólną nazwą „długość”.
Podobne zasady dotyczą wylinek i śladów żerowania. Wylinka może zachować przydatne cechy, ale nie jest nowym osobnikiem w obserwowanej populacji. Ślad na liściu świadczy o pewnym zdarzeniu, nie zawsze o jednym łatwym do rozpoznania sprawcy. Jeżeli możliwych wyjaśnień jest kilka, warto je zapisać jako hipotezy. Tak prowadzona dokumentacja oddziela to, co zaobserwowano, od interpretacji.
Najprostszy schemat pracy obejmuje opis cech, wstępne przyporządkowanie do grupy, sprawdzenie w odpowiednim kluczu i zapis stopnia pewności. Nie trzeba znać nazwy każdego organizmu, aby wykonać użyteczną obserwację. Ważniejsze jest, by późniejszy czytelnik mógł ustalić, skąd wziął się wniosek, a w razie potrzeby go skorygować.
Karta dokumentacji terenowej
Poniższa karta jest autorskim schematem zapisu obserwacji, wykorzystującym logikę standardu Darwin Core. Jeden identyfikator łączy notatkę, fotografie i weryfikację oznaczenia. Nazwę organizmu należy oddzielać od stopnia pewności: zapis do rodzaju lub rodziny pozostaje wartościowy. Lokalizacja powinna obejmować niepewność położenia; wiele cyfr współrzędnych nie usuwa błędu pomiaru. [198]
| Pole karty | Co wpisać | Znaczenie |
|---|---|---|
| Identyfikator | Stały kod obserwacji | Powiązanie plików |
| Data i obserwator | Data, godziny, autor | Odtworzenie zdarzenia |
| Lokalizacja | Miejsce, współrzędne, niepewność | Poprawna interpretacja przestrzenna |
| Oznaczenie | Nazwa, pewność, weryfikator | Oddzielenie obserwacji od hipotezy |
| Stadium i liczba | Dorosły, larwa, wylinka; sposób liczenia | Ustalenie przedmiotu pomiaru |
| Zachowanie | Przelot, żerowanie, składanie jaj | Opis faktycznie widzianej czynności |
| Siedlisko | Podłoże, roślinność, woda, ekspozycja | Kontekst biologiczny |
| Wysiłek obserwacji | Czas, odcinek, liczba osób | Porównanie wizyt |
| Materiał dowodowy | Nazwy oryginalnych zdjęć | Możliwość kontroli oznaczenia |
| Uwagi i braki | Czego nie sprawdzono | Granice interpretacji |
Pola identyfikacyjne, przestrzenne i dotyczące organizmu odpowiadają rodzajom informacji rozróżnianym w Darwin Core; tabela jest uproszczonym narzędziem terenowym. Zapisy dotyczące larwy, wylinki i dorosłego powinny pozostać rozróżnialne również w arkuszu. [198]
Przed wyjściem warto określić pytanie i granice kontroli: na przykład dokumentowanie widocznych owadów na wybranym odcinku brzegu. Następne wizyty powinny zachowywać opis metody oraz jej rzeczywistego zakresu. Wytyczne GBIF podkreślają znaczenie wysiłku obserwacyjnego, zakresu taksonomicznego i przestrzennego. W karcie zapisuje się więc także przerwaną kontrolę lub niedostępny fragment terenu. Wyniku „nie stwierdzono” nie wolno połączyć z domyślnym założeniem, że przeprowadzono pełną inwentaryzację wszystkich stadiów i gatunków. Oddzielny wpis dla wizyty bez stwierdzenia gatunku zachowuje informację o wykonanej kontroli. [199]
Kartę można wypełniać na podstawie obserwacji i fotografii bez chwytania organizmów, rozkopywania pniaków ani otwierania gniazd. Jeżeli charakter materiału nie pozwala zweryfikować oznaczenia, pozostawia się je nierozstrzygnięte. Opis miejsca znalezienia dorosłego warto oddzielić od potwierdzenia miejsca rozwoju: badania jelonka pokazały, że ustalenie tej drugiej funkcji wymaga osobnego postępowania badawczego. Szczegółowa notatka o tym, co rzeczywiście widziano, jest lepszą podstawą dalszej pracy niż stanowcza diagnoza dopisana do niepełnego zdjęcia. [145]
Rozdział 31Zakres pewności i dalsze pytania
Najlepiej poznane cechy wspólne, takie jak organizacja oskórka i przydatków, pozwalają wiarygodnie opisywać stawonogi jako grupę. Otwarte pytania częściej dotyczą szczegółów: relacji między określonymi liniami, rzeczywistej liczby gatunków, mechanizmów złożonych zachowań i przestrzennego zróżnicowania trendów. Dobra synteza rozdziela te poziomy. Spór o położenie jednej gałęzi na drzewie nie oznacza, że wszystkie podstawy systematyki są równie niepewne. [1, 8, 9]
Nadal trzeba rozdzielać skutki jednoczesnych presji i sprawdzać, które interwencje pomagają określonym grupom w danym krajobrazie. [108, 168, 169]
Wreszcie źródła naukowe mają własną historię. Nowe dane mogą zawęzić przedział oszacowania, rewizja taksonomiczna może zmienić nazwę, a korekta lub ostrzeżenie redakcyjne może wymagać ponownej oceny głośnego wyniku. Oznaczanie dat i odsyłanie do konkretnych publikacji umożliwia taką aktualizację. Dalsze poznawanie stawonogów zależy zarówno od odkrywania nowych organizmów, jak i od rzetelnego ponownego sprawdzania informacji już uznanych za dobrze znane.
Rozdział 32Najczęstsze pytania
Czy każdy stawonóg jest owadem
Nie. Owady stanowią jedną z linii stawonogów. Pająki i kleszcze należą do szczękoczułkowców, a pareczniki i dwuparce do wijów. Z kolei sześcionogi obejmują również grupy nienależące do owadów w ścisłym ujęciu, takie jak skoczogonki. Liczba sześciu nóg nie jest więc samodzielnym, bezwyjątkowym testem. [1, 7]
Czy pająki mają czułki
Pająki nie mają czułków. Przy przedniej części ciała znajdują się szczękoczułki i nogogłaszczki, które mogą zostać z nimi pomylone. Cztery pary nóg krocznych są osadzone na głowotułowiu. Rozpoznawanie przydatków według miejsca i funkcji jest pewniejsze niż ocenianie ich wyłącznie po długości. [24]
Czy kleszcz z sześcioma nogami przestaje być pajęczakiem
Nie. Larwa kleszcza pospolitego ma trzy pary nóg, a nimfa i postać dorosła cztery. Ten przykład pokazuje znaczenie stadium rozwojowego. Przynależność systematyczna nie zmienia się wraz z przejściem larwy w nimfę. [79]
Czy gąsienica przeczy regule sześciu nóg owada
Nie. Oprócz nóg tułowiowych gąsienica może mieć odwłokowe posuwki o innej budowie. Nie należy dodawać ich do nóg tułowiowych i na tej podstawie wyłączać gąsienicy z owadów. Larwalne przekształcenia ciała wymagają osobnego zestawu cech diagnostycznych. [6, 25]
Czy linienie i przeobrażenie oznaczają to samo
Linienie jest wymianą oskórka. Przeobrażenie opisuje zmianę organizacji ciała podczas rozwoju. Larwa może kilkakrotnie linieć, pozostając larwą. Poczwarka pojawia się wyłącznie w określonym typie rozwoju owadów, a nie przy każdej wymianie oskórka. [28, 47]
Czy wszystkie stawonogi mają jednakową hemolimfę
Nie. Skład i znaczenie barwników oddechowych różnią się między grupami. U wielu stawonogów występuje hemocyjanina, lecz nie jest ona uniwersalnym składnikiem wszystkich gatunków. U owadów duże znaczenie ma bezpośrednie doprowadzanie tlenu przez tchawki. Hasło o „niebieskiej krwi wszystkich stawonogów” jest zatem błędne. [31, 33]
Czy poczwarka jest martwa
Nie. To żywe stadium rozwojowe. W jego trakcie zachodzi przebudowa tkanek i rozwój struktur postaci dorosłej. Ograniczona widoczna ruchliwość nie oznacza ustania metabolizmu ani braku procesów rozwojowych. [47]
Czy każda wizyta owada na kwiecie oznacza zapylenie
Nie musi. Skuteczność zależy między innymi od przeniesienia odpowiedniego pyłku i kontaktu z właściwymi częściami kwiatu. Liczba odwiedzin jest użyteczną obserwacją, ale nie jest tożsama z liczbą zapłodnionych zalążków ani z uzyskanym plonem. [106]
Czy spadek biomasy oznacza taki sam spadek liczby gatunków
Nie. Biomasa jest masą organizmów, a bogactwo gatunkowe liczbą gatunków. Zespół może zmienić proporcje osobników dużych i małych, co zmienia masę bez identycznej zmiany liczebności. Dlatego monitoring powinien zachowywać nazwy mierzonych wielkości. [161, 162]
Czy każda stonoga ma sto nóg
Nie. Nazwy potoczne nie są instrukcją liczenia przydatków. „Stonogą” nazywa się różne zwierzęta, a liczba nóg może zależeć od grupy, gatunku i etapu rozwoju. U dwuparców typowe są dwie pary na większości diplosegmentów; przednie odcinki ciała odbiegają od tej reguły. [21, 22]
Dalej w atlasieGatunki i tematy z tego opracowania
Hasła gatunków omawianych w kompendium, z wymiarami, występowaniem i mapą.
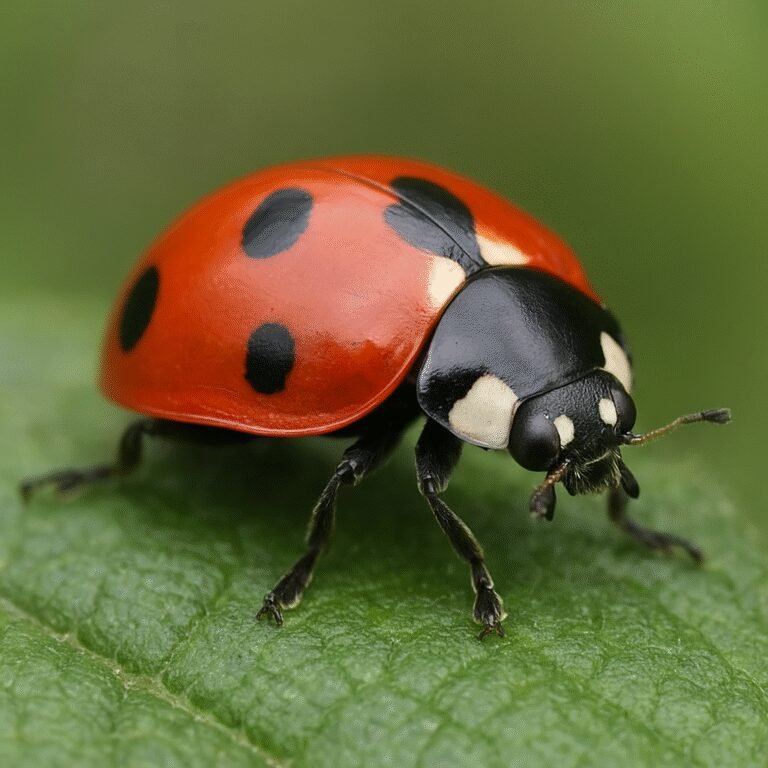
Biedronka siedmiokropka
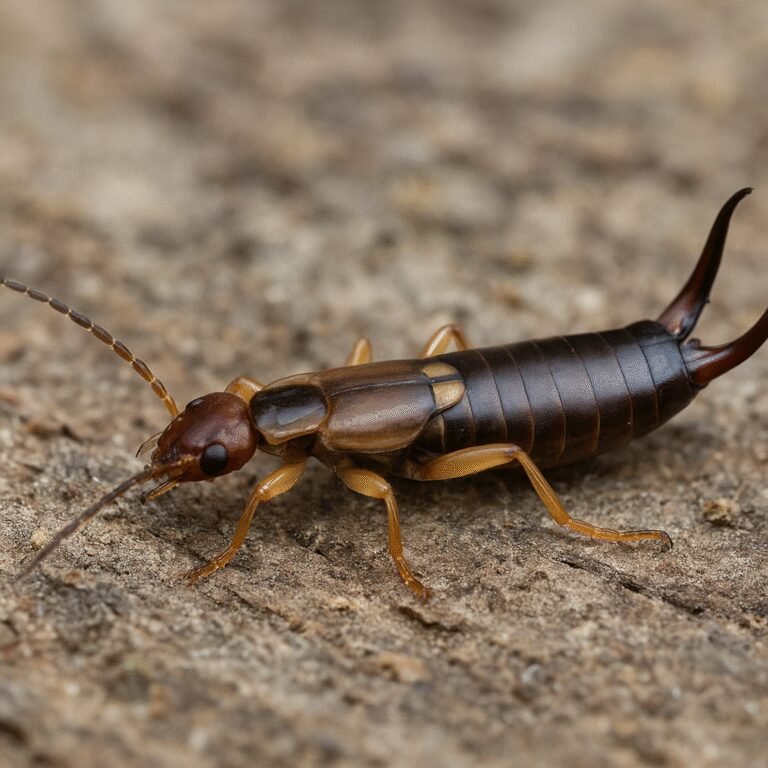
Skorek pospolity
Forficula auricularia
Mucha domowa
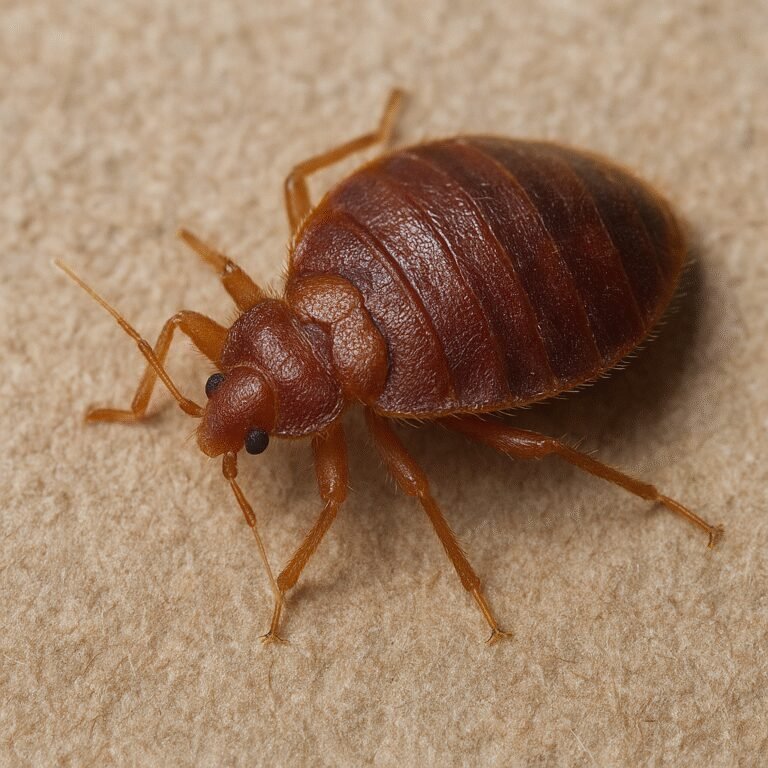
Pluskwa domowa
Cimex lectularius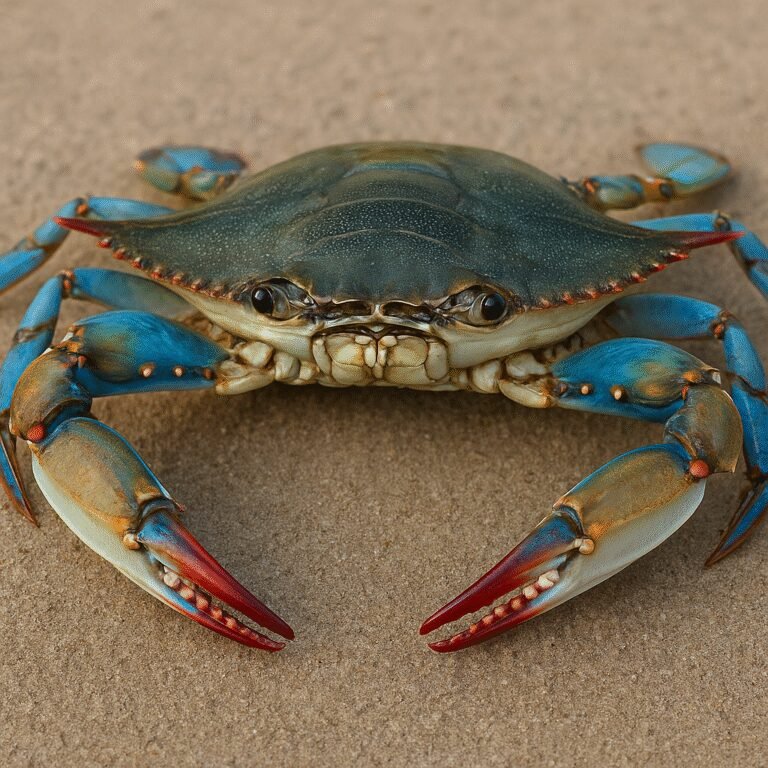
Krab błękitny
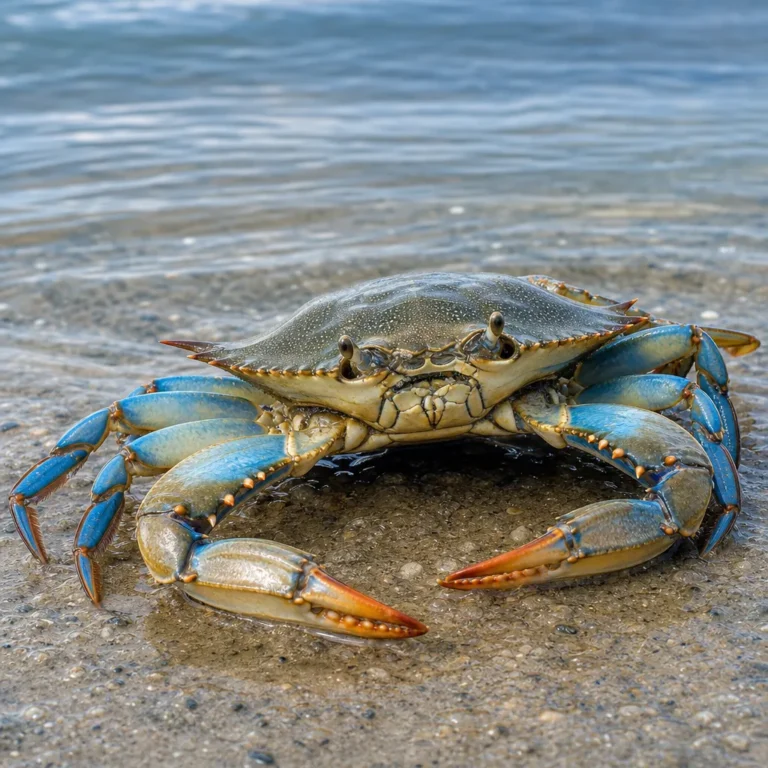
Krab błękitny
Callinectes sapidus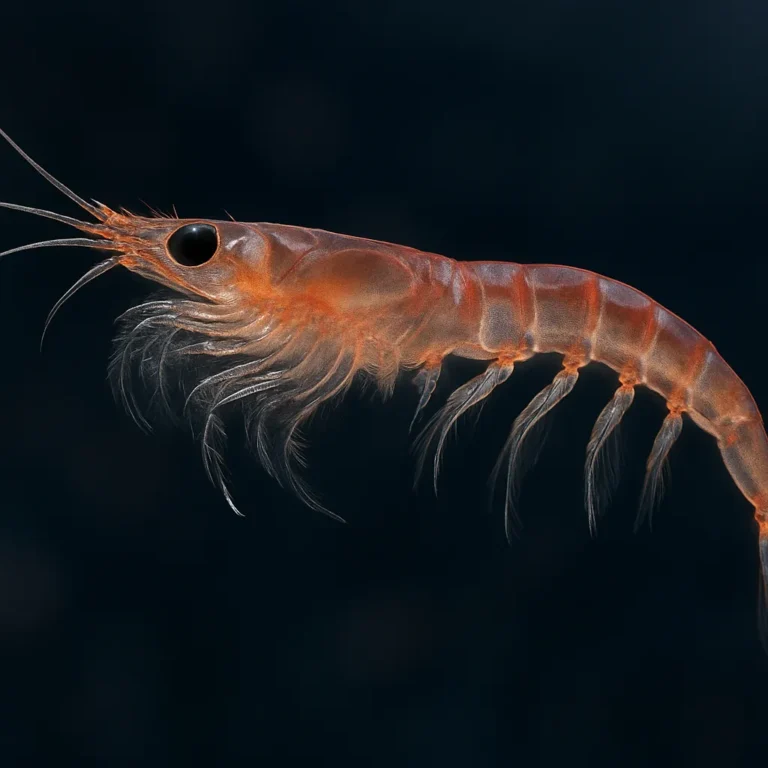
Krill japoński – Euphausia pacifica (najczęściej odn.)
Euphausia superba
Pszczoła miodna
Apis melliferaPrzeglądaj dalej
- Wszystkie hasła: stawonogi
- Stawonogi występujące w Polsce
- Quiz: stawonogi
- Oś czasu: dinozaury i zwierzęta wymarłe
- Porównaj dwa gatunki
Inne kompendia
Rozdział 33Słownik pojęć
Anamorfoza — rozwój po wykluciu obejmujący przybywanie segmentów ciała; jego przebieg zależy od linii ewolucyjnej. [84]
Apoliza — oddzielenie starego oskórka od naskórka, poprzedzające jego zrzucenie.
BACI — schemat porównywania zmian przed oddziaływaniem i po nim w obiektach poddanych działaniu oraz kontrolnych. [175]
Barcoding DNA — identyfikacja materiału przy użyciu wybranego fragmentu sekwencji i odpowiednich danych referencyjnych. [185]
Bentos — organizmy związane z dnem zbiornika lub cieku, w odróżnieniu od planktonu zajmującego toń. [93]
Bioindykacja — wnioskowanie o warunkach środowiska na podstawie organizmów lub ich zespołów, z uwzględnieniem odpowiedniego punktu odniesienia.
Biomasa — masa organizmów w określonym zbiorze; wymaga wskazania, czy chodzi o masę świeżą, suchą czy zawartość węgla.
Bogactwo gatunkowe — liczba gatunków stwierdzonych lub oszacowanych dla określonego obszaru albo zbioru.
Chelicerata — szczękoczułkowce, linia stawonogów obejmująca między innymi pająki, skorpiony, roztocze, ostrogony i kikutnice.
Chityna — polisacharyd będący ważnym składnikiem oskórka stawonogów; tworzy materiał z innymi składnikami, zwłaszcza białkami.
COI — mitochondrialny gen kodujący podjednostkę I oksydazy cytochromu c; jego fragment jest stosowany w kodowaniu DNA zwierząt. [185]
Detrytus — martwa, często rozdrobniona materia organiczna uczestnicząca w obiegu substancji w ekosystemie.
Diapauza — regulowany okres zahamowania określonych procesów rozwojowych lub rozrodczych, związany z cyklem życia i warunkami sezonowymi.
Diplosegment — charakterystyczna jednostka tułowia dwuparców związana z dwiema parami odnóży; nie wszystkie odcinki ciała mają taką budowę.
DNA środowiskowe — materiał genetyczny pozyskany z próbki środowiska; jego wykrycie wymaga uwzględnienia transportu i miejsca pochodzenia. Skrót: eDNA. [189]
Ekdyza — zrzucenie starego oskórka, czyli widoczna faza linienia.
Ekstrapolacja — oszacowanie wartości poza zakresem bezpośrednich pomiarów, na podstawie przyjętego modelu i założeń.
Endosymbiont — organizm żyjący wewnątrz innego organizmu; bakterie wewnątrzkomórkowe są szczególnym przykładem tej relacji. [119, 121]
Epikutykula — zewnętrzna warstwa oskórka, o właściwościach odmiennych od grubszej prokutykuli.
Fenologia — opis terminów i sezonowego przebiegu zjawisk biologicznych, takich jak pojawianie się postaci dorosłych.
Foreza — wykorzystywanie innego zwierzęcia do transportu; samo przemieszczanie się w ten sposób nie oznacza pasożytnictwa. [73]
Gatunki kryptyczne — odrębne gatunki, których rozróżnienie na podstawie zewnętrznego podobieństwa może być trudne.
Hemocel — główna przestrzeń ciała, w której krąży hemolimfa otaczająca narządy.
Hemolimfa — płyn układu krążenia stawonogów, uczestniczący w transporcie substancji i innych funkcjach fizjologicznych.
Hiperregulacja osmotyczna — utrzymywanie płynów ciała o wyższym stężeniu osmotycznym niż otaczające środowisko. [101]
Holometabolia — przeobrażenie zupełne owadów, obejmujące stadium poczwarki.
Imago — dorosła postać owada.
Klad — wspólny przodek i wszyscy jego potomkowie, czyli grupa monofiletyczna.
Kompletność próby — w omawianym podejściu udział osobników całego zespołu należących do gatunków reprezentowanych w próbie; nie jest odsetkiem wszystkich gatunków zespołu wykrytych w próbie. [191]
Larwa cyprydalna — wyspecjalizowane stadium w rozwoju omawianych wąsonogów, związane z wyszukiwaniem miejsca osiedlenia. [94]
Liczebność — liczba osobników, której interpretacja wymaga określenia obszaru, próbki lub populacji.
Mandibulata — żuwaczkowce, linia obejmująca wije i Pancrustacea.
Metabarcoding — identyfikowanie wielu taksonów w mieszaninie materiału genetycznego przy użyciu odpowiednich markerów DNA. [188]
Mutualizm — relacja między organizmami przynosząca korzyści obu stronom; wymaga określenia rodzaju korzyści i warunków. [121, 122]
Nimfa — stadium młodociane w określonych cyklach rozwojowych; u owadów termin jest szczególnie związany z przeobrażeniem niezupełnym.
Ommatidium — jednostka optyczna oka złożonego.
Osmoregulacja — regulowanie bilansu wody i substancji osmotycznie czynnych między organizmem a środowiskiem. [101]
Pancrustacea — klad obejmujący tradycyjne skorupiaki oraz sześcionogi.
Parafiletyczność — sytuacja, w której wyróżniona grupa obejmuje wspólnego przodka, lecz pomija część jego potomków.
Parazytoid — organizm, którego stadium młodociane rozwija się kosztem gospodarza i ostatecznie prowadzi do jego śmierci.
Partenogeneza — rozwój potomstwa z niezapłodnionych komórek jajowych; jej rola w cyklu zależy od gatunku.
Plastron — utrzymywana przy powierzchni ciała warstwa gazu, która może uczestniczyć w pobieraniu tlenu rozpuszczonego w wodzie. [102]
Prokutykula — grubsza część oskórka zawierająca kompleks chitynowo-białkowy.
Przetchlinka — otwór zapewniający połączenie układu tchawkowego ze środowiskiem.
Przezmianki — przekształcone tylne skrzydła muchówek, uczestniczące w kontroli i stabilizacji lotu. [58]
Pseudoreplikacja — traktowanie zależnych pomiarów jak niezależnych powtórzeń przy ocenie badanego oddziaływania. [176]
Rarefakcja — metoda statystycznego porównywania różnorodności po ujednoliceniu wielkości albo kompletności prób. [191]
SEM — błąd standardowy średniej, opisujący precyzję jej oszacowania; nie jest odchyleniem standardowym wszystkich obserwacji. [196]
Skład gatunkowy — tożsamość gatunków tworzących zespół, która może się zmieniać przy niezmienionej liczbie gatunków. [193]
Sklerotyzacja — procesy prowadzące do usztywnienia oskórka, związane zwłaszcza z przemianami jego składników białkowych.
Subimago — uskrzydlone stadium jętki poprzedzające linienie do imago. [64]
Tagma — większy odcinek ciała powstały przez funkcjonalne zróżnicowanie i połączenie segmentów.
Taksonomia integratywna — ustalanie tożsamości i granic taksonów przez łączenie różnych linii danych, m.in. morfologicznych, genetycznych i ekologicznych. [186]
Wektor — organizm uczestniczący w przenoszeniu czynnika zakaźnego między gospodarzami.
Definicje wiążą się z terminami objaśnionymi w odpowiednich rozdziałach; podstawy terminologiczne: [1, 26, 28, 30, 31, 38, 55, 109, 133].
Bibliografia i źródła
Numery w tekście, tabelach i podpisach rycin odsyłają do poniższych pozycji. Bibliografia obejmuje publikacje badawcze, przeglądy naukowe i materiały instytucjonalne. Data dostępu do materiałów internetowych: 13 listopada 2026 r. Starsze dane zachowują rok badania lub publikacji.
[1] Giribet G., Edgecombe G.D. (2019). The Phylogeny and Evolutionary History of Arthropods. Current Biology. DOI: 10.1016/j.cub.2019.04.057
[2] OpenStax. 28.6 Superphylum Ecdysozoa Arthropods. Biology 2e. https://openstax.org/books/biology-2e/pages/28-6-superphylum-ecdysozoa-arthropods Dostęp 13.11.2026.
[3] IPBES (2016). Summary for policymakers of the assessment report on pollinators, pollination and food production. IPBES. https://files.ipbes.net/ipbes-web-prod-public-files/downloads/pdf/ipbes_4_19_annex_ii_spm_pollination_en.pdf Dostęp 13.11.2026.
[4] Dainese M. i in. (2019). A global synthesis reveals biodiversity-mediated benefits for crop production. Science Advances 5, eaax0121. DOI: 10.1126/sciadv.aax0121
[5] FAO (2024). The State of World Fisheries and Aquaculture 2024. Blue Transformation in action. FAO, Rome. DOI: 10.4060/cd0683en Dostęp 13.11.2026.
[6] Britton D., Australian Museum (2019). Metamorphosis a remarkable change. Australian Museum. Rok aktualizacji strony. https://australian.museum/learn/animals/insects/metamorphosis-a-remarkable-change/ Dostęp 13.11.2026.
[7] Regier J.C. i in. (2010). Arthropod relationships revealed by phylogenomic analysis of nuclear protein-coding sequences. Nature 463, 1079–1083. DOI: 10.1038/nature08742
[8] Ballesteros J.A. i in. (2022). Comprehensive Species Sampling and Sophisticated Algorithmic Approaches Refute the Monophyly of Arachnida. Molecular Biology and Evolution 39(2), msac021. DOI: 10.1093/molbev/msac021
[9] Howard R.J. i in. (2020). Arachnid monophyly: Morphological, palaeontological and molecular support for a single terrestrialization within Chelicerata. Arthropod Structure & Development 59, 100997. DOI: 10.1016/j.asd.2020.100997
[10] Daley A.C., Antcliffe J.B., Drage H.B., Pates S. (2018). Early fossil record of Euarthropoda and the Cambrian Explosion. PNAS 115(21), 5323–5331. DOI: 10.1073/pnas.1719962115
[11] Budd G.E., Mann R.P. (2020). The dynamics of stem and crown groups. Science Advances 6(8), eaaz1626. DOI: 10.1126/sciadv.aaz1626
[12] Ortega-Hernández J. (2016). Making sense of ‘lower’ and ‘upper’ stem-group Euarthropoda, with comments on the strict use of the name Arthropoda von Siebold, 1848. Biological Reviews 91(1), 255–273. Publikacja online w 2014 r.; rok tomu 2016. DOI: 10.1111/brv.12168
[13] Corthésy N., Potin G.J.-M., Torchet A., Quintas I., Wu Y., Lynch S., Daley A.C., Saleh F. (2025). Decay experiments on shrimps provide insight into the fossilization potential of arthropod appendages. Open Palaeontology 2(1), 1–11. DOI: 10.26034/la.opal.2025.7073
[14] Scholtz G., Edgecombe G.D. (2006). The evolution of arthropod heads: reconciling morphological, developmental and palaeontological evidence. Development Genes and Evolution 216(7–8), 395–415. DOI: 10.1007/s00427-006-0085-4
[15] Pavlopoulos A., Kontarakis Z., Liubicich D.M., Serano J.M., Akam M., Patel N.H., Averof M. (2009). Probing the evolution of appendage specialization by Hox gene misexpression in an emerging model crustacean. PNAS 106(33), 13897–13902. DOI: 10.1073/pnas.0902804106
[16] Bruce H.S., Patel N.H. (2020). Knockout of crustacean leg patterning genes suggests that insect wings and body walls evolved from ancient leg segments. Nature Ecology & Evolution 4(12), 1703–1712. DOI: 10.1038/s41559-020-01349-0
[17] Linz D.M., Tomoyasu Y. (2018). Dual evolutionary origin of insect wings supported by an investigation of the abdominal wing serial homologs in Tribolium. PNAS 115(4), E658–E667. DOI: 10.1073/pnas.1711128115
[18] Saito K., Nomura S., Yamamoto S., Niiyama R., Okabe Y. (2017). Investigation of hindwing folding in ladybird beetles by artificial elytron transplantation and microcomputed tomography. PNAS 114(22), 5624–5628. Nazwisko Niiyama zgodnie ze sprostowaniem DOI 10.1073/pnas.1709196114. DOI: 10.1073/pnas.1620612114
[19] Manthey C., Metcalf C.J.E., Monaghan M.T., Steiner U.K., Rolff J. (2024). Rapid growth and the evolution of complete metamorphosis in insects. PNAS 121(38), e2402980121. DOI: 10.1073/pnas.2402980121
[20] Smithsonian National Museum of Natural History. Insect Zoo Audio Description Tour. Smithsonian National Museum of Natural History. https://naturalhistory.si.edu/visit/accessibility/audio-and-visual-description/insect-zoo-audio-description-tour Dostęp 13.11.2026.
[21] Missouri Department of Conservation. Millipedes. Missouri Department of Conservation. https://mdc.mo.gov/discover-nature/field-guide/millipedes Dostęp 13.11.2026.
[22] Dugon M.M., Black A., Arthur W. (2012). Variation and specialisation of the forcipular apparatus of centipedes (Arthropoda: Chilopoda): a comparative morphometric and microscopic investigation of an evolutionary novelty. Arthropod Structure & Development 41(3), 231–243. DOI: 10.1016/j.asd.2012.02.001
[23] Marek P.E. i in. (2021). The first true millipede—1306 legs long. Scientific Reports 11, 23126. DOI: 10.1038/s41598-021-02447-0
[24] Australian Museum (2018). Spider structure. Australian Museum. Rok aktualizacji strony. https://australian.museum/learn/animals/spiders/spider-structure/ Dostęp 13.11.2026.
[25] Cornell University. Insect Biology and Ecology A Primer. Cornell University. https://biocontrol.entomology.cornell.edu/bio.php Dostęp 13.11.2026.
[26] University of California, Riverside, Department of Entomology. W.E. CH. 4. University of California, Riverside. https://insects.ucr.edu/we-ch-4 Dostęp 13.11.2026.
[27] Merzendorfer H. (2012). Integument. W: Chapman R.F., The Insects Structure and Function, red. Simpson S.J., Douglas A.E., s. 463–500. Cambridge University Press. DOI: 10.1017/CBO9781139035460.022 Dostęp 13.11.2026.
[28] North Carolina State University. Morphogenesis. ENT 425 General Entomology. https://genent.cals.ncsu.edu/bug-bytes/morphogenesis/ Dostęp 13.11.2026.
[29] Mykles D.L., Adams M.E., Gäde G., Lange A.B., Marco H.G., Orchard I. (2010). Neuropeptide Action in Insects and Crustaceans. Physiological and Biochemical Zoology. DOI: 10.1086/648470
[30] Hillyer J.F., Pass G. (2020). The Insect Circulatory System: Structure, Function, and Evolution. Annual Review of Entomology 65, 121–143. DOI: 10.1146/annurev-ento-011019-025003
[31] Harrison J.F. i in. (2013). How Locusts Breathe. Physiology 28(1), 18–27. DOI: 10.1152/physiol.00043.2012
[32] Blickhan R., Siebert T., Weihmann T. (2026). Semi-hydraulic actuation in spider legs: The transport of the hemolymph does not hamper muscle driven leg joint flexion. Journal of Theoretical Biology 620, 112350. Publikacja online w 2025 r. DOI: 10.1016/j.jtbi.2025.112350
[33] Burmester T. (2015). Evolution of Respiratory Proteins across the Pancrustacea. Integrative and Comparative Biology 55(5), 792–801. DOI: 10.1093/icb/icv079
[34] Farina P., Bedini S., Conti B. (2022). Multiple Functions of Malpighian Tubules in Insects: A Review. Insects 13(11), 1001. DOI: 10.3390/insects13111001
[35] Natural History Museum of Los Angeles County. Green glands. Crustacea Glossary. https://research.nhm.org/glossary/define.html?termID=327 Dostęp 13.11.2026.
[36] North Carolina State University. The Nervous System. ENT 425 General Entomology. https://genent.cals.ncsu.edu/nervous/ Dostęp 13.11.2026.
[37] North Carolina State University. Insect Senses. ENT 425 General Entomology. https://genent.cals.ncsu.edu/bug-bytes/senses/ Dostęp 13.11.2026.
[38] Kittelmann M., McGregor A.P. (2024). Looking across the gap: Understanding the evolution of eyes and vision among insects. BioEssays. DOI: 10.1002/bies.202300240
[39] Ortiz-Urquiza A., Keyhani N.O. (2013). Action on the Surface: Entomopathogenic Fungi versus the Insect Cuticle. Insects 4(3), 357–374. DOI: 10.3390/insects4030357
[40] Hillyer J.F. (2016). Insect immunology and hematopoiesis. Developmental & Comparative Immunology 58, 102–118. Publikacja online w 2015 r.; rok tomu 2016. DOI: 10.1016/j.dci.2015.12.006
[41] Eleftherianos I., Heryanto C., Bassal T., Zhang W., Tettamanti G., Mohamed A. (2021). Haemocyte-mediated immunity in insects: Cells, processes and associated components in the fight against pathogens and parasites. Immunology 164(3), 401–432. DOI: 10.1111/imm.13390
[42] Nakhleh J., El Moussawi L., Osta M.A. (2017). The Melanization Response in Insect Immunity. Advances in Insect Physiology 52, 83–109. W tomie Insect Immunity pod redakcją P. Ligoxygakisa. DOI: 10.1016/bs.aiip.2016.11.002 Dostęp 13.11.2026.
[43] Pham L.N., Dionne M.S., Shirasu-Hiza M., Schneider D.S. (2007). A Specific Primed Immune Response in Drosophila Is Dependent on Phagocytes. PLOS Pathogens 3(3), e26. DOI: 10.1371/journal.ppat.0030026
[44] Arndt E.M., Moore W., Lee W.-K., Ortiz C. (2015). Mechanistic origins of bombardier beetle (Brachinini) explosion-induced defensive spray pulsation. Science 348(6234), 563–567. DOI: 10.1126/science.1261166
[45] Tragust S., Mitteregger B., Barone V., Konrad M., Ugelvig L.V., Cremer S. (2013). Ants disinfect fungus-exposed brood by oral uptake and spread of their poison. Current Biology 23(1), 76–82. Publikacja online w 2012 r.; rok tomu 2013. DOI: 10.1016/j.cub.2012.11.034
[46] Truman J.W., Riddiford L.M. (2019). The evolution of insect metamorphosis: a developmental and endocrine view. Philosophical Transactions of the Royal Society B 374, 20190070. DOI: 10.1098/rstb.2019.0070
[47] Rolff J., Johnston P.R., Reynolds S. (2019). Complete metamorphosis of insects. Philosophical Transactions of the Royal Society B 374, 20190063. DOI: 10.1098/rstb.2019.0063
[48] Jindra M., Palli S.R., Riddiford L.M. (2013). The Juvenile Hormone Signaling Pathway in Insect Development. Annual Review of Entomology 58, 181–204. DOI: 10.1146/annurev-ento-120811-153700
[49] Nakano S., Murakami M. (2001). Reciprocal subsidies: dynamic interdependence between terrestrial and aquatic food webs. PNAS 98(1), 166–170. DOI: 10.1073/pnas.98.1.166
[50] Myers P. (2001). Arthropoda. Animal Diversity Web University of Michigan. https://animaldiversity.org/accounts/Arthropoda/ Dostęp 13.11.2026.
[51] Ogawa K., Miura T. (2014). Aphid polyphenisms: trans-generational developmental regulation through viviparity. Frontiers in Physiology 5, 1. DOI: 10.3389/fphys.2014.00001
[52] Ebert D. (2005). Introduction to Daphnia Biology. Ecology, Epidemiology, and Evolution of Parasitism in Daphnia, rozdział 2. NCBI Bookshelf. https://www.ncbi.nlm.nih.gov/books/NBK2042/ Dostęp 13.11.2026.
[53] Boos S., Meunier J., Pichon S., Kölliker M. (2014). Maternal care provides antifungal protection to eggs in the European earwig. Behavioral Ecology 25, 754–761. DOI: 10.1093/beheco/aru046
[54] North Carolina State University. Social Insects. ENT 425 General Entomology. https://genent.cals.ncsu.edu/bug-bytes/social-insects/ Dostęp 13.11.2026.
[55] Hidalgo S., Chiu J.C. (2024). Integration of photoperiodic and temperature cues by the circadian clock to regulate insect seasonal adaptations. Journal of Comparative Physiology A 210, 585–599. Publikacja online 16 sierpnia 2023 r. DOI: 10.1007/s00359-023-01667-1
[56] Państwowa Inspekcja Ochrony Roślin i Nasiennictwa. Jak zimują organizmy pożyteczne? Poznaj zimowych mieszkańców ogrodu. Państwowa Inspekcja Ochrony Roślin i Nasiennictwa. https://www.gov.pl/web/piorin/jak-zimuja-organizmy-pozyteczne Dostęp 13.11.2026.
[57] North Carolina State University. Order Coleoptera. ENT 425 General Entomology. https://genent.cals.ncsu.edu/insect-identification/order-coleoptera/ Dostęp 13.11.2026.
[58] North Carolina State University. Order Diptera. ENT 425 General Entomology. https://genent.cals.ncsu.edu/insect-identification/order-diptera/ Dostęp 13.11.2026.
[59] North Carolina State University. Order Neuroptera. ENT 425 General Entomology. https://genent.cals.ncsu.edu/insect-identification/order-neuroptera/ Dostęp 13.11.2026.
[60] North Carolina State University. Order Hymenoptera. ENT 425 General Entomology. https://genent.cals.ncsu.edu/insect-identification/order-hymenoptera/ Dostęp 13.11.2026.
[61] North Carolina State University. Order Lepidoptera. ENT 425 General Entomology. https://genent.cals.ncsu.edu/insect-identification/order-lepidoptera/ Dostęp 13.11.2026.
[62] North Carolina State University. Order Hemiptera Suborder Heteroptera. ENT 425 General Entomology. https://genent.cals.ncsu.edu/insect-identification/order-hemiptera-suborder-heteroptera/ Dostęp 13.11.2026.
[63] North Carolina State University. Order Odonata. ENT 425 General Entomology. https://genent.cals.ncsu.edu/insect-identification/order-odonata/ Dostęp 13.11.2026.
[64] North Carolina State University. Order Ephemeroptera. ENT 425 General Entomology. https://genent.cals.ncsu.edu/insect-identification/order-ephemeroptera/ Dostęp 13.11.2026.
[65] North Carolina State University. Order Orthoptera. ENT 425 General Entomology. https://genent.cals.ncsu.edu/insect-identification/order-orthoptera/ Dostęp 13.11.2026.
[66] North Carolina State University. Order Trichoptera. ENT 425 General Entomology. https://genent.cals.ncsu.edu/insect-identification/order-trichoptera/ Dostęp 13.11.2026.
[67] Inward D., Beccaloni G., Eggleton P. (2007). Death of an order: a comprehensive molecular phylogenetic study confirms that termites are eusocial cockroaches. Biology Letters 3(3), 331–335. DOI: 10.1098/rsbl.2007.0102 Dostęp 13.11.2026.
[68] Australian Museum. Prey capture and feeding. Australian Museum. https://australian.museum/learn/animals/spiders/prey-capture-and-feeding/ Dostęp 13.11.2026.
[69] Gray M. (2024). Jumping spiders. Australian Museum. https://australian.museum/learn/animals/spiders/jumping-spiders/ Dostęp 13.11.2026.
[70] Australian Museum (2019). Silk: the spider's success story. Australian Museum. https://australian.museum/learn/animals/spiders/silk-the-spiders-success-story/ Dostęp 13.11.2026.
[71] Australian Museum (2024). Wolf Spiders. Australian Museum. https://australian.museum/learn/animals/spiders/wolf-spiders/ Dostęp 13.11.2026.
[72] CSIRO. Opiliones — harvestmen. CSIRO Entomology. https://www.ento.csiro.au/education/allies/opiliones.html Dostęp 13.11.2026.
[73] CSIRO. Pseudoscorpionidae — false scorpions. CSIRO Entomology. https://www.ento.csiro.au/education/allies/pseudoscorpionidae.html Dostęp 13.11.2026.
[74] Murray M. (2024). Scorpions. Australian Museum. https://australian.museum/learn/animals/spiders/scorpions/ Dostęp 13.11.2026.
[75] Australian Museum (2018). What do mites and ticks look like?. Australian Museum. https://australian.museum/learn/species-identification/ask-an-expert/what-do-mites-and-ticks-look-like/ Dostęp 13.11.2026.
[76] CSIRO. Acarina — mites and ticks. CSIRO Entomology. https://www.ento.csiro.au/education/allies/acarina.htm Dostęp 13.11.2026.
[77] Klimov P.B. i in. (2026). Morphology and diagnosis. Eriophyoidea ID. Aktualizacja treści: lipiec 2026. https://idtools.org/tools/2160/index.cfm?pageID=5500 Dostęp 13.11.2026.
[78] Weaver M., Dale A. (2024). Hibiscus Erineum Mite Aceria hibisci (Nalepa, 1906) (Arachnida: Acari: Eriophyidae). University of Florida IFAS Extension, EENY-806/IN1419. DOI: 10.32473/edis-in1419-2024 Dostęp 13.11.2026.
[79] European Centre for Disease Prevention and Control. Ixodes ricinus — Factsheet for experts. European Centre for Disease Prevention and Control. https://www.ecdc.europa.eu/en/disease-vectors/facts/tick-factsheets/ixodes-ricinus Dostęp 13.11.2026.
[80] NOAA Fisheries (2018). Horseshoe Crabs: Managing a Resource for Birds, Bait, and Blood. NOAA Fisheries. https://www.fisheries.noaa.gov/feature-story/horseshoe-crabs-managing-resource-birds-bait-and-blood Dostęp 13.11.2026.
[81] Woods H.A., Lane S.J., Shishido C., Tobalske B.W., Arango C.P., Moran A.L. (2017). Respiratory gut peristalsis by sea spiders. Current Biology 27(13), R638–R639. DOI: 10.1016/j.cub.2017.05.062 Dostęp 13.11.2026.
[82] Miyazawa H., Ueda C., Yahata K., Su Z.-H. (2014). Molecular phylogeny of Myriapoda provides insights into evolutionary patterns of the mode in post-embryonic development. Scientific Reports 4, 4127. DOI: 10.1038/srep04127 Dostęp 13.11.2026.
[83] Kenning M., Müller C.H.G., Sombke A. (2017). The ultimate legs of Chilopoda (Myriapoda): a review on their morphological disparity and functional variability. PeerJ 5, e4023. DOI: 10.7717/peerj.4023 Dostęp 13.11.2026.
[84] Enghoff H., Dohle W., Blower J.G. (1993). Anamorphosis in millipedes (Diplopoda)—the present state of knowledge with some developmental and phylogenetic considerations. Zoological Journal of the Linnean Society 109(2), 103–234. DOI: 10.1111/j.1096-3642.1993.tb00305.x Dostęp 13.11.2026.
[85] Rodriguez J., Jones T.H., Sierwald P., Marek P.E., Shear W.A., Brewer M.S., Kocot K.M., Bond J.E. (2018). Step-wise evolution of complex chemical defenses in millipedes: a phylogenomic approach. Scientific Reports 8, 3209. DOI: 10.1038/s41598-018-19996-6 Dostęp 13.11.2026.
[86] Australian Museum (2020). Common seasonal enquiries — Lacewings, Centipedes & Millipedes. Australian Museum. https://australian.museum/learn/species-identification/ask-an-expert/common-enquiries-summer/ Dostęp 13.11.2026.
[87] Australian Museum. Marine Invertebrate Collections — Taxonomic groups. Australian Museum. https://australian.museum/learn/collections/natural-science/marine-invertebrates/marine-invertebrate-collections-taxonomic-groups/ Dostęp 13.11.2026.
[88] Smithsonian National Museum of Natural History. Copepods. Department of Invertebrate Zoology. https://naturalhistory.si.edu/research/invertebrate-zoology/research/copepods Dostęp 13.11.2026.
[89] Natural History Museum. Copepod colonisation and parasitism. Natural History Museum London. https://www.nhm.ac.uk/our-science/research/projects/copepod-colonisation-parasitism.html Dostęp 13.11.2026.
[90] Kiørboe T. (2011). How zooplankton feed: mechanisms, traits and trade-offs. Biological Reviews 86(2), 311–339. DOI: 10.1111/j.1469-185X.2010.00148.x Dostęp 13.11.2026.
[91] Dodson S.L., Cáceres C.E., Rogers D.C. (2010). Cladocera and Other Branchiopoda. Ecology and Classification of North American Freshwater Invertebrates, 773–827. DOI: 10.1016/B978-0-12-374855-3.00020-0 Dostęp 13.11.2026.
[92] U.S. Fish & Wildlife Service. Vernal Pool Fairy Shrimp (Branchinecta lynchi). U.S. Fish & Wildlife Service. https://www.fws.gov/species/vernal-pool-fairy-shrimp-branchinecta-lynchi Dostęp 13.11.2026.
[93] British Geological Survey. Ostracods. Discovering Geology — Fossils and geological time. https://www.bgs.ac.uk/discovering-geology/fossils-and-geological-time/ostracods/ Dostęp 13.11.2026.
[94] Maruzzo D., Aldred N., Clare A.S., Høeg J.T. (2012). Metamorphosis in the Cirripede Crustacean Balanus amphitrite. PLOS ONE 7(5), e37408. DOI: 10.1371/journal.pone.0037408
[95] Marin I.N., Tiunov A.V. (2023). Terrestrial crustaceans (Arthropoda, Crustacea): taxonomic diversity, terrestrial adaptations, and ecological functions. ZooKeys 1169, 95–162. DOI: 10.3897/zookeys.1169.97812 Dostęp 13.11.2026.
[96] U.S. National Library of Medicine (2026). Decapoda — MeSH Descriptor Data 2026. Medical Subject Headings. https://meshb.nlm.nih.gov/record/ui?dcmsLinks=true&ui=D033364 Dostęp 13.11.2026.
[97] Australian Museum (2026). Hermit Crab — Pagurus sinuatus. Australian Museum. https://australian.museum/learn/animals/crustaceans/hermit-crab/ Dostęp 13.11.2026.
[98] Chesapeake Bay Program. Blue Crab Information Sheet. NOAA National Marine Fisheries Service educational materials. https://www.st.nmfs.noaa.gov/Assets/Nemo/documents/lessons/Lesson_21/Lesson_21-Blue_crab_information_sheet.pdf Dostęp 13.11.2026.
[99] Australian Antarctic Division. Antarctic krill. Australian Antarctic Program. https://www.antarctica.gov.au/about-antarctica/animals/krill/ Dostęp 13.11.2026.
[100] Miner B.E., De Meester L., Pfrender M.E., Lampert W., Hairston N.G. Jr (2012). Linking genes to communities and ecosystems: Daphnia as an ecogenomic model. Proceedings of the Royal Society B 279, 1873–1882. DOI: 10.1098/rspb.2011.2404
[101] Henry R.P., Lucu C., Onken H., Weihrauch D. (2012). Multiple functions of the crustacean gill: osmotic/ionic regulation, acid-base balance, ammonia excretion, and bioaccumulation of toxic metals. Frontiers in Physiology 3, 431. DOI: 10.3389/fphys.2012.00431 Dostęp 13.11.2026.
[102] Seymour R.S., Jones K.K., Hetz S.K. (2015). Respiratory function of the plastron in the aquatic bug Aphelocheirus aestivalis (Hemiptera, Aphelocheiridae). Journal of Experimental Biology 218, 2840–2846. DOI: 10.1242/jeb.125328
[103] Rey-Alfonso Á., Chauvigné F., Finn R.N., Cerdà J. (2025). New insights into the anhydrobiotic role of trehalose biosynthesis and transport in Artemia franciscana diapause embryos. Open Biology 15(12), 250176. DOI: 10.1098/rsob.250176
[104] Broly P., Devigne L., Deneubourg J.-L., Devigne C. (2014). Effects of group size on aggregation against desiccation in woodlice (Isopoda: Oniscidea). Physiological Entomology 39, 165–171. DOI: 10.1111/phen.12060
[105] Wen X. i in. (2016). Antifreeze proteins govern the precipitation of trehalose in a freezing-avoiding insect at low temperature. PNAS 113(24), 6683–6688. DOI: 10.1073/pnas.1601519113
[106] Rader R. i in. (2016). Non-bee insects are important contributors to global crop pollination. PNAS 113(1), 146–151. DOI: 10.1073/pnas.1517092112
[107] FAO (2005). Annex 1: Soil organisms. The importance of soil organic matter. https://www.fao.org/4/a0100e/a0100e0d.htm Dostęp 13.11.2026.
[108] Karp D.S. i in. (2018). Crop pests and predators exhibit inconsistent responses to surrounding landscape composition. PNAS 115, E7863–E7870. DOI: 10.1073/pnas.1800042115
[109] University of California Statewide Integrated Pest Management Program (2014). Biological Control and Natural Enemies of Invertebrates. University of California Statewide Integrated Pest Management Program. https://ipm.ucanr.edu/home-and-landscape/biological-control-and-natural-enemies-of-invertebrates/ Dostęp 13.11.2026.
[110] Cheng W., Tie L., Zhou S., Hu J., Ouyang S., Huang C. (2023). Effects of Soil Arthropods on Non-Leaf Litter Decomposition: A Meta-Analysis. Forests 14(8), 1557. DOI: 10.3390/f14081557
[111] Kampichler C., Bruckner A. (2009). The role of microarthropods in terrestrial decomposition: a meta-analysis of 40 years of litterbag studies. Biological Reviews 84(3), 375–389. DOI: 10.1111/j.1469-185X.2009.00078.x
[112] Jónasdóttir S.H., Visser A.W., Richardson K., Heath M.R. (2015). Seasonal copepod lipid pump promotes carbon sequestration in the deep North Atlantic. PNAS 112(39), 12122–12126. DOI: 10.1073/pnas.1512110112
[113] European Environment Agency / WISE Freshwater. Biological quality elements. European Environment Agency / WISE Freshwater. https://water.europa.eu/freshwater/europe-freshwater/water-framework-directive/ecological-status-of-surface-water/biological-quality-elements Dostęp 13.11.2026.
[114] Nyffeler M., Birkhofer K. (2017). An estimated 400–800 million tons of prey are annually killed by the global spider community. The Science of Nature 104, 30. DOI: 10.1007/s00114-017-1440-1
[115] Michalko R., Pekár S., Dul'a M., Entling M.H. (2019). Global patterns in the biocontrol efficacy of spiders: A meta-analysis. Global Ecology and Biogeography 28(9), 1366–1378. DOI: 10.1111/geb.12927
[116] Hedges L.V. (1981). Distribution Theory for Glass's Estimator of Effect Size and Related Estimators. Journal of Educational Statistics 6(2), 107–128. DOI: 10.3102/10769986006002107
[117] Schmitz O.J., Beckerman A.P., O’Brien K.M. (1997). Behaviorally mediated trophic cascades: effects of predation risk on food web interactions. Ecology 78(5), 1388–1399. DOI: 10.1890/0012-9658(1997)078[1388:BMTCEO]2.0.CO;2
[118] Dong S., Lin T., Nieh J.C., Tan K. (2023). Social signal learning of the waggle dance in honey bees. Science 379, 1015–1018. DOI: 10.1126/science.ade1702
[119] Douglas A.E. (1998). Nutritional Interactions in Insect-Microbial Symbioses: Aphids and Their Symbiotic Bacteria Buchnera. Annual Review of Entomology 43, 17–37. DOI: 10.1146/annurev.ento.43.1.17
[120] Russell C.W., Bouvaine S., Newell P.D., Douglas A.E. (2013). Shared Metabolic Pathways in a Coevolved Insect-Bacterial Symbiosis. Applied and Environmental Microbiology 79, 6117–6123. DOI: 10.1128/AEM.01543-13
[121] Werren J.H., Baldo L., Clark M.E. (2008). Wolbachia: master manipulators of invertebrate biology. Nature Reviews Microbiology 6, 741–751. DOI: 10.1038/nrmicro1969
[122] Currie C.R., Poulsen M., Mendenhall J., Boomsma J.J., Billen J. (2006). Coevolved Crypts and Exocrine Glands Support Mutualistic Bacteria in Fungus-Growing Ants. Science 311, 81–83. DOI: 10.1126/science.1119744
[123] Currie C.R., Mueller U.G., Malloch D. (1999). The agricultural pathology of ant fungus gardens. Proceedings of the National Academy of Sciences 96, 7998–8002. DOI: 10.1073/pnas.96.14.7998
[124] Ollerton J., Winfree R., Tarrant S. (2011). How many flowering plants are pollinated by animals?. Oikos 120(3), 321–326. DOI: 10.1111/j.1600-0706.2010.18644.x
[125] Tong Z.-Y. i in. (2023). New calculations indicate that 90% of flowering plant species are animal-pollinated. National Science Review 10(10), nwad219. DOI: 10.1093/nsr/nwad219
[126] Hu G., Lim K.S., Horvitz N., Clark S.J., Reynolds D.R., Sapir N., Chapman J.W. (2016). Mass seasonal bioflows of high-flying insect migrants. Science 354(6319), 1584–1587. DOI: 10.1126/science.aah4379
[127] Chapman J.W., Nesbit R.L., Burgin L.E., Reynolds D.R., Smith A.D., Middleton D.R., Hill J.K. (2010). Flight Orientation Behaviors Promote Optimal Migration Trajectories in High-Flying Insects. Science 327(5966), 682–685. DOI: 10.1126/science.1182990
[128] Wotton K.R., Gao B., Menz M.H.M., Morris R.K.A., Ball S.G., Lim K.S., Reynolds D.R., Hu G., Chapman J.W. (2019). Mass Seasonal Migrations of Hoverflies Provide Extensive Pollination and Crop Protection Services. Current Biology 29(13), 2167–2173.e5. DOI: 10.1016/j.cub.2019.05.036
[129] Garibaldi L.A., Steffan-Dewenter I., Winfree R. i in. (2013). Wild pollinators enhance fruit set of crops regardless of honey bee abundance. Science 339(6127), 1608–1611. Powiązane erratum z 2014 r.: DOI 10.1126/science.1255213. DOI: 10.1126/science.1230200
[130] Brittain C., Williams N., Kremen C., Klein A.-M. (2013). Synergistic effects of non-Apis bees and honey bees for pollination services. Proceedings of the Royal Society B 280(1754), 20122767. DOI: 10.1098/rspb.2012.2767
[131] Garibaldi L.A., Carvalheiro L.G., Vaissière B.E. i in. (2016). Mutually beneficial pollinator diversity and crop yield outcomes in small and large farms. Science 351(6271), 388–391. DOI: 10.1126/science.aac7287
[132] The Nobel Assembly at Karolinska Institutet (2017). The 2017 Nobel Prize in Physiology or Medicine — Press release. The Nobel Assembly at Karolinska Institutet. 2 października 2017 r. https://www.nobelprize.org/prizes/medicine/2017/press-release/ Dostęp 13.11.2026.
[133] Ebert D. (2022). Daphnia as a versatile model system in ecology and evolution. EvoDevo 13, 16. DOI: 10.1186/s13227-022-00199-0
[134] World Health Organization (2024). Vector-borne diseases. World Health Organization. 26 września 2024 r. https://www.who.int/news-room/fact-sheets/detail/vector-borne-diseases Dostęp 13.11.2026.
[135] Instytut Ogrodnictwa (2017). Broszura dotycząca hodowli pszczół samotnic, rozdział o murarce ogrodowej. Instytut Ogrodnictwa. https://www.inhort.pl/files/program_wieloletni/PW_2015_2020_IO/spr_2017/4.1_2017_Broszura_hodowla_pszczol_samotnic.pdf Dostęp 13.11.2026.
[136] Generalna Dyrekcja Ochrony Środowiska. Orconectes limosus — rak pręgowaty. Generalna Dyrekcja Ochrony Środowiska. https://www.gov.pl/web/gdos/orconectes-limosus---rak-pregowaty Dostęp 13.11.2026.
[137] DecaNet eds. / World Register of Marine Species (2026). Faxonius limosus (Rafinesque, 1817). World Register of Marine Species, AphiaID 885313. https://www.marinespecies.org/aphia.php?p=taxdetails&id=885313 Dostęp 13.11.2026.
[138] Turlure C., Schtickzelle N., Dubois Q., Baguette M., Dennis R.L.H., Van Dyck H. (2019). Suitability and Transferability of the Resource-Based Habitat Concept: A Test With an Assemblage of Butterflies. Frontiers in Ecology and Evolution 7, 127. DOI: 10.3389/fevo.2019.00127
[139] Popović M., Nowicki P. (2023). Movements of a Specialist Butterfly in Relation to Mowing Management of Its Habitat Patches. Biology 12(3), 344. DOI: 10.3390/biology12030344
[140] Witek M., Nowicki P., Śliwińska E.B., Skórka P., Settele J., Schönrogge K., Woyciechowski M. (2010). Local host ant specificity of Phengaris (Maculinea) teleius butterfly, an obligatory social parasite of Myrmica ants. Ecological Entomology 35(5), 557–564. DOI: 10.1111/j.1365-2311.2010.01213.x
[141] Sielezniew M. (2012). Modraszek telejus Phengaris (Maculinea) teleius (Bergsträsser, 1779). W: Makomaska-Juchiewicz M., Baran P. (red.), Monitoring gatunków zwierząt. Przewodnik metodyczny. Część II. GIOŚ, Warszawa. Rozdział z 2012 r. z modyfikacjami metodyki z 17.07.2015 i 7.06.2023. https://siedliska.gios.gov.pl/images/pliki_pdf/publikacje/pojedyncze_metodyki_dla_gat_zwierzat/Modraszek_telejus_metodyka_modyfikacja_07062023.pdf Dostęp 13.11.2026.
[142] Kőrösi Á., Szentirmai I., Batáry P., Kövér S., Örvössy N., Peregovits L. (2014). Effects of timing and frequency of mowing on the threatened scarce large blue butterfly – A fine-scale experiment. Agriculture, Ecosystems & Environment 196, 24–33. DOI: 10.1016/j.agee.2014.06.019
[143] Bardiani M., Chiari S., Maurizi E., Tini M., Toni I., Zauli A., Campanaro A., Carpaneto G.M., Audisio P. (2017). Guidelines for the monitoring of Lucanus cervus. Nature Conservation 20, 37–78. DOI: 10.3897/natureconservation.20.12687
[144] Kuźmiński R., Chrzanowski A., Mazur A., Rutkowski P., Gwiazdowicz D.J. (2020). Distribution and habitat preferences of the stag beetle Lucanus cervus (L.) in forested areas of Poland. Scientific Reports 10, 1043. DOI: 10.1038/s41598-020-57738-9
[145] Tini M., Bardiani M., Campanaro A., Mason F., Audisio P.A., Carpaneto G.M. (2017). Detection of stag beetle oviposition sites by combining telemetry and emergence traps. Nature Conservation 19, 81–96. DOI: 10.3897/natureconservation.19.12678
[146] Harvey D.J., Gange A.C., Hawes C.J., Rink M. (2011). Bionomics and distribution of the stag beetle, Lucanus cervus (L.) across Europe. Insect Conservation and Diversity 4(1), 23–38. DOI: 10.1111/j.1752-4598.2010.00107.x
[147] Campanaro A., Redolfi De Zan L., Hardersen S., Antonini G., Chiari S., Cini A., Mancini E., Mosconi F., Rossi de Gasperis S., Solano E., Bologna M.A., Sabbatini Peverieri G. (2017). Guidelines for the monitoring of Rosalia alpina. Nature Conservation 20, 165–203. DOI: 10.3897/natureconservation.20.12728
[148] Adamski P., Bohdan A., Michalcewicz J., Ciach M., Witkowski Z. (2016). Timber stacks: potential ecological traps for an endangered saproxylic beetle, the Rosalia longicorn Rosalia alpina. Journal of Insect Conservation 20, 1099–1105. DOI: 10.1007/s10841-016-9932-4
[149] Adamski P., Michalcewicz J., Bohdan A., Ciach M. (2018). Potential range of impact of an ecological trap network: the case of timber stacks and the Rosalia longicorn. Journal of Insect Conservation 22, 209–219. DOI: 10.1007/s10841-018-0054-z
[150] Państwowa Rada Ochrony Przyrody, Komisja ds. Prawa Ochrony Przyrody (2024). Opinia w sprawie ochrony nadobnicy alpejskiej Rosalia alpina przed zagrożeniem wynikającym z wabienia chrząszczy przez składowanie drewna w lesie. PROP-KPOP/2024-11, 22 września 2024 r.. https://prop.gov.pl/wp-content/uploads/2024/10/PROP-KPOP-2024-11-nadobnica.pdf Dostęp 13.11.2026.
[151] Główny Inspektorat Ochrony Środowiska. 1042 Zalotka większa Leucorrhinia pectoralis. Monitoring gatunków i siedlisk przyrodniczych, Państwowy Monitoring Środowiska. https://siedliska.gios.gov.pl/przedmioty-monitoringu-menu/monitoring-zwierzat/monitoring-zwierzat-wszystkie-gatunki?id=336&view=article Dostęp 13.11.2026.
[152] Buczyńska E., Buczyński P. (2019). Aquatic Insects of Man-Made Habitats: Environmental Factors Determining the Distribution of Caddisflies (Trichoptera), Dragonflies (Odonata), and Beetles (Coleoptera) in Acidic Peat Pools. Journal of Insect Science 19(1), 17. DOI: 10.1093/jisesa/iez005
[153] Mauersberger R. (2010). Leucorrhinia pectoralis can coexist with fish (Odonata: Libellulidae). International Journal of Odonatology 13(2), 193–204. DOI: 10.1080/13887890.2010.9748374
[154] Raebel E.M., Merckx T., Riordan P., Macdonald D.W., Thompson D.J. (2010). The dragonfly delusion: why it is essential to sample exuviae to avoid biased surveys. Journal of Insect Conservation 14(5), 523–533. DOI: 10.1007/s10841-010-9281-7
[155] Bried J.T., D’Amico F., Samways M.J. (2012). A critique of the dragonfly delusion hypothesis: why sampling exuviae does not avoid bias. Insect Conservation and Diversity 5(5), 398–402. Publikacja online 19.09.2011; rok tomu 2012. DOI: 10.1111/j.1752-4598.2011.00171.x
[156] Stork N.E. (2018). How Many Species of Insects and Other Terrestrial Arthropods Are There on Earth?. Annual Review of Entomology 63, 31–45. DOI: 10.1146/annurev-ento-020117-043348
[157] Stork N.E., McBroom J., Gely C., Hamilton A.J. (2015). New approaches narrow global species estimates for beetles, insects, and terrestrial arthropods. Proceedings of the National Academy of Sciences 112, 7519–7523. DOI: 10.1073/pnas.1502408112
[158] Rosenberg Y. i in. (2023). The global biomass and number of terrestrial arthropods. Science Advances 9, eabq4049. DOI: 10.1126/sciadv.abq4049
[159] Bar-On Y.M., Phillips R., Milo R. (2018). The biomass distribution on Earth. Proceedings of the National Academy of Sciences 115, 6506–6511. DOI: 10.1073/pnas.1711842115
[160] Schultheiss P., Nooten S.S., Wang R., Wong M.K.L., Brassard F., Guénard B. (2022). The abundance, biomass, and distribution of ants on Earth. Proceedings of the National Academy of Sciences 119, e2201550119. DOI: 10.1073/pnas.2201550119
[161] Hallmann C.A. i in. (2017). More than 75 percent decline over 27 years in total flying insect biomass in protected areas. PLOS ONE 12, e0185809. DOI: 10.1371/journal.pone.0185809
[162] Seibold S. i in. (2019). Arthropod decline in grasslands and forests is associated with landscape-level drivers. Nature 574, 671–674. DOI: 10.1038/s41586-019-1684-3
[163] Edwards C.B. i in. (2025). Rapid butterfly declines across the United States during the 21st century. Science 387, 1090–1094. DOI: 10.1126/science.adp4671
[164] van Klink R., Bowler D.E., Gongalsky K.B., Swengel A.B., Gentile A., Chase J.M. (2020). Meta-analysis reveals declines in terrestrial but increases in freshwater insect abundances. Science 368, 417–420. DOI: 10.1126/science.aax9931
[165] Thorp H.H. (2026). Editorial Expression of Concern for the Report “Meta-analysis reveals declines in terrestrial but increases in freshwater insect abundances”. Science 391, 360. DOI: 10.1126/science.aee6983
[166] Ecology (2025). NOTIFICATION: InsectChange: a Global Database of Temporal Changes in Insect and Arachnid Assemblages. Ecology. Publikacja online 8 października 2025 r. DOI: 10.1002/ecy.70116
[167] Haase P. i in. (2023). The recovery of European freshwater biodiversity has come to a halt. Nature 620, 582–588. DOI: 10.1038/s41586-023-06400-1
[168] Wagner D.L., Grames E.M., Forister M.L., Berenbaum M.R., Stopak D. (2021). Insect decline in the Anthropocene: Death by a thousand cuts. Proceedings of the National Academy of Sciences 118, e2023989118. DOI: 10.1073/pnas.2023989118
[169] Outhwaite C.L., McCann P., Newbold T. (2022). Agriculture and climate change are reshaping insect biodiversity worldwide. Nature 605, 97–102. DOI: 10.1038/s41586-022-04644-x
[170] Boyes D.H., Evans D.M., Fox R., Parsons M.S., Pocock M.J.O. (2021). Street lighting has detrimental impacts on local insect populations. Science Advances 7, eabi8322. DOI: 10.1126/sciadv.abi8322
[171] Haddad N.M. i in. (2015). Habitat fragmentation and its lasting impact on Earth's ecosystems. Science Advances 1, e1500052. DOI: 10.1126/sciadv.1500052
[172] Forister M.L., Halsch C.A., Nice C.C. i in. (2021). Fewer butterflies seen by community scientists across the warming and drying landscapes of the American West. Science 371, 1042–1045. DOI: 10.1126/science.abe5585
[173] Knop E., Zoller L., Ryser R., Gerpe C., Hörler M., Fontaine C. (2017). Artificial light at night as a new threat to pollination. Nature 548, 206–209. DOI: 10.1038/nature23288
[174] Nicholson C.C., Knapp J., Kiljanek T. i in. (2024). Pesticide use negatively affects bumble bees across European landscapes. Nature 628, 355–358. Publikacja online 29 listopada 2023; tom z 2024. Porównanie grup <25. i >90. percentyla ryzyka z Extended Data Fig. 6, nie trend czasowy. Wyniki procentowe odnoszą się do oszacowań z modeli. DOI: 10.1038/s41586-023-06773-3
[175] Underwood A.J. (1994). On Beyond BACI: Sampling Designs that Might Reliably Detect Environmental Disturbances. Ecological Applications 4, 3–15. DOI: 10.2307/1942110
[176] Hurlbert S.H. (1984). Pseudoreplication and the Design of Ecological Field Experiments. Ecological Monographs 54, 187–211. DOI: 10.2307/1942661
[177] Sayer C.A. i in. (2025). One-quarter of freshwater fauna threatened with extinction. Nature 638, 138–145. DOI: 10.1038/s41586-024-08375-z
[178] MacIvor J.S., Packer L. (2015). ‘Bee Hotels’ as Tools for Native Pollinator Conservation: A Premature Verdict?. PLOS ONE 10(3), e0122126. DOI: 10.1371/journal.pone.0122126
[179] University of California Statewide Integrated Pest Management Program (2025). Protecting Natural Enemies and Pollinators. University of California Statewide Integrated Pest Management Program. Aktualizacja we wrześniu 2025 r. https://ipm.ucanr.edu/environmental-protection-and-pesticide-stewardship/protecting-natural-enemies-and-pollinators/ Dostęp 13.11.2026.
[180] Brown G.R., Matthews I.M. (2016). A review of extensive variation in the design of pitfall traps and a proposal for a standard pitfall trap design for monitoring ground-active arthropod biodiversity. Ecology and Evolution 6(12), 3953–3964. DOI: 10.1002/ece3.2176 Dostęp 13.11.2026.
[181] Skvarla M.J., Larson J.L., Fisher J.R., Dowling A.P.G. (2021). A Review of Terrestrial and Canopy Malaise Traps. Annals of the Entomological Society of America 114(1), 27–47. DOI: 10.1093/aesa/saaa044 Dostęp 13.11.2026.
[182] Saska P. i in. (2013). Temperature effects on pitfall catches of epigeal arthropods: a model and method for bias correction. Journal of Applied Ecology 50(1), 181–189. DOI: 10.1111/1365-2664.12023
[183] U.S. Geological Survey (2018). Funnel system for studying soil invertebrates. U.S. Geological Survey. https://www.usgs.gov/media/images/funnel-system-studying-soil-invertebrates Dostęp 13.11.2026.
[184] U.S. Environmental Protection Agency (1999). Chapter 7 (part A): Benthic Macroinvertebrate Protocols. Rapid Bioassessment Protocols for Use in Streams and Wadeable Rivers, second edition, EPA 841-B-99-002. https://archive.epa.gov/water/archive/web/html/ch07main.html Dostęp 13.11.2026.
[185] Hebert P.D.N., Cywinska A., Ball S.L., deWaard J.R. (2003). Biological identifications through DNA barcodes. Proceedings of the Royal Society B 270(1512), 313–321. DOI: 10.1098/rspb.2002.2218
[186] Dayrat B. (2005). Towards integrative taxonomy. Biological Journal of the Linnean Society 85(3). DOI: 10.1111/j.1095-8312.2005.00503.x
[187] NSF National Ecological Observatory Network. Ground Beetles. NSF NEON. https://www.neonscience.org/data-collection/ground-beetles Dostęp 13.11.2026.
[188] Elbrecht V., Leese F. (2015). Can DNA-Based Ecosystem Assessments Quantify Species Abundance? Testing Primer Bias and Biomass–Sequence Relationships with an Innovative Metabarcoding Protocol. PLOS ONE 10(7), e0130324. DOI: 10.1371/journal.pone.0130324
[189] Deiner K., Fronhofer E.A., Mächler E., Walser J.-C., Altermatt F. (2016). Environmental DNA reveals that rivers are conveyer belts of biodiversity information. Nature Communications 7, 12544. DOI: 10.1038/ncomms12544
[190] Didham R.K. i in. (2020). Interpreting insect declines: seven challenges and a way forward. Insect Conservation and Diversity 13, 103–114. DOI: 10.1111/icad.12408
[191] Chao A., Jost L. (2012). Coverage-based rarefaction and extrapolation: standardizing samples by completeness rather than size. Ecology 93, 2533–2547. DOI: 10.1890/11-1952.1
[192] MacKenzie D.I., Nichols J.D., Lachman G.B., Droege S., Royle J.A., Langtimm C.A. (2002). Estimating site occupancy rates when detection probabilities are less than one. Ecology 83, 2248–2255. Publikacja metodologiczna; jej liczbowych przykładów dla płazów nie przenosimy na stawonogi. DOI: 10.1890/0012-9658(2002)083[2248:ESORWD]2.0.CO;2
[193] Dornelas M., Gotelli N.J., McGill B., Shimadzu H., Moyes F., Sievers C., Magurran A.E. (2014). Assemblage time series reveal biodiversity change but not systematic loss. Science 344, 296–299. Wykorzystana do rozróżnienia bogactwa i składu zespołów; nie jest globalnym bilansem stawonogów. DOI: 10.1126/science.1248484
[194] Soga M., Gaston K.J. (2018). Shifting baseline syndrome: causes, consequences, and implications. Frontiers in Ecology and the Environment 16, 222–230. Erratum 10.1002/fee.1812 poprawia zamienione etykiety w rycinie 3a; tej ryciny ani jej wartości nie odtwarzamy. DOI: 10.1002/fee.1794
[195] White E.R. (2019). Minimum Time Required to Detect Population Trends: The Need for Long-Term Monitoring Programs. BioScience 69, 40–46. Publikacja online 5 grudnia 2018; tom z 2019. Dane dotyczą kręgowców; wykorzystujemy tylko ogólną zasadę doboru czasu monitoringu. DOI: 10.1093/biosci/biy144
[196] Altman D.G., Bland J.M. (2005). Standard deviations and standard errors. BMJ 331, 903. DOI: 10.1136/bmj.331.7521.903
[197] Greenland S., Senn S.J., Rothman K.J., Carlin J.B., Poole C., Goodman S.N., Altman D.G. (2016). Statistical tests, P values, confidence intervals, and power: a guide to misinterpretations. European Journal of Epidemiology 31, 337–350. DOI: 10.1007/s10654-016-0149-3
[198] Darwin Core Maintenance Group, Biodiversity Information Standards (TDWG). Darwin Core Quick Reference Guide. Darwin Core. https://dwc.tdwg.org/terms/ Dostęp 13.11.2026.
[199] Ingenloff K., Svenningsen C., Earl C., Shimabukuro P.H.F., Sica Y., Gan Y.-M., Kachian Z.R., Brenton P., Hochachka W., Wieczorek J., Stevenson R., Kazem A., Baskauf S., Zermoglio P.F., Bloom D., Rodrigues A., Gamboa Martínez J., Schigel D. (2025). Guide for publishing biological survey and monitoring data to GBIF. GBIF Secretariat, Copenhagen; version 1.0.2, 2025-09-24. Wydanie rozszerzone · Wersja 3.0.2 z 24.09.2025. DOI: 10.35035/doc-ynvs-eh84 Dostęp 13.11.2026.