Jak korzystać z kompendium
Kompendium można czytać jako ciągły artykuł albo wykorzystywać tematycznie. Rozdziały prowadzą od cech organizmu przez zależności środowiskowe do zastosowań i metod badawczych. Tabele porządkują porównania, a podpisy grafik określają ich zakres. Bibliografia umożliwia przejście od syntezy do konkretnego źródła.
Podstawy biologii obejmują rozdziały 1–12. To punkt wyjścia do klasyfikacji, anatomii, ruchu, rozwoju i ewolucji. Ekologię i ochronę rozwijają rozdziały 13–18 oraz 21–22; metody monitorowania znajdują się w rozdziale 28. Gospodarka i zastosowania są tematem rozdziałów 19–20 oraz 23–26. Ocena obserwacji i dowodów łączy rozdziały 27–29 z metodologią w rozdziale 32.
Słownik w rozdziale 31 wyjaśnia najważniejsze terminy, a indeks nazw gatunkowych wskazuje rozdziały dotyczące poszczególnych organizmów. Nazwy użyte w badaniach historycznych zachowano w ich kontekście. Indeks pomaga nawigować po treści; nie jest odrębnym katalogiem aktualnie zaakceptowanych gatunków.
Wynik eksperymentu należy czytać razem z opisem gatunku, warunków i mierzonej cechy. Tabela produkcji, wynik modelu i pomiar terenowy odpowiadają na różne pytania.
Streszczenie
Mięczaki obejmują bardzo odmienne rozwiązania anatomiczne, strategie pokarmowe i cykle życiowe. Kompendium przedstawia ich wspólny plan budowy oraz przekształcenia u ośmiu współczesnych klas. Łączy opis organizmu z analizą procesów: fizjologii, biomineralizacji, biomechaniki ruchu, odbioru bodźców, rozwoju i przepływu materii.
Wydanie trzecie poszerza tę perspektywę o biogeografię, mechanizmy inwazji, biomimetykę i wykorzystanie muszli do rekonstrukcji środowiska. Części poświęcone Polsce i Bałtykowi, akwakulturze, zagrożeniom oraz ochronie zachowują rozróżnienie między wynikiem lokalnego badania a wnioskiem o większym zasięgu. Osobny rozdział pokazuje, jak replikacja, wielkość efektu i konstrukcja badania wpływają na siłę dowodu.
Opracowanie jest pogłębionym przeglądem popularnonaukowym z dokumentacją źródeł. Nie stanowi systematycznego przeglądu całej literatury. Szacunki oznaczono, własne obliczenia opisano, a nieodczytanych szczegółów nie uzupełniano przypuszczeniami. Materiały źródłowe sprawdzano 12–13 listopada 2026 r.; daty danych i publikacji podano oddzielnie.
Słowa kluczowe: Mollusca, ślimaki, małże, głowonogi, biomechanika, biomineralizacja, biogeografia, symbioza, inwazje biologiczne, akwakultura, sklerochronologia, ochrona przyrody.
Rozdział 1Czym są mięczaki
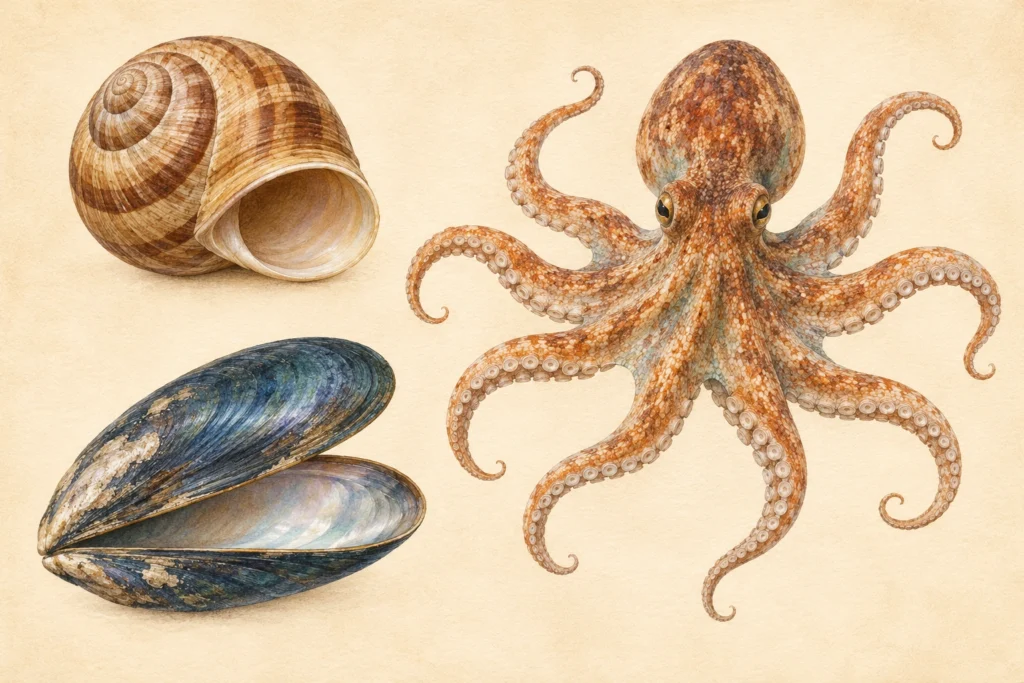
Mięczaki, czyli Mollusca, są typem bezkręgowych zwierząt, do którego należą między innymi ślimaki, małże, głowonogi i chitony. Badaniem tej grupy zajmuje się malakologia. Określenie „bezkręgowce” informuje o braku kręgosłupa, ale nie oznacza prostoty budowy. W obrębie mięczaków występują zarówno zwierzęta niewielkie i trudne do dostrzeżenia, jak i duże, aktywnie polujące głowonogi. [1]
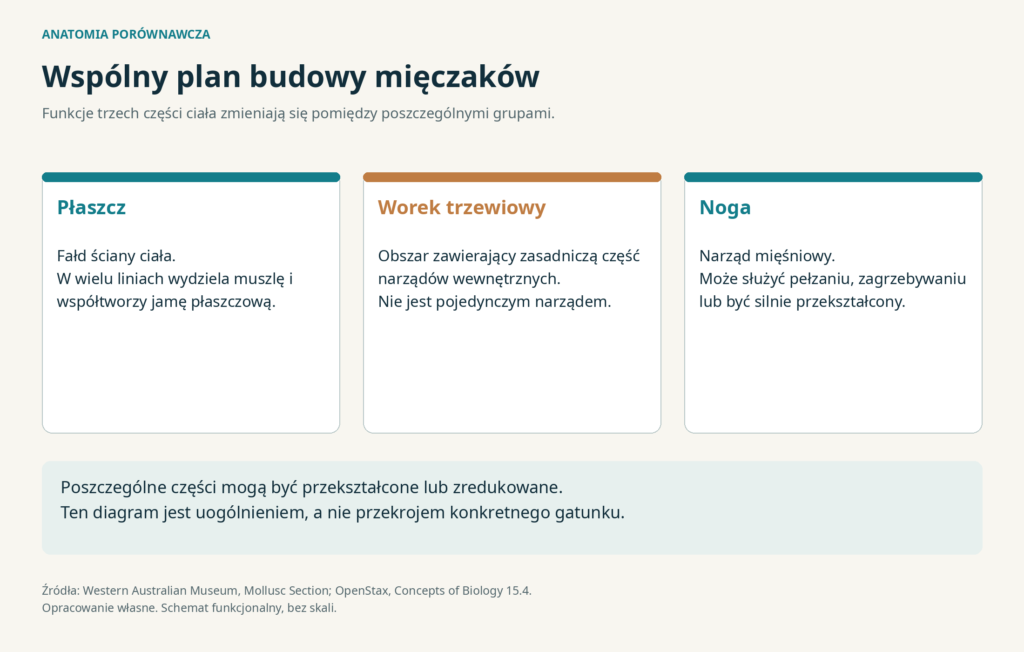
W klasycznym opisie ciała wyróżnia się płaszcz, worek trzewiowy i nogę. Płaszcz jest fałdem ściany ciała związanym między innymi z wytwarzaniem muszli; worek trzewiowy mieści zasadniczą część narządów wewnętrznych; noga stanowi układ mięśniowy o bardzo różnych funkcjach. U ślimaka służy pełzaniu, u wielu małży zagrzebywaniu się, a u głowonogów części tego układu zostały przekształcone w aparat ramion i lejek. Poszczególne elementy mogą być zredukowane lub silnie zmienione. [2]
Nie istnieje więc prosta reguła: „zwierzę z muszlą jest mięczakiem, a bez muszli nim nie jest”. Ślimaki nagie i ośmiornice należą do Mollusca, mimo że nie noszą typowej zewnętrznej muszli. Z kolei twarda osłona występuje także u innych grup zwierząt. W rozpoznawaniu pokrewieństwa liczy się zestaw cech i ich pochodzenie, a nie pojedyncze podobieństwo widoczne na fotografii. [3, 4]
Mięczak a skorupiak
Kraby, krewetki i raki są stawonogami, nie mięczakami. Słowo „owoce morza” łączy w kuchni zwierzęta z różnych grup systematycznych. Podobnie angielskie „shellfish” bywa stosowane zarówno do mięczaków, jak i skorupiaków. Termin handlowy nie zastępuje klasyfikacji zoologicznej. Ta różnica staje się istotna przy czytaniu etykiet, statystyk produkcji oraz doniesień o ekologii morza. [1, 5]
Warto także rozróżniać gatunek, osobnika i populację. Gatunek jest jednostką klasyfikacji biologicznej; osobnik to konkretne zwierzę; populacja obejmuje osobniki danego gatunku żyjące na określonym obszarze i w określonym czasie. Wzrost liczby opisanych gatunków nie świadczy o wzroście liczebności populacji. Można równocześnie odkrywać nieznane nauce gatunki i obserwować zanikanie ich siedlisk. Jest to różnica między postępem poznania a zmianą zachodzącą w przyrodzie.
Rozdział 2Ile znamy gatunków i co naprawdę oznaczają te liczby
MolluscaBase, specjalistyczna baza taksonomiczna, podaje dla października 2026 r. około 90 000 zaakceptowanych gatunków współczesnych oraz ogólną informację o opisywaniu 800–1000 nowych gatunków rocznie. Przywołane przez bazę oszacowania całkowitej współczesnej różnorodności dochodzą do 200 000 gatunków. Ostatnia wartość jest szacunkiem, a nie wynikiem kompletnego spisu. [6]
Tabela 1. Trzy liczby opisujące różne aspekty poznania mięczaków
| Wartość | Znaczenie | Najważniejsze ograniczenie |
|---|---|---|
| Około 90 000 | Zaakceptowane gatunki w części współczesnej MolluscaBase, październik 2026 | Kategoria bazy obejmuje również wymarcia holoceńskie |
| 800–1000 rocznie | Nowe opisy gatunków, według informacji MolluscaBase | Tempo opisu nie jest tempem powstawania gatunków |
| Do 200 000 | Przywoływany zakres oszacowań pełnej różnorodności | Nie jest liczbą potwierdzonych gatunków |
Źródło: MolluscaBase. Baza rozdziela część kopalną i współczesną przy przyjętej granicy 10 000 lat; gatunki wymarłe w holocenie mogą figurować jako współczesne z odpowiednią adnotacją. [6]
W starszych książkach można znaleźć inne liczby. Nie zawsze oznacza to nierzetelność opracowania. Zmienia się liczba opisów, część nazw zostaje uznana za synonimy, a badania genetyczne mogą ujawnić kilka odrębnych gatunków w obrębie wcześniej rozpoznawanej jednej formy. Niektóre zestawienia obejmują skamieniałości, inne tylko gatunki morskie, a jeszcze inne wszystkie środowiska. Porównanie jest sensowne dopiero po sprawdzeniu daty i definicji zbioru.
Równie niebezpieczne jest mylenie liczby rekordów z liczbą gatunków. W bazie taksonomicznej jeden gatunek może mieć nazwę aktualnie zaakceptowaną, nazwy historyczne, alternatywne kombinacje oraz synonimy. Suma wszystkich tych wpisów nie stanowi liczby różnych organizmów. W praktyce należy pytać: czy liczymy zaakceptowane gatunki, wszystkie nazwy, czy gatunki rzeczywiście odnotowane na określonym obszarze? To pytanie jest ważniejsze niż pozorna dokładność liczby podanej do ostatniej cyfry.
Nie podano tutaj procentowego udziału poszczególnych klas w całej różnorodności. Taki wykres wymagałby jednorodnego eksportu danych dla wszystkich klas, z takim samym filtrem statusu taksonomicznego i występowania kopalnego. Zestawianie szacunków ślimaków z jednego podręcznika z bieżącym licznikiem małży z innej bazy dawałoby atrakcyjną, lecz metodologicznie słabą grafikę.
Rozdział 3Osiem współczesnych klas mięczaków
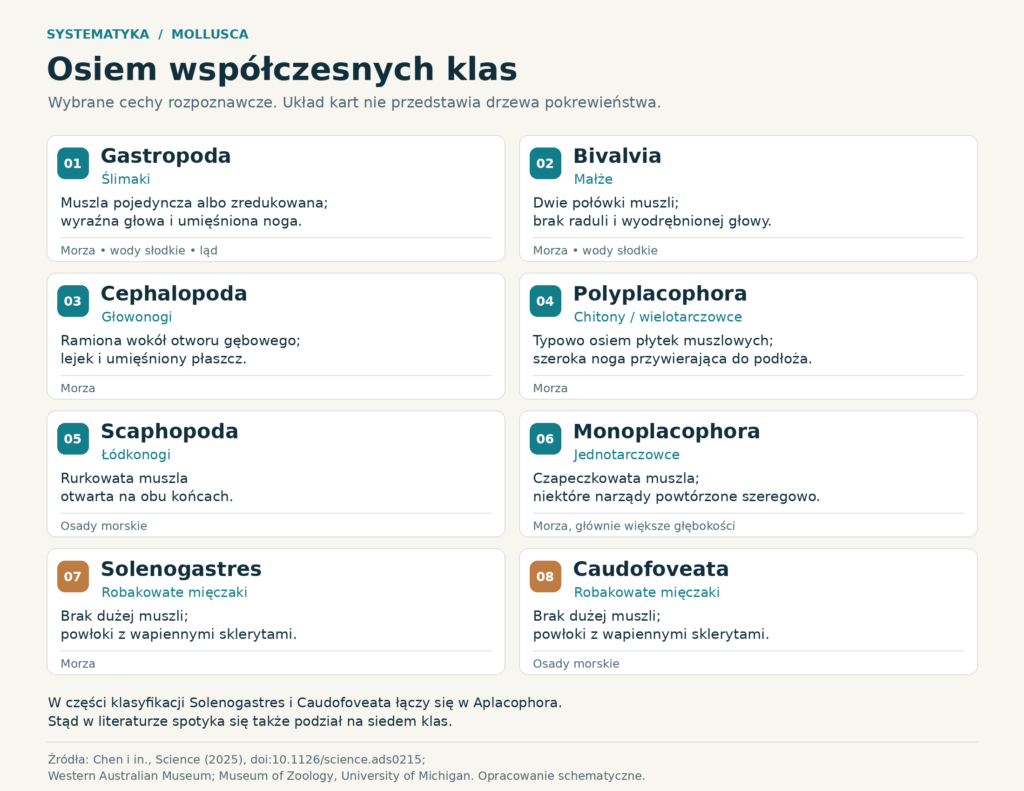
Przyjęto podział na osiem współczesnych klas, z odrębnymi Solenogastres i Caudofoveata, zgodnie z zakresem badania Chen i współautorów z 2025 r. [7]
W części opracowań dwie ostatnie grupy łączy się pod nazwą Aplacophora. Informacja o siedmiu albo ośmiu klasach wymaga więc podania przyjętej konwencji klasyfikacyjnej. [8]
Tabela 2. Główne grupy współczesnych mięczaków
| Klasa | Nazwa używana w języku polskim | Środowisko | Cechy pomocne w rozpoznaniu |
|---|---|---|---|
| Gastropoda | Ślimaki | Morza, wody słodkie, ląd | Głowa i noga; muszla pojedyncza, zredukowana albo utracona |
| Bivalvia | Małże | Morza i wody słodkie | Dwie połówki muszli; brak raduli i wyodrębnionej głowy |
| Cephalopoda | Głowonogi | Morza | Ramiona wokół otworu gębowego, lejek, rozwinięty układ nerwowy |
| Polyplacophora | Chitony, wielotarczowce | Morza | Typowo osiem grzbietowych płytek, szeroka noga |
| Scaphopoda | Łódkonogi | Osady morskie | Rurkowata muszla otwarta na obu końcach |
| Monoplacophora | Jednotarczowce | Morza, głównie większe głębokości | Czapeczkowata muszla; powtórzenie części narządów |
| Solenogastres | Solenogastres | Morza | Wydłużone ciało z drobnymi wapiennymi sklerytami |
| Caudofoveata | Caudofoveata | Osady morskie | Robakowaty kształt, brak dużej muszli, wapienne skleryty |
Źródła cech: Western Australian Museum oraz University of Michigan; sposób wydzielenia klas: Chen i in. 2025. [9, 3, 4, 10, 11, 8, 12, 7]
Mniej znane grupy nie są mniej istotne
Chitony najłatwiej kojarzyć z ośmioma płytkami na grzbiecie. Ich ciało dobrze przylega do twardego podłoża, a uzębiona tarka pozwala wielu gatunkom zeskrobywać pokarm. Część płytek może być przykryta płaszczem, więc widok z góry nie zawsze przypomina szkolny schemat. Wspólną cechą współczesnych chitonów jest związek ze środowiskiem morskim. [10]
Łódkonogi bywają mylone z rurkami wytwarzanymi przez inne zwierzęta. Mają jednak własną, wydłużoną muszlę i mięśniową nogę używaną do zagrzebywania. Otwory na obu końcach muszli są ważną cechą rozpoznawczą. Żyją w osadzie i pobierają drobny pokarm; nie są odmianą ślimaków o nietypowym kształcie muszli. [11]
Jednotarczowce stały się głośne po odkryciu żyjących przedstawicieli w 1952 r. Ich czapeczkowata muszla może zewnętrznie przypominać muszlę przytulika, lecz podobny kształt nie oznacza tej samej przynależności systematycznej. Szeregowe powtarzanie niektórych narządów jest istotne w badaniach porównawczych. Nie czyni jednak dzisiejszych jednotarczowców bezpośrednimi przodkami pozostałych mięczaków. [12]
Solenogastres i Caudofoveata pokazują, jak zawodne może być rozpoznawanie typu wyłącznie po sylwetce. Ich ciało jest wydłużone i robakowate, a osłonę tworzą drobne elementy wapienne. Część struktur typowych dla bardziej znanych mięczaków uległa redukcji. To pełnoprawne linie ewolucyjne, a nie „niedokończone” wersje ślimaka. [8]
Rozdział 4Plan budowy i działanie organizmu
Płaszcz i jama płaszczowa
Płaszcz jest tkanką żywą. Muszla, jeśli występuje, jest jego wytworem. Przestrzeń pomiędzy płaszczem a odpowiednimi częściami ciała nazywa się jamą płaszczową. U wielu form wodnych znajdują się w niej narządy wymiany gazowej, a przepływ wody wiąże oddychanie z usuwaniem produktów przemiany materii lub pobieraniem pokarmu. U licznych ślimaków oddychających powietrzem jama ta jest przekształcona w narząd pełniący funkcję płuca. [14, 15]
Worek trzewiowy nie jest pojedynczym „workiem żołądkowym”. Jest obszarem zawierającym narządy kilku układów. Podobnie słowo „noga” ma w zoologii mięczaków znaczenie szersze niż potoczne określenie kończyny. Gdy porównujemy nogę ślimaka, zagrzebującego się małża i aparat ruchowy głowonoga, porównujemy struktury przekształcone w toku ewolucji, a nie identyczne części o różnej wielkości.
Tarka i różne sposoby pobierania pokarmu
Tarka, czyli radula, jest aparatem zaopatrzonym w rzędy ząbków. U wielu ślimaków uczestniczy w zeskrobywaniu lub rozdrabnianiu pokarmu; jej budowa zmienia się zależnie od sposobu życia. Zużywające się ząbki są zastępowane kolejnymi. U stożków wyspecjalizowane zęby mogą pełnić funkcję aparatu do wprowadzania jadu. Małże raduli nie mają, a także w niektórych innych liniach doszło do jej redukcji. [16, 9, 8]
To ważna korekta popularnego wyobrażenia o ślimaku jako wyłącznym roślinożercy. W typie Mollusca spotykamy zjadanie glonów i roślin, pobieranie detrytusu, filtrowanie drobnych cząstek oraz drapieżnictwo. Forma aparatu pokarmowego jest wskazówką, lecz dokładną dietę ustala się na podstawie obserwacji i badań danego gatunku. Sam wygląd muszli nie ujawnia całego sposobu odżywiania. [3, 9, 4]
Krążenie i oddychanie
U większości mięczaków krążenie jest otwarte: hemolimfa przepływa zarówno przez naczynia, jak i przestrzenie między narządami. „Otwarte” nie oznacza braku serca ani przypadkowego przemieszczania się płynów. U głowonogów układ jest zamknięty. Ośmiornice, kałamarnice i mątwy mają serce systemowe oraz dwa serca skrzelowe; tej liczby nie należy automatycznie przypisywać łodzikom. [14, 17]
Wymiana gazowa i transport tlenu to odrębne, współpracujące procesy. Skrzela dostarczają powierzchni kontaktu z wodą, a płyn krążący przenosi gazy i inne substancje. U głowonogów transport tlenu wiąże się z hemocyjaniną, białkiem zawierającym miedź. Jej forma związana z tlenem nadaje krwi niebieskawy kolor. Nie należy z tego wyciągać wniosku, że każdy mięczak ma identyczny skład i kolor płynu krążącego. [18]
Środowisko życia nie daje pełnej odpowiedzi na pytanie o oddychanie. Błotniarka stawowa Lymnaea stagnalis jest ślimakiem wodnym, który korzysta również z oddychania powietrzem przy powierzchni. W doświadczeniach nad niedoborem tlenu wykazano zmiany aktywności oddechowej tego gatunku. Prosty podział „w wodzie zawsze skrzela, na lądzie zawsze płuca” pomija więc rzeczywiste przystosowania. [19]
Ruch i ograniczenia środowiskowe
Ślimak przesuwa ciało dzięki pracy mięśni nogi i współdziałaniu z wydzielanym śluzem. Małż może zakotwiczać się w osadzie i wciągać ciało za pomocą nogi; niektóre formy przytwierdzają się do podłoża, a inne potrafią zmieniać położenie. Głowonogi wykorzystują ramiona, płetwy lub odrzut wody przez lejek. Nie ma zatem jednej „typowej prędkości mięczaka”, która sensownie opisywałaby cały typ. [16, 20, 4]
Tabela 3. Pojęcia anatomiczne i najczęstsze nieporozumienia
| Pojęcie | Co oznacza | Czego nie należy z nim utożsamiać |
|---|---|---|
| Płaszcz | Żywa część ciała związana m.in. z wydzielaniem muszli | Samej twardej muszli |
| Jama płaszczowa | Przestrzeń o różnych funkcjach, m.in. oddechowych | Całej jamy ciała |
| Noga | Narząd mięśniowy, różnie przekształcony | Wyłącznie kończyny podobnej do nogi kręgowca |
| Radula | Aparat z rzędami ząbków | Narządu obecnego u wszystkich mięczaków |
| Krążenie otwarte | Przepływ hemolimfy także poza układem zamkniętych naczyń | Braku układu krążenia |
| Wydalanie | Usuwanie produktów metabolizmu i regulacja składu płynów | Samego usuwania niestrawionych resztek |
Zestawienie terminologiczne na podstawie źródeł anatomicznych. [2, 14, 16]
Wentylacja i krążenie w transporcie tlenu
Praca narządu oddechowego zależy nie tylko od jego powierzchni, lecz także od sposobu przepływu wody. Pokazuje to doświadczenie M. J. Wellsa i J. Wells na Octopus vulgaris. Przy obniżaniu ciśnienia parcjalnego tlenu w wodzie z 18,6 do 6,7 kPa impuls ciśnienia napędzający wentylację jamy płaszczowej mógł wzrosnąć ponad dwukrotnie, podczas gdy częstość ruchów wentylacyjnych zwiększała się najwyżej o kilka procent. Zmiany ustępowały po przywróceniu warunków wyjściowych. Przecięcie odpowiednich nerwów znosiło reakcję wentylacyjną, co wskazywało na udział połączeń między skrzelami a mózgiem. Zmiany pracy serca miały częściowo odmienną kontrolę. To wynik dotyczący konkretnego gatunku i warunków doświadczenia, a nie uniwersalny próg tolerancji głowonogów. [21]
Wniosek porównawczy jest istotny: sama liczba oddechów albo uderzeń serca nie opisuje wydolności całego układu. Dwa osobniki mogą wykonywać podobną liczbę ruchów oddechowych, lecz przemieszczać różne objętości wody. Przy interpretacji pomiarów należy więc wskazać, czy badano częstość, ciśnienie napędzające przepływ, objętość przepływu czy rzeczywisty pobór tlenu. To odrębne wielkości, których nie można zastępować jednym wskaźnikiem „aktywności”.
Równie ważny jest wyjątek anatomiczny: nie każdy morski mięczak pobiera tlen za pomocą skrzeli. Łódkonogi nie mają tych narządów. Jak opisuje Museum of New Zealand Te Papa Tongarewa, wymiana gazowa zachodzi przez powierzchnię jamy płaszczowej, do której woda wpływa i z której wypływa tylnym otworem rurkowatej muszli. Zwierzę pozostaje przy tym zagrzebane w osadzie. Wspólną funkcję oddechową mogą więc realizować odmienne powierzchnie ciała. Sama informacja o morskim środowisku życia nie pozwala odtworzyć anatomii układu oddechowego. [22]
Znaczenie ma także to, jak łatwo barwnik oddechowy wiąże tlen i oddaje go tkankom. Oellermann i współautorzy porównali hemocyjaninę trzech ośmiornic: antarktycznej Pareledone charcoti, australijskiej Octopus pallidus i śródziemnomorskiej Eledone moschata. U pierwszej stwierdzili właściwości sprzyjające zaopatrzeniu organizmu w tlen w zimnie: mniejsze powinowactwo barwnika do tlenu oraz większą pojemność tlenową niż u badanych gatunków z cieplejszych wód. W temperaturze 0°C oddawanie tlenu przez hemocyjaninę nadal było ograniczone; udział miał również tlen rozpuszczony w płynie. Nie wystarcza zatem informacja, że białko „dobrze wiąże tlen”. Musi ono działać w obu kierunkach. Zbyt mocne związanie tlenu może utrudniać jego uwalnianie tam, gdzie jest potrzebny. Wynik porównania tych trzech gatunków nie wyznacza tolerancji cieplnej wszystkich ośmiornic. [23]
Barwniki oddechowe nie są jednakowe
Wyrazisty wyjątek od skojarzenia mięczaków z hemocyjaniną stanowi słodkowodny ślimak Biomphalaria glabrata. Lieb i współautorzy zbadali jego dużą, zewnątrzkomórkową hemoglobinę, wykorzystując sekwencje kodującego ją RNA oraz mikroskopię elektronową. Analiza wskazała na pochodzenie tego białka od mioglobiny. Hemoglobina ślimaka nie jest po prostu kopią hemoglobiny człowieka: ma odmienną organizację wielodomenowych podjednostek i funkcjonuje w innym kontekście anatomicznym. Ten przykład pozwala rozdzielić trzy pytania: jakie białko transportuje tlen, jak jest zbudowane oraz w jakim płynie lub komórkach występuje. Sam czerwony albo niebieskawy kolor nie odpowiada na wszystkie te pytania. [24]
Skrzela uczestniczą także w regulacji chemicznej
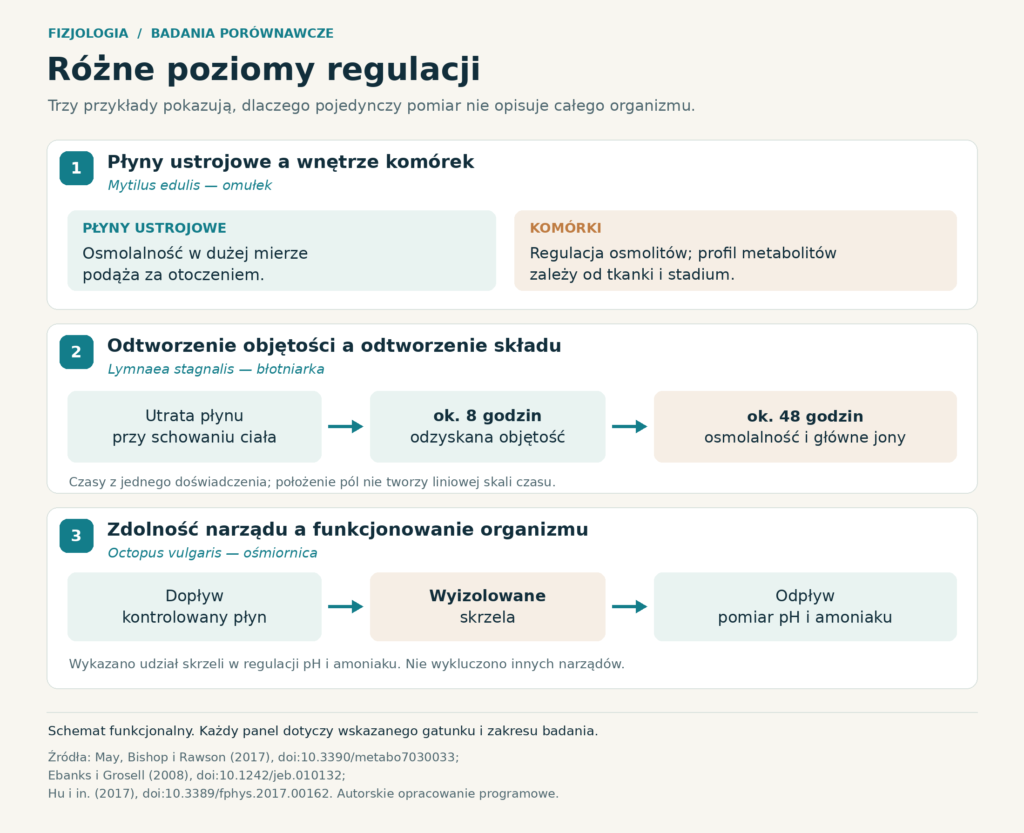
W badaniu Hu i współautorów przepuszczano płyn o kontrolowanym składzie przez wyizolowane skrzela Octopus vulgaris. Takie doświadczenie, nazywane perfuzją, pozwala porównać skład płynu przed przejściem przez narząd i po nim. Skrzela wykazywały zdolność regulowania pH oraz transportu amoniaku, a badania komórek ujawniły obecność białek uczestniczących w przenoszeniu jonów. Wyniki wspierały związek między wydalaniem związków azotu a równowagą kwasowo-zasadową. Nie dowodziły, że inne narządy są zbędne: autorzy wskazali również wyrostki nerkowe i struktury związane z sercami skrzelowymi jako potencjalnych uczestników tych procesów. Perfuzja pokazuje zdolność badanego narządu; nie odtwarza całej współpracy narządów żywego zwierzęcia. [25]
U badanych omułków Thomsen i współautorzy uzyskali inny, uzupełniający obraz. Białko Rh związane z transportem amoniaku występowało szczególnie obficie w błonach komórek narządu pofałdowanego, wcześniej opisywanego przede wszystkim jako oddechowy. Hamowanie ruchu rzęsek oraz zwiększenie lepkości wody zmniejszały wydalanie amoniaku. Wyniki wspierały model, w którym przepływ wody zapobiega nagromadzeniu związku przy powierzchni nabłonka i ułatwia jego usuwanie. Oznacza to, że ruch wody wykorzystywany przy pobieraniu pokarmu może zarazem wspierać wydalanie. Nie należy jednak rozciągać tego mechanizmu na wszystkie małże ani utożsamiać go z usuwaniem kału. [26]
Zasolenie a regulacja płynów i komórek
Osmokonformizm oznacza, że osmolalność płynów ciała w znacznym stopniu podąża za osmolalnością otoczenia. Nie oznacza zupełnego braku regulacji wewnątrz komórek. U Mytilus edulis badano związki drobnocząsteczkowe uczestniczące w równowadze osmotycznej, między innymi wolne aminokwasy. May, Bishop i Rawson wykorzystali spektroskopię magnetycznego rezonansu jądrowego do porównania profili metabolitów różnych stadiów oraz skrzeli, płaszcza i mięśnia zwieracza osobników młodocianych. Wykazali różnice zależne od tkanki i etapu życia. Z tego powodu wynik uzyskany dla jednego fragmentu ciała nie musi reprezentować odpowiedzi całego zwierzęcia. Podobnie stwierdzenie, że gatunek toleruje obniżone zasolenie, nie oznacza, że nie zachodzą w nim zmiany biochemiczne. [27]
Odrębny problem pokazuje doświadczenie na słodkowodnej błotniarce Lymnaea stagnalis. Głębokiemu schowaniu ciała do muszli może towarzyszyć utrata znacznej części płynu pozakomórkowego. Ebanks i Grosell prześledzili jego odtwarzanie po takiej utracie. Objętość została odzyskana w ciągu około 8 godzin, natomiast osmolalność i stężenia głównych badanych jonów wracały do stanu wyjściowego w ciągu około 48 godzin; towarzyszyło temu zwiększone pobieranie sodu z wody. Odtworzenie objętości nie było więc równoznaczne z natychmiastowym odtworzeniem składu. Liczby opisują przebieg konkretnego doświadczenia, a nie zalecane czasy rekonwalescencji ani stałą właściwość każdego słodkowodnego ślimaka. [28]
Tabela 4. Cztery pytania, które należy rozdzielać w fizjologii mięczaków
| Badany proces | Przykładowy pomiar | Co dodatkowo trzeba ustalić |
|---|---|---|
| Wentylacja | Częstość ruchów płaszcza | Wielkość przepływu wody [21] |
| Transport tlenu | Powinowactwo hemocyjaniny | Zdolność oddawania tlenu tkankom [23] |
| Równowaga osmotyczna | Skład metabolitów tkanki | Której tkanki i stadium dotyczy wynik [27] |
| Odtwarzanie płynu | Odzyskana objętość | Stężenia jonów i osmolalność [28] |
Rozdział 5Biomechanika ruchu i pomiar sił
Biomechanika ruchu mięczaków
Opis narządu ruchu odpowiada na pytanie, czym zwierzę się porusza. Biomechanika pyta dodatkowo, gdzie powstaje siła, na co jest przekazywana i jak zmienia się podczas kolejnych faz ruchu. Przy czytaniu takich badań warto rozdzielać trzy poziomy: kinematykę, czyli położenia i prędkości; mechanikę, czyli siły, odkształcenia i przepływy; oraz energetykę całego organizmu. Wynik z jednego poziomu nie zastępuje pomiaru na pozostałych. To ramy interpretacji, a nie dodatkowy wynik eksperymentalny.
Takie rozróżnienie chroni przed pozornie precyzyjnymi porównaniami. Zwierzę może wytwarzać większą siłę, nie osiągając większej prędkości, jeżeli jednocześnie pokonuje większy opór. Podobnie zmniejszenie pracy potrzebnej do przesunięcia przedmiotu nie określa automatycznie ilości energii zużytej przez cały układ napędowy. W dalszych przykładach nazwa gatunku, warunki doświadczenia i definicja mierzonej wielkości są częścią wyniku, a nie dodatkiem redakcyjnym.
Stopa ślimaka jako układ współpracujących stref
Lai i współpracownicy badali kinematykę czterech lądowych gatunków, wymienionych w pracy jako Deroceras reticulatum, Helix aspersa, Ariolimax californicus i A. buttoni. Filmowali spód stopy, a w osobnej części odtwarzali siły z przemieszczeń drobnych znaczników w sprężystym żelu. Pomiar sił obejmował mniejsze ślimaki i pomrowiki o długości 7–40 mm; nie należy przypisywać tego samego zakresu pomiarów wszystkim czterem gatunkom. [29]
Strefy między falami mięśniowymi pozostawały nieruchome względem podłoża i przekazywały siłę napędową. Przesuwające się fale stawiały mniejszy opór, natomiast obwód stopy ślizgał się wraz z ciałem. Wyniki były zgodne z miejscowym unoszeniem podeszwy podczas przejścia fali. Autorzy obliczali naprężenia z odkształceń podłoża o znanych właściwościach, dlatego ich mapa sił była rekonstrukcją opartą na modelu sprężystości. Badanie dotyczyło gładkich, płaskich powierzchni. Nie stanowi bezpośredniego pomiaru poruszania się po korze, luźnej glebie ani pionowym liściu. [29]
Zakopywanie przez zmianę właściwości otoczenia
Małż Ensis directus jest przykładem ruchu zależnego od przekształcenia podłoża. Winter, Deits i Hosoi zarejestrowali 23 cykle zakopywania trzech osobników w wąskim zbiorniku z przezroczystymi szklanymi ziarnami o średnicy 1 mm. Śledzenie przemieszczających się ziaren metodą PIV pozwoliło odtworzyć deformację otoczenia. Zbliżanie połówek muszli powodowało lokalną utratę stateczności osadu, a następnie jego upłynnienie, co zmniejszało opór dalszego zagłębiania. [30]
Upłynnienie oznacza tutaj zmianę sposobu przenoszenia obciążeń w mieszaninie wody i ziaren. Nie oznacza rozpuszczenia minerałów. Obserwacje obejmowały głębokości około połowy do jednej długości ciała; przytaczanej w publikacji zdolności do znacznie głębszego zakopywania nie zmierzono tym samym zestawem doświadczeń. Przezroczysty model umożliwił obserwację, lecz ograniczał reprezentację naturalnego, przestrzennego osadu. [30]
Rozróżnienie liczby zwierząt i liczby powtórzeń ma tu zasadnicze znaczenie. Kilka cykli tego samego osobnika dokumentuje powtarzalność zachowania w obrębie zwierzęcia. Nie dostarcza tylu niezależnych przykładów zmienności między osobnikami, ile wynosi liczba cykli. Dlatego zapis „23 obserwacje” bez informacji o trzech zwierzętach zawyżałby intuicyjnie skalę biologicznej próby.
Struga kałamarnicy widoczna dzięki znacznikom
Bartol i współpracownicy uzyskali użyteczne dane DPIV dla 40 osobników Lolliguncula brevis o grzbietowej długości płaszcza 3,3–9,1 cm. Z 248 sekwencji strug wybrali 59 do szczegółowej analizy. W tunelu wodnym filmowano oświetlone laserem drobiny, których przemieszczenia pozwalały obliczyć pole prędkości wody. [31]
Rozpoznano dwa dominujące warianty: oddzielny pierścień wirowy oraz pierścień odrywający się od dłuższej strugi. Drugi zapewniał większą uśrednioną siłę ciągu, pierwszy miał wyższą sprawność napędową określoną z ruchu wody. W badanym zakresie nie stwierdzono prostego przyporządkowania każdego wariantu do określonej prędkości pływania. Nie jest to zatem podział na „wolny” i „szybki bieg”. Oszacowana sprawność dotyczyła hydrodynamiki napędu, a nie całkowitego kosztu metabolicznego kałamarnicy. [31]
Tabela 5. Co rzeczywiście mierzą metody biomechaniczne
| Metoda i przykład | Sygnał poddawany analizie | Wynik wymagający obliczeń | Granica interpretacji |
|---|---|---|---|
| Rekonstrukcja naprężeń pod stopą [29] | Przesunięcia znaczników w żelu | Rozkład sił stycznych | Wymaga właściwości sprężystych podłoża |
| PIV osadu przy Ensis [30] | Ruch widocznych ziaren | Deformacja i obszar upłynnienia | Model osadu o ograniczonej geometrii |
| DPIV strugi Lolliguncula [31] | Przesunięcia drobin w wodzie | Pole prędkości oraz parametry napędu | Nie mierzy zużycia tlenu |
Zestawienie nie ustanawia rankingu metod. Każda odpowiada na inne pytanie. Można bardzo dokładnie zmierzyć przemieszczenie, a nadal nie znać siły, jeśli brakuje charakterystyki odkształcanego materiału. Można też poprawnie obliczyć parametr mechaniczny dla wybranego modelu, lecz zbyt szeroko uogólnić go na inne powierzchnie, rozmiary zwierząt lub zachowania. Profesjonalna interpretacja sprawdza oba ogniwa: poprawność pomiaru i zakres wniosku.
W doświadczeniu z kałamarnicami do szczegółowej analizy przyjmowano sekwencje, w których płaszczyzna lasera prawidłowo przecinała strugę, a zwierzę utrzymywało ustalone pływanie. Taka selekcja była potrzebna do obliczeń, ale zawężała opisywane zachowanie. Rekonstrukcja strugi podczas stabilnego ruchu nie obejmuje automatycznie każdego gwałtownego manewru. [31]
Oddzielnego namysłu wymaga uśrednianie. Średnia siła w całym cyklu nie jest siłą maksymalną podczas jego krótkiego fragmentu. Dwa przebiegi mogą mieć taką samą średnią, choć jeden zawiera krótki silny impuls, a drugi słabsze, dłuższe działanie. Dlatego przy porównywaniu napędów należy sprawdzić, czy autorzy podają szczyt, średnią czy sumaryczny efekt cyklu. To różne odpowiedzi na różne pytania, nawet jeśli wszystkie zapisano w podobnie wyglądającej tabeli.
RoboClam jako test przeniesienia mechanizmu
W kolejnym badaniu Wintera i współpracowników mechanizm lokalnego upłynniania odtworzono w urządzeniu RoboClam. Sekwencje ruchu dobierano z użyciem algorytmu genetycznego. Próby obejmowały zarówno szklane ziarna, jak i naturalny spoisty osad strefy pływowej. Przy odpowiedniej sekwencji ruchów energia zagłębiania rosła w przybliżeniu liniowo z głębokością; autorzy porównywali to z kwadratową zależnością dla wciskania obiektu przez statyczny grunt. [32]
Energię wyznaczano z sił i przemieszczeń siłowników, uwzględniając straty mechaniczne oraz zmiany energii potencjalnej, aby wydzielić pracę deformowania podłoża. Nie był to pomiar całkowitego zużycia energii dowolnej przyszłej koparki. Sukces prototypu potwierdzał możliwość wykorzystania mechanizmu w sprawdzonych warunkach, a nie jednakową skuteczność we wszystkich gruntach. [32]
Rozdział 6Muszla jako wytwór biologiczny
Materiał i wzrost
Muszla jest materiałem złożonym z części mineralnej i organicznej. Węglan wapnia może występować w różnych postaciach krystalicznych, między innymi jako aragonit i kalcyt. Rozmieszczenie kryształów, skład substancji organicznych oraz organizacja warstw wpływają na właściwości mechaniczne. Nie każda muszla ma identyczną budowę, a nie każda zawiera warstwę perłową. [33]
Badania nad perłopławem Pinctada fucata wykazały znaczenie białka Pif w formowaniu masy perłowej. Połączenie obserwacji jego rozmieszczenia z eksperymentami ograniczającymi ekspresję genu i badaniami krystalizacji wspierało wniosek o aktywnej biologicznej kontroli tego procesu. Muszla nie powstaje więc jak przypadkowy osad kamienia na przedmiocie zanurzonym w wodzie. Jej tworzenie jest regulowane przez organizm. [34]
Wzrost polega na dodawaniu materiału w określonych obszarach. Badania nabłonka płaszcza ślimaków łączą sposób namnażania i ułożenia komórek ze zmianami kształtu muszli. W praktyce oznacza to, że spiralny kształt nie daje się wyjaśnić samym stwierdzeniem „muszla rośnie”. Ważne są kierunek, tempo i nierównomierność przyrostu. Matematyczny model spirali może porządkować obserwacje, ale nie zastępuje biologii wzrostu. [35]
Ochrona ma koszt i nie jest jedyną strategią
Duża zewnętrzna muszla może chronić ciało, lecz wpływa także na przestrzeń, którą zwierzę może zajmować, oraz sposób ruchu. Linie o muszli zredukowanej lub utraconej wykorzystują inne cechy, między innymi ukrywanie się, mobilność i mechanizmy obronne. Nie oznacza to, że „rezygnacja z muszli” była jednym wydarzeniem wspólnym dla wszystkich nagich form. Podobny stan zewnętrzny mógł pojawiać się w różnych liniach ewolucyjnych. [33, 7]
Przy analizie muszli trzeba odróżnić stan żywego zwierzęcia od zmian po śmierci. Przebarwienie, otarcie, pęknięcie lub częściowe rozpuszczenie muszli znalezionej na brzegu może powstać na różnych etapach jej historii. Sam ślad nie identyfikuje automatycznie drapieżnika ani przyczyny śmierci. Rzetelne wnioskowanie wymaga kontekstu: miejsca znalezienia, stanu zachowania, porównania z innymi okazami i wiedzy o gatunku.
Czy pierścienie muszli pozwalają określić wiek
U niektórych małży przyrosty muszli są wykorzystywane w sklerochronologii, czyli badaniu czasu zapisanego w twardych strukturach organizmów. Zespół Bangor University wykorzystuje muszle Arctica islandica do rekonstrukcji warunków środowiskowych. Nie jest to jednak proste liczenie każdej widocznej kreski na dowolnej muszli: interpretacja wymaga rozpoznania charakteru przyrostów i odpowiedniej metody. [36]
Jednemu z badanych osobników Arctica islandica przypisano wiek 507 lat po ponownej analizie. To dobrze udokumentowany przykład długowieczności konkretnego osobnika, a nie przeciętna długość życia wszystkich małży. Przenoszenie rekordu na całą grupę zaciera różnice między gatunkami i warunkami środowiska. [37]
Warunki przy powierzchni wzrostu muszli
Tworzenie muszli zachodzi w lokalnym środowisku, którego właściwości nie muszą być identyczne z właściwościami otaczającej wody. Ramesh i współautorzy zastosowali mikroelektrody do pomiarów pod rosnącą muszlą larw Mytilus edulis. Wykazali podwyższanie pH i stężenia jonów węglanowych, związane z około półtorakrotnym zwiększeniem stopnia nasycenia aragonitem względem otoczenia. Przy zakwaszeniu środowiska parametry w miejscu mineralizacji pogarszały się, a wzrost muszli malał. Biologiczna kontrola chemii nie oznaczała więc pełnego odizolowania procesu od warunków zewnętrznych. Badanie dotyczyło pierwszej muszli larwalnej; nie uzasadnia założenia, że dorosłe małże regulują przestrzeń mineralizacji identycznie. [38]
Warto rozdzielić możliwość chemiczną od rzeczywistego tempa budowy. Parametr nasycenia opisuje warunki reakcji mineralnej, natomiast przyrost muszli jest wynikiem działania organizmu w tych warunkach. Podanie samego pH nie zastępuje pomiarów wzrostu, a obecność muszli nie dowodzi, że jej budowa przebiega bez kosztu lub ograniczeń. To wniosek o sposobie odczytywania danych, nie dodatkowa liczba przypisywana doświadczeniu.
Naprawa muszli jako doświadczenie biologiczne
Uszkodzenie muszli pozwala badać, jak żywy płaszcz uruchamia proces odbudowy. Yarra i współautorzy analizowali ekspresję genów u dorosłych Mytilus edulis, porównując stronę z eksperymentalnym uszkodzeniem ze stroną nieuszkodzoną tego samego osobnika. Taki układ ogranicza wpływ naturalnych różnic pomiędzy zwierzętami. W trakcie naprawy zmieniała się aktywność licznych transkryptów, w tym kandydatów związanych z sygnalizacją, gospodarką wapniem i tworzeniem muszli. Słowo „kandydat” jest tu potrzebne: większa ilość RNA po uszkodzeniu wskazuje na związek z odpowiedzią, ale sama nie dowodzi bezpośredniej funkcji białka w krystalizacji. Badanie transkryptomu pomaga wybrać cele kolejnych doświadczeń funkcjonalnych. Nie dostarcza jeszcze kompletnej instrukcji odtworzenia muszli w laboratorium. [39]
Takie rozróżnienie ma znaczenie przy analizowaniu doniesień o „genie muszli”. Pomiar ilości RNA opisuje aktywność transkrypcyjną, wykrycie białka wskazuje jego obecność, a zmiana przebiegu mineralizacji po kontrolowanej ingerencji może testować jego udział przyczynowy. To różne etapy sprawdzania mechanizmu; każdy wymaga odpowiednio zaplanowanego doświadczenia. [39]
Znaczenie granic między składnikami masy perłowej
Gim i współautorzy połączyli mikroskopię elektronową z kontrolowanym wciskaniem sondy w masę perłową Pinna nobilis. Obserwowali, jak pod naciskiem zmieniają się nanostruktury, a sąsiednie płytki mineralne zbliżają się i współpracują mechanicznie. Granice organiczne ograniczały rozchodzenie się pęknięć; część odkształceń ustępowała po zdjęciu obciążenia. To eksperymentalne uzasadnienie, dlaczego skład chemiczny nie wystarcza do przewidzenia zachowania muszli. Istotne są rozmieszczenie składników i sposób przekazywania sił między nimi. Wyniki uzyskano dla przygotowanych próbek i określonego kierunku obciążenia; nie są dowodem, że cała muszla wytrzyma dowolne uderzenie. Odwracalne odkształcenie materiału należy również odróżniać od biologicznej naprawy pęknięcia przez żywy płaszcz. [40]
Ząb raduli nie jest jednorodnym kawałkiem minerału
U chitona Cryptochiton stelleri mocno zmineralizowana główka zęba jest połączona z bardziej podatnymi częściami aparatu. Stegbauer i współautorzy zbadali strukturę podporową zęba, określaną jako stylus, przy użyciu metod spektroskopowych czułych na formy występowania żelaza. Wykryli w niej santabarbarait, amorficzny hydroksyfosforan żelaza, oraz przestrzenne zróżnicowanie właściwości mechanicznych. W całym zębie występują także inne fazy mineralne, między innymi magnetyt w warstwie główki. Taka budowa łączy element odporny na zużycie z częścią przenoszącą obciążenia na giętką radulę. Odkrycie dotyczy określonego gatunku i obszaru zęba; nie oznacza, że wszystkie zęby wszystkich mięczaków mają ten sam zestaw minerałów. [41]
Inny przykład stanowi Patella vulgata. Barber, Lu i Pugno wycięli niewielkie próbki materiału zębów i badali ich rozciąganie metodą wykorzystującą mikroskopię sił atomowych. Uzyskali wytrzymałość 3,0–6,5 GPa, wiązaną z obecnością wzmacniających nanowłókien getytu. Jest to wielkość określająca naprężenie przy zniszczeniu badanej próbki. Nie opisuje siły nacisku całego zwierzęcia ani odporności zęba na każdy sposób obciążenia. Zamiast hasła „ślimak ma niezniszczalne zęby” właściwe jest podanie materiału, metody i rodzaju wytrzymałości. To właśnie te szczegóły pozwalają porównywać wynik z innymi biomateriałami. [42]
Tabela 6. Właściwości mechaniczne, których nie należy utożsamiać
| Właściwość | Pytanie pomiarowe | Znaczenie w opisie mięczaków |
|---|---|---|
| Twardość | Jak materiał opiera się miejscowemu wciskaniu? | Dotyczy określonego miejsca i metody badania zęba [41] |
| Sztywność | Jak mocno odkształca się pod obciążeniem? | Może zmieniać się między częściami jednego zęba [41] |
| Wytrzymałość na rozciąganie | Przy jakim naprężeniu próbka ulega zniszczeniu? | Wartości w GPa nie są siłą całego aparatu pokarmowego [42] |
| Odwracalność odkształcenia | Czy struktura odzyskuje kształt po odciążeniu? | Nie jest tym samym co biologiczna regeneracja [40] |
Rozdział 7Ślimaki na lądzie i w wodzie
Ślimaki są najbardziej zróżnicowaną gatunkowo klasą mięczaków. Zajmują środowiska morskie, słodkowodne i lądowe. W obrębie tej samej klasy spotykamy formy z dużą muszlą, formy o muszli czapeczkowatej oraz ślimaki nagie. Podział na „ślimaki z domkiem” i „ślimaki bez domku” jest wygodny w codziennej obserwacji, ale nie oddaje pełnego pokrewieństwa. [3]
Torsja nie jest skręcaniem muszli
Torsja oznacza reorganizację położenia części ciała podczas rozwoju ślimaka. Klasyczny opis mówi o obrocie o około 180 stopni względem układu głowy i nogi. Spiralne zwijanie muszli jest odrębnym procesem. Z tego powodu ślimak o muszli niespiralnej nadal może należeć do linii, w której rozwój jest związany z torsją. [43, 44]
Mechanizmy rozwojowe nie są jednak identyczne u wszystkich ślimaków. Badania Nipponacmea fuscoviridis powiązały torsję z asymetrycznym namnażaniem komórek nabłonka płaszcza i sygnalizacją TGF-β. Wynik dotyczy badanego gatunku i konkretnego doświadczenia. W podręcznikowym uogólnieniu warto zachować prostotę opisu, ale nie przedstawiać jednego mechanizmu jako udowodnionego dla wszystkich Gastropoda. [43]
Woda jako warunek życia na lądzie
Ślimaki lądowe muszą utrzymywać funkcjonowanie miękkich tkanek w środowisku, w którym utrata wody może ograniczać aktywność. Obserwacje należy dlatego interpretować w związku z wilgotnością, temperaturą i dostępnością schronień. Brak ślimaków widocznych w upalny dzień nie jest wystarczającym dowodem ich nieobecności na danym stanowisku. Może oznaczać tylko zmianę aktywności lub miejsca przebywania. [45]
W praktyce terenowej liczy się nie tylko roślinność, lecz także mikrośrodowisko: ściółka, przestrzenie pod martwym drewnem, wilgotne zakamarki i struktura podłoża. Opis „las” albo „łąka” bywa zbyt ogólny, aby wyjaśnić obecność gatunku. Dobrze udokumentowana obserwacja powinna wskazywać warunki w bezpośrednim otoczeniu zwierzęcia, zamiast ograniczać się do nazwy miejscowości.
Dieta i znaczenie gospodarcze
Nie każdy ślimak w ogrodzie oznacza to samo oddziaływanie na uprawy. Gatunki różnią się pokarmem, aktywnością i wyborem siedliska. Uogólnienie wszystkich ślimaków do kategorii szkodników usuwa z obrazu te, które żywią się innymi zasobami lub są ważnymi elementami naturalnych zespołów. Ocenę wpływu na rośliny należy wiązać z rozpoznaniem organizmu i obserwacją szkód, a nie jedynie z obecnością śluzu. [3, 16]
W skali całej klasy roślinożerność jest tylko jedną z możliwości. Morskie stożki pokazują odmienną strategię: aktywne polowanie z użyciem wyspecjalizowanego aparatu jadowego. Dla czytelnika najważniejszy jest wniosek porównawczy: wspólny plan budowy może zostać przekształcony w bardzo różne narzędzia zdobywania pokarmu. [16]
Rozdział 8Małże i znaczenie filtracji
Małże mają dwie połówki muszli połączone po stronie grzbietowej. Brak wyraźnej głowy i raduli wiąże się u wielu gatunków z pobieraniem drobnego pokarmu z przepływającej wody. Muszla jest wytwarzana przez płaszcz, a skrzela mogą uczestniczyć zarówno w wymianie gazowej, jak i wychwytywaniu cząstek. W obrębie klasy istnieją odstępstwa od typowej filtracji, dlatego należy mówić o wielu lub większości małży, nie o wszystkich bez wyjątku. [9, 20]
Co dzieje się z cząstkami zatrzymanymi z wody
Filtracja nie oznacza, że wszystko pobrane z wody zostaje strawione. Część materiału jest kierowana do przewodu pokarmowego, część może zostać odrzucona przed połknięciem, a pozostałości trafiają do osadów. Materia jest także wbudowywana w tkanki i muszlę lub uwalniana w innych postaciach. Małż zmienia więc przepływ materii pomiędzy tonią wodną, organizmami i dnem. [46]
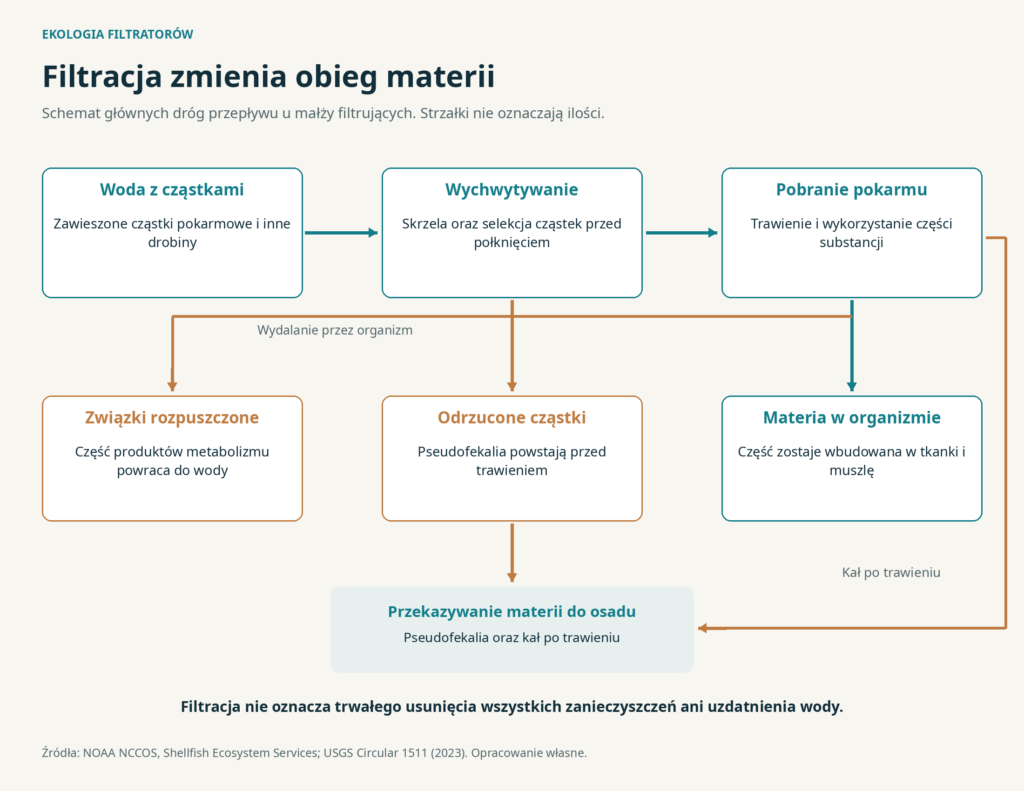
Ta zależność tłumaczy, dlaczego małże bywają określane jako inżynierowie ekosystemów. Ich aktywność wpływa na otoczenie innych organizmów, a zgrupowania i muszle tworzą dodatkową strukturę siedliska. W rzekach ochrona rodzimych małży może więc dotyczyć zarazem zachowania procesów ekologicznych, których nie widać w samym spisie gatunków. [47]
Dlaczego nie podajemy jednej wydajności filtracji
Informacja, że pojedyncza ostryga może w określonych warunkach filtrować dużą objętość wody, nie uprawnia do prostego mnożenia tej wartości przez liczbę wszystkich małży w zatoce. Znaczenie mają wielkość i kondycja zwierzęcia, temperatura, dostępność cząstek, natlenienie oraz ruch wody. Także wielokrotne przepływanie tej samej wody przez zgrupowanie nie jest równoważne oczyszczeniu kolejnej, całkowicie nowej objętości. [48]
Dobra ocena ekologiczna pyta o bilans w konkretnym miejscu: jakie cząstki są usuwane z toni, co trafia do osadu, co zostaje wyniesione wraz ze zbiorem biomasy i jak zmienia się dostępność tlenu przy dnie. Zbyt duże zagęszczenie hodowli przy słabej wymianie wody może zwiększać nagromadzenie materii organicznej. Korzyści z filtracji trzeba więc oceniać razem z lokalnymi warunkami. [46]
Rafy i zgrupowania
Rafy ostrygowe zapewniają kryjówki i miejsca żerowania różnym zwierzętom. W odpowiednim położeniu mogą również ograniczać energię fal i lokalną erozję. Zakres tych korzyści zależy od budowy i położenia rafy; nie jest obietnicą całkowitej ochrony wybrzeża przed zalaniem. Przywracanie rodzimych ostryg ma sens jako część zarządzania siedliskiem, z uwzględnieniem jakości wody i procesów zachodzących w całym estuarium. [48]
Rozdział 9Głowonogi i złożone zachowania
Ośmiornice, kałamarnice, mątwy i łodziki są morskimi mięczakami. Typowa ośmiornica ma osiem ramion; kałamarnice i mątwy mają osiem ramion oraz dwa dodatkowe, wyspecjalizowane czułki chwytne. Łodziki odmiennie organizują aparat okołogębowy i zachowują zewnętrzną muszlę. U mątw i wielu kałamarnic struktura muszlowa jest wewnętrzna, a u wielu ośmiornic silnie zredukowana lub utracona. [17]
Ruch i kontrola ramion
Mięśniowy płaszcz może wypychać wodę przez lejek, wytwarzając odrzut. Nie jest to jednak jedyny sposób przemieszczania się. Ośmiornice poruszające się po dnie szeroko wykorzystują ramiona, a płetwy wielu głowonogów uczestniczą w manewrowaniu. Woda nie jest tylko tłem ruchu; stanowi ośrodek, z którym współpracują kształt ciała i układ mięśniowy. [4]
Badanie opublikowane w 2025 r. w „Nature Communications” wykazało uporządkowaną, odcinkową organizację komórek nerwowych w osiowych sznurach nerwowych ramion. Porównanie z kałamarnicami wskazało związek tej organizacji z elastycznymi ramionami wyposażonymi w przyssawki. To przykład, jak współczesna anatomia odsłania strukturę układu, którego złożoności nie oddaje opis „miękka kończyna”. [49]
Popularne hasło o „dziewięciu mózgach ośmiornicy” bywa skrótem odnoszącym się do rozbudowanej kontroli obwodowej. W artykule naukowym lepiej wyjaśnić współdziałanie ośrodkowego układu nerwowego z sieciami w ramionach, niż traktować każde ramię jak niezależnego osobnika. Rozproszenie przetwarzania informacji nie oznacza braku koordynacji całego zwierzęcia. [49]
Zmiana wyglądu
U wielu głowonogów chromatofory, czyli struktury zawierające barwnik, mogą szybko zmieniać widoczny wzór. W wyglądzie skóry uczestniczą też elementy odbijające i rozpraszające światło. Rezultat służy między innymi kamuflażowi i komunikacji. Nie jest to działanie pojedynczego „pigmentu dopasowującego się do tła”, lecz współpraca kilku mechanizmów. [50]
Jak badać zdolności poznawcze bez sensacji
W doświadczeniu Schnell i współautorów z 2021 r. sześć mątw Sepia officinalis ukończyło testy odraczania nagrody. Maksymalne tolerowane opóźnienia uzyskania preferowanego pokarmu u poszczególnych osobników wynosiły 50–130 sekund. Badanie dostarcza dowodu na określone zdolności w zdefiniowanym zadaniu laboratoryjnym. Nie stanowi uniwersalnego „testu IQ” ani podstawy do określania wieku dziecka, któremu miałaby odpowiadać inteligencja mątwy. [51]
Przy ocenie takich wyników należy sprawdzać, czego zwierzę miało się nauczyć, jak mierzono sukces, ile osobników przebadano i jakie alternatywne wyjaśnienia kontrolowano. To podejście pozwala docenić możliwości głowonogów bez przypisywania im dowolnych ludzkich intencji. Sam imponujący film z zachowaniem zwierzęcia jest początkiem pytania badawczego, nie jego rozstrzygnięciem.
Rozdział 10Zmysły i przetwarzanie informacji
Chemiczne rozpoznawanie przez kontakt
U Octopus bimaculoides przyssawki są miejscem odbierania informacji mechanicznej i chemicznej. Van Giesen i współautorzy wyodrębnili komórki reagujące na odkształcenie oraz inne, reagujące na substancje pochodzące od potencjalnej zdobyczy. Połączyli pomiary elektryczne komórek, analizę ekspresji genów, badanie receptorów w komórkach laboratoryjnych i obserwacje zachowania. Zidentyfikowane receptory chemotaktylne tworzyły kanały jonowe i reagowały między innymi na słabo rozpuszczalne związki naturalne. Określenie „smakowanie dotykiem” opisuje więc konkretną drogę wykrywania bodźców związanych z powierzchnią, z którą styka się ramię. Nie oznacza, że każde dotknięcie jest przeżyciem smakowym podobnym do ludzkiego. [52]
Siła tego doświadczenia polega na połączeniu poziomów analizy. Samo znalezienie genu nie pokazywałoby jeszcze funkcji receptora. Sama zmiana zachowania nie identyfikowałaby białka odpowiedzialnego za odpowiedź. Zestawienie obu rodzajów danych pozwala powiązać cząsteczkę, komórkę i działanie zwierzęcia. Nadal pozostaje różnica między mechanizmem odbioru bodźca a pełnym wyjaśnieniem wyboru zachowania w naturalnym środowisku. [52]
Optyka przegrzebka
Różnorodność zmysłów mięczaków dobrze ilustrują oczy przegrzebków. Palmer i współautorzy wykazali, jak ich wklęsłe, wielowarstwowe zwierciadło tworzy obrazy. Powierzchnię odbijającą buduje uporządkowana mozaika kryształów guaniny, a układ kieruje światło na dwuwarstwową siatkówkę. Ważna jest zarówno geometria całej struktury, jak i ułożenie jej mikroskopijnych elementów. Główna rola zwierciadła odróżnia tę optykę od intuicyjnego wyobrażenia aparatu fotograficznego, w którym obraz ogniskuje przede wszystkim soczewka. Nie wynika z tego, że w oku przegrzebka nie występuje żaden element soczewkowy. Nie należy też przeliczać liczby jego oczu na „jakość widzenia”: liczba narządów, ostrość obrazu i wykorzystanie informacji są różnymi cechami. [53]
Światłoczułość skóry a widzenie obrazu
Ramirez i Oakley wykazali, że wyizolowane fragmenty skóry Octopus bimaculoides reagowały na oświetlenie rozszerzeniem chromatoforów. Zjawisko nazwali LACE. Zlokalizowali również białko r-opsynę w komórkach czuciowych skóry, a zależność odpowiedzi od długości fali była zgodna z udziałem tego typu fotorecepcji. Doświadczenie wspiera istnienie miejscowej światłoczułości niezależnej od oczu. Nie sprawdzało jednak tworzenia obrazu przestrzennego przez skórę ani rozpoznawania nią złożonych scen. Teza „skóra reaguje na światło” ma zatem inny zakres niż hasło „ośmiornica widzi całym ciałem”. Udział takiej reakcji w pełnym kamuflażu żywego zwierzęcia wymaga odrębnego zbadania; autorzy przedstawili go jako możliwość, a nie zamknięte wyjaśnienie. [54]
Statocysty i odbieranie drgań
Dźwięk pod wodą obejmuje zmiany ciśnienia oraz ruch cząstek ośrodka. W badaniu kałamarnicy określanej w publikacji jako Loligo pealeii Mooney i współautorzy mierzyli potencjały wywołane w pobliżu statocyst, używając bodźców akustycznych i mechanicznego przyspieszania. Rejestrowali odpowiedzi w zakresie 30–500 Hz, z najniższymi progami pomiędzy 100 a 200 Hz. Wyniki wskazywały na odbieranie ruchu cząstek i działanie statocysty jako czujnika przyspieszenia. To pomiar odpowiedzi układu nerwowego badanego gatunku, a nie bezpośrednia rekonstrukcja jego subiektywnego doświadczenia. Przy porównywaniu takich badań trzeba uwzględnić składową bodźca i akustykę zbiornika: samo podanie poziomu ciśnienia nie opisuje w pełni ruchu wody oddziałującego na zwierzę. [55]
Tabela 7. Co faktycznie wykazują wybrane doświadczenia nad zmysłami
| Układ i materiał | Bezpośredni wynik | Pytanie wymagające dalszych danych |
|---|---|---|
| Przyssawki ośmiornicy | Odpowiedzi komórek na bodźce mechaniczne i chemiczne [52] | Jak sygnały współtworzą wybór zdobyczy w naturze? |
| Wyizolowana skóra ośmiornicy | Rozszerzanie chromatoforów pod wpływem światła [54] | Jak duży jest udział tej reakcji w kamuflażu? |
| Statocysty kałamarnicy | Potencjały wywołane ruchem cząstek [55] | Jak zwierzę wykorzystuje tę informację podczas zachowania? |
Rozdział 11Rozmnażanie i rozwój
Mięczaki nie mają jednego wspólnego cyklu życiowego. Występują wśród nich gatunki rozdzielnopłciowe oraz obojnacze, rozwój z larwą i rozwój bezpośredni, a także różne sposoby kontaktu gamet i ochrony potomstwa. Już samo to zróżnicowanie sprawia, że opis „ślimak składa jaja, z których wychodzą małe ślimaki” nie może zastąpić informacji o całym typie. [4, 56, 45]
Rozdzielnopłciowość i obojnactwo
U głowonogów występują oddzielne osobniki męskie i żeńskie. U wielu ślimaków spotyka się obojnactwo, czyli obecność męskich i żeńskich funkcji rozrodczych u jednego osobnika. Obojnactwo nie jest jednak synonimem samozapłodnienia. Możliwość wytwarzania obu rodzajów gamet nie rozstrzyga, z jakiego źródła pochodzą gamety rzeczywiście uczestniczące w zapłodnieniu. [4, 45]
Biologicznie użyteczne są więc trzy odrębne pytania: jakie narządy i gamety wytwarza osobnik, jak dochodzi do zapłodnienia oraz jak rozwija się potomstwo. Dwa gatunki określane jako obojnacze mogą różnić się zachowaniem godowym i udziałem samozapłodnienia. Z kolei gatunki rozdzielnopłciowe mogą odmiennie chronić jaja i inwestować w ich liczbę. Termin opisujący płciowość nie zastępuje całej biologii rozrodu.
Larwy morskie i osiadanie
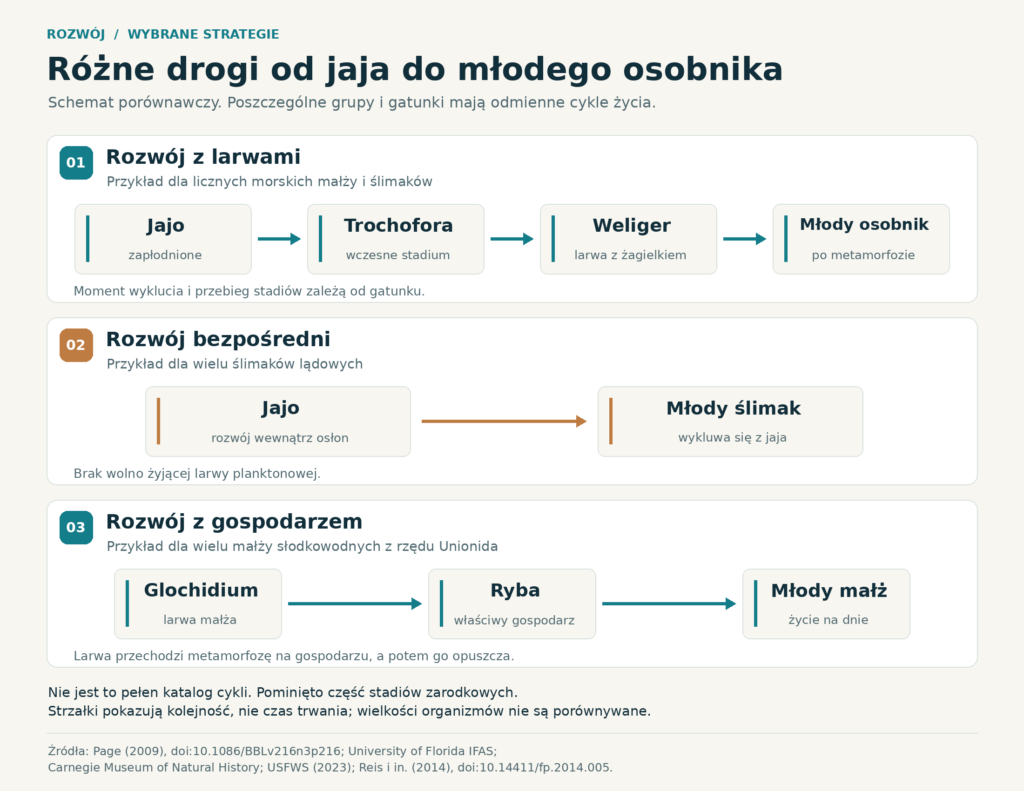
W rozwoju wielu małży morskich występują stadium trochofory, a następnie weligera. Larwa pływająca nie jest po prostu pomniejszoną postacią dorosłą: jej budowa i sposób życia odpowiadają innemu etapowi cyklu. Przejście do życia przy dnie obejmuje osiadanie i metamorfozę. W hodowli małży znajomość tych etapów jest potrzebna do zapewnienia odpowiedniego pokarmu i warunków rozwoju. [56]
Obecność larwy planktonowej tworzy możliwość rozprzestrzeniania, ale nie gwarantuje, że każde miejsce, do którego dotrze larwa, zostanie zasiedlone. Pomyślne zasiedlenie wymaga przeżycia kolejnych etapów oraz odpowiedniego podłoża i warunków. W analizie populacji warto odróżniać transport larw, ich osiadanie i rzeczywiste dołączenie młodych do populacji. To trzy różne momenty, które mogą być ograniczane przez inne czynniki.
Glochidium i zależność od ryby
U wielu słodkowodnych małży z linii Unionida larwą jest glochidium. Po opuszczeniu organizmu matki larwa przyczepia się do odpowiedniego gospodarza, najczęściej ryby, i przechodzi dalszy rozwój. Po metamorfozie młody małż rozpoczyna samodzielne życie. Ten związek łączy losy małży ze składem zespołu ryb oraz drożnością rzek. Nie jest cyklem każdego słodkowodnego małża. [57]
Istotne jest słowo „odpowiedni”. W badaniach Unio tumidiformis porównywano kontakt larw z różnymi rybami oraz pomyślność przeobrażenia. Przyczepienie się do ryby nie było tożsame z ukończeniem rozwoju. Nie wystarczy więc stwierdzić, że w rzece „są ryby”; trzeba wiedzieć, czy występują w niej gospodarze właściwi dla chronionego gatunku i czy kontakt larw z nimi jest możliwy. [58]
Programy badawcze USGS uwzględniają dlatego identyfikowanie gospodarzy, terminów rozrodu oraz sposobów kontaktu larw z rybami. Praktyczny wniosek jest szerszy: ochrona samego dorosłego małża może nie zapewnić odnowy populacji, jeśli przerwany został wcześniejszy etap cyklu. Pozornie zdrowe, długowieczne osobniki mogą nadal występować tam, gdzie od lat nie pojawiają się skutecznie nowe roczniki. [59, 47]
Rozwój bezpośredni
U wielu ślimaków lądowych z jaja wychodzi młody osobnik przypominający dorosłego, bez swobodnie pływającej larwy. Rozwój bezpośredni nie oznacza braku zmian w czasie wzrostu: narządy, muszla i zdolności rozrodcze nadal dojrzewają. Oznacza przede wszystkim odmienną organizację cyklu niż w przykładzie z larwą morską. [45]
Larwa jest etapem życia o własnej organizacji
Nazwy trochofora i weliger opisują organizację ciała w określonej fazie rozwoju. Nie oznaczają, że małż lub ślimak przechodzi przez miniaturową wersję każdego ze swoich odległych przodków. W przeglądzie porównawczym Page wskazano, że u mięczaków znaczna część struktur przyszłego osobnika młodocianego rozwija się stopniowo w obrębie larwy. Prosty model „dwóch osobnych ciał”, larwalnego i dorosłego, nie oddaje tej ciągłości. [60]
To rozróżnienie porządkuje trzy pytania, które często miesza się w popularnym opisie. Pierwsze dotyczy kształtu i narządów zwierzęcia. Drugie — sposobu zdobywania pokarmu i przemieszczania się. Trzecie — środowiska, w którym zwierzę żyje. Zmiany w tych trzech wymiarach nie muszą następować jednocześnie. Dla czytelnika praktyczną konsekwencją jest potrzeba sprawdzania, co autor konkretnego badania nazywa początkiem i końcem stadium, zamiast zakładać identyczny harmonogram dla wszystkich gatunków.
Kompetencja rozwojowa i rola sygnału środowiskowego
U wielu bezkręgowców morskich o cyklu pelagobentosowym przejście z fazy planktonowej do życia związanego z dnem wymaga osiągnięcia kompetencji do metamorfozy, czyli zdolności odpowiedzi na właściwy bodziec. Jackson i współautorzy opisali związek tego stanu z regulacją ekspresji genów, między innymi u ślimaka Haliotis asinina. Dojrzały wygląd larwy nie musi jeszcze oznaczać gotowości do pełnej odpowiedzi rozwojowej. [61]
W eksperymencie na Haliotis rufescens badano udział białka G i diacyloglicerolu w regulacji odpowiedzi larw na bodźce wywołujące osiedlenie i metamorfozę. Wynik pokazał, że reakcja na sygnał z otoczenia może zależeć od wewnętrznej regulacji komórkowej. Zakres doświadczenia dotyczył tego układu modelowego; nie ustanowił jednego, uniwersalnego chemicznego „przełącznika” wszystkich mięczaków. [62]
Dla interpretacji obserwacji terenowej wynika z tego ważne ograniczenie: wykrycie larw w wodzie odpowiada na pytanie o ich obecność w pobranej próbce. Nie rozstrzyga jeszcze, czy larwy są zdolne do osiedlenia, czy dotrą do właściwego miejsca ani czy przeżyją dalszy rozwój. Kolejne etapy wymagają odrębnych dowodów. W praktyce opis procesu powinien łączyć informację o stadium z informacją o miejscu, czasie i metodzie rozpoznania zwierzęcia.
Tabela 8. Etapy rozwoju i różne pytania badawcze
| Pojęcie | Co opisuje | Przykład właściwego pytania |
|---|---|---|
| Kompetencja | Gotowość larwy do odpowiedzi prowadzącej do przeobrażenia | Czy larwa odpowiada na bodziec w określonych warunkach? |
| Osiedlenie | Związek larwy z podłożem w przejściu do kolejnej fazy życia | Na jakim podłożu i kiedy zwierzęta się osiedlają? |
| Metamorfoza | Przebudowę organizacji ciała i funkcji | Po jakich cechach rozpoznano zakończenie przeobrażenia? |
| Rekrutacja w badaniu populacji | Dołączenie osobników do zdefiniowanej klasy lub części populacji | Jaki próg wielkości, wieku lub wykrywalności przyjęto? |
Opracowanie pojęciowe na podstawie literatury o rozwoju oraz zasad definiowania pomiaru. Osiedlenie i metamorfoza mogą być ze sobą ściśle związane; tabela nie narzuca ich rozdzielenia w czasie u każdego gatunku. Rekrutacja wymaga definicji operacyjnej w konkretnym badaniu. [61, 63]
Dlaczego etap po osiedleniu ma znaczenie
Podręcznik FAO dotyczący wylęgarni małży omawia osiedlenie i metamorfozę jako odrębny problem technologiczny, zależny między innymi od dojrzałości larw i zapewnienia odpowiedniego podłoża. Następnie osobno rozpatruje utrzymanie młodocianych małży. Tak uporządkowana dokumentacja pokazuje, dlaczego duża liczba uzyskanych larw nie jest jeszcze miarą liczby zwierząt gotowych do dalszego chowu. [63]
Ten sam sposób myślenia pomaga czytać doniesienia o odbudowie populacji. Warto rozdzielić powodzenie rozrodu, przejście do kolejnego stadium, przeżycie młodych oraz ich późniejszy udział w populacji. Są to różne odpowiedzi na pytanie „czy przedsięwzięcie się udało”. Własne zestawienie wyników powinno wskazywać etap, któremu odpowiada każda liczba, zamiast sprowadzać wszystkie etapy do ogólnego określenia sukcesu.
Rozród ośmiornicy jako problem neuroendokrynologii
Badania ośmiornic pokazują, jak można przechodzić od obserwacji zachowania do analizy mechanizmu fizjologicznego. W pracy Wang i Ragsdale’a z 2018 r. porównywano aktywność genów w gruczołach wzrokowych Octopus bimaculoides w różnych fazach rozrodu. Autorzy stwierdzili zmiany obejmujące kilka układów sygnalizacji, w tym szlaki związane z metabolizmem cholesterolu. Jest to dowód na złożoną regulację fizjologii okresu macierzyńskiego, a nie identyfikacja jednego czynnika wyjaśniającego wszystkie zachowania samicy. [64]
Kolejna praca, opublikowana w 2022 r., wykorzystała spektrometrię mas do badania substancji związanych z tymi gruczołami. Wskazano co najmniej trzy szlaki produkcji wybranych związków steroidowych uruchamiane po rozrodzie. Obejmowały one steroidy pregnanowe, 7-dehydrocholesterol oraz związki pośrednie szlaku kwasów żółciowych. Wyniki rozszerzyły opis zmian hormonalnych towarzyszących reprodukcji i późniejszemu pogorszeniu kondycji samic. [65]
Różnica między tymi badaniami jest metodologicznie istotna. Analiza RNA informuje o aktywności określonych genów; pomiar związków chemicznych dostarcza innego rodzaju dowodu. Zgodność obu rodzajów obserwacji wzmacnia interpretację mechanizmu, lecz nie sprawia, że każdą funkcję zidentyfikowanej cząsteczki można uznać za rozstrzygniętą. Do sprawdzenia skutku konkretnej substancji potrzebny jest odpowiednio zaprojektowany eksperyment funkcjonalny. To przykład, w którym profesjonalny opis powinien rozdzielić obserwację, mechanizm proponowany przez autorów i pytania pozostające do zbadania.
Nie należy również przenosić tego przypadku na wszystkie głowonogi. Opis odnosi się do badanego gatunku i określonych faz rozrodu. Rozdzielenie zakresu taksonomicznego i zakresu doświadczenia pozwala zachować interesujący biologicznie wniosek bez tworzenia sensacyjnej opowieści o uniwersalnym „programie samozniszczenia”. Tytuł publikacji może posługiwać się mocną metaforą; w kompendium warto przełożyć ją na nazwane procesy, metody i ograniczenia.
Rozdział 12Ewolucja i zapis kopalny
Drzewo pokrewieństwa zamiast drabiny doskonałości
Współczesny ślimak nie jest wcześniejszym etapem ośmiornicy, a małż nie jest „uproszczonym ślimakiem”. Klasy reprezentują odrębne linie ewolucyjne. Wspólny plan budowy podlegał w nich różnym przekształceniom, w tym redukcji narządów. [13]
Autorzy zrekonstruowali także cechy prawdopodobnego wspólnego przodka. Takie rozumowanie wykorzystuje porównania genomów, anatomii i danych kopalnych. Rekonstrukcja jest hipotezą opartą na dostępnych przesłankach, a nie bezpośrednią obserwacją całego organizmu przodka. Warto oddzielać mocno wspierane rozgałęzienia drzewa od szczegółów wyglądu, które są bardziej zależne od modelu i materiału badawczego. [13]
Co mówią skamieniałości
Skamieniałości dostarczają cech, których nie można poznać z analizy samych żyjących zwierząt. Pokazują wymarłe kombinacje budowy i pozwalają konfrontować interpretację pokrewieństwa z historią zapisaną w skałach. Publikacja z 2025 r. o sylurskich Aculifera podkreśla złożoność wczesnej historii tej grupy: dawna różnorodność nie mieści się łatwo w schemacie narysowanym wyłącznie na podstawie współczesnych form. [66]
Jednocześnie zapis kopalny jest niepełny. Twarde elementy zachowują się inaczej niż miękkie tkanki, a warunki pogrzebania i późniejsze procesy geologiczne wpływają na to, co trafia do kolekcji. Brak skamieniałości w danym miejscu nie jest sam w sobie dowodem, że grupa nigdy tam nie występowała. Z kolei podobieństwo muszli wymaga sprawdzenia, czy wynika z pokrewieństwa, czy z podobnych ograniczeń funkcjonalnych.
Dlaczego określenie żywa skamieniałość wymaga ostrożności
Łodziki i jednotarczowce są często przedstawiane jako „żywe skamieniałości”. Takie wyrażenie może podkreślać znaczenie dawnych linii i podobieństwa do form kopalnych, lecz nie znaczy, że współczesne gatunki przestały ewoluować. Dzisiejszy gatunek ma własną historię i własne przystosowania. Nie powinien być traktowany jak niezmieniona fotografia odległego przodka. [12, 13]
Dobrym nawykiem jest podawanie nazwy konkretnej grupy i wskazywanie, jaka cecha jest porównywana. „Zachowanie zewnętrznej muszli” jest informacją precyzyjniejszą niż stwierdzenie, że zwierzę jest „prymitywne”. To drugie słowo często miesza wiek linii, budowę ciała i ocenę zdolności organizmu.
Od genomu do porównywalnych fragmentów
Porównanie genomów wymaga ustalenia, które sekwencje można zestawić jako odpowiadające sobie elementy. W tym pomaga BUSCO, narzędzie wykorzystujące zestawy genów zwykle zachowanych w pojedynczej kopii w określonych grupach organizmów. Służy ono między innymi do oceny kompletności złożonego genomu oraz identyfikacji takich markerów. Autorzy narzędzia podkreślają, że wynik zależy od doboru zestawu odniesienia. Wykryte duplikacje mogą mieć przyczyny biologiczne lub techniczne, a samo narzędzie nie rozstrzyga automatycznie ich pochodzenia. Dlatego wysoki wynik kompletności jest informacją o danych, nie samodzielnym dowodem prawdziwości dowolnego drzewa utworzonego na ich podstawie. [67]
W badaniu Chen i współautorów z 2025 r. drzewo gatunków wyprowadzano z 954 drzew rodzin genów BUSCO, wykorzystując 77 genomów mięczaków i trzy taksony zewnętrzne. Porównano również wynik z analizą ograniczonego zestawu 96 genów obecnych we wszystkich badanych gatunkach. Tak sprawdzano wpływ nierównomiernej dostępności danych. Topologia wspierała Aculifera i Conchifera. W obrębie Conchifera jednotarczowce były grupą siostrzaną pozostałych klas, głowonogi — grupy obejmującej ślimaki, małże i łódkonogi, a małże i łódkonogi tworzyły Diasoma. Jest to konkretny wynik analizy, nie szereg kolejnych „stopni rozwoju”. [7]
Sami autorzy zaznaczyli jednak, że dane molekularne silniej wspierały polytomię ślimaków, małży i łódkonogów niż jednoznaczne uporządkowanie ich rozdzieleń. Wiązali to ze złożoną, szybką radiacją wspólnego przodka. Za Diasoma przemawiają także cechy morfologiczne i skamieniałości; relacje w tej trójce wymagają zatem ostrożniejszego przedstawienia niż główny podział na Aculifera i Conchifera. [7]
Dlaczego wybór modelu może zmienić wynik
Realny przykład dostarczyło badanie Kocota i współautorów z 2020 r. Dla przygotowanego zestawu danych jeden wariant analizy największej wiarygodności, korzystający z modeli jednorodnych między pozycjami sekwencji, umieszczał Monoplacophora obok Cephalopoda. Analizy z modelami mieszankowymi wspierały natomiast pozycję jednotarczowców jako grupy siostrzanej wszystkich pozostałych Conchifera. W wielu analizach tej pracy ślimaki łączyły się bezpośrednio z łódkonogami, co różniło się od wyniku z 2025 r. Nie jest to powód, aby uznać wszystkie drzewa za dowolne. Pokazuje, dlaczego oprócz liczby genów ocenia się dobór taksonów, jakość sekwencji oraz założenia modelu opisującego ich zmiany. [68]
W praktyce należy oddzielać trzy poziomy pewności: obecność sekwencji w materiale, oszacowane pokrewieństwo oraz interpretację zmian cech ciała. To rozróżnienie metodologiczne pozwala ocenić, co zmieniłoby nowy wynik. Dodatkowy genom może poprawić reprezentację słabo zbadanej linii. Inny model może zmienić sposób odczytywania sygnału z tych samych sekwencji. Nowa skamieniałość może natomiast ujawnić cechę nieobecną u żyjących przedstawicieli. Każdy z tych rodzajów danych odpowiada na nieco inne pytanie.
Skamieniałości sprawdzają rekonstrukcje cech
Praca Suttona i współautorów z 2025 r. przedstawia dwa nowe Aculifera z syluru Herefordshire, sprzed około 430 mln lat. Okazy rekonstruowano przestrzennie z użyciem tomografii oraz obrazowania kolejnych odsłanianych powierzchni. Ujawniły kombinacje cech rozszerzające obraz dawnych form tej grupy. Analizy sugerowały złożoną historię obecności płytek muszlowych oraz budowy nogi, obejmującą także wtórne zmiany stanów cech. Praktyczna konsekwencja jest konkretna: współczesnego robakowatego kształtu nie można automatycznie uznać za wiernie zachowany stan przodka. Tę interpretację trzeba sprawdzać na drzewie z uwzględnieniem kopalnych form, a nie wyprowadzać wyłącznie z wizualnego wrażenia „prostoty”. [66]
Rozdział 13Biogeografia i przestrzenne zróżnicowanie mięczaków
Bogactwo gatunków endemizm i wymiana składu fauny
Biogeografia mięczaków bada zarówno rozmieszczenie organizmów, jak i procesy, które doprowadziły do tego rozmieszczenia. Trzeba przy tym oddzielić trzy pytania. Bogactwo gatunkowe mówi, ile gatunków rozpoznano w określonym obszarze. Endemizm opisuje ograniczenie naturalnego zasięgu do wskazanej jednostki geograficznej. Zróżnicowanie składu fauny między miejscami dotyczy natomiast tego, czy występują w nich te same gatunki. Dwa obszary o podobnej liczbie gatunków mogą różnić się niemal całkowicie ich zestawem.
Określenie endemiczny zawsze wymaga dopełnienia: endemiczny dla wyspy, archipelagu, dorzecza albo jeziora. Nie oznacza samo w sobie niewielkiej liczebności. Podobnie duża liczba obserwacji w bazie nie jest automatycznie dowodem dużego bogactwa fauny. Dziesięć zapisów jednego gatunku zwiększa dokumentację jego występowania, ale nie dodaje dziewięciu gatunków do listy. Te rozróżnienia pozwalają porównywać obszary bez mieszania liczby nazw, liczby stanowisk i liczby osobników.
Zmiana skali zmienia także sposób liczenia. Liczby gatunków z poszczególnych wysp nie wystarczy dodać, aby otrzymać liczbę gatunków archipelagu: formy wspólne trzeba policzyć tylko raz. Jednocześnie gatunek ograniczony do archipelagu nie musi występować na każdej jego wyspie. Dlatego przydatne zestawienie zawiera zarówno listę unikatowych taksonów całego regionu, jak i informację o ich rozmieszczeniu pomiędzy jego częściami. Pozwala to dostrzec odrębność lokalnych zespołów ukrytą przez pojedynczą liczbę zbiorczą.
Powstawanie linii i przesuwanie granic zasięgu
Analiza Jablonskiego, Roya i Valentine’a obejmowała rodzaje i podrodzaje małży morskich w perspektywie ostatnich 11 mln lat. Łącząc rozmieszczenie współczesne z zapisem kopalnym, autorzy znaleźli poparcie dla modelu, w którym wiele linii powstaje w tropikach, następnie rozszerza zasięg ku wyższym szerokościom geograficznym, zachowując obecność w strefie pochodzenia. Współczesna część bazy była ograniczona do głębokości 0–200 m; badanie nie stanowiło pełnej inwentaryzacji głębin. Wynik wskazuje, że gradient różnorodności może powstawać przez współdziałanie pojawiania się linii, ich wymierania i przemieszczania granic zasięgu. Nie uzasadnia sprowadzenia geografii całego typu Mollusca do jednej zależności od temperatury. [69]
Praktyczne znaczenie takiego podejścia polega na rozdzieleniu wzorca od mechanizmu. Stwierdzenie, że w jednym pasie szerokości geograficznej występuje więcej taksonów, opisuje wynik. Wyjaśnienie wymaga danych o historii tych taksonów. Sama mapa współczesna nie rozstrzyga, czy obszar wytwarzał wiele nowych linii, długo zachowywał dawne, czy przyjmował je z innych regionów. Te możliwości mogą współwystępować.
Dawne jeziora jako rezerwuary linii
Jezioro Tanganika pokazuje, dlaczego nie należy przypisywać wszystkim grupom wspólnej historii tylko dlatego, że żyją w tym samym miejscu. Wilson, Glaubrecht i Meyer analizowali pokrewieństwo ślimaków o szczególnie zróżnicowanych muszlach, określanych jako thalassoid gastropods. Nie wykazali przyspieszenia ich specjacji po kolonizacji jeziora. W przedstawionej rekonstrukcji współczesna fauna wywodziła się z co najmniej czterech głównych linii starszych od jeziora. Autorzy interpretowali Tanganikę jako ważny rezerwuar dawnych linii, obok zachodzącego w niej różnicowania. To hipoteza historyczna oparta na analizie filogenetycznej, a nie bezpośrednia obserwacja powstawania gatunków. [70]
Warto więc osobno pytać o wiek linii, wiek konkretnego gatunku i czas zajęcia obecnego siedliska. Nie są to trzy nazwy tej samej daty. Również podobieństwo muszli nie zastępuje rekonstrukcji pokrewieństwa: może być przydatną cechą porównawczą, ale samo nie wskazuje kierunku kolonizacji. W opisie jeziornej fauny endemicznej szczególnie ważne staje się połączenie systematyki, geologii i danych o rozmieszczeniu.
Wyspy mogą izolować i łączyć populacje
Mała zdolność do samodzielnego przemieszczania się nie wyklucza rzadkiego transportu na duże odległości. Gittenberger i współautorzy wykorzystali dane molekularne do odtworzenia historii ślimaków Balea obejmującej Europę, Azory i wyspy Tristan da Cunha. Wyniki wskazywały na rozprzestrzenianie przez Atlantyk, także między półkulami. Autorzy przedstawili ptaki jako prawdopodobnych przewoźników. Było to wnioskowanie z pokrewieństwa i rozmieszczenia, bez bezpośredniego zarejestrowania historycznego przelotu ze ślimakiem. [71]
Inny rodzaj dowodu dostarczyło doświadczenie Wady, Kawakamiego i Chiby z drobnym ślimakiem Tornatellides boeningi z Hahajimy. Po podaniu 119 osobników ptakom Zosterops japonicus żywo przeszło przez przewód pokarmowy 14,3%; dla 55 ślimaków podanych Hypsipetes amaurotis odsetek wynosił 16,4%. Jeden wydalony ślimak wydał później młode. Eksperyment potwierdził możliwość przeżycia konkretnego sposobu transportu, lecz nie mierzył częstości kolonizacji wysp. Wyników nie można stosować do dowolnego gatunku ślimaka i ptaka ani do dowolnej długości podróży. [72]
Te dwa przykłady uzupełniają się metodologicznie. Rekonstrukcja molekularna wskazuje, jaka historia zasięgu jest zgodna z danymi. Doświadczenie sprawdza, czy określony mechanizm jest biologicznie możliwy. Nawet wspólnie nie określają jednak, jak często przewieziony osobnik trafia do odpowiedniego mikrosiedliska i zapoczątkowuje trwałą populację. Rzadki transport może mieć znaczenie w długiej historii archipelagu, chociaż trudno go wykryć w pojedynczym sezonie obserwacji.
Historia siedliska pozostaje w mapie gatunków
Na Hahajimie Chiba i współautorzy porównali faunę lądową w 217 polach o boku 250 m, wykorzystując badania z lat 1990–1991 i 2005–2007 oraz starszą dokumentację. Utrata lasu sprzed 1945 r. wyjaśniała największą część przestrzennego zróżnicowania bogactwa gatunkowego spośród badanych czynników. Jej ślad pozostawał widoczny także po odnowieniu lasu. Zależność liczby gatunków od wysokości zmieniała się przy tym odmiennie u ślimaków naziemnych i nadrzewnych. Autorzy wiązali część nowszych strat naziemnych z możliwym oddziaływaniem drapieżnych wirków. To badanie obserwacyjne jednej wyspy; wskazany udział drapieżników nie powinien być przedstawiany jako wynik ich eksperymentalnego usunięcia. [73]
Tabela 9. Różne dowody w badaniu biogeografii mięczaków
| Zakres badania | Materiał porównawczy | Jakie pytanie można rozstrzygać |
|---|---|---|
| Wybrane małże morskie i ostatnie 11 mln lat | Rozmieszczenie współczesne oraz zapis kopalny | Gdzie pojawiały się linie i jak zmieniały zasięg? [69] |
| Ślimaki jeziora Tanganika | Pokrewieństwo i rekonstrukcja historyczna | Czy różnorodność wymaga przyspieszonej specjacji po kolonizacji jeziora? [70] |
| Tornatellides boeningi i dwa gatunki ptaków | Doświadczenie z pasażem przez przewód pokarmowy | Czy ta droga transportu może pozostawić żywych przewożonych osobników? [72] |
| Ślimaki lądowe Hahajimy | Powtarzane kartowanie i historia lasów | Czy dzisiejszy wzorzec wiąże się z wcześniejszymi przekształceniami? [73] |
Granice dokumentacji przestrzennej
Problem luk w wiedzy dobrze ilustruje praca Régnier i współautorów. Autorzy wylosowali 200 końcowych taksonów ślimaków lądowych z zestawienia obejmującego gatunki i podgatunki. Zestawiali datowane stwierdzenia, informacje o siedliskach oraz opinie specjalistów. Wyraźnie oddzielili formalne kategorie IUCN od własnych ocen eksperckich, a brak odnalezienia gatunku rozpatrywali w związku z intensywnością poszukiwań. Analiza pokazuje, dlaczego opisany takson, udokumentowany zasięg i wystarczające dane o jego obecnym losie to różne poziomy wiedzy. Jej próba nie jest spisem wszystkich mięczaków ani aktualnym odsetkiem wymierania całego typu. [74]
Przy porównywaniu regionów należy najpierw ustalić zgodność jednostek: okres obserwacji, powierzchnię, środowisko, poziom taksonomiczny i sposób uwzględniania gatunków obcych. Następnie warto sprawdzić, czy puste miejsce na mapie oznacza wynik poszukiwań, czy brak badania. Uporządkowane zestawienie tych informacji jest bardziej użyteczne od rankingu złożonego z liczb pochodzących z różnych metod. Biogeografia zyskuje przez to wyraźnie sformułowane pytanie: które różnice dotyczą samych organizmów, a które naszego sposobu ich dokumentowania?
Rozdział 14Mięczaki jako uczestnicy ekosystemów
Trzy środowiska i wiele sposobów życia
W morzu mięczaki występują na twardym podłożu, w osadach, w toni i w wyspecjalizowanych siedliskach. Wody słodkie zamieszkują przede wszystkim małże i ślimaki. Ląd został zasiedlony przez ślimaki. Podział na trzy środowiska jest przydatny, lecz nie zastępuje informacji o zasoleniu, temperaturze, natlenieniu, rodzaju podłoża i zasobach pokarmowych. [1, 20, 3]
Przykładowo małż żyjący w osadzie i ślimak z powierzchni roślin mogą zajmować ten sam zbiornik, ale wykorzystywać inne zasoby i reagować na inne zmiany. Opis zespołu mięczaków powinien uwzględniać te różnice funkcjonalne. Sama liczba gatunków nie informuje, czy zachowane są wszystkie ważne role ekologiczne.
Sieci pokarmowe
Mięczaki mogą być konsumentami pokarmu roślinnego, drobnych cząstek organicznych lub innych zwierząt. Same są zjadane przez wielu drapieżników. Głowonogi są istotnymi uczestnikami morskich sieci pokarmowych zarówno jako łowcy, jak i ofiary. Małże i ślimaki mogą z kolei wiązać zasoby dostępne przy dnie z poziomami sieci pokarmowej wykorzystywanymi przez większe zwierzęta. [17, 47]
Nie należy utożsamiać pożytecznej roli ekologicznej z korzystnym wpływem w każdym możliwym miejscu. Gatunek, który jest częścią rodzimego ekosystemu, po przeniesieniu poza zasięg może silnie zmienić warunki dla innych organizmów. Znaczenie ma kontekst biogeograficzny i sposób włączenia gatunku do istniejących zależności.
Mięczaki a jakość środowiska
Obecność i kondycja małży mogą dostarczać informacji o stanie siedliska, ale żaden pojedynczy gatunek nie jest uniwersalnym testem czystości wody. Zespół organizmów bentosowych, parametry fizyczne i chemiczne oraz historia oddziaływań tworzą pełniejszy obraz. HELCOM wykorzystuje charakterystyki makrofauny dna miękkiego jako element oceny Bałtyku, co ilustruje podejście obejmujące zespoły organizmów zamiast jednego prostego wskaźnika. [75]
Dla praktyki ochrony oznacza to potrzebę łączenia obserwacji biologicznych z pomiarami środowiska. Samo występowanie dorosłego małża nie potwierdza, że młode osobniki mogą się prawidłowo rozwijać. Z drugiej strony brak wykrycia podczas jednej kontroli może wynikać z metody poszukiwań, pory roku albo małej dostępności osobników, a nie z rzeczywistego zaniku populacji.
Funkcje ekologiczne od osobnika do przepływu materii
Opis funkcji mięczaków staje się bardziej użyteczny, kiedy obok nazwy procesu podajemy jego skalę. Liczba zwierząt, ich łączna biomasa, rozmieszczenie oraz tempo wymiany wody odpowiadają na różne pytania. Dwa stanowiska z taką samą liczbą małży mogą mieć odmienną strukturę wielkości ciała. Z kolei jednakowa biomasa nie przesądza o identycznym działaniu zespołu w każdym sezonie. Ekologia funkcjonalna łączy zatem cechy organizmów z mierzalnymi skutkami: zmianą zasobów pokarmowych, przepływem pierwiastków i warunkami życia innych gatunków.
W doświadczeniach Vaughn, Gido i Spoonera z dwoma gatunkami północnoamerykańskich skójkowatych badano sztuczne strumienie o różnej produktywności. Oddychanie całego układu, stężenia związków azotu i fosforu oraz usuwanie glonów z zawiesiny wiązały się z łączną biomasą małży. Po uwzględnieniu biomasy różnice między badanymi gatunkami były niewielkie. Wynik pomaga zrozumieć, dlaczego utrata dużych osobników może mieć znaczenie większe, niż sugerowałaby sama zmiana liczby sztuk. Dotyczy jednak konkretnej pary gatunków i warunków doświadczenia. [76]
Eksperyment terenowy z zespołami liczącymi od jednego do ośmiu gatunków pokazał inną stronę tego zagadnienia. Latem, przy małym przepływie i wysokiej temperaturze, Actinonaias ligamentina silniej zwiększała biomasę glonów dennych niż pozostałe gatunki. Jesienią przewaga ta nie występowała. Autorzy jako prawdopodobny mechanizm wskazali większą biomasę oraz intensywniejszy metabolizm i wydalanie azotu. Była to interpretacja mechanizmu, a nie jego ostateczne rozstrzygnięcie. Gatunki zaliczane do wspólnej grupy filtratorów mogą więc wnosić różny wkład w funkcjonowanie ekosystemu. [77]
Usuwanie zawiesiny i bilans azotu
Rozróżnienie tych procesów jest konieczne przy ocenie usług ekosystemowych. Zatrzymanie cząstki na skrzelach zmienia jej drogę w środowisku. Dopiero ustalenie, gdzie trafią zawarte w niej pierwiastki, pozwala ocenić bilans. Związanie azotu w rosnącej tkance, jego ponowne uwolnienie i przekształcenie do gazowego N₂ mają odmienne konsekwencje dla dostępności składników odżywczych.
W badaniu terenowym w płytkim zbiorniku przybrzeżnym Rhode Island porównano odtworzone rafy ostrygowe, akwakulturę, podłoże z samych muszli i odsłonięty osad. Bezpośrednie pomiary przepływów N₂ i tlenu przez granicę osad–woda w latach 2013–2014 wykazały większą denitryfikację przy żywych ostrygach. Wielkość efektu zmieniała się sezonowo. Denitryfikację wykonują mikroorganizmy; ostrygi współtworzą środowisko, w którym zachodzi. Taki pomiar daje mocniejszą podstawę do oceny usuwania azotu niż sama przejrzystość wody. Równocześnie badanie dotyczyło jednego układu przybrzeżnego, a jego wyniku nie można bez kalibracji przeliczyć na dowolną farmę lub jezioro. [78]
Ślimaki zmieniają roślinność i rozkład ściółki
Wpływ roślinożercy wykracza poza masę zjedzonego pokarmu. W doświadczeniu na wyspie Man wyłączano skałoczepy Patella vulgata z fragmentów skalistego brzegu. Kolejność zasiedlania tych powierzchni przez glony zależała od sezonu rozpoczęcia doświadczenia. Jesienią po okrzemkach pojawiały się morszczyny, natomiast zimą i wiosną występował również etap zielenic. Nie wykazano, aby wcześniejsze stadia były konieczne do późniejszego pojawienia się morszczynów. Przykład pokazuje, że żerowanie mięczaka i sezonowy dopływ organizmów kolonizujących wspólnie wpływają na rozwój zespołu. [79]
Na lądzie znaczenie ma także przetwarzanie resztek roślinnych. Joly i współautorzy porównali 36 kombinacji sześciu rodzajów ściółki i sześciu gatunków bezkręgowców, w tym ślimaka Cepaea nemoralis. Po przejściu przez przewód pokarmowy materiał zmieniał właściwości fizyczne i chemiczne; podczas dalszej inkubacji odchody przeciętnie traciły węgiel szybciej niż nieprzetworzona ściółka. Efekt był szczególnie wyraźny przy materiale początkowo trudniejszym do rozkładu. Jest to dowód na udział detrytusożerców w przekształcaniu zasobów dla kolejnych uczestników rozkładu. Uśrednione wyniki całego doświadczenia nie stanowią jednak odrębnego pomiaru udziału ślimaków w bilansie węgla lasu. [80]
Tabela 10. Proces ekologiczny i właściwa miara jego skutku
| Proces | Co warto mierzyć | Pytanie, na które odpowiada pomiar |
|---|---|---|
| Przechwytywanie zawiesiny przez małże | Tempo usuwania cząstek i biomasę zwierząt | Jak intensywnie zespół oddziałuje na zasób zawiesiny? [76] |
| Zasilanie glonów dennych | Zmianę ich biomasy w doświadczeniu z obecnością i bez obecności określonych małży | Czy skład zespołu zmienia dostępność zasobów dla producentów? [77] |
| Denitryfikacja w siedlisku ostryg | Strumień azotu jako N₂ na jednostkę powierzchni i czasu | Czy reaktywny azot opuszcza lokalny obieg w postaci gazowej? [78] |
| Przetwarzanie ściółki | Właściwości materiału i dalszą utratę węgla | Czy konsumpcja zmienia późniejsze tempo przemian materii? [80] |
Rozdział 15Symbiozy i korzystanie z metabolizmu innych organizmów
Strategię pokarmową mięczaka można opisywać na kilku poziomach: jako sposób zdobywania cząstek lub ofiary, jako wykorzystanie związków w przewodzie pokarmowym oraz jako współpracę z innymi organizmami. Szczególnie pouczające są przypadki, w których ważna część przemian zachodzi dzięki mikroorganizmom albo zachowanym organellom glonów. Trzy opisane poniżej układy różnią się partnerami, źródłem energii i organizacją współpracy.
Małże głębinowe i bakterie chemosyntetyzujące
W badaniu Ansorge i współautorów z 2019 r. przeanalizowano metagenomy i metatranskryptomy 18 osobników małży Bathymodiolus, należących do czterech gatunków z atlantyckich pól hydrotermalnych. U pojedynczych gospodarzy stwierdzano współwystępowanie nawet 16 szczepów wewnątrzkomórkowych bakterii utleniających związki siarki. Szczepy różniły się potencjalnymi funkcjami metabolicznymi oraz mechanizmami obrony przed wirusami. Wiele genów charakterystycznych dla poszczególnych szczepów wykazywało ekspresję. [81]
Istotą tego wyniku jest wykazanie różnorodności partnerów na poziomie dokładniejszym niż sama obecność „bakterii symbiotycznej”. Informacja o DNA wskazuje, jakie możliwości mogą występować w układzie; informacja o RNA pokazuje aktywność części tych możliwości. Nadal pozostaje pytanie o ilościowy udział każdej funkcji w konkretnych warunkach środowiska. Różnorodność genów, ich ekspresja i wynik energetyczny dla gospodarza są powiązanymi, lecz odrębnymi wielkościami.
Przydacznie i fotosynteza glonów
U Tridacna maxima badano udział pompy protonowej VHA w dostarczaniu węgla nieorganicznego glonom symbiotycznym. Armstrong i współautorzy wykazali obecność tego białka w układzie kanalików płaszcza, a zastosowanie jego inhibitorów zmniejszało fotosyntetyczną produkcję tlenu w doświadczeniu. Wynik wspiera interpretację, że gospodarz aktywnie współtworzy warunki potrzebne partnerowi do fotosyntezy. [82]
Jest to przykład mechanizmu wymiany, który łatwo spłaszczyć do samej etykiety „małż z glonami”. O biologicznym znaczeniu układu decyduje nie tylko obecność partnerów, lecz również transport substancji i fizjologiczna kontrola warunków ich działania. W tym ujęciu organizm gospodarza nie stanowi wyłącznie powierzchni, na której przypadkowo znalazły się glony.
Kleptoplastyka u ślimaków morskich
Niektóre ślimaki z grupy Sacoglossa zachowują funkcjonalne chloroplasty pochodzące z pokarmu. W badaniu Elysia timida Cartaxana i współautorzy śledzili przemieszczanie znakowanych izotopowo związków i stwierdzili zależne od światła włączanie znaczników do narządów rozrodczych pozbawionych kleptoplastów. Ograniczenie fotosyntezy kleptoplastów obniżało płodność w warunkach doświadczenia. Praca dostarcza więc dowodu, że produkty ich aktywności mogą mieć znaczenie dla rozrodu tego ślimaka. [83]
Kleptoplastyka oznacza zachowanie organelli pobranych z pokarmem. W opisanym układzie przedmiotem badania są chloroplasty wewnątrz komórek zwierzęcia, a nie przekształcenie ślimaka w roślinę. Rozróżnienie ma znaczenie także dla porównania z przydaczniami, u których partnerem pozostają komórki glonów. Pozwala analizować podobny efekt — udział fotosyntezy w funkcjonowaniu zwierzęcia — bez utożsamiania odmiennych mechanizmów. [82, 83]
Tabela 11. Trzy odmienne układy współpracy metabolicznej
| Przykład | Partner lub zachowany element | Co stanowiło przedmiot badania |
|---|---|---|
| Bathymodiolus | Bakterie utleniające związki siarki | Zróżnicowanie szczepów oraz ich możliwości i aktywności genetycznej |
| Tridacna maxima | Fotosyntetyzujące glony symbiotyczne | Udział gospodarza w dostarczaniu węgla nieorganicznego |
| Elysia timida | Chloroplasty pochodzące z glonów | Przekazywanie produktów fotosyntezy i znaczenie dla rozrodu |
Zestawienie wybranych badań, bez przypisywania wszystkim mięczakom tych samych relacji i bez wyliczania nieustalonego udziału symbiontów w bilansie energii. [81, 82, 83]
Zestawione przykłady prowadzą do praktycznej zasady opisu: należy nazwać gospodarza, partnera, badaną funkcję i metodę jej sprawdzenia. Sama obecność mikroorganizmu nie dowodzi jego korzystnego działania. Podobnie stwierdzenie ekspresji genu nie jest jeszcze bezpośrednim pomiarem ilości pożywienia przekazywanego gospodarzowi. Tak rozumiana precyzja pozwala docenić złożoność symbioz bez dopisywania do wyników korzyści, których nie mierzono.
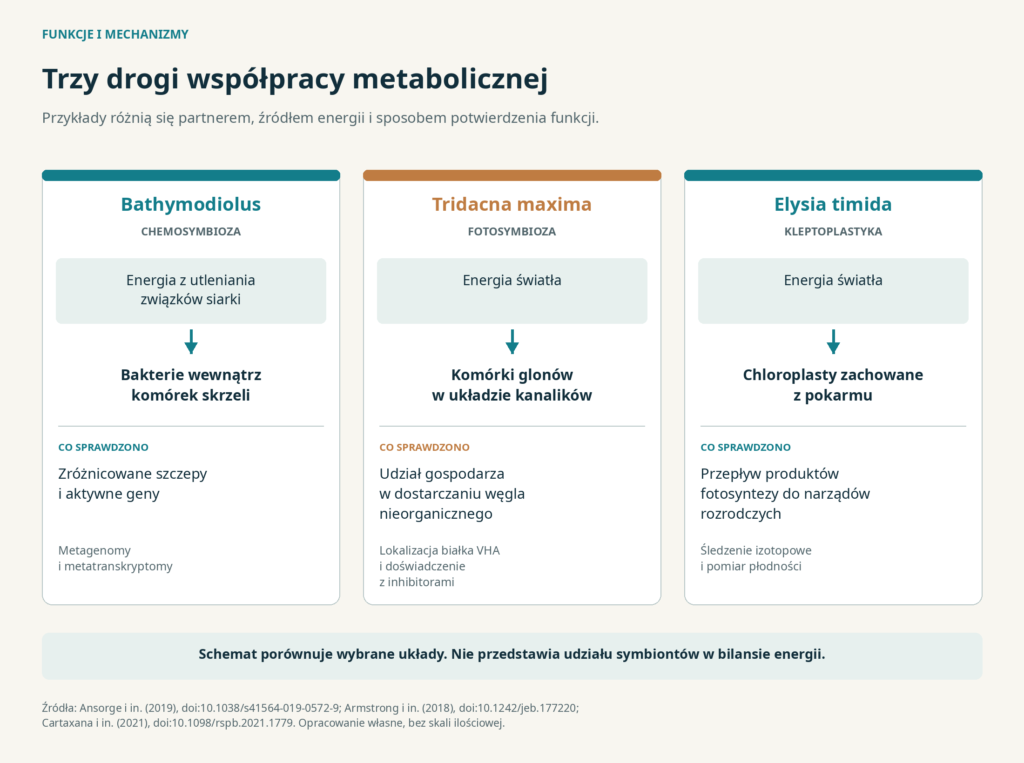
Rozdział 16Znaczenie ryb dla odnowy populacji małży
Warunki odnowy rzecznych populacji małży
Rekrutacja oznacza dopływ nowych osobników do określonego stadium lub części populacji; w badaniach trzeba wskazać, jak ją rozpoznawano. U skójkowatych można oddzielnie badać wytwarzanie larw, ich rozwój na rybie, pojawienie się młodych w osadzie i przetrwanie kolejnych sezonów. Każdy etap stawia inne wymagania. Stwierdzenie rozrodu dorosłych nie odpowiada jeszcze na pytanie, czy młode rzeczywiście uzupełniają populację.
Badanie dziewięciu cieków dorzecza Dunaju w południowych Niemczech pozwoliło porównać skójki gruboskorupowe z dobrym i słabym udziałem młodych osobników. Sama obecność gatunków ryb nie różnicowała tych grup. Istotne okazało się zagęszczenie głównych gospodarzy: średnio 40 osobników na 100 m² w ciekach z rekrutacją oraz 8 na 100 m² w ciekach bez sprawnej rekrutacji. Do głównych gospodarzy zaliczono tam strzeblę potokową, klenia i ciernika. Była to zależność obserwacyjna, a nie uniwersalny próg zagęszczenia ryb. Jej praktyczny sens polega na tym, że inwentaryzacja powinna uwzględniać ilościową dostępność odpowiednich gospodarzy, nie tylko listę ryb. [84]
Przypadek Białej w południowej Polsce
Zając i współautorzy odtwarzali historyczny zasięg skójki gruboskorupowej w Białej, tworząc pomiędzy pozostałymi populacjami serię miejsc reintrodukcji. Dorosłe małże umieszczano w przybrzeżnych fragmentach koryta z wodą stojącą i drobnym osadem. W części wyżej położonych odcinków początkowo obserwowano intensywny rozród, ale ostatecznie młode rekrutowały się jedynie w dolnej części odtwarzanego zasięgu. Wynik wiązał się z profilem podłużnym rzeki i cechami hydromorfologicznymi. Dodatnia zależność rekrutacji od udziału drobnego osadu dotyczyła tego gatunku i badanego układu. Autorzy podkreślili potrzebę oceny sukcesu po kilku latach. Jest to konkretna lekcja dla restytucji: pierwszy sezon po wypuszczeniu może potwierdzić tylko część warunków potrzebnych do odbudowy populacji. [85]
Oba przykłady wspierają diagnozę prowadzoną etapami. Jeśli występują dorosłe małże i odpowiednie ryby, a młodych nadal brakuje, kolejnym pytaniem jest jakość miejsca, do którego trafiają po opuszczeniu gospodarza. Jeżeli młode pojawiają się, ale zanikają w następnych sezonach, trzeba badać ich przeżywanie. Takie rozdzielenie hipotez pozwala planować pomiary, zamiast zakładać jedną przyczynę każdej nieudanej restytucji.
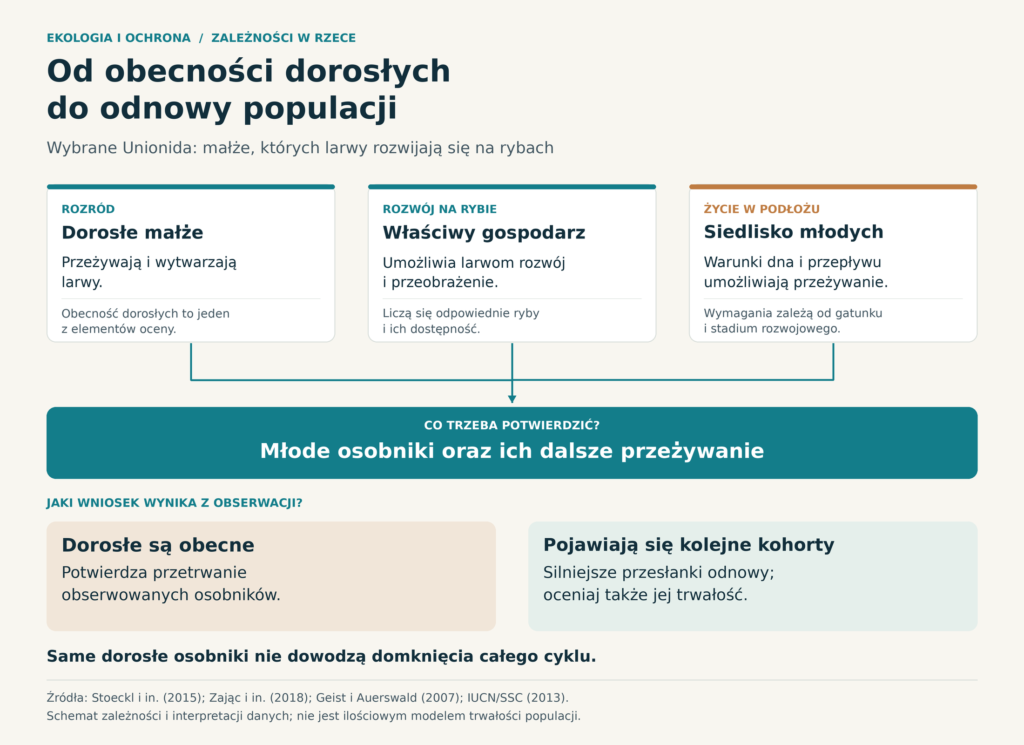
Rozdział 17Mięczaki Polski i Bałtyku
Różnorodność blisko domu
Polskie ślimaki i małże występują w środowiskach bardzo różnych: od zarośli i ogrodów po torfowiska, starorzecza i rzeki. Warto zwracać uwagę nie tylko na duże, łatwo rozpoznawalne gatunki. Niewielkie poczwarówki i zatoczki potrafią wskazywać na znaczenie siedlisk, które z daleka wydają się mało charakterystyczne. Ich rozpoznawanie wymaga jednak odpowiedniej skali obserwacji i cech diagnostycznych. [88, 89]
Tabela 12. Przykłady mięczaków związanych z Polską
| Gatunek | Środowisko lub kontekst | Dlaczego jest interesujący |
|---|---|---|
| Winniczek Helix pomatia | Wilgotne zarośla, skraje lasów, parki i ogrody | Przykład dużego ślimaka lądowego, także w krajobrazie przekształconym |
| Skójka gruboskorupowa Unio crassus w ujęciu monitoringu | Cieki, często z dnem piaszczystym lub żwirowym | Gatunek objęty monitoringiem; rozwój zależy od właściwych ryb |
| Poczwarówka jajowata Vertigo moulinsiana | Podmokłe siedliska z turzycami i roślinnością szuwarową | Drobny ślimak związany z warunkami wilgotnościowymi |
| Zatoczek łamliwy Anisus vorticulus | Wody z bogatą roślinnością | Drobny ślimak o silnie spłaszczonej muszli |
| Racicznica zmienna Dreissena polymorpha | Wody śródlądowe, twarde powierzchnie | Gatunek obcy współczesnej faunie Polski; tworzy zgrupowania przytwierdzone bisiorem |
| Szczeżuja chińska Sinanodonta woodiana | Zasiedlane wody śródlądowe | Przykład rozprzestrzeniania małży wraz z transportem ryb |
| Perłoródka rzeczna Margaritifera margaritifera | Kontekst historycznej fauny Polski | W Polskiej Czerwonej Księdze Zwierząt z 2004 r. opisana jako wymarła w kraju |
Źródła: karty GIOŚ, IOP PAN i GDOŚ. Ostatni wiersz przywołuje historyczne opracowanie z 2004 r., a nie nową inwentaryzację ogólnopolską. Tabela nie jest wykazem aktualnych kategorii ochrony prawnej. [90, 88, 89, 91, 92, 93, 94]
Winniczek jest dobrym punktem wyjścia do obserwacji, ponieważ można go spotkać również w miejscach pozostających pod wpływem człowieka. Karta GIOŚ wiąże jego występowanie między innymi z wilgotnymi i zacienionymi skrajami lasów, zaroślami, parkami i ogrodami. Taki przykład pokazuje, że krajobraz kulturowy także może zawierać siedliska mięczaków, choć nie zastępuje ochrony bardziej wyspecjalizowanych środowisk. [91]
Poczwarówka jajowata, której muszla według karty GIOŚ osiąga do 2,7 mm wysokości, wymaga zupełnie innej uwagi obserwatora. Jej znaczenie nie wynika z rozmiaru, ale ze związku z podmokłym siedliskiem. Przy takich gatunkach zmiana poziomu wody lub sposobu użytkowania roślinności może być ważniejsza niż bezpośredni kontakt człowieka z pojedynczym osobnikiem. [88]
Bałtyk i omułki
Bałtyckich omułków nie należy przedstawiać jako całkowicie jednorodnej populacji jednego łatwego do rozpoznania gatunku. W regionie występuje kompleks Mytilus edulis–M. trossulus, związany z hybrydyzacją. Zasolenie i lokalne warunki wpływają na rozmieszczenie oraz funkcjonowanie zgrupowań. Fiński portal wiedzy o Bałtyku opisuje ich znaczenie na twardym podłożu jako miejsc tworzących strukturę i związanych z obiegiem materii. [95]
Dla interpretacji fotografii lub zbioru muszli oznacza to, że bezpieczniejsze bywa określenie „omułek z kompleksu Mytilus” niż nazwa gatunkowa nadana wyłącznie na podstawie ogólnego kształtu. W popularnym tekście można opisać rolę ekologiczną grupy bez udawania dokładności identyfikacji, której materiał nie pozwala uzyskać.
Gatunki obce i drogi przenoszenia
Racicznica zmienna przytwierdza się do twardych powierzchni za pomocą bisioru i może zmieniać funkcjonowanie zasiedlanych zbiorników. Jej zdolność filtrowania nie unieważnia problemu obecności poza rodzimym zasięgiem. Ocena korzyści jednego procesu i ocena całkowitego wpływu na lokalny ekosystem są odrębnymi zadaniami. [92]
Szczeżuja chińska ilustruje z kolei znaczenie niewidocznych na pierwszy rzut oka dróg transportu. Larwy związane z rybami mogą być przenoszone razem z nimi. Ograniczanie rozprzestrzeniania wymaga więc uwzględniania transportu gospodarzy, a nie tylko dużych małży dostrzegalnych w wodzie. Naukowe określenie gatunku jako obcego lub inwazyjnego nie jest samo w sobie informacją o aktualnym statusie w konkretnym wykazie prawnym. [94]
Adaptacja lokalna i wrażliwość larw w Bałtyku
Badanie Knöbel i współautorów z 2021 roku pokazało, dlaczego pochodzenie omułków ma znaczenie biologiczne. Larwy pochodzące od populacji z Kilonii i Uznamu hodowano przy różnych zasoleniach. Wzrost, śmiertelność i osiadanie wskazywały na lepsze wyniki w warunkach odpowiadających zasoleniu miejsca pochodzenia. W dodatkowym doświadczeniu z larwami ze strefy mieszania obniżone zasolenie sprzyjało zwiększeniu udziału wariantów genetycznych typowych dla Mytilus trossulus. Wynik wspiera istnienie lokalnej adaptacji i selekcji jeszcze przed osiadaniem larw. Pokazuje też, że dorosła populacja jest rezultatem wcześniejszych etapów selekcji, których nie widać podczas samego pobierania omułków z dna. Badanie laboratoryjne nie wyznacza jednak dokładnego przyszłego przebiegu granic populacji w Bałtyku. [96]
Drugi eksperyment dotyczył larw rogowca bałtyckiego, opisanego w pracy jako Macoma balthica. Przez 20 dni utrzymywano je przy kontrolnym pH około 8,1 oraz obniżonym do około 7,7, 7,4 i 7,2. Przy obniżonym pH wzrost był wolniejszy i przeżywalność niższa. Wśród larw mierzonych pod koniec doświadczenia rozmiar 250 µm, uznany w tym układzie za wskaźnik zbliżającego się osiadania, osiągnęło 22% w kontroli oraz 7–14% w wariantach o obniżonym pH. Są to udziały w rozkładzie wielkości badanych larw, a nie odsetki przeżycia początkowej kohorty. [97]
Takie doświadczenia pomagają łączyć fizjologię z ekologią populacji. Zmiana warunków może wpłynąć zarówno na liczbę osobników przeżywających rozwój, jak i na czas osiągnięcia kolejnego stadium. Do interpretacji terenowej potrzebne są jednak również dane o faktycznym przebiegu ekspozycji. Stałe warunki laboratoryjne odpowiadają na inne pytanie niż krótkie, powtarzające się epizody w morzu.
Rozdział 18Inwazje biologiczne i mechanizmy ich wpływu
Od transportu do rozprzestrzenienia
Ramy Blackburna i współautorów rozdzielają transport poza naturalny zasięg, introdukcję do środowiska, zadomowienie i dalsze rozprzestrzenianie. Poszczególne przejścia wymagają pokonania innych barier. Przeżycie przewozu nie dowodzi trwałego rozrodu, a pojedynczy epizod rozrodu nie musi wystarczyć do utrzymania populacji. Autorzy oddzielają przebieg inwazji od wielkości wpływu na środowisko. Oddziaływanie trzeba zatem zmierzyć osobno; nie jest ono prostą funkcją liczby punktów występowania na mapie. [98]
W odniesieniu do mięczaków użyteczne są dwa równoległe opisy. Pierwszy dotyczy drogi i trwałości zasiedlenia. Drugi określa, co zmienia się w zajętym ekosystemie: zasoby pokarmu, obieg pierwiastków, siedlisko albo liczebność innych organizmów. Dzięki temu pytanie o powstrzymanie transportu nie miesza się z pytaniem o skutki dużego, już istniejącego zgrupowania.
Rzeczywista droga przenoszenia bywa ukryta
Johnson, Ricciardi i Carlton kontrolowali sprzęt oraz ankietowali użytkowników łodzi nad jeziorem St Clair. Larwy Dreissena polymorpha znajdowano w różnych rodzajach przewożonej wody. Dorosłe i młodociane racicznice były natomiast transportowane przede wszystkim na roślinach zaplątanych w przyczepy, rzadziej na kotwicach. Przy analizowanych wodowaniach nie stwierdzono oczekiwanej przez wielu bezpośredniej drogi przez przytwierdzenie małży do samych krótkotrwale użytkowanych łodzi. Wynik dotyczył konkretnej kategorii ruchu i miejsc kontroli. Nie wyklucza transportu na kadłubach jednostek pozostających długo w wodzie. [99]
W tej próbie małże na roślinach związanych z przyczepami dotyczyły 5,3% odjeżdżających łodzi, a na kotwicach 0,9%. Po połączeniu obserwacji z założeniami o przeżywaniu poza wodą i deklarowanymi trasami autorzy oszacowali, że najwyżej 0,12% łodzi na przyczepach dostarczało żywe dorosłe osobniki do wód śródlądowych przez sam transport zaplątanych makrofitów. Pierwsze dwie wartości opisują wykrycie nośnika; ostatnia jest oszacowaniem jego skuteczności transportowej, a nie częstością udanego zadomowienia. [99]
To rozróżnienie zmienia przedmiot obserwacji: sama lista przewożonych łodzi może nie ujawnić najważniejszego nośnika. Trzeba ustalić, gdzie znajdują się żywe stadia, czy pozostają w wodzie lub wilgotnym materiale oraz dokąd trafia sprzęt. Dodatkowo wykrycie organizmu podczas wyjazdu znad jeziora opisuje możliwość eksportu. Potwierdzenie jego przeżycia po przewozie i rozpoczęcia populacji w nowym zbiorniku wymaga dalszych danych.
Filtracja może zmienić podstawę sieci pokarmowej
W estuarium Hudsonu Caraco i współautorzy porównali lata poprzedzające inwazję racicznicy z okresem jej dużej biomasy. W latach 1993–1994 presja konsumpcyjna na fitoplankton była ponad dziesięciokrotnie większa niż wcześniej, a jego biomasa spadła o około 85%. Letnie stężenie chlorofilu wynosiło średnio około 30 mg/m³ w latach 1987–1991 i poniżej 5 mg/m³ w latach 1993–1994. Model mechanistyczny odtwarzał spadek przy uwzględnieniu filtracji. Badano też alternatywne wyjaśnienia, w tym światło, fosforany i przepływ. Siła wniosku wynikała z połączenia szeregu czasowego z modelem, a nie tylko ze współwystępowania małży i przejrzystszej wody. [100]
Fosfor może zmienić drogę przez ekosystem
Li i współautorzy analizowali bilans fosforu w Wielkich Jeziorach Ameryki Północnej, uwzględniając racicznice, w tym quagga. Model rozdzielał fosfor w wodzie, żywych i martwych tkankach, muszlach oraz odchodach i pseudofekaliach. Kalibrację wspierały pomiary w jeziorach Michigan i Huron. Wyniki wskazywały, że dynamika zgrupowań małży może silnie regulować dostępność fosforu w czterech intensywnie skolonizowanych jeziorach. Jeziora Górnego nie należy przedstawiać jako równorzędnego przykładu tego stanu. Model operował wieloletnią dynamiką i wartościami uśrednionymi; nie odtwarzał szczegółowo każdego sezonu i zatoki. [101]
Zmniejszenie zawiesiny w wodzie i trwałe usunięcie pierwiastka z ekosystemu wymagają odmiennych bilansów. Ocena skutku inwazji powinna wskazywać, czy mierzy stężenie, zapas w organizmach, czy strumień przemieszczania substancji. Dopiero wtedy można porównywać wyniki z różnych jezior. Ten sam kierunek zmiany przejrzystości nie gwarantuje identycznej odpowiedzi producentów, konsumentów i osadów dennych.
Rozród Corbicula nie mieści się w jednym prostym schemacie
U części linii Corbicula występuje androgenetyczny sposób rozrodu: jądrowy materiał genetyczny potomstwa pochodzi zasadniczo od plemnika. Osobniki tych linii są obojnakami; mogą zapładniać własne komórki jajowe lub korzystać z jaj pokrewnych form. Hedtke, Glaubrecht i Hillis porównali markery jądrowe z mitochondrialnymi. Znaleźli sygnały rzadkiego przechwytywania także matczynego DNA jądrowego. Dlatego opis tych linii jako całkowicie niezmiennych klonów byłby zbyt prosty. Autorzy rozważali możliwe znaczenie takiej wymiany dla utrzymywania zmienności. Badanie nie stanowiło jednak testu, jaka część tempa inwazji wynika z androgenetycznego rozrodu. Nie dotyczyło też wszystkich gatunków rodzaju. [102]
Istotną konsekwencją dla badań pochodzenia populacji jest możliwość odmiennej historii markerów jądrowych i mitochondrialnych. U androgenetycznych Corbicula mitochondria pozostają dziedziczone po komórce jajowej, podczas gdy jądro zarodka ma zwykle pochodzenie ojcowskie. Pojedyncze drzewo mitochondrialne nie opisuje więc automatycznie historii całego genomu. Porównywanie kilku typów markerów pozwala testować wyjaśnienia rozbieżności, zamiast uznawać każdą z nich za błąd oznaczenia osobnika. [102]
Załamanie liczebności także zmienia funkcjonowanie rzeki
Podczas gorącego i suchego lata 2012 r. McDowell, McDowell i Byers udokumentowali śmierć ponad 99% Corbicula na badanym, około dziesięciokilometrowym odcinku Broad River w Georgii. Szacowany czas przefiltrowania objętości tego odcinka wzrósł z około 5 godzin do ponad 1200 godzin. Była to wielkość obliczona z objętości wody i łącznej zdolności filtracji, nie zmierzony czas przepływu rzeki. W strefie śnięcia stwierdzono również podwyższone stężenia rozpuszczonych form fosforu. Autorzy zachowali ostrożne oznaczenie Corbicula ze względu na złożoność taksonomiczną grupy. Opisali lokalne zdarzenie i jego następstwa, a nie uniwersalny próg tolerancji cieplnej. [103]
Tabela 13. Udokumentowane mechanizmy oddziaływania obcych małży
| Układ i zakres | Główny mechanizm | Co rzeczywiście oceniono |
|---|---|---|
| Dreissena polymorpha, Hudson, porównanie okresów 1987–1991 i 1993–1994 | Zwiększona konsumpcja fitoplanktonu | Szereg pomiarów i model zmian biomasy planktonu. [100] |
| Racicznice w czterech skolonizowanych Wielkich Jeziorach, model opublikowany w 2021 r. | Przechwytywanie i redystrybucja fosforu | Wieloletni bilans obejmujący tkanki, muszle i produkty metabolizmu. [101] |
| Corbicula, Broad River, lato 2012 r. | Utrata filtracji i uwalnianie składników z martwej biomasy | Pomiary terenowe, oszacowanie filtracji i doświadczenie w mezokosmosach. [103] |
Ocena wpływu wymaga właściwego porównania
Profesjonalny opis inwazji powinien prowadzić od obserwacji do mechanizmu i dopiero potem do oceny następstw. Należy wskazać obszar, okres, tożsamość organizmu i wielkość, która się zmieniła. Pomocne pytanie brzmi: jaki wynik uzyskalibyśmy w podobnych warunkach bez badanego oddziaływania? Można do niego zbliżać się przez obserwacje sprzed kolonizacji, obszar porównawczy, doświadczenie lub model sprawdzony na niezależnych danych. Każda metoda ma inny zakres wnioskowania.
Istotna jest również kolejność zdarzeń. Zastąpienie utraconej funkcji w zdegradowanym układzie nie dowodzi, że przybysz spowodował wcześniejszy zanik rodzimego gatunku. Spadek jego liczebności nie przesądza natomiast o szybkim odtworzeniu poprzedniego stanu środowiska. Tak postawiona analiza pozwala opisywać zarówno presję obcego mięczaka, jak i następstwa zmian jego populacji, bez przypisywania wszystkim inwazjom jednakowego przebiegu.
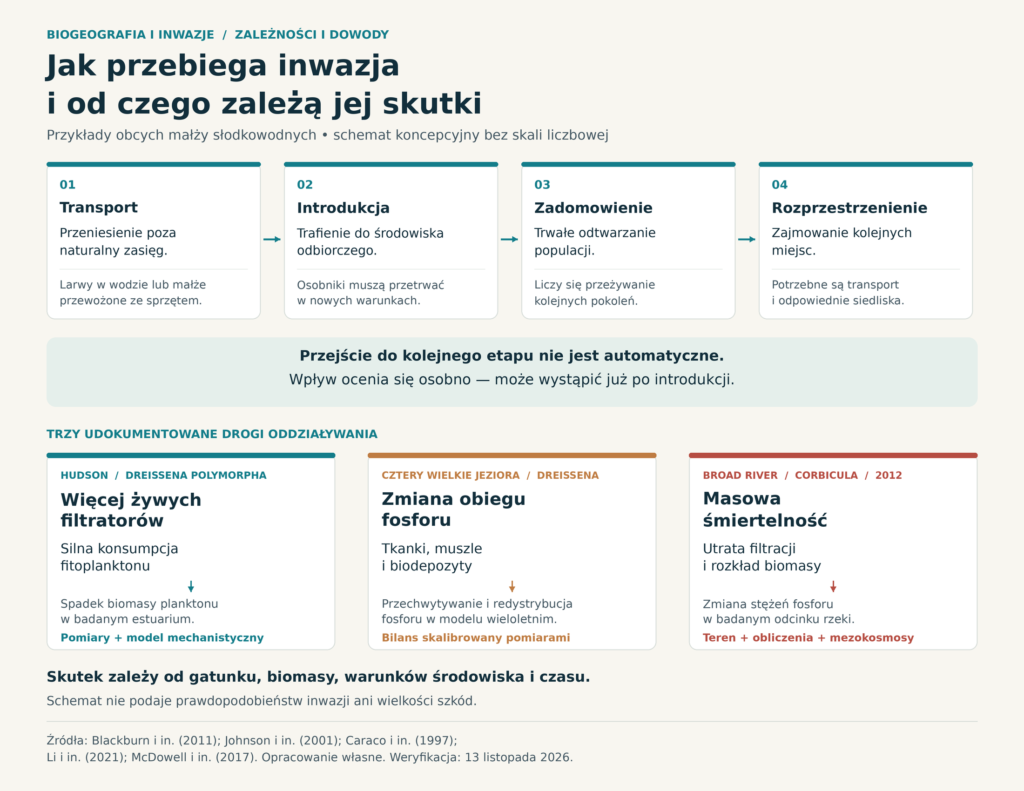
Rozdział 19Znaczenie gospodarcze i dane o produkcji
Akwakultura i połowy odpowiadają na różne pytania
Akwakultura oznacza produkcję organizmów wodnych z ingerencją w proces chowu, na przykład poprzez obsadę, ochronę lub kontrolę warunków. Nie musi oznaczać intensywnego dokarmiania. Połowy odnoszą się natomiast do pozyskiwania dziko żyjących zasobów. Dla oceny środowiskowej są to odmienne drogi uzyskania produktu, wymagające innych informacji o oddziaływaniu. [104]
Według raportu FAO SOFIA 2026 światowa akwakultura mięczaków wyniosła w 2024 r. 20,493 mln ton w ekwiwalencie masy żywej. Zestawienie grup przedstawiono poniżej. [105]
Tabela 14. Światowa akwakultura mięczaków w 2024 roku
| Grupa statystyczna FAO | Mln ton masy żywej | Udział w akwakulturze mięczaków |
|---|---|---|
| Ostrygi | 8,193 | 40,0% |
| Grupa „clams” | 4,843 | 23,6% |
| Przegrzebki | 2,157 | 10,5% |
| Omułki morskie | 1,828 | 8,9% |
| Grupa „razor clams” | 0,893 | 4,4% |
| Pozostałe mięczaki | 2,579 | 12,6% |
| Razem | 20,493 | 100,0% |
Źródło: FAO, SOFIA 2026, tabela 1.5, s. 27; dane za 2024 r. Kategorie mają charakter statystyczny, a nie jednakową rangę taksonomiczną. [105]
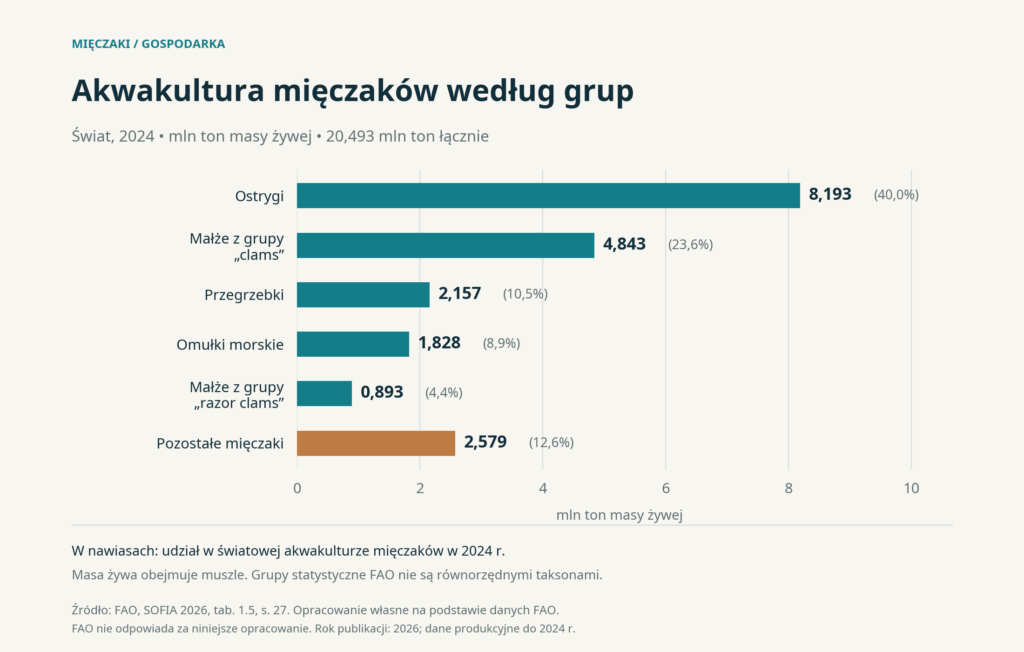
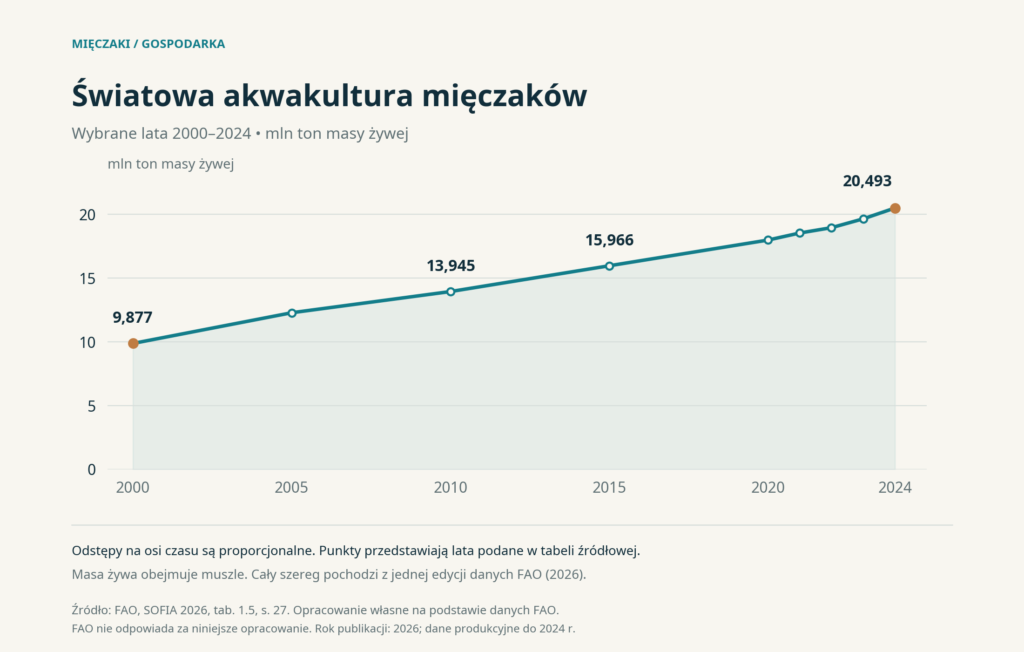
Dlaczego masa muszli ma znaczenie
W statystyce masa żywa mięczaków obejmuje muszlę. Nie można jej utożsamiać z masą mięsa, porcjami żywności ani ilością białka. Porównanie ton całych ostryg z tonami produktu już wyłuskanego wymaga przeliczenia do wspólnej definicji. Dane liczbowe mogą być poprawne, a mimo to zestawienie może prowadzić do błędnego wniosku, jeśli różni się forma produktu. [106, 107]
Także procent wymaga jasno wskazanego mianownika. Według Eurostatu omułki odpowiadały za 32,8% masy całej akwakultury UE w 2024 r. Ten odsetek dotyczy wszystkich hodowanych organizmów uwzględnionych w zestawieniu, a nie udziału omułków wyłącznie wśród mięczaków ani udziału w wartości sprzedaży. [5]
Co można wywnioskować z wykresu
Wykres produkcji opisuje działalność gospodarczą i jej raportowanie. Nie jest licznikiem dzikich zwierząt, wskaźnikiem ich kondycji ani dowodem, że rośnie różnorodność gatunkowa. Wielkość produkcji może się zmieniać wraz z powierzchnią hodowli, techniką, warunkami środowiskowymi, popytem i sposobem raportowania. Rozstrzygnięcie, który czynnik przeważał, wymaga dodatkowego badania.
Podobnie wzrost całego sektora nie opisuje automatycznie każdej grupy. Odczytując szereg czasu, należy porównywać te same kategorie oraz sprawdzać, czy wcześniejsze wartości nie zostały zrewidowane. Z tego powodu w załączonym zestawie danych zachowano jeden rocznik źródłowy, zamiast łączyć liczby z różnych edycji raportu.
Chów małży i jego bilans środowiskowy
Ostrygi w fazie wzrostu w środowisku morskim mogą korzystać z naturalnego fitoplanktonu bez podawania paszy. Ta cecha odróżnia takie systemy od produkcji wymagającej dostarczania dużych ilości karmy. Nie należy jednak rozszerzać twierdzenia na wszystkie mięczaki ani wszystkie etapy pracy wylęgarni. [108]
Pełna ocena obejmuje także pochodzenie materiału do obsady, lokalizację, zagęszczenie, jakość wody i skutki dla dna. Wysoki tonaż nie jest wystarczającą miarą sukcesu środowiskowego. Przyrodniczo i gospodarczo korzystny system musi pozostawać zgodny z możliwościami miejsca, w którym jest prowadzony.
Co dokładnie mierzy statystyka akwakultury
Zakwalifikowanie mięczaków do akwakultury zależy od sposobu gospodarowania nimi. Standard CWP, stosowany w statystyce rybackiej, łączy ingerencję w proces chowu z własnością utrzymywanych organizmów. Ingerencją może być obsadzanie stanowiska albo ochrona przed drapieżnikami. Sam fakt, że zwierzę rośnie w otwartej zatoce i korzysta z naturalnego pokarmu, nie przesądza więc o pochodzeniu z połowów. Z kolei pozyskiwanie zwierząt ze wspólnie dostępnego zasobu pozostaje połowem także wtedy, gdy wymaga zezwolenia. Ta definicja statystyczna pozwala porównywać sposoby produkcji, ale nie zastępuje krajowych przepisów o użytkowaniu wód. [104]
Ważna jest również granica między etapami działalności. Eurostat oddziela produkcję przeznaczoną do spożycia, raportowaną przy pierwszej sprzedaży, od produkcji wylęgarni i podchowalni oraz materiału obsadowego pozyskanego z natury. Jaja i młode osobniki mogą być wykazywane w liczbie sztuk, podczas gdy zbiór handlowy podaje się w masie żywej. Sumowanie tych kategorii jako kolejnych porcji gotowej żywności zawyżałoby wynik: część danych opisuje wejście do procesu chowu, a część jego produkt. [109]
Tabela 15. Różne miary działalności związanej z mięczakami
| Miara | Co opisuje | Warunek poprawnej interpretacji |
|---|---|---|
| Produkcja z akwakultury | Wynik chowu w określonym okresie | Wskazać gatunek lub grupę, środowisko i jednostkę |
| Materiał obsadowy | Zwierzęta kierowane do dalszego chowu | Oddzielić go od zbioru przeznaczonego do konsumpcji |
| Masa produktu handlowego | Towar w postaci oferowanej do sprzedaży | Podać, czy obejmuje muszle i jakiemu przetworzeniu go poddano |
| Wartość pierwszej sprzedaży | Wartość produktu na początku łańcucha handlowego | Odróżnić ją od ceny detalicznej i wyniku finansowego farmy |
| Wielkość połowów | Pozyskanie zasobów dziko żyjących | Zachować zakres morski lub śródlądowy oraz definicję masy |
Źródła: standardy CWP i metadane Eurostatu; tabela porządkuje definicje, a nie sumowalne składniki jednej wielkości. [104, 109, 110, 111, 112]
Masa żywa i masa mięsa w przeliczeniach statystycznych
Masa żywa mięczaków obejmuje muszle, co Eurostat wyraźnie wskazuje w podręczniku statystyki akwakultury. Zapis „ekwiwalent masy żywej” pozwala odnieść różne formy produktu do wspólnego punktu pomiaru. Nie określa jednak ilości części jadalnej. Dlatego dużej produkcji wyrażonej w tonach nie można bezpośrednio przełożyć na liczbę porcji żywności ani ilość dostarczanego białka. [106]
Przeliczenie wymaga współczynnika właściwego dla konkretnego produktu. Jeżeli współczynnik oznacza iloraz masy żywego organizmu i masy uzyskanego produktu, obowiązuje zależność: ekwiwalent masy żywej = masa produktu × współczynnik przeliczeniowy. CWP zwraca uwagę na wpływ gatunku, rozmiaru zwierząt, sposobu obróbki, sezonu i obszaru pozyskania. Jednego przelicznika nie należy zatem przenosić pomiędzy ostrygą sprzedawaną w muszli, mięsem omułków i innymi produktami z mięczaków. Współczynnik powinien mieć własne źródło oraz jasno opisany zakres zastosowania. [110]
Takie rozróżnienie ma szczególne znaczenie w handlu zagranicznym, którego masy produktów często odnoszą się do towaru w określonej postaci. Zestawienie eksportu z produkcją wymaga najpierw zgodności jednostek. Konwersja poprawia porównywalność, lecz sama wprowadza niepewność, zwłaszcza przy produktach silnie przetworzonych. Brak wiarygodnego przelicznika powinien pozostać jawnym ograniczeniem analizy. [110]
W statystyce połowowej trzeba ponadto odróżnić masę wyładowanego produktu od szerszego oddziaływania pozyskania. CWP wskazuje, że organizmy odrzucone z połowu lub te, które zetknęły się z narzędziem i wydostały się z niego, również mogą mieć znaczenie ekologiczne. Tona produktu dostarczonego na ląd nie opisuje automatycznie całego wpływu operacji na środowisko. Rzetelne porównanie połowów i chowu potrzebuje zatem wskaźników wykraczających poza samą masę sprzedanego produktu. [111]
Jak porównać tempo zmian produkcji
Indeks pozwala porównać względne zmiany grup o bardzo różnych wielkościach produkcji. Dla każdej serii jej wartość z 2000 r. przyjęto jako 100, a kolejne wartości obliczono według wzoru Iₜ = 100 × Qₜ / Q₂₀₀₀, gdzie Q oznacza produkcję. Wykorzystano wszystkie dziewięć lat podanych w tabeli 1.5 raportu SOFIA 2026. Trzy serie pochodzą z tej samej tabeli i tej samej edycji danych. [105]
Tabela 16. Indeks światowej akwakultury wybranych grup, 2000 = 100
| Rok | Wszystkie mięczaki | Ostrygi | Omułki morskie |
|---|---|---|---|
| 2000 | 100,0 | 100,0 | 100,0 |
| 2005 | 124,4 | 115,9 | 131,5 |
| 2010 | 141,2 | 122,8 | 136,1 |
| 2015 | 161,6 | 140,8 | 139,3 |
| 2020 | 182,0 | 171,1 | 156,5 |
| 2021 | 187,6 | 181,8 | 155,1 |
| 2022 | 191,9 | 192,5 | 147,5 |
| 2023 | 198,9 | 203,9 | 142,8 |
| 2024 | 207,5 | 219,6 | 139,9 |
Obliczenia własne z mas produkcji FAO, SOFIA 2026, tabela 1.5, s. 27. Indeksy zaokrąglono do jednego miejsca po przecinku. Każda grupa ma własną bazę 100; wartości nie są udziałami procentowymi. [105]
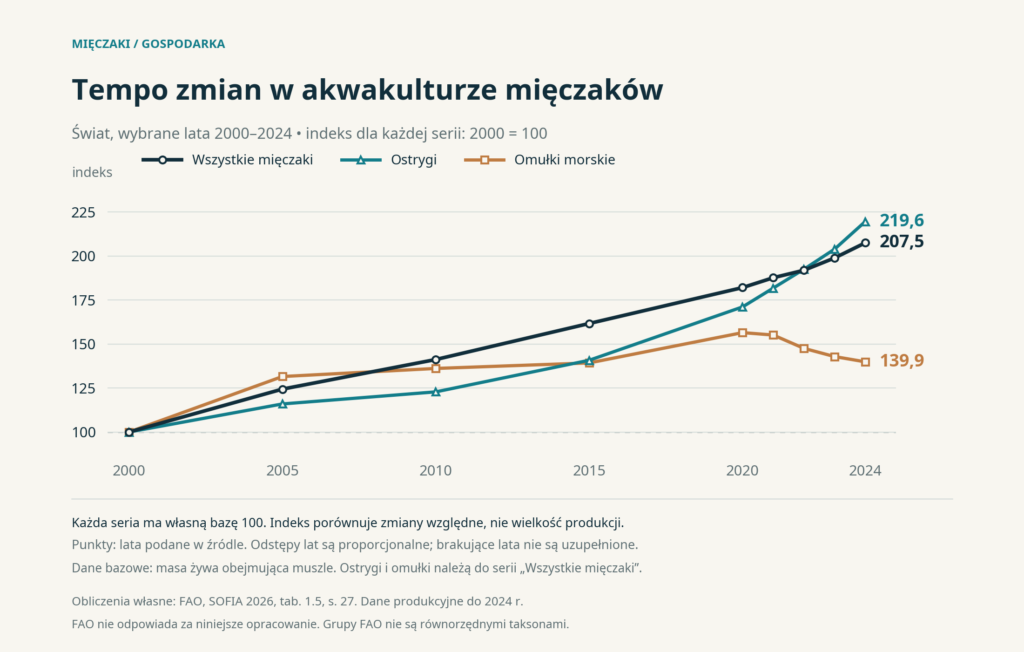
Między 2000 a 2024 r. łączna produkcja wzrosła z 9,877 do 20,493 mln ton, czyli o 10,616 mln ton. Względną zmianę obliczono jako 100 × (Q₂₀₂₄ / Q₂₀₀₀ − 1). Wynik to 107,5% po zaokrągleniu. Indeks 207,5 oznacza zatem poziom około 2,075 razy większy od poziomu bazowego. Wszystkie te wielkości są własnymi obliczeniami z tego samego szeregu. [105]
Średnie roczne składane tempo wzrostu, oznaczane skrótem CAGR, wynosi 100 × [(20 493 / 9 877)1/24 − 1] = około 3,09% rocznie. Wykładnik odnosi się do 24 lat, które upłynęły między pomiarami. CAGR odpowiada hipotetycznemu stałemu tempu łączącemu punkt początkowy i końcowy. Nie mówi, że w każdym roku odnotowano taki wzrost, i nie jest prognozą na następne lata. Obliczenie opiera się na wartościach tabeli już zaokrąglonych do tysiąca ton.
Wspólna skala indeksu uwidacznia różnice między seriami: w 2024 r. ostrygi przekraczały dwukrotność poziomu bazowego, podczas gdy indeks omułków morskich pozostawał niższy niż w 2020 r. Te wnioski dotyczą zmian produkcji. Przyczyny rozbieżności wymagałyby osobnej analizy, a indeks sam nie określa wielkości poszczególnych rynków. Łączna seria obejmuje również obie porównywane grupy, więc trzy linie nie reprezentują rozłącznych części, które należałoby sumować.
Jedna edycja danych dla całego szeregu
Porównanie zachowuje wspólną wersję danych historycznych. Ma to znaczenie, ponieważ statystyki mogą być rewidowane: Eurostat przewiduje zastępowanie informacji wstępnych danymi ostatecznymi i korygowanie rozpoznanych błędów. Łączenie starej wartości początkowej z nowo zrewidowaną wartością końcową mogłoby mieszać zmianę produkcji ze zmianą stanu wiedzy o niej. Przy aktualizacji wykresu należy więc pobrać cały potrzebny szereg z jednego wydania i zapisać datę danych, rok publikacji oraz definicję miary. [109]
Rozdział 20Systemy chowu i interpretacja korzyści gospodarczych
Systemy chowu i odmienne źródła kosztów
Technologia chowu wpływa na to, jakie zadania przejmuje gospodarstwo, a jakie procesy zachodzą w otaczającym środowisku. Wylęgarnia może dostarczać materiał obsadowy w bardziej przewidywalny sposób, wspierając zarówno produkcję żywności, jak i odtwarzanie populacji. Jest jednak odrębnym etapem, z własną infrastrukturą i organizacją pracy. Opis fermy powinien więc określać, czy obejmuje ona cały cykl produkcji, czy kupuje lub pozyskuje materiał do dalszego chowu. [113]
W przypadku omułków NOAA opisuje zarówno obsadzanie dna młodymi osobnikami, jak i chów ponad dnem: na linach, tratwach lub palach. Materiał obsadowy może pochodzić z naturalnego osiadania. Podczas dalszego wzrostu zwierzęta filtrują naturalny pokarm z wody, bez konieczności dodawania paszy. Taki system nadal wymaga utrzymania konstrukcji i organizacji zbioru; zależy też od warunków miejsca, w którym umieszczono obsadę. [114]
Tabela 17. Przykładowe systemy chowu i elementy ich oceny
| System i przykład | Główna cecha | Co uwzględnić w ocenie nakładów i ograniczeń |
|---|---|---|
| Chów ostryg bez konstrukcji na odpowiednim dnie | Mało elementów wyposażenia pozostających w wodzie | W opracowaniu dla Florydy opisany jako najmniej intensywny i najtańszy z omawianych wariantów; pozostaje narażenie na zamulanie i drapieżniki |
| Ostrygi w workach i koszach ponad dnem | Łatwiejsze prowadzenie obsady i ograniczenie części strat związanych z drapieżnictwem | Wyposażenie oraz usuwanie organizmów obrastających konstrukcje; obsługa może zwiększać nakład pracy |
| Omułki na linach lub tratwach | Wykorzystanie przestrzeni w toni wodnej i naturalnego pokarmu | Sposób mocowania, utrzymanie wyposażenia oraz metoda zbioru właściwa danej instalacji |
| Uchowce w zbiornikach na lądzie | Dostarczanie wody morskiej i pokarmu do zwierząt | W opisanej farmie kalifornijskiej: pompowanie wody, podawanie glonów, ważenie i sortowanie osobników |
Źródła: UF/IFAS oraz opisy technologii i gospodarstwa opublikowane przez NOAA. Porównanie ma charakter jakościowy; nie jest rankingiem opłacalności. [115, 114, 116]
Opracowanie UF/IFAS pokazuje konkretny kompromis w chowie ostryg: odsunięcie obsady od dna może ułatwiać dostęp do pokarmu i ograniczać drapieżnictwo, lecz konstrukcje obrastają innymi organizmami. Obrastanie obciąża wyposażenie, utrudnia przepływ wody i wymaga obsługi. Automatyzacja niektórych czynności odpowiada właśnie na ten nakład pracy. Wniosku o niższych kosztach określonego wariantu nie można bez dodatkowej analizy przenieść z Florydy na inną lokalizację. [115]
Uchowce pokazują natomiast, dlaczego określenie „mięczaki hodowane bez paszy” jest zbyt szerokie. NOAA opisuje farmę w Santa Barbara, gdzie te ślimaki utrzymuje się w zbiornikach z pompowaną wodą morską i karmi glonami uprawianymi na miejscu lub pozyskiwanymi z morza. To udokumentowany przykład innej organizacji chowu, z regularnym karmieniem i indywidualnym sortowaniem. Nie wyznacza średniego kosztu całego sektora uchowców. [116]
Od wartości sprzedaży do wyniku gospodarstwa
W statystyce Eurostatu wartość jednostkową produkcji uzyskuje się przez podzielenie wartości produkcji, bez wykazanego na fakturach VAT, przez jej wielkość w ekwiwalencie masy żywej. Jest to miara oparta na pierwszej sprzedaży. W zestawieniach międzynarodowych znaczenie ma również przeliczenie waluty; podręcznik wskazuje średni roczny kurs wymiany. Porównywanie takich wartości z cenami sklepowymi wymaga uwzględnienia odmiennego etapu obrotu. [106]
Średnia wartość jednostkowa grupy może wzrosnąć wskutek zmiany jej składu, nawet gdy cena każdego z jej produktów pozostaje stała. Jest to własność średniej ważonej: większy udział droższej kategorii podnosi wynik zbiorczy. Dlatego z samej wartości sprzedaży i łącznej masy nie da się ustalić, czy zmieniły się ceny, struktura gatunkowa, wielkość zwierząt czy postać sprzedawanego produktu. Wyjaśnienie wymaga odpowiednio szczegółowych danych.
Standard ekonomiczny CWP odróżnia przychody od wyniku po uwzględnieniu kosztów. Wymienia m.in. pracę, energię, materiał obsadowy, pasze, naprawy, opakowania, ubezpieczenia, opłaty oraz zużycie kapitału. Dla działalności rodzinnej istotna jest także praca, za którą nie wypłaca się pensji. Pominięcie jej wartości może utrudnić porównanie z firmą zatrudniającą pracowników. Zakup urządzenia używanego przez wiele lat również wymaga rozróżnienia wydatku inwestycyjnego i kosztu jego zużywania w danym okresie. Duży obrót sam w sobie nie pozwala więc ocenić rentowności. [112]
W analizie zatrudnienia liczba osób i ekwiwalent pełnego czasu pracy odpowiadają na odmienne pytania. Standard CWP uwzględnia pracę sezonową i niepełny wymiar czasu. Dwa gospodarstwa zatrudniające tę samą liczbę ludzi mogą angażować inną liczbę godzin. Porównanie produkcji „na pracownika” wymaga zatem wspólnej definicji zatrudnienia. [112]
W europejskim raporcie STECF analizę rozdzielono według krajów i segmentów działalności, a metodologia obejmuje m.in. wycenę nieopłaconej pracy. Warto też rozróżniać daty: dokument zatytułowany The 2024 Aquaculture Economic Report opublikowano w 2025 r., a jego dane historyczne obejmują lata do 2022 r. oraz szacunki dla 2023 r. Takie opóźnienie nie odbiera raportowi wartości, lecz określa, do jakiego okresu można odnieść wnioski. Wyniku jednego segmentu lub kraju nie należy przedstawiać jako wyniku wszystkich europejskich farm mięczaków. [117]
Usługa ekosystemowa i pieniądze otrzymywane przez producenta
Wycena korzyści środowiskowej może posługiwać się inną metodą niż rachunek sprzedaży. W opisanym przez NOAA badaniu dla Greenwich oszacowano wartość usuwania azotu przez chów małży, porównując ją z kosztami alternatywnych działań: oczyszczania ścieków, modernizacji systemów sanitarnych i gospodarowania wodami opadowymi. Taka wycena pokazuje ekonomiczne znaczenie usługi dla społeczności. Nie oznacza kwoty, którą właściciel farmy otrzymał za sprzedaż zwierząt lub za usługę środowiskową. [118]
Także fizyczna wielkość usługi wymaga lokalnego obliczenia. W pracy Bayer i współautorów model FARM, dostosowany do warunków hodowli ostryg w Greenwich, dał różne wyniki dla dwóch sposobów zbioru: 159 kg azotu na hektar rocznie przy zbiorze zwierząt osiągających rozmiar handlowy oraz 274 kg przy jednorazowym zbiorze całej obsady. Są to wyniki modelowania określonego gospodarstwa i założeń, a nie uniwersalne normy usuwania azotu. Przykład pokazuje, dlaczego wycena wymaga opisania technologii, miejsca i scenariusza. [119]
Rozdział 21Główne zagrożenia
Presje mają charakter łączny
Spadek liczebności rzadko da się wyjaśnić jedną przyczyną wspólną dla wszystkich mięczaków. W badaniu globalnej próby gatunków słodkowodnych ważnymi presjami były zanieczyszczenie i przekształcanie systemów rzecznych, w tym zmiany związane z piętrzeniem i gospodarowaniem wodą. Lokalna hierarchia zagrożeń może być inna. [120]
Znaczenie ma również etap życia. Dorosły małż może tolerować warunki, w których larwy albo młodociane osobniki nie kończą rozwoju. Ochrona oparta wyłącznie na widocznych dorosłych zwierzętach może więc przeoczyć problem odnowy populacji. Do oceny potrzebna jest struktura wieku lub wielkości oraz informacja o cyklu rozwojowym i gospodarzach. [59, 47]
Tabela 18. Presje środowiskowe i mechanizmy oddziaływania
| Presja | Możliwy mechanizm | Co warto sprawdzać w terenie lub monitoringu |
|---|---|---|
| Zanieczyszczenie wód | Zmiana warunków fizjologicznych i dostępności odpowiedniego siedliska | Parametry wody, źródła dopływu, kondycję organizmów |
| Regulacja cieków i piętrzenie | Zmiana przepływu, podłoża i łączności siedlisk | Ciągłość rzeki, warunki dna, dostępność gospodarzy larw |
| Pobór wody i przesuszenie | Utrata zanurzonych lub wilgotnych mikrośrodowisk | Przebieg poziomu wody i czas trwania niskich stanów |
| Przekształcenie mokradeł | Zmiana uwilgotnienia i roślinności | Warunki w mikrośrodowiskach drobnych ślimaków |
| Gatunki obce | Nowe interakcje i zmiana przepływu materii | Drogi transportu, rozmieszczenie i zmiany w rodzimych zespołach |
| Zakwaszanie wód morskich | Zmiana równowagi węglanowej i warunków kalcyfikacji | pH razem z pozostałymi parametrami układu węglanowego |
| Nadmierna presja miejscowa | Zaburzenie równowagi między użytkowaniem a odnową zasobów | Stan siedlisk i zdolność populacji do odtwarzania |
Synteza mechanizmów na podstawie badań i dokumentów monitoringu; tabela nie przypisuje jednakowej wrażliwości wszystkim gatunkom. [120, 121, 88, 92, 94, 122]
Zakwaszanie nie oznacza od razu odczynu kwaśnego
Zakwaszanie oceanu jest spadkiem pH związanym ze zmianami chemii wody po pochłanianiu dwutlenku węgla. Woda może stawać się bardziej kwaśna w porównaniu z wcześniejszym stanem, a jednocześnie nadal mieć odczyn zasadowy. Nie trzeba osiągnąć pH poniżej 7, aby zmiana miała znaczenie biologiczne. [123]
Wzrost ilości rozpuszczonego CO2 zmienia równowagę układu węglanowego i może ograniczać dostępność jonów węglanowych. Dla organizmów budujących struktury z węglanu wapnia ma to znaczenie, ale skutki zależą między innymi od gatunku, stadium rozwoju i pozostałych warunków. Nie jest poprawne stwierdzenie, że przy każdym spadku pH wszystkie muszle natychmiast się rozpuszczają. [123, 122]
Bałtyk wymaga dodatkowej ostrożności, ponieważ lokalna chemia wód zależy także od procesów zachodzących w zlewni, zasolenia i przemian materii organicznej. Wskaźnik zakwaszania HELCOM pokazuje potrzebę pomiarów i interpretacji regionalnej. Średnia dla oceanu światowego nie zastępuje obserwacji konkretnej zatoki ani strefy przydennej. [122]
Zmiana jednego czynnika może odsłonić inny problem
Ograniczenie pojedynczej presji jest korzystne, ale nie gwarantuje odtworzenia populacji, jeżeli nadal brakuje siedliska, gospodarza lub dopływu młodych osobników. W praktyce działania trzeba oceniać jako całość. Na przykład odcinek rzeki o lepszej jakości wody może pozostać niedostępny dla właściwych ryb, jeśli oddziela go bariera. Jest to wniosek z zależności cyklu rozwojowego, a nie uniwersalny scenariusz każdego stanowiska. [59]
Badanie mechanizmów presji środowiskowej
Kolmatacja i zmiany wewnątrz podłoża
Kolmatacja to zatykanie przestrzeni między ziarnami osadu. Dla młodych małży liczą się warunki w tych przestrzeniach, a nie wyłącznie skład wody płynącej nad dnem. Geist i Auerswald porównali 26 cieków w siedmiu krajach Europy zasiedlanych przez perłoródkę rzeczną. Stanowiska z dobrym odnawianiem populacji miały mniej drobnych cząstek i lepszą wymianę między wodą powierzchniową a wnętrzem podłoża. Przy braku rekrutacji różnice potencjału redoks między powierzchnią a głębokością 5 i 10 cm wskazywały na odmienność środowiska młodych. Pomiar chemii samej wody nad dnem nie wystarczał. [86]
Zestawienie tego wyniku z badaniem Białej wyjaśnia pozorną sprzeczność: drobny osad może tworzyć lokalne siedlisko odpowiednie dla jednego małża, a jego nadmierna akumulacja i zagęszczenie może niszczyć przestrzeń życiową innego. W diagnozie trzeba określić gatunek, stadium rozwojowe oraz funkcję badanego osadu.
Toksyczność amoniaku i znaczenie warunków wody
Zanieczyszczenia azotowe mogą działać różnymi drogami. Według EPA dostatecznie wysokie stężenie amoniaku w wodzie utrudnia organizmom jego skuteczne wydalanie, co prowadzi do toksycznego nagromadzenia w organizmie. Na toksyczność wpływają pH i temperatura. Amerykańskie zalecenia jakości wód z 2013 roku zaktualizowano między innymi po uwzględnieniu danych o wrażliwych małżach i ślimakach słodkowodnych. Mechanizm ten uzasadnia łączne analizowanie chemii wody i wrażliwości fauny. Zalecenia EPA są tu źródłem wiedzy toksykologicznej; nie są przedstawiane jako polskie normy prawne. [124]
Skutki suszy dla organizmów i ich funkcji
W rzece Kiamichi w Oklahomie porównano zespoły małży w okresie około dwudziestu lat obejmującym dwie dotkliwe susze. Spadki liczebności i biomasy wiązały się ze zmianami przepływu, nasilanymi przez gospodarkę wodną. Autorzy oszacowali również straty funkcji ekologicznych, łącząc pomiary biomasy w rzece z laboratoryjnymi tempami filtracji i obiegu składników. Ważne jest rozróżnienie poziomów dowodu: zmiany zespołu obserwowano w terenie, natomiast skalę zmian funkcjonowania obliczano na podstawie tych danych i pomiarów fizjologicznych. Pozwala to oszacować konsekwencje, lecz nie zastępuje bezpośredniego pomiaru wszystkich strumieni materii w rzece. [125]
Tabela 19. Od objawu do sprawdzalnej hipotezy
| Obserwacja | Możliwy mechanizm | Pomiar rozstrzygający kierunek dalszych badań |
|---|---|---|
| Dorosłe perłoródki pozostają, młodych brakuje | Pogorszenie wymiany wody wewnątrz podłoża | Uziarnienie, opór penetracji i pionowy profil redoks. [86] |
| Epizod zanieczyszczenia związkami amoniakalnymi | Bezpośrednia toksyczność zależna od warunków | Stężenie odpowiednio zdefiniowanej formy azotu, pH i temperatura. [124] |
| Zanik małży podczas niżówek | Zmiana reżimu przepływu i utrata siedlisk wodnych | Historia przepływu, biomasa i skład gatunkowy przed zdarzeniem oraz po nim. [125] |
| Utrzymanie dorosłych po reintrodukcji | Sukces części etapów cyklu, niepełna odnowa | Pojawianie się i dalsze przeżywanie młodych. [85] |
Rozdział 22Ochrona przyrody i właściwe odczytywanie statystyk
Ocena europejska z 2011 roku
Europejska Czerwona Lista Mięczaków Niemorskich z 2011 r. zestawiła 854 gatunki słodkowodne. Poniższe dane są historyczną oceną regionalną. Zachowują wartość jako udokumentowany punkt odniesienia i przykład interpretacji kategorii, ale nie opisują aktualnego stanu wszystkich mięczaków w 2026 r. [126]
Tabela 20. Kategorie europejskich mięczaków słodkowodnych w ocenie z 2011 roku
| Kategoria | Znaczenie | Liczba gatunków |
|---|---|---|
| EX | Wymarłe | 5 |
| CR | Krytycznie zagrożone | 109 |
| EN | Zagrożone | 90 |
| VU | Narażone | 174 |
| NT | Bliskie zagrożenia | 75 |
| LC | Najmniejszej troski | 190 |
| DD | Niedostateczne dane | 211 |
| Razem | Wszystkie zestawione gatunki | 854 |
Źródło: Cuttelod, Seddon i Neubert, 2011, tabela 3, s. 12. [126]
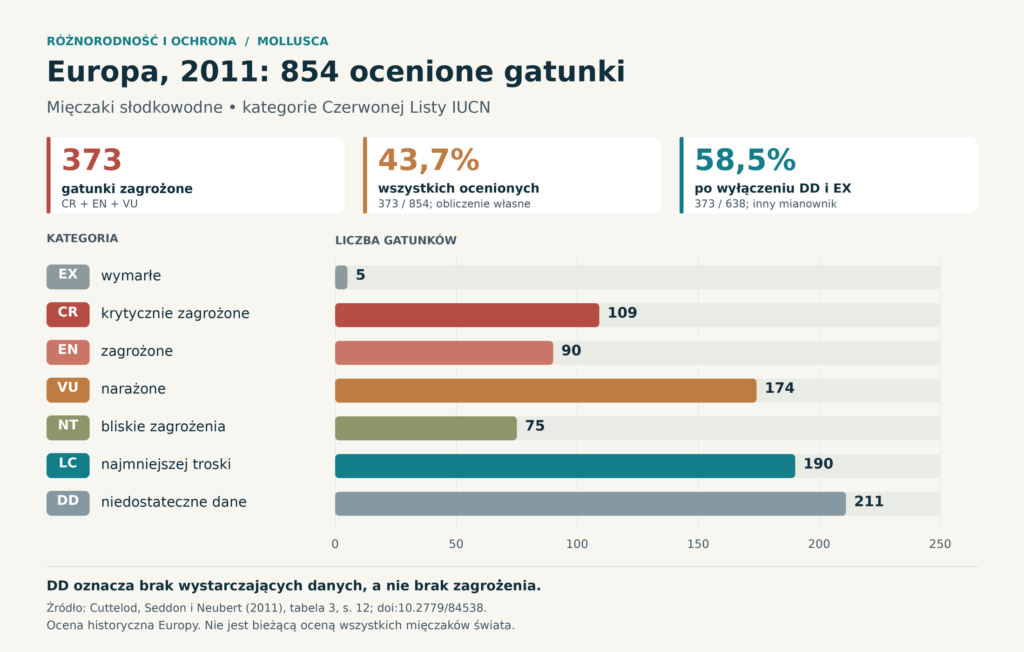
Ten sam licznik i dwa różne wyniki
Kategorie zagrożone CR, EN i VU obejmują łącznie 373 gatunki. Dzielenie 373 przez wszystkie 854 daje 43,7%. Po wyłączeniu 211 gatunków DD oraz 5 wymarłych mianownik wynosi 638, a udział to 58,5%. Są to obliczenia własne z tej samej tabeli, odpowiadające na różne pytania. [126]
Gatunek DD nie jest gatunkiem bezpiecznym; oznacza niewystarczające dane do oceny. Jednocześnie nie wolno automatycznie uznać wszystkich DD za zagrożone. Właśnie dlatego jeden procent, bez informacji o uwzględnionych i wyłączonych kategoriach, może wprowadzać w błąd. Rzetelne zestawienie zachowuje zarówno licznik, jak i mianownik.
Globalna próba badawcza
W publikacji Böhm i współautorów z tomu „Hydrobiologia” z 2021 r. oceniono losową próbę 1428 gatunków mięczaków słodkowodnych. Autorzy oszacowali, że blisko jedna trzecia jest zagrożona wymarciem. Jest to inny zakres i inna metoda niż europejskie zestawienie z 2011 r. Wynik nie powinien być używany jako bezpośrednia miara zmiany pomiędzy tymi dwiema datami. [120]
Porównanie trendu wymagałoby ponownej oceny porównywalnego zestawu gatunków i uwzględnienia zmian wiedzy. Samo zestawienie dwóch procentów z różnych opracowań nie dowodzi ani pogorszenia, ani poprawy. Zmiana może wynikać z geografii, doboru gatunków, metodologii lub lepszego poznania wcześniej słabo zbadanych grup.
Polska i monitoring skójki gruboskorupowej
Raport GIOŚ z badań w latach 2023–2024 podaje dla 58 stanowisk skójki gruboskorupowej w regionie kontynentalnym ogólną ocenę stanu ochrony: 0 stanowisk FV, 21 U1 i 37 U2. U2 stanowi 63,8% tej próby. To ocena wskazanych stanowisk monitoringowych, a nie procent wszystkich stanowisk lub wszystkich osobników w Polsce. [121]
Tabela 21. Ogólna ocena stanu ochrony skójki na badanych stanowiskach
| Kod | Znaczenie | Liczba stanowisk | Udział w 58 stanowiskach |
|---|---|---|---|
| FV | Właściwy | 0 | 0,0% |
| U1 | Niezadowalający | 21 | 36,2% |
| U2 | Zły | 37 | 63,8% |
Źródło: GIOŚ, monitoring 2023–2024, region kontynentalny, s. 24. Udziały obliczone z liczby stanowisk. [121]
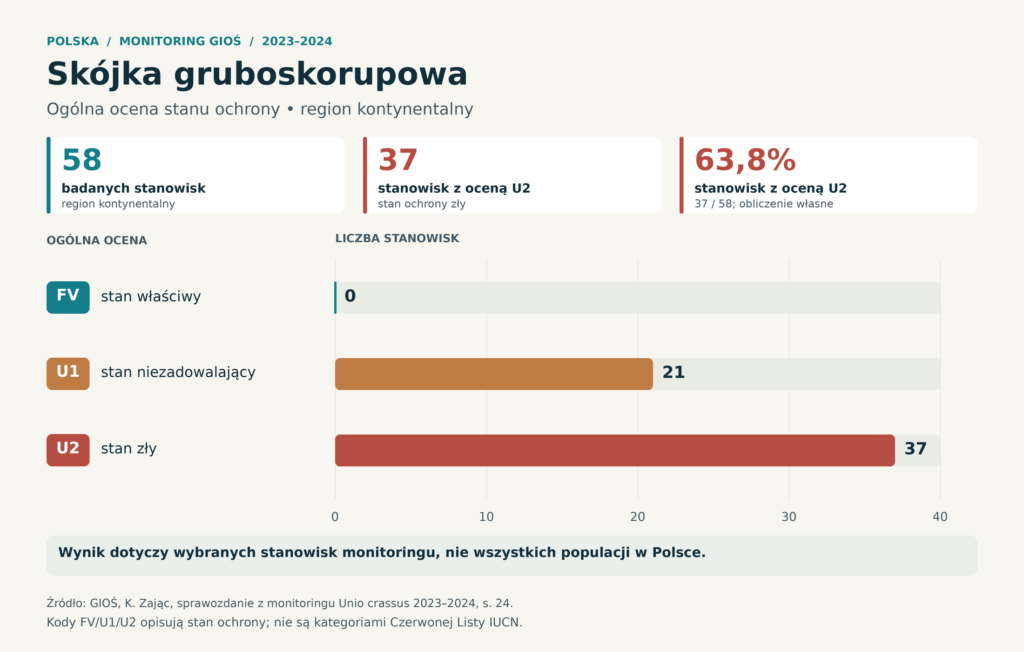
Co oznacza skuteczna ochrona
Ochrona mięczaków może wymagać zachowania przepływu i jakości wody, struktury dna, roślinności mokradeł oraz obecności odpowiednich gospodarzy larw. Cel warto określać biologicznie: utrzymanie zdolności populacji do odnowy, a nie samo przetrwanie ostatnich dużych osobników. [59, 121, 88]
Trzeba też odróżniać ocenę ryzyka wymarcia od ochrony prawnej i od stanu siedliska. Są to powiązane, lecz odrębne informacje. W razie planowanego zbioru, przenoszenia lub ingerencji w stanowisko konieczne jest sprawdzenie aktualnych przepisów i warunków dla danego miejsca. Niniejsze zestawienia służą wyjaśnieniu biologii i wyników badań; nie zastępują takiej weryfikacji.
Restytucja jako projekt z mierzalnym wynikiem
Wytyczne IUCN dotyczące translokacji ochronnych wskazują na potrzebę mierzalnego celu, oceny miejsca docelowego, właściwego pochodzenia osobników oraz wpływu ich pobrania na populację źródłową. Należy uwzględnić kwestie genetyczne, zdrowotne i ekologiczne. Monitoring rozpoczyna się od danych wyjściowych i służy późniejszej korekcie działań. Jego zakres może obejmować przeżywanie, rozród, rozprzestrzenianie się, wzrost populacji oraz odtwarzanie funkcji ekologicznych. Koszt i czas obserwacji powinny stanowić część projektu od początku. [87]
W praktyce oceny mięczaków warto rozdzielić cztery pytania: czy wprowadzone osobniki przetrwały, czy podjęły rozród, czy pojawiło się potomstwo oraz czy następne pokolenie utrzymuje się bez ciągłego uzupełniania. Są to kolejne poziomy wyniku, a nie zamienne określenia sukcesu. Dla projektu mającego odtworzyć proces ekologiczny potrzebny jest dodatkowo pomiar tego procesu, na przykład związanych z małżami przemian materii. Liczba wypuszczonych osobników opisuje nakład działania.
Wiarygodne porównanie powinno też zachować punkt odniesienia. Poprawa po interwencji może zbiec się ze sprzyjającym rokiem hydrologicznym. Jeżeli obserwuje się również podobne stanowiska bez interwencji, można lepiej ocenić, która część zmiany wiąże się z działaniem, a która ze wspólnym wpływem środowiska. To zasada projektowania wnioskowania, nie obietnica pełnego eksperymentalnego rozstrzygnięcia: stanowiska rzeczne różnią się historią, warunkami i dopływem organizmów.
Rozdział 23Mięczaki w badaniach naukowych
Układ nerwowy i pamięć
Morski ślimak Aplysia należy do organizmów wykorzystywanych w badaniach mechanizmów uczenia się. W klasycznej pracy Frost i współautorów z 1985 r. analizowano połączenia między neuronami czuciowymi a neuronem ruchowym w układzie związanym z odruchem cofania skrzela. Po treningu prowadzącym do długotrwałego uwrażliwienia połączenia te były silniejsze niż w grupie kontrolnej. Wynik pomógł powiązać zmianę zachowania z konkretnymi właściwościami synaps. [127]
Znaczenie organizmu modelowego nie polega na tym, że reprezentuje wszystkie zwierzęta w każdym szczególe. Pozwala zadać dobrze określone pytanie w układzie nadającym się do badania. Następnie sprawdza się, które mechanizmy mają szersze znaczenie. Ta kolejność chroni przed błędnym skrótem: obserwacja u ślimaka nie jest automatycznie gotowym wyjaśnieniem ludzkiej pamięci, lecz może odsłaniać istotne zasady działania komórek nerwowych.
Mineralne oczy chitonów
Chitony pokazują, jak materiał mineralny może uczestniczyć w odbieraniu bodźców. W pracy Speisera, Eernissego i Johnsena z 2011 r. wykazano tworzenie obrazu przez oczy Acanthopleura granulata z soczewkami aragonitowymi. Mineralny element może zatem uczestniczyć nie tylko w ochronie ciała, lecz także w odbieraniu informacji. Nie oznacza to, że każdy chiton ma taki sam typ oczu ani że cała jego muszla „widzi”. [128]
Trzy przykłady skrajności i ich właściwe definicje
Tabela 22. Udokumentowane pomiary i ich ograniczenia
| Organizm lub materiał | Wartość | Co rzeczywiście zmierzono lub ustalono |
|---|---|---|
| Angustopila psammion, opis z 2022 r. | 0,46–0,57 mm | Wysokość muszli w opisanym materiale; nie długość wyprostowanego ciała |
| Arctica islandica, osobnik analizowany przez Bangor University | 507 lat | Wiek konkretnego osobnika po ponownej analizie; nie średnią gatunku |
| Mesonychoteuthis hamiltoni, okaz z 2007 r. w Te Papa | Około 495 kg w stanie zamrożonym; około 470 kg jako dokładniejsze oszacowanie | Masa pojedynczego okazu; pierwsza wartość obejmowała także lód |
Źródła: Páll-Gergely i in. 2022, Bangor University oraz Museum of New Zealand Te Papa Tongarewa. Zestawienie pokazuje odmienne wielkości i nie jest rankingiem mierzonym wspólną jednostką. [129, 37, 130]
Te przykłady dobrze pokazują, dlaczego przy rekordach potrzebna jest definicja. Wysokość muszli nie jest jej szerokością; długość płaszcza kałamarnicy nie jest długością całkowitą z czułkami; masa zamrożonego okazu może wymagać korekty. Dodatkowo materiał muzealny może po śmierci zmieniać wymiary. Najlepiej podawać wynik wraz z nazwą mierzonej cechy i opisem okazu, zamiast tworzyć pozornie prostą listę „największych zwierząt”. [130, 131]
Rozdział 24Biomimetyka i materiały inspirowane mięczakami
Biomimetyka od mechanizmu do sprawdzonej funkcji
W biomimetyce najważniejsze jest precyzyjne wskazanie tego, co zostało przeniesione z biologii do techniki. Może to być chemiczna grupa wiążąca, układ warstw, geometryczne ograniczenie odkształcenia albo sposób sterowania. Podobieństwo wyglądu nie wystarcza do wykazania podobnego działania. Z kolei urządzenie zbudowane z innych substancji może trafnie odtwarzać wybraną zasadę fizyczną.
Poniższe przykłady warto czytać przez trzy pytania: jaka funkcja jest wzorcem, jak ją zmierzono i które jej elementy odtworzono? Takie podejście pozwala docenić rzeczywisty postęp bez przypisywania pojedynczej powłoce właściwości całego zwierzęcia. Określenie „inspirowany mięczakiem” opisuje pochodzenie pomysłu; samo w sobie nie jest miarą trwałości, bezpieczeństwa ani gotowości do zastosowania.
Przyczepność bisioru wymaga odpowiedniego środowiska chemicznego
Yu i współpracownicy analizowali przyczepność białek Mytilus californianus. W aparacie do pomiaru sił powierzchniowych badali oddziaływania oczyszczonych białek z miką w kontrolowanym pH i warunkach utleniająco-redukujących. Utlenienie reszt DOPA osłabiało przyczepność badanego białka mfp-3. Bogate w grupy tiolowe białko mfp-6 pomagało przywracać zredukowaną DOPA i odzyskiwać przyczepność. [132]
Po eksperymentalnym pobudzeniu wydzielania zmierzono w zagłębieniu końca nogi średni spadek pH o 1,5 jednostki, przy 15 pomiarach. Autorzy zaznaczali, że zabrudzenie mikroelektrody białkiem mogło ograniczać dokładność. Zasadniczy wniosek dotyczył współpracy składników i lokalnego środowiska chemicznego. Nie należy redukować naturalnego klejenia do hasła „jedna cząsteczka przykleja wszystko”; doświadczenia z miką nie opisują wszystkich podłoży ani siły potrzebnej do oderwania całego małża. [132]
Powierzchnia nici pełni inną funkcję niż płytka przyczepna
Harrington i współpracownicy badali ochronną kutykulę nici bisioru Mytilus californianus i M. galloprovincialis. Spektroskopia Ramana wykazała lokalizację kompleksów katecholowych z żelazem w tej zewnętrznej warstwie. Po usunięciu metalu charakterystyczny sygnał zanikał, a po ponownym wprowadzeniu żelaza w dużej mierze powracał. Rozmieszczenie sygnału wspierało model różnej gęstości wiązań w ziarnistych wtrąceniach i otaczającej je macierzy. [133]
Dotyczy to spójności i organizacji materiału osłonowego. Nie jest bezpośrednim pomiarem adhezji płytki do skały. Autorzy przedstawiali powiązanie organizacji wiązań z zachowaniem mechanicznym jako model oparty na kilku rodzajach danych; nie każdą jego składową zmierzyli oddzielnie. To użyteczny przykład różnicy między identyfikacją wiązań chemicznych a kompletnym wyjaśnieniem pracy struktury. [133]
Polidopamina jako syntetyczna platforma powierzchniowa
Lee i współpracownicy wykorzystali dopaminę, prosty związek zawierający grupy katecholową i aminową, do wytwarzania przyczepnych powłok inspirowanych składem białek nogi omułka. Badanie obejmowało 25 różnych materiałów podłoża. Obecność warstw oceniano m.in. metodą spektroskopii fotoelektronów rentgenowskich, a grubość z użyciem mikroskopii sił atomowych. Na badanej powierzchni krzemowej warstwa osiągała około 50 nm po 24 godzinach zanurzenia w stosowanym roztworze. [134]
Powłokę można było dalej modyfikować, przyłączając kolejne składniki lub osadzając metale. Otrzymano narzędzie zmieniania właściwości powierzchni. Nie odtworzono całego bisioru, a liczba 25 oznacza różnorodność sprawdzonych podłoży, nie liczbę niezależnych prób trwałości. Wynik nie jest równoznaczny z potwierdzeniem bezpieczeństwa klinicznego kleju ani wytrzymałości połączenia konstrukcyjnego pod długotrwałym obciążeniem. [134]
Architektura muszli jako wskazówka dla kompozytu
Munch i współpracownicy wytworzyli kompozyty z tlenku glinu i polimetakrylanu metylu, czyli PMMA. Kierunkowe zamrażanie zawiesiny ceramicznej tworzyło strukturę odwzorowującą układ kryształów lodu; otrzymany porowaty szkielet wypełniano polimerem. Kontrolowano architekturę warstw oraz ich granice, aby odtworzyć wybrane mechanizmy hamowania pęknięć inspirowane m.in. masą perłową. [135]
Wytrzymałość na zginanie prostopadle do warstw wynosiła około 120 MPa dla architektury lamelarnej i 210 MPa dla architektury cegiełka–zaprawa. Znaczenie miało również to, jak odporność na pękanie zmieniała się podczas wzrostu szczeliny. Materiał opisywany jako „podobny do masy perłowej” miał inny skład i powstawał inną drogą technologiczną. Wartości dotyczą określonego kierunku obciążenia i architektur; nie oznaczają jednakowych właściwości we wszystkich kierunkach ani gotowego zamiennika każdej muszli. [135]
Tabela 23. Przykłady badań materiałowych inspirowanych bisiorami i muszlą
| Przedmiot badania | Pytanie rozstrzygane doświadczeniem | Czego nie należy utożsamiać z wynikiem |
|---|---|---|
| Białka na mice [132] | Jak środowisko chemiczne zmienia przyczepność | Siły oderwania całego zwierzęcia |
| Kutykula bisioru [133] | Gdzie występują kompleksy metalu | Klejenia do podłoża |
| Powłoka polidopaminowa [134] | Czy można modyfikować różne powierzchnie | Potwierdzonego zastosowania klinicznego |
| Kompozyt ceramiczno-polimerowy [135] | Jak architektura wpływa na pękanie | Uniwersalnej przewagi materiału |
Dwa różne znaczenia syntetycznej skóry głowonoga
Pikul i współpracownicy skupili się na zmianie rzeźby powierzchni. Ich membrana łączyła rozciągliwy elastomer silikonowy z nierozciągliwą siatką. Rozmieszczenie siatki ograniczało odkształcanie wybranych obszarów, dzięki czemu nadmuchiwana płaska warstwa przyjmowała zaprogramowane kształty przestrzenne. Próby rozciągania i model geometryczny służyły powiązaniu wzoru wzmocnień z oczekiwaną deformacją. Autorzy pokazali m.in. powierzchnie przypominające kamienie i rośliny. [136]
Była to inspiracja działaniem brodawek skórnych, zrealizowana przez silikon, włókna i ciśnienie powietrza. Gotowy układ nie zawierał żywych mięśni ani układu wzrokowego dobierającego dowolny kształt do otoczenia. „Programowalność” oznaczała tutaj przede wszystkim zaprojektowanie rozkładu ograniczeń mechanicznych; nie należy jej odczytywać jako nieograniczonej zdolności uczenia się i zmiany formy. [136]
Inną funkcję odtworzyli Cunjiang Yu i współpracownicy: zmianę wzoru optycznego z lokalnym pomiarem światła. Ich elastyczny demonstrator miał 16 × 16 elementów na powierzchni 1,4 × 1,4 cm. Łączył fotodetektory, układy grzejne, warstwę odblaskową i materiał termochromowy. Automatycznie tworzył czarno-białe wzory odpowiadające prezentowanemu oświetlonemu tłu. [137]
Zmianę wyglądu uzyskiwano przez ogrzewanie, a nie skurcz mięśni chromatoforów. Układ wymagał zewnętrznego zasilania i elektroniki sterującej. Publikacja wykazała działanie określonego demonstratora, nie wielobarwną niewidzialność w naturalnym środowisku. Nie należy też traktować lokalnych fotodetektorów prototypu jako dowodu, że skóra zwierzęcia sama realizuje identyczny algorytm sterowania. [137]
Tabela 24. Co odtwarzają dwa prototypy inspirowane skórą głowonogów
| Rozwiązanie | Kontrolowana cecha | Sposób działania | Granica analogii |
|---|---|---|---|
| Pikul i in. 2017 [136] | Kształt powierzchni | Pneumatyka i wzór wzmocnień | Brak odtworzenia pełnej skóry |
| Yu i in. 2014 [137] | Czarno-białe wzory | Fotodetekcja i ogrzewanie | Ograniczony demonstrator optyczny |
Jak oceniać wiarygodność obietnicy technologicznej
Przy opisie każdego prototypu warto osobno pytać o skuteczność początkową, powtarzalność działania, zmianę właściwości z upływem czasu i wymagania obsługi. Pomiar jednej z tych cech nie wypełnia automatycznie pozostałych pól. Tak samo fotografia udanej demonstracji nie ustala częstości niepowodzeń, jeżeli nie podano liczby prób i kryterium sukcesu. To zasada oceny dowodów, a nie informacja o ukrytych wadach opisanych urządzeń.
Najbardziej użyteczne porównanie techniczne zaczyna się więc od wspólnego zadania: jakie obciążenie ma przenieść połączenie, jaki wzór ma odtworzyć powierzchnia albo w jakim podłożu ma poruszać się urządzenie? Dopiero po ustaleniu tych warunków sensowne stają się porównania wydajności. Mięczaki dostarczają sprawdzalnych hipotez konstrukcyjnych. O wartości konkretnego rozwiązania decydują następnie jego pomiary, z podaniem tego, co rzeczywiście sprawdzono.
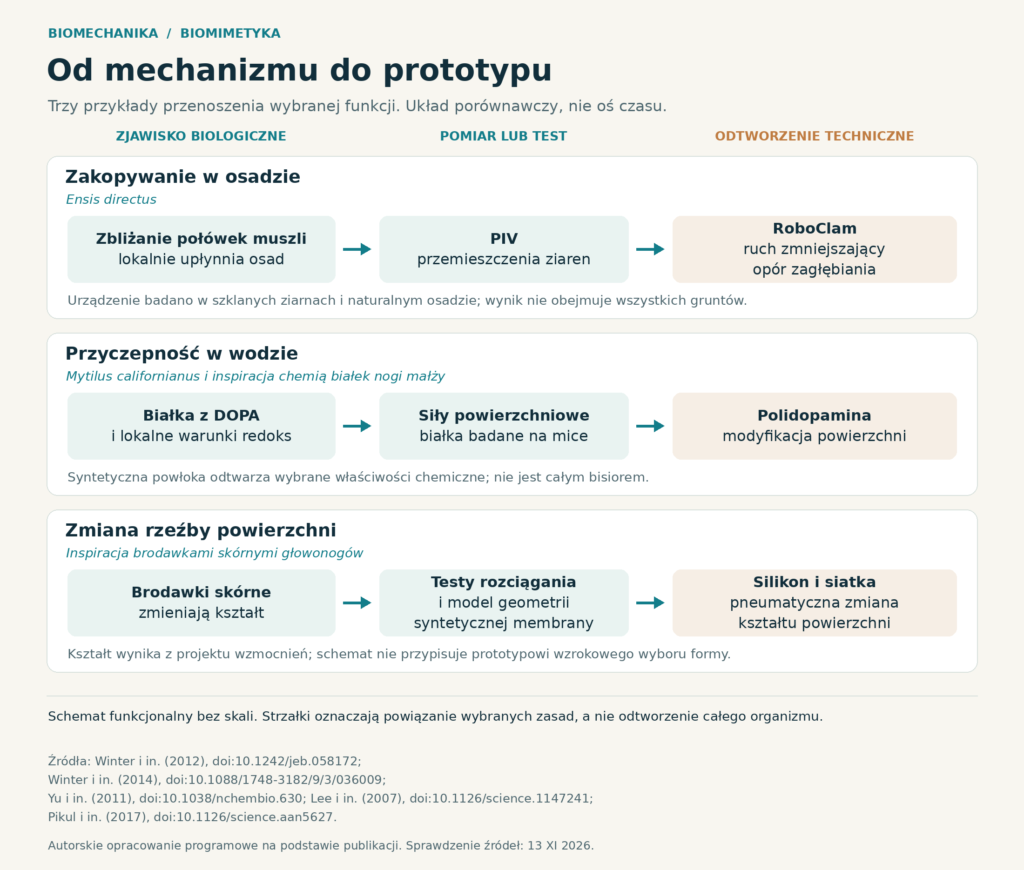
Rozdział 25Muszle jako archiwa środowiska
Jak przekształcić muszlę w zapis czasu
Sklerochronologia bada sekwencje przyrostu utrwalone w twardych strukturach organizmów. W przypadku mięczaków łączy opis wzrostu muszli z jej składem chemicznym. Punktem wyjścia nie jest założenie, że każda widoczna kreska oznacza rok. Trzeba najpierw ustalić okresowość badanego wzoru. Witbaard i współautorzy sprawdzili ją u Arctica islandica z Morza Północnego, wykorzystując niezależny znacznik radiowęglowy związany z próbami jądrowymi około 1960 r. Jego położenie zgadzało się z datowaniem opartym na liczeniu pasm. Cykle izotopów stabilnych wspierały sezonową interpretację wzrostu. Była to weryfikacja określonego materiału i gatunku, nie ogólne potwierdzenie rocznego charakteru wszystkich linii na muszlach. [138]
Warto odróżnić trzy pytania. Datowanie ustala, kiedy powstał fragment muszli. Pomiar określa jego cechę, na przykład skład izotopowy. Kalibracja wiąże tę cechę z warunkami środowiska. Poprawne wykonanie jednego z tych zadań nie rozwiązuje automatycznie pozostałych. Dokładnie datowany fragment może mieć sygnał zależny od kilku czynników; precyzyjny pomiar chemiczny może obejmować materiał narastający przez nierówny odcinek czasu. To rozdzielenie jest podstawą krytycznego odczytywania rekonstrukcji.
Długość szeregu i wiek pojedynczego zwierzęcia
Reynolds i współautorzy przedstawili w 2016 r. zapis izotopów tlenu z północnego szelfu Islandii obejmujący 1048 lat, od 953 do 2000 r. Powstał z 1492 próbek aragonitu pobranych z 21 uprzednio wzajemnie datowanych muszli Arctica islandica. W latach reprezentowanych przez kilka pomiarów wyznaczano średnią. Zapis łączył więc zachodzące na siebie fragmenty życia wielu osobników. Autorzy interpretowali sygnał w kontekście łącznego wpływu temperatury i zasolenia na gęstość wody. W badanym materiale duża część wzrostu przypadała na cieplejszą część roku. [139]
Wynik ten nie oznacza odkrycia małża żyjącego ponad tysiąc lat. Pokazuje natomiast, dlaczego w opisie archiwum trzeba osobno podać długość chronologii, liczbę muszli, liczbę analiz i replikację poszczególnych odcinków. Zsumowanie wielu pomiarów nie sprawia, że wszystkie lata są równie dobrze reprezentowane. W dalszej części kompendium zagadnienie to zilustrowano odrębnym zbiorem danych o przyrostach, bez utożsamiania go z serią izotopową.
Miejsce pobrania próbki może zmienić odczyt
Trofimova i współautorzy porównali dwie części warstwy zewnętrznej muszli Arctica islandica, różniące się organizacją mikrostruktury. Materiał z części zdominowanej przez struktury krzyżowo igiełkowe i lamelarne bywał wzbogacony w cięższe izotopy tlenu względem części o mikrostrukturze jednorodnej. Różnica w niektórych przypadkach przekraczała 0,3‰. Autorzy wiązali możliwe przyczyny z właściwościami warstw i fizjologią zwierzęcia. [140]
Praktyczny wniosek dotyczy porównywalności. Dwie próbki pochodzące z tego samego gatunku nie muszą być równoważne, jeżeli pobrano je z innych warstw albo objęto nimi różne odcinki wzrostu. Przed uznaniem różnicy chemicznej za zmianę środowiska należy sprawdzić, czy nie zmieniła się metoda pobierania materiału. To szczególnie istotne przy łączeniu danych z różnych kolekcji lub laboratoriów. Precyzja aparatury nie zastępuje zgodności sposobu przygotowania próbek.
Temperatura wymaga sprawdzonej kalibracji
Zhang i Petersen badali w 2023 r. muszle Lucina pensylvanica z siedmiu stanowisk, porównując termometrię opartą na izotopach tlenu z termometrią izotopów skupionych, wykorzystującą parametr Δ₄₇. Oceniali odtworzenie znanej temperatury średniej i sezonowości. Wynik zależał także od sposobu próbkowania i opracowania serii. Autorzy wskazali konieczność zrównoważenia tempa przyrostu, rozdzielczości poboru i precyzji analitycznej; dla wolno rosnących lub małych muszli proponowali łączenie uzupełniających się metod. [141]
Zwiększenie liczby pomiarów pomaga tylko wtedy, gdy odpowiadają one sensownie rozdzielonym odcinkom czasu. Pobranie kolejnych próbek bardzo blisko siebie nie tworzy automatycznie zapisu miesięcznego. Jeśli wzrost zwolnił lub ustał, jednakowa odległość na przekroju nie oznacza jednakowego upływu czasu. Dlatego informacja „wysoka rozdzielczość” powinna wskazywać, czy chodzi o odległość w mikrometrach, odstęp czasowy, czy obie wielkości potwierdzone odpowiednim modelem.
Archiwum natlenienia Bałtyku
Muszle mogą służyć również do badania innych zmiennych niż temperatura. Schöne i współautorzy porównali w 2022 r. Arctica islandica, Astarte borealis i Astarte elliptica jako archiwa natlenienia wód Bałtyku. Wykorzystali stosunek manganu do wapnia w muszli, odnoszony do instrumentalnych danych o tlenie. Po korektach związanych między innymi z tempem wzrostu uzyskali odwrotne zależności o współczynnikach korelacji od −0,66 do −0,75. Dla Arctica islandica ta zależność dotyczyła danych od dziesiątego roku życia. Młode Arctica islandica wymagały szczególnej ostrożności z powodu odmiennego wbudowywania manganu. [142]
Jest to przykład wskaźnika pośredniego, czyli proxy. Muszla nie przechowuje dawnej próbki wody z zachowaną ilością rozpuszczonego tlenu. Zawiera mierzalną cechę, której związek z warunkami sprawdzono w określonym układzie. Przeniesienie kalibracji do innego miejsca, wieku zwierząt lub gatunku wymaga kolejnej oceny. Sama obecność podobnego pierwiastka w dwóch materiałach nie wystarcza do uznania ich za wymienne rejestratory.
Co można odczytać z muszli kopalnej
De Winter i współautorzy analizowali chemię 12 okazów późnokredowej ostrygi Rastellum diluvianum ze Szwecji. Połączyli izotopy stabilne, pierwiastki śladowe i modelowanie wzrostu. Oszacowanie średniej rocznej temperatury 17–19°C było warunkowe: zakładało określony skład izotopowy ówczesnej wody morskiej, wynoszący −1‰ VSMOW. Badacze wskazali również, że rozpatrywane stosunki pierwiastków śladowych nie stanowiły wiarygodnych, uniwersalnych termometrów tych ostryg. Mogły natomiast wspomagać ocenę zachowania muszli i rozpoznawanie sezonowości przyrostu. [143]
Podanie założenia obok rekonstrukcji nie osłabia jej wartości. Umożliwia ocenę, jak wynik zmieni się, jeżeli założenie zostanie poprawione. W odniesieniu do skamieniałości trzeba dodatkowo rozdzielić cechy powstałe za życia zwierzęcia od późniejszych przekształceń materiału. Ten sam plik z wynikami pomiarów może prowadzić do innego zakresu interpretacji, gdy zmienia się wiedza o zachowaniu próbki. Rzetelne archiwum zawiera zatem także informacje o pochodzeniu, preparatyce i kontroli jakości.
Tabela 25. Sześć odrębnych sprawdzianów archiwum muszlowego
| Pytanie badawcze | Przykład zastosowanego sprawdzianu | Co ogranicza interpretację |
|---|---|---|
| Czy pasma są roczne | Zgodność pasm z niezależnym znacznikiem radiowęglowym u Arctica islandica | Wynik dotyczy zweryfikowanego wzoru przyrostu, nie każdej widocznej linii [138] |
| Czy długi zapis pochodzi z jednego okazu | Złożenie serii z uprzednio datowanych muszli | Długość chronologii nie jest wiekiem pojedynczego zwierzęcia [139] |
| Czy próbki są porównywalne | Porównanie odmiennych warstw mikrostrukturalnych | Warstwa i zakres próbkowania mogą zmieniać odczyt izotopowy [140] |
| Czy metoda odtwarza sezonowość | Test kilku technik na współczesnej Lucina pensylvanica | Wynik zależy od przyrostu, poboru i sposobu opracowania danych [141] |
| Czy wskaźnik działa u innych gatunków | Porównanie trzech bałtyckich małży i danych o tlenie | Konieczne są korekty i uwzględnienie biologii gatunku [142] |
| Czy chemia kopalnej muszli jest prostym termometrem | Analiza kilku rodzajów pomiarów u Rastellum diluvianum | Założenia o wodzie i zachowaniu materiału pozostają częścią wyniku [143] |
Zestawienie porównuje pytania i sposoby kontroli, nie dokładność różnych metod na jednej wspólnej skali. Nie stanowi rankingu publikacji.

Rozdział 26Mięczaki a zdrowie i bezpieczeństwo żywności
Zagrożenie zależy od drogi kontaktu
W biologii i zdrowiu publicznym trzeba odróżniać samego mięczaka od mikroorganizmu, pasożyta lub toksyny, z którymi może być związany. Przykładowo schistosomatozę wywołują przywry, a nie ślimaki. Określone ślimaki słodkowodne są gospodarzami pośrednimi w cyklu pasożyta. Człowiek zakaża się przy kontakcie z wodą zawierającą odpowiednie stadia larwalne, które mogą wnikać przez skórę. [144]
Nie jest to mechanizm polegający na zjedzeniu dowolnego ślimaka ani dowód powszechnego zagrożenia przy każdej obserwacji mięczaków. Geografia i rzeczywiste występowanie pasożyta mają podstawowe znaczenie. Dane epidemiologiczne należy odczytywać zgodnie z kategorią, której dotyczą: liczba osób wymagających działań profilaktycznych nie jest tym samym co liczba laboratoryjnie potwierdzonych zakażeń.
Bakterie w surowych owocach morza
CDC wskazuje spożywanie surowych lub niedogotowanych owoców morza, szczególnie ostryg, jako istotną drogę zakażeń bakteriami Vibrio. Ryzyko może dotyczyć również kontaktu otwartej rany z wodą przybrzeżną lub surowym produktem. Szczególne znaczenie mają choroby zwiększające podatność, między innymi choroby wątroby. Zalecenia obejmują odpowiednią obróbkę żywności, higienę i ochronę ran przed takim kontaktem. [145]
Nie wynika z tego, że każda ostryga jest zakażona albo że sam wygląd produktu pozwala wykluczyć ryzyko. Biologiczna zdolność filtrowania i gromadzenia cząstek wyjaśnia, dlaczego pochodzenie produktu oraz nadzór nad jego pozyskaniem są ważne. Bezpieczeństwo nie powinno opierać się na ogólnym skojarzeniu „naturalne znaczy bezpieczne”.
Gotowanie nie rozwiązuje każdego problemu
Zwykła obróbka termiczna nie gwarantuje usunięcia toksyn powodujących paralityczne zatrucie mięczakami, czyli PSP. FDA wskazuje, że związki te mogą gromadzić się w tkankach małży po pobraniu toksynotwórczego planktonu i nie są całkowicie niszczone przez typowe gotowanie. Ograniczanie ryzyka bakteryjnego i ograniczanie ryzyka biotoksyn wymagają więc odmiennych działań. [146]
W rejonach występowania nicieni Angiostrongylus znaczenie ma z kolei unikanie surowych lub niedogotowanych ślimaków oraz staranne mycie warzyw spożywanych na surowo. Zalecenia CDC są odnoszone do obszarów, gdzie pasożyt występuje; nie należy przedstawiać ich jako dowodu jego powszechnej obecności w Polsce. [147]
Tabela 26. Cztery odmienne mechanizmy ryzyka
| Przykład | Rola mięczaka | Kluczowe rozróżnienie |
|---|---|---|
| Schistosomatoza | Wybrane ślimaki są gospodarzami pośrednimi | Zakażenie przez kontakt z odpowiednio skażoną wodą, nie przez samo oglądanie ślimaka |
| Vibrio | Owoce morza mogą zawierać bakterie | Obróbka i higiena dotyczą ryzyka mikrobiologicznego |
| Toksyny PSP | Małże mogą gromadzić toksyny planktonu | Zwykłe gotowanie nie gwarantuje ich usunięcia |
| Angiostrongylus | Ślimaki uczestniczą w cyklu pasożyta | Ryzyko ma określoną geografię i drogę spożycia |
Źródła: WHO, CDC i FDA. Zestawienie wyjaśnia mechanizmy, nie stanowi diagnozy konkretnego przypadku. [144, 145, 147, 146]
Rozdział 27Jak obserwować i dokumentować mięczaki
Dobra obserwacja zaczyna się od opisu
Warto zanotować datę, miejsce, siedlisko, podłoże oraz informację, czy obserwowano żywe zwierzę, pustą muszlę czy jej fragment. Fotografia powinna pokazywać skalę i te części, które pomagają w rozpoznaniu. Dla muszli ślimaka pomocne mogą być ujęcia z boku i od strony otworu; dla małża kształt obu połówek i cechy ich połączenia. Zdjęcie wykonane wyłącznie „od najładniejszej strony” może nie zawierać potrzebnych szczegółów.
Dokumentacja powinna odzwierciedlać pewność rozpoznania. Jeśli można bezpiecznie ustalić tylko rodzaj lub rodzinę, lepiej podać taki poziom niż dopisać gatunek na podstawie podobieństwa do pierwszego wyniku wyszukiwania. Nazwa bez uzasadnienia może później zostać potraktowana jak potwierdzona obserwacja i utrudniać analizę rozmieszczenia.
Pusta muszla jest innym rodzajem danych niż żywy osobnik
Muszla znaleziona na brzegu wskazuje, że materiał danego rodzaju znalazł się w tym miejscu. Nie zawsze dowodzi aktualnego występowania żywej populacji dokładnie w punkcie znalezienia. Mogła zostać przemieszczona przez wodę, zwierzęta lub człowieka. W opisie obserwacji należy zachować tę różnicę, zwłaszcza przy ocenie nowych stanowisk albo domniemanych zaników.
Pojedyncze wykrycie również nie określa liczebności populacji. Aby porównywać miejsca lub lata, potrzebna jest porównywalna metoda: podobna powierzchnia poszukiwań, czas, sezon i sposób rejestrowania. Jeśli jedna kontrola trwała kilka minut, a inna obejmowała dokładne przeszukiwanie wielu mikrośrodowisk, różnicy w liczbie stwierdzonych gatunków nie należy automatycznie uznać za zmianę biologiczną.
Obserwacja bez przenoszenia
Najbardziej zachowawczą praktyką jest dokumentowanie zwierząt w miejscu występowania bez przenoszenia ich między zbiornikami i bez zmieniania siedliska. Ma to znaczenie szczególnie przy gatunkach obcych i organizmach, których cykl jest związany z innymi zwierzętami. Tożsamość gatunkowa oraz rzeczywisty wpływ przemieszczenia mogą być trudniejsze do ustalenia, niż sugeruje wygląd pojedynczego okazu. [92, 94]
Przed jakimkolwiek zbiorem należy sprawdzić zasady obowiązujące dla gatunku i obszaru. Do celów edukacyjnych często wystarcza fotografia i opis. W razie wątpliwości co do oznaczenia przydatny jest kontakt ze specjalistą albo instytucją zajmującą się malakologią. Dobrze zachowane dane o obserwacji mogą być cenniejsze od samej muszli pozbawionej informacji o pochodzeniu.
Rozdział 28Metody badań i monitoringu populacji
Znaczenie wyniku monitoringu
Stanowisko oraz próba na tle populacji
Stanowisko jest jednostką organizacji badań. Populacja jest obiektem biologicznym, którego granice trzeba uzasadnić. Kilka odcinków jednej rzeki może przedstawiać części tego samego układu, a pojedynczy odcinek może nie obejmować wszystkich miejsc istotnych dla jego odnowy. W raporcie należy oddzielić liczbę stanowisk, liczbę prób, liczbę osobników oraz obszar, do którego odnoszą się wnioski. Wielokrotne próby z jednego odcinka zwiększają znajomość tego odcinka; nie są automatycznie wieloma niezależnymi rzekami.
Konkretny przykład daje metodyka GIOŚ dla skójki gruboskorupowej, opublikowana w 2010 roku i uzupełniona modyfikacją z 2015 roku. Stanowisko zdefiniowano jako kilometrowy odcinek rzeki. Wskaźnik liczebności obliczano na podstawie transektów o szerokości jednego metra, prowadzonych w poprzek koryta, i wyrażano na metr biegu rzeki. Tego wskaźnika nie należy utożsamiać z zagęszczeniem na metr kwadratowy dna. Przewodnik pokazuje różnicę na przykładzie transektu: 10 małży na powierzchni 20 m² daje 10 osobników na metr biegu rzeki, ale 0,5 osobnika na m². Jest to przykład metodyczny, nie wynik krajowej inwentaryzacji. [148]
Metodykę należy czytać razem z jej modyfikacjami. W zmianie wprowadzonej 17 lipca 2015 roku wskaźnik klasy czystości wody zastąpiono stanem ekologicznym wód. Porównanie wyników z różnych cykli powinno zatem uwzględniać definicję wskaźnika i sposób jego oceny. Archiwalny opis pozostaje dokumentacją wcześniejszej procedury, ale nie wszystkie jego elementy odpowiadają późniejszemu formularzowi. [148]
Wykrywalność i dobór metody do pytania
Smith pokazał, jak powiązać powierzchnię poszukiwań i skuteczność obserwatora z prawdopodobieństwem wykrycia rzadkich małży. Sam czas poszukiwania nie opisuje całego wysiłku, jeśli różnią się dostępność dna, rozmieszczenie zwierząt i efektywność przeglądania. Projekt można podporządkować wykrywaniu populacji przekraczających zdefiniowane zagęszczenie. Wtedy negatywny wynik odnosi się do określonej zdolności badania do wykrycia obiektu, zamiast być bezwarunkowym stwierdzeniem nieobecności. [149]
Symulacja Foxfoot i współautorów z 2025 roku porównała cztery sposoby badania małży. Wynik zależał od zagęszczenia, skupiskowego rozmieszczenia i wysiłku. Liczba znajdowanych osobników na jednostkę czasu była szczególnie zmienna przy dużym zagęszczeniu lub skupiskach. Losowe próby ilościowe lepiej odpowiadały celowi oszacowania parametrów populacji, choć przy rzadkich małżach wymagały większego wysiłku. Było to badanie modelowe; porównywało zachowanie metod w zadanych warunkach, nie ich skuteczność we wszystkich rzeczywistych rzekach. [150]
Tabela 27. Pytanie badawcze wyznacza sposób zbierania danych
| Pytanie | Odpowiedni typ danych | Granica interpretacji |
|---|---|---|
| Czy rzadki gatunek występuje na odcinku? | Poszukiwania z określoną powierzchnią, wysiłkiem i wykrywalnością | Brak detekcji zależy od sprawności badania. [149] |
| Jakie jest zagęszczenie? | Próby ilościowe o znanej powierzchni i opisanym sposobie wyboru | Wynik poszukiwań na godzinę nie zastępuje automatycznie osobników na m². [150] |
| Czy działa odnowa? | Rozróżnienie etapów rozrodu i obserwacja kolejnych kohort | Przeżycie osobników wprowadzonych jest wcześniejszym etapem niż trwała odbudowa. [87] |
| Czy wykryto materiał genetyczny gatunku? | Zwalidowany test eDNA, powtórzenia i kontrole | Wynik nie podaje samodzielnie wieku, kondycji ani liczebności małży. [151] |
| Czy zmienił się takson, czy sposób oznaczania? | Udokumentowane oznaczenie, wersja systematyki i materiał porównawczy | Zmiana nazwy nie musi oznaczać biologicznej zmiany zasięgu. [152] |
Czułość pomiaru eDNA oraz ograniczenia metody
Środowiskowe DNA pozwala szukać materiału genetycznego w próbce wody. W badaniu Preece i współautorów sygnał od 20 umieszczonych w rzece małży Gonidea angulata wykryto nawet 8 km niżej. Wykrywalność zależała od typu siedliska. Autorzy rozważali wpływ uwalniania larw oraz zastosowanej preamplifikacji na uzyskany zasięg. Osiem kilometrów jest wynikiem konkretnego doświadczenia, a nie standardowym promieniem działania testu. [153]
W innym doświadczeniu, z Lampsilis fasciola w dwóch rzekach Ontario, wiarygodne detekcje koncentrowały się przy klatkach z małżami, a odległości co najmniej 10 m w dół rzeki nie dawały podobnego potwierdzenia. W części próbek stwierdzano hamowanie reakcji PCR. Badanie wykorzystało wewnętrzną kontrolę dodatnią, która pozwalała rozpoznać ten problem. Zestawienie prac pokazuje, że gatunek, sezon, przepływ, liczba zwierząt i procedura laboratoryjna współtworzą warunki wykrywania. [154]
Wytyczne Fisheries and Oceans Canada rozdzielają kontrolę zanieczyszczenia próbki obcym DNA od kontroli hamowania reakcji. Wymagają także jawnego raportowania powtórzeń terenowych i laboratoryjnych oraz reguł uznawania wyniku za dodatni. Liczby kopii DNA nie można bez walidacji przekształcić w liczbę małży. Sygnał może pochodzić spoza miejsca pobrania, a brak sygnału wymaga interpretacji w świetle czułości całego postępowania. Najwięcej informacji daje połączenie eDNA z obserwacją siedliska i metodami odpowiadającymi na pytania demograficzne. [151]
Błąd identyfikacji i zmieniające się granice gatunków
Rewizja kompleksu Unio crassus z 2024 roku połączyła dane o kształcie muszli, mitochondrialnym DNA oraz markerach jądrowych. Analizy wspierały wyróżnienie 12 gatunków; pięć dawniej nazwanych taksonów przywrócono jako gatunki, w tym Unio nanus. Nie był to więc opis wszystkich tych form jako nowych dla nauki. Zakresy zmienności kształtu muszli znacznie się nakładały, a dane mitochondrialne i jądrowe nie zawsze prowadziły do tego samego obrazu. Dla monitoringu wynika z tego potrzeba zachowania informacji, według jakiego ujęcia oznaczano materiał. Porównanie historycznej i współczesnej listy nazw wymaga najpierw uzgodnienia taksonów; inaczej zmiana klasyfikacji może zostać pomylona ze zmianą fauny. [152]
Rozdział 29Jak oceniać siłę dowodów naukowych
Jak oceniać siłę dowodów i porównywać wyniki badań
Profesjonalne odczytanie badania zaczyna się od ustalenia, jakie twierdzenie rzeczywiście można sprawdzić za pomocą jego danych. Zmiana długości muszli, tempo mineralizacji, aktywność genu i przeżycie zwierzęcia opisują odmienne wyniki. Nawet gdy wszystkie wiążą się ze stresem środowiskowym, nie tworzą jednej wymiennej miary „odporności”. Ocena dowodów wymaga połączenia pytania, sposobu pomiaru, układu doświadczenia i zakresu wniosku. Dopiero na tym tle można porównywać wartości liczbowe.
Warto przygotować krótką kartę każdego badania: organizm i etap życia, miejsce pochodzenia, zastosowane warunki, czas obserwacji, jednostka eksperymentalna, wielkość efektu oraz miara niepewności. Taka karta ułatwia wykrycie, czy dwa podobnie brzmiące wyniki odnoszą się do tego samego procesu. Nie trzeba przy tym sprowadzać każdej publikacji do jednej oceny punktowej. Mocna identyfikacja mechanizmu w laboratorium i szeroka dokumentacja zjawiska w przyrodzie odpowiadają na różne części pytania.
Niepewność wyniku i rodzaj przedziału
Przedział ufności, oznaczany często jako CI, opisuje niepewność oszacowania parametru przy założeniach określonej metody. Klasyczny 95-procentowy przedział oznacza procedurę, która przy wielokrotnym powtarzaniu losowania obejmowałaby prawdziwą wartość w około 95% przypadków. Nie oznacza, że wewnątrz przedziału znajduje się 95% osobników. NIST podaje dla średniej wzór z rozkładem t Studenta, liczebnością próby i odchyleniem standardowym; przy podobnym zróżnicowaniu danych większa próba zwęża przedział, a większe zróżnicowanie go poszerza. Warunki stosowania metody pozostają częścią wyniku. [155]
Trzeba odróżniać SD, czyli odchylenie standardowe obserwacji, SE, czyli błąd standardowy oszacowania, oraz CI. Dla niezależnych obserwacji błąd standardowy zwykłej średniej oblicza się jako SE = SD / √n. W prostym przypadku przedział dla średniej ma postać średnia ± t × SE. Sam zapis „±” bez objaśnienia nie pozwala ustalić, którą z tych wielkości pokazano. Przedział dla różnicy pomiędzy grupami wymaga osobnego obliczenia; nie powstaje przez zwykłe odjęcie końców dwóch przedziałów. [155]
Humphries i współautorzy podali dla odtworzonych raf ostrygowych średnią denitryfikację 581,9 ± 164,2, a dla akwakultury 346,1 ± 168,6 µmol N₂–N m⁻² h⁻¹. W tej publikacji „±” oznacza jeden SE. Analiza uwzględniała sezon, powtarzane pomiary i interakcję sezonu z siedliskiem. Z samych dwóch średnich nie wynika więc uniwersalna przewaga jednego sposobu gospodarowania. Przytoczone zakresy nie są 95-procentowymi przedziałami ufności. [78]
Brak opublikowanego przedziału dla interesującego nas kontrastu powinien pozostać widoczny. Dopisywanie go na podstawie niepełnych informacji tworzyłoby pozorną precyzję. Szczególnie ostrożnie należy traktować badania z wielokrotnymi pomiarami tych samych obiektów: zależność obserwacji wpływa na niepewność różnicy. Do odtworzenia poprawnego przedziału może być potrzebny model i struktura danych, a nie tylko średnia oraz liczba pomiarów.
Prawdziwe powtórzenie zależy od układu doświadczenia
W doświadczeniu Melznera i współautorów z omułkami zastosowano dwa poziomy dostępności pokarmu i cztery poziomy CO₂. Każdą kombinację reprezentowały cztery akwaria, z czterema zwierzętami w każdym. Autorzy uśredniali pomiary zwierząt wewnątrz akwarium przed analizą. Układ obejmował zatem 32 akwaria, natomiast dla pojedynczej kombinacji warunków podstawą powtórzenia były cztery akwaria, a nie 16 niezależnych jednostek poddanych zabiegowi. Wspólna woda i warunki utrzymania łączyły osobniki w grupy. [156]
Ta sama publikacja rozróżnia pomiar i oszacowanie. Przyrost długości muszli uzyskano z pomiarów początkowych i końcowych. Początkową masę muszli i tkanek szacowano z zależności ustalonych na osobnej podpróbie. Autorzy zaznaczyli ograniczenia wynikające ze zmienności takich zależności. Dwie kolumny nazwane „wzrost” mogą więc mieć różną podstawę pomiarową i różne źródła błędu, choć pochodzą z jednego doświadczenia. [156]
Inny przykład daje analiza RNA podczas naprawy muszli przez Yarrę i współautorów: sekwencjonowano cztery fragmenty tkanki od każdego z pięciu osobników. Dwadzieścia fragmentów nie oznaczało dwudziestu niezależnych zwierząt. Model uwzględniał sparowanie materiału pochodzącego od tego samego małża. [39]
W ocenie badania należy zatem pytać, na jakim poziomie przypisano warunki i na jakim poziomie analizowano wynik. Duża liczba odczytów urządzenia może zwiększać precyzję opisu próbki, ale nie usuwa ograniczenia wynikającego z małej liczby niezależnych obiektów. To rozróżnienie pomaga również odczytać pozornie imponujące wielkości zbiorów danych biologicznych.
Długi szereg nie ma stałej liczby próbek
Oficjalny zbiór NOAA dotyczący Arctica islandica z szelfu północnej Islandii zawiera 1357 kolejnych lat od 649 do 2005. Kolumna samp.depth określa liczbę muszli reprezentowanych w chronologii w danym roku. Wynosi ona od 1 do 15. Wszystkie wartości sprawdzono dodatkowo przez zliczenie nakładających się zakresów 29 serii osobniczych z osobnego pliku tego samego zbioru; uzyskano zgodność dla każdego roku. [157]
Tabela 28. Zmienna liczba muszli reprezentowanych w chronologii
| Odcinek chronologii | Liczba lat | Liczba muszli w poszczególnych latach |
|---|---|---|
| 649–1174 | 526 | 1–2 |
| 1175–1937 | 763 | 3–8 |
| 1938–1958 | 21 | 9–14 |
| 1959–2000 | 42 | 15 |
| 2001–2005 | 5 | 2–14 |
Opracowanie danych NOAA Butler i współautorów 2013, plik butler2013-seg-length.txt. Podano zakresy w obrębie kolejnych odcinków. [157]
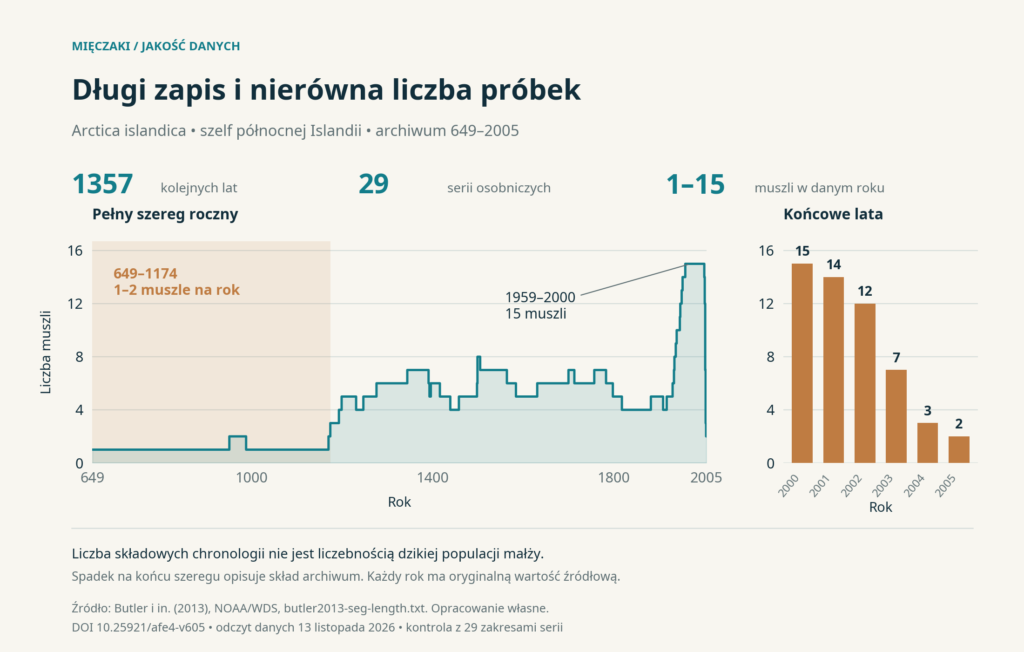
W 2000 r. w szeregu występuje 15 muszli, a w 2005 r. dwie. Zmiana opisuje skład archiwum, a nie tempo zanikania małży. [157] W praktyce wykres jakości danych powinien towarzyszyć interpretacji samego sygnału. Długi zakres dat nie gwarantuje jednakowej możliwości odróżnienia wpływu środowiska od indywidualnej historii zwierzęcia. Uzupełnianie braków kolejnymi seriami i sprawdzanie zgodności zapisów służą innemu celowi niż samo wydłużanie osi czasu.
Istotność statystyczna i znaczenie biologiczne
Butler i współautorzy opisali korelacje indeksów przyrostu muszli z regionalną temperaturą powierzchni morza jako istotne na poziomie 95%, lecz słabe, rzędu r ≈ 0,2. Sami wskazali, że wzrost zależy od bardziej złożonego zestawu oddziaływań środowiskowych. Taki wynik uzasadnia badanie związku, ale nie zamienia szerokości przyrostu w samodzielny termometr. Nie wyznaczamy z niego temperatury dla każdego roku. [158]
Istotność i wielkość efektu odpowiadają na odmienne pytania. Czytelnik powinien sprawdzić kierunek i skalę zależności oraz zapytać, czy obserwowana różnica ma znaczenie dla funkcji organizmu lub celu ochrony. Z kolei wynik bez wykazanej istotności nie wystarcza do stwierdzenia identyczności grup. Taki wniosek wymagałby określenia, jak mała różnica byłaby biologicznie nieistotna, i sprawdzenia, czy precyzja badania pozwala ją wykluczyć.
Zgodność między skalami wzmacnia interpretację
Wahl i współautorzy połączyli badania omułków w laboratorium, większych układach eksperymentalnych i środowisku naturalnym. Sprawdzali, czy aktywność makroglonów może łagodzić wpływ zakwaszenia na tworzenie muszli. Siła obserwowanego oddziaływania zależała od ilości roślinności w stosunku do objętości wody i malała przy przejściu od laboratorium do terenu. W niewielkich płatach siedlisk nie stwierdzono istotnych różnic wzrostu omułków pomiędzy wariantami. Jest to przykład określania warunków działania mechanizmu, zamiast przenoszenia wyniku akwarium na całą zatokę. [159]
Publikacja pokazuje też, dlaczego podpisy wykresów należy czytać osobno: na rycinie 5 autorzy przedstawili średnie z CI, a na rycinie 7 słupki błędów oznaczały SD. Podobna postać graficzna nie zapewnia jednakowej interpretacji. W tym kompendium nie zamieniono tych oznaczeń ani nie odczytywano wartości liczbowych z położenia punktów na ilustracjach. [159]
Zwięzła ocena przydatności dowodu
Przy zestawianiu publikacji warto odnotować zarówno zgodność, jak i powody rozbieżności. Różny wynik może wynikać z etapu życia, pochodzenia zwierząt, czasu ekspozycji, dostępności pokarmu lub sposobu pomiaru. Automatyczne uśrednienie wartości o różnych definicjach nie rozwiązuje tej trudności. Podobnie większa liczba prac nie daje silniejszego potwierdzenia, jeżeli wszystkie powielają podobne ograniczenie albo korzystają z tego samego materiału.
Tabela 29. Pytania porządkujące ocenę badania
| Element oceny | Pytanie do źródła |
|---|---|
| Zgodność z celem | Czy zmierzono interesujący proces czy jedynie jego wskaźnik |
| Powtórzenie | Co było niezależnym obiektem doświadczalnym |
| Wielkość efektu | Jak duża jest różnica i w jakich jednostkach |
| Niepewność | Czy podano SD, SE, CI i metodę ich wyznaczenia |
| Porównywalność | Czy zachowano etap życia, warunki i definicję pomiaru |
| Zakres wniosku | Jakie miejsca, okresy i organizmy obejmuje materiał |
Synteza zasad zastosowanych do przykładów omówionych w tym rozdziale.
Najbardziej użyteczny zapis wniosku wskazuje jednocześnie, co ustalono i czego jeszcze nie rozstrzygnięto. Pozwala to korzystać z dobrego badania w jego właściwym zakresie, bez sprowadzania złożonej wiedzy do jednego procentu, wartości p lub efektownego wykresu.
Rozdział 30Najczęstsze pytania i nieporozumienia
Czy wszystkie mięczaki mają muszlę?
Nie. W wielu liniach zewnętrzna muszla uległa redukcji lub utracie. Przynależność do Mollusca wynika z pokrewieństwa i budowy organizmu, a nie z obowiązkowej obecności widocznej osłony. [2]
Czy ślimak nagi jest zwykłym ślimakiem bez odpadniętej muszli?
Nie. Brak dużej zewnętrznej muszli jest elementem budowy takich form. Nie jest naturalnym etapem polegającym na opuszczeniu „domku” przez ślimaka muszlowego. [3]
Czy wszystkie mięczaki są obojnakami?
Nie. Występują różne systemy płciowe, a głowonogi są rozdzielnopłciowe. Nawet u gatunków obojnaczych nie należy automatycznie zakładać samozapłodnienia. [4, 45]
Czy małże zawsze poprawiają jakość wody?
Ich filtracja może zmieniać ilość cząstek w toni, lecz bilans zależy od warunków i dalszych losów materii. Obecność małży nie oznacza wody zdatnej do picia i nie zastępuje ograniczania dopływu zanieczyszczeń. [46]
Czy ośmiornica ma dziesięć ramion?
Ośmiornice mają osiem ramion. Typowe kałamarnice i mątwy mają osiem ramion oraz dwa wyspecjalizowane czułki chwytne. Nie jest to jednak schemat wszystkich głowonogów, ponieważ łodziki mają odmienny aparat okołogębowy. [17]
Czy każda muszla pozwala łatwo określić wiek?
Nie. Oznaczanie wieku na podstawie przyrostów wymaga znajomości gatunku i metody. Widoczna linia nie musi oznaczać pełnego roku życia. Sklerochronologia jest badaniem, a nie prostą regułą dla każdego okazu znalezionego na plaży. [36]
Czy opisanie nowego gatunku oznacza jego powstanie?
Nie. Opis dokumentuje rozpoznanie i formalne nazwanie organizmu przez naukę. Gatunek mógł istnieć długo przed tym momentem. Liczba nowych opisów jest miarą postępu wiedzy, a nie bieżącego tempa ewolucyjnego powstawania gatunków.
Czy jeden procent zagrożenia opisuje cały typ Mollusca?
Nie. Trzeba znać geografię, grupę, datę, metodę i sposób potraktowania gatunków o niewystarczających danych. Wynik dla europejskich mięczaków słodkowodnych z 2011 r. nie może zostać podpisany jako obecny odsetek wszystkich zagrożonych mięczaków. [126, 120]
Dalej w atlasieGatunki i tematy z tego opracowania
Hasła gatunków omawianych w kompendium, z wymiarami, występowaniem i mapą.
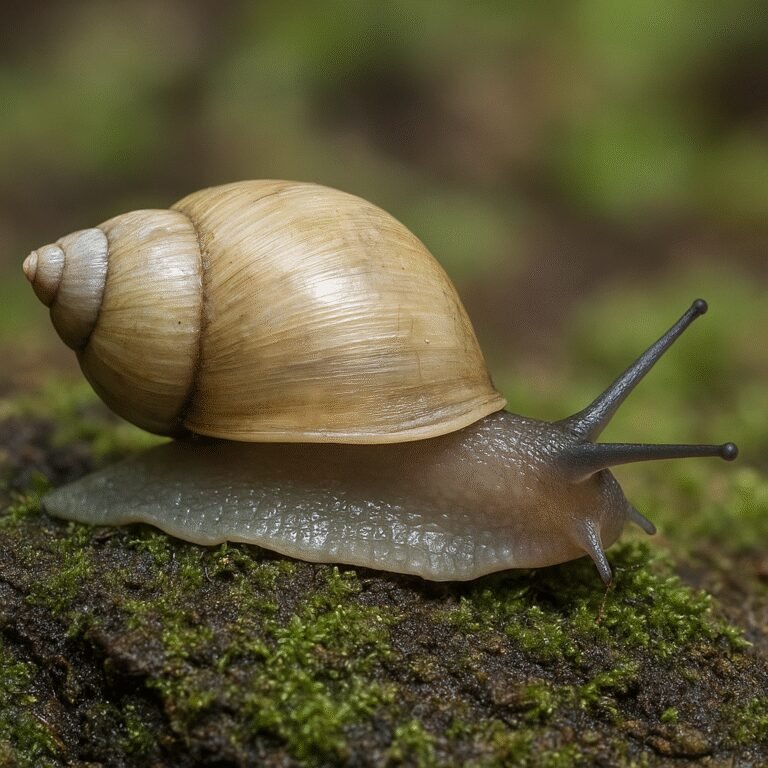
Ślimak Lymnaea stagnalis
Lymnaea stagnalis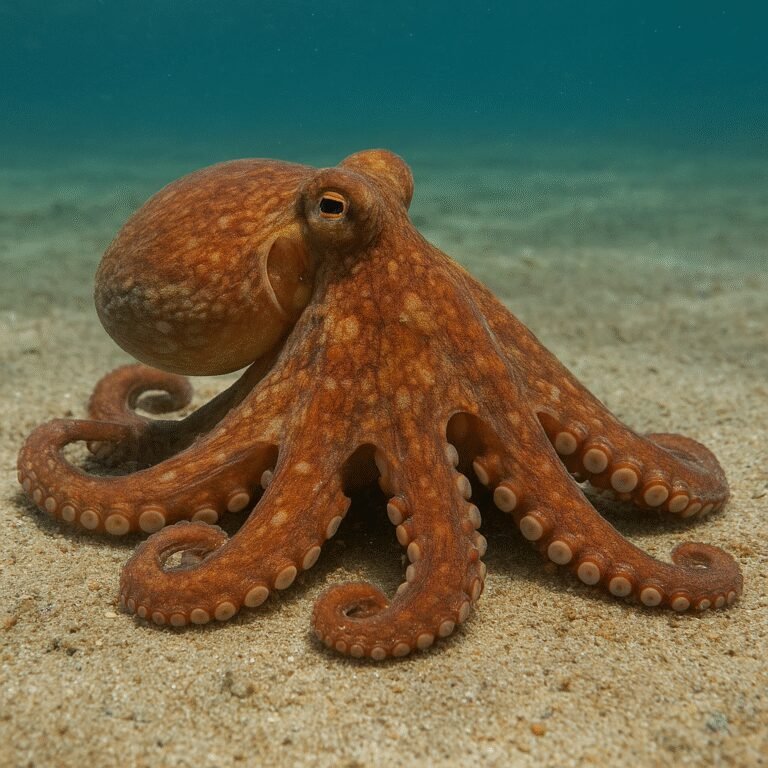
Ośmiornica zwyczajna
Octopus vulgaris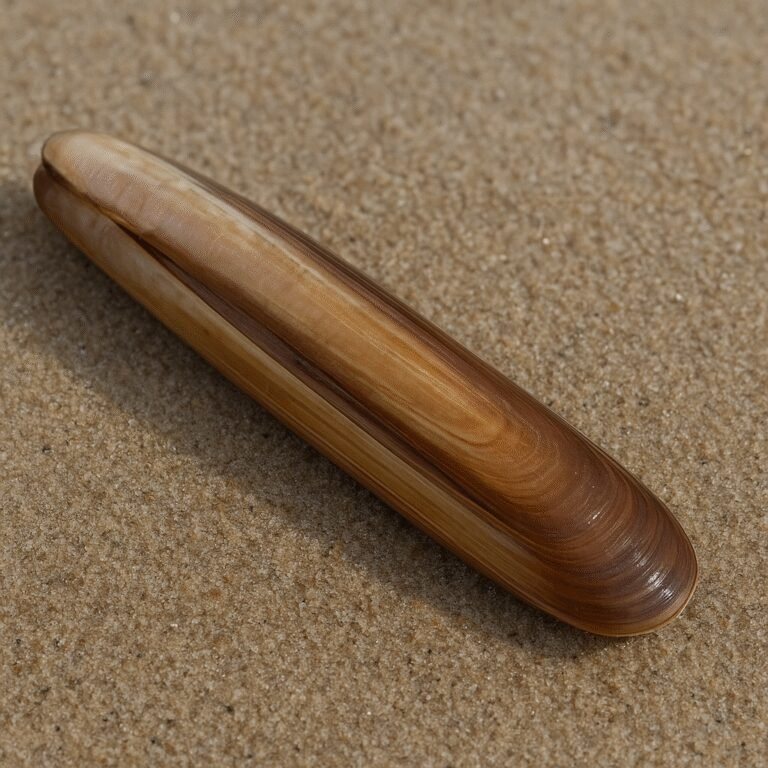
Małż Ensis directus
Ensis directus
Małż atlantycki
Arctica islandica
Mątwa zebra
Sepia officinalis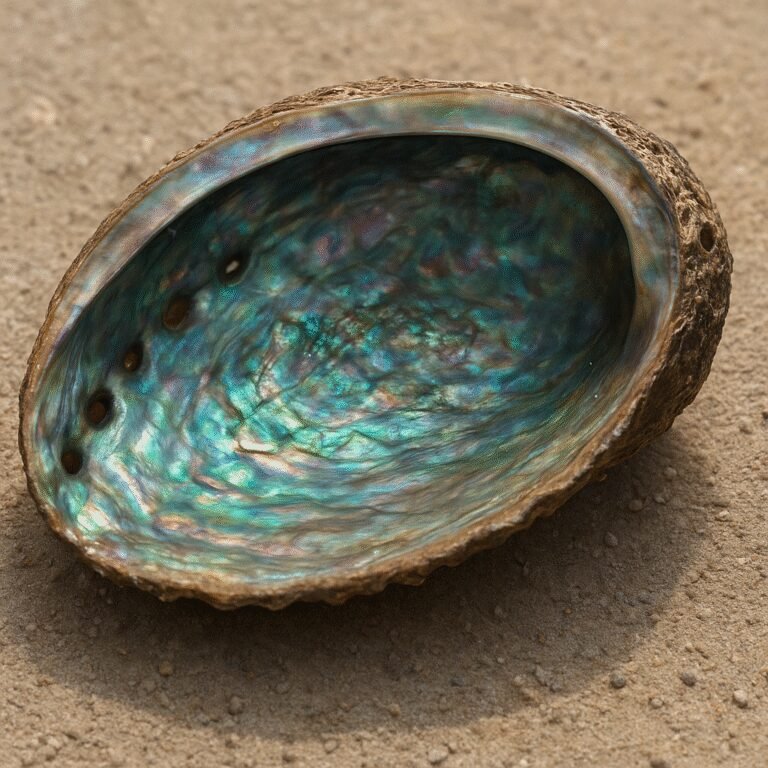
Haliotis asinina
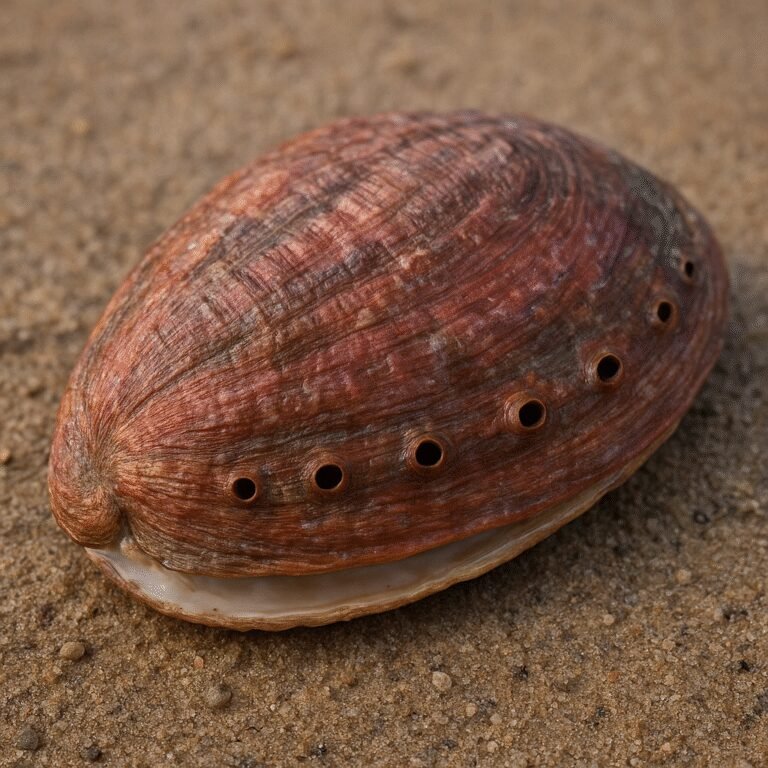
Haliotis rufescens
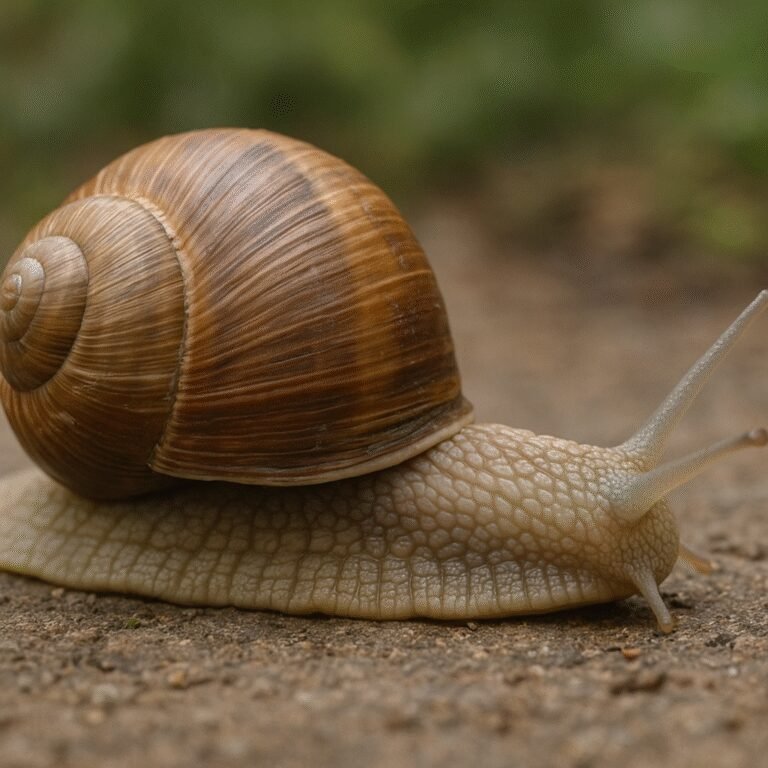
Ślimak wstężyk
Cepaea nemoralisPrzeglądaj dalej
- Wszystkie hasła: mięczaki
- Mięczaki występujące w Polsce
- Quiz: mięczaki
- Oś czasu: dinozaury i zwierzęta wymarłe
- Porównaj dwa gatunki
Inne kompendia
Rozdział 31Słownik najważniejszych pojęć
Tabela 30. Terminy używane w kompendium
| Termin | Znaczenie w artykule |
|---|---|
| Akwakultura | Chów organizmów wodnych z ingerencją w proces produkcji |
| Bentos | Organizmy związane z dnem środowiska wodnego |
| Biogeografia | Badanie rozmieszczenia organizmów oraz współczesnych i historycznych przyczyn tego rozmieszczenia |
| Biomimetyka | Projektowanie rozwiązań technicznych z wykorzystaniem wybranych zasad działania układów biologicznych |
| Biomineralizacja | Kontrolowane biologicznie tworzenie struktur zawierających minerały |
| Bisior | Włókna służące części małży do przytwierdzania się |
| CAGR | Średnie roczne tempo wzrostu składane, wyliczone z wartości początkowej i końcowej |
| Chromatofory | Struktury z barwnikiem uczestniczące w zmianie wyglądu skóry |
| Datowanie krzyżowe | Dopasowanie zachodzących na siebie sekwencji przyrostu w celu uzgodnienia ich położenia w czasie |
| Detrytus | Rozdrobniona materia organiczna, w tym pozostałości organizmów |
| eDNA | DNA środowiskowe pozyskane z próbki środowiska, np. wody |
| Ekspresja genu | Proces wykorzystywania informacji genetycznej; w omawianych analizach m.in. obecność transkryptów RNA |
| Endemit | Gatunek występujący naturalnie wyłącznie na określonym obszarze |
| Filogenomika | Wnioskowanie o pokrewieństwie z dużych zestawów danych genomowych |
| Filtracja pokarmowa | Pobieranie zawieszonych cząstek z przepływającej wody |
| Glochidium | Larwa wielu małży Unionida rozwijająca się z udziałem gospodarza |
| Hemolimfa | Płyn krążący w otwartym układzie krążenia |
| Hydromorfologia | Cechy fizyczne wód i ich otoczenia, rozpatrywane wraz z warunkami przepływu |
| Kalcyfikacja | Tworzenie struktur mineralnych zawierających związki wapnia |
| Kalibracja wskaźnika | Ustalenie i sprawdzenie związku między mierzoną cechą a zmienną, o której ma ona dostarczać informacji |
| Kleptoplastyka | Zachowanie przez organizm funkcjonalnych chloroplastów pochodzących z pokarmu |
| Kompetencja do metamorfozy | Stan rozwojowy umożliwiający larwie odpowiedź prowadzącą do przeobrażenia |
| Malakologia | Nauka zajmująca się mięczakami |
| Metagenom | Zestaw informacji genetycznej organizmów obecnych w badanej próbce |
| Metamorfoza | Przeobrażenie pomiędzy etapami rozwoju |
| Metatranskryptom | Zestaw transkryptów RNA organizmów w badanej próbce |
| Osmokonformizm | Stan, w którym osmolalność płynów ciała w znacznym stopniu podąża za otoczeniem |
| Osmoregulacja | Regulacja gospodarki wodnej i warunków osmotycznych organizmu |
| Perfuzja | Przepływ płynu przez narząd lub tkankę, wykorzystywany także w doświadczeniu fizjologicznym |
| Płaszcz | Część ciała związana m.in. z wydzielaniem muszli |
| Presja propagul | Znaczenie liczby i częstości dostarczania organizmów zdolnych do rozpoczęcia nowej populacji |
| Proxy | Mierzalny wskaźnik pośredni używany do wnioskowania o innej zmiennej po sprawdzeniu ich związku |
| Przedział ufności | Zakres niepewności oszacowania wyznaczany według określonej procedury statystycznej |
| Pseudoreplikacja | Traktowanie zależnych pomiarów jako niezależnych powtórzeń badania |
| Radula | Tarka wyposażona w rzędy ząbków |
| Rekrutacja | Dołączenie osobników do zdefiniowanej klasy lub części populacji |
| Replikacja biologiczna | Powtórzenia oparte na odrębnych biologicznych jednostkach badania, wymagające odróżnienia od powtarzanego pomiaru tej samej jednostki |
| Sklerochronologia | Badanie czasu i warunków wzrostu zapisanych w twardych strukturach |
| Takson | Wyróżniona jednostka klasyfikacji, np. gatunek, rodzaj lub klasa |
| Torsja | Rozwojowa reorganizacja położenia części ciała ślimaka |
| Transkryptom | Zestaw transkryptów RNA obecnych w badanym materiale i warunkach |
| Trochofora | Orzęsiona larwa występująca w rozwoju części mięczaków i innych zwierząt |
| Weliger | Stadium larwalne wielu ślimaków i małży, z charakterystycznym aparatem rzęskowym |
| Wielkość efektu | Miara rozmiaru różnicy lub siły związku, odrębna od samej istotności statystycznej |
| Wykrywalność | Szansa uzyskania obserwacji organizmu obecnego w obszarze objętym badaniem |
Definicje syntetyzują znaczenia wyjaśnione w odpowiednich rozdziałach; nie zastępują szczegółowych opisów dla konkretnych gatunków.
Rozdział 32Metodologia i zasady korzystania z danych
Hierarchia źródeł
Opracowanie łączy pierwotne publikacje badawcze, bazy taksonomiczne, oficjalne statystyki oraz materiały instytucji naukowych i administracji środowiskowej. Liczby dotyczące różnorodności oparto na MolluscaBase, produkcji na FAO i Eurostacie, a przykłady ochrony na raportach IUCN/Komisji Europejskiej oraz GIOŚ. Część biologiczną wspierają publikacje naukowe i materiały muzeów zajmujących się badaniami oraz kolekcjami mięczaków.
Podstawy anatomii opisano jako uogólnienia z zaznaczeniem wyjątków. Dane eksperymentalne przypisano konkretnemu organizmowi, próbie i zadaniu. Szacunki oznaczono jako szacunki; obserwacji historycznych nie przedstawiono jako nowego spisu stanu przyrody. Gdy źródła posługiwały się różnymi zakresami, zachowano te zakresy zamiast łączyć liczby w pozornie jednolite zestawienie.
Rok publikacji i rok danych
Raport wydany w 2026 r. może zawierać dane za 2024 r. Data dostępu do strony nie zmienia roku oceny IUCN z 2011 r. ani monitoringu prowadzonego w latach 2023–2024. W podpisach tabel i grafik rozdzielono te informacje. Materiały poprzedniego wydania sprawdzano 12 listopada 2026 r.; nowe prace i zbiory danych dodane do tego wydania sprawdzano 13 listopada 2026 r. Data wydania nie oznacza ponownego odczytania całej wcześniejszej bibliografii ani daty przeprowadzenia badań.
Obliczenia i zaokrąglenia
Odsetki obliczane w opracowaniu mają jawny mianownik. Dla danych IUCN użyto odpowiednio 854 wszystkich zestawionych gatunków albo 638 po wyłączeniu DD i EX. Dla monitoringu skójki mianownikiem jest 58 badanych stanowisk regionu kontynentalnego. Wyniki przedstawiono z jednym miejscem po przecinku. Zaokrąglenie służy czytelności; nie zwiększa ani nie zmniejsza dokładności materiału źródłowego.
Dane FAO na wykresach zapisano w milionach ton, przeliczając wartości tabeli wyrażone w tysiącach ton przez podzielenie ich przez 1000. Zachowano jeden rocznik publikacji danych dla całego szeregu. Kategorie „clams” i „razor clams” pozostawiono z angielskimi nazwami grup statystycznych, ponieważ samo przetłumaczenie obu jako „małże” zacierałoby różnicę względem ostryg, omułków i przegrzebków.
Dostęp do dokumentów źródłowych
Szczegółowe tabele SOFIA 2026 odczytano z publicznie dostępnej kopii oryginalnego raportu. W bibliografii podano oficjalny DOI oraz adres wykorzystanej kopii; komunikat FAO potwierdza wydanie i datę publikacji. Europejską Czerwoną Listę z 2011 r. odczytano z kopii pierwotnego raportu udostępnionej w regionalnym portalu bioróżnorodności. Nie przedstawiono tych kopii jako nowych lub odrębnych badań.
W raporcie GIOŚ wykorzystano spójne wartości ogólnej oceny stanu ochrony ze strony 24. Nie przenoszono niespójnych wartości z opisów osobnego parametru „populacja”. Dla części publikacji naukowych weryfikacja obejmowała abstrakt i dostępne informacje instytucji autorów; wnioski ograniczono do zakresu, który te materiały potwierdzają.
Grafiki i możliwość ponownego wykorzystania
Wykresy i schematy przygotowano jako własne opracowania informacji źródłowych. Grafika otwierająca jest ilustracją poglądową. Wartości na wykresach odpowiadają tabelom danych, a każda rycina ma podpis i opis alternatywny.
Przy ponownej publikacji należy zachować rok danych, jednostki, zakres geograficzny, źródło i uwagi o mianowniku. Usunięcie tych informacji może zmienić poprawną grafikę w mylący przekaz, nawet jeśli same słupki pozostaną niezmienione.
Zakres przeglądu i poziom dowodów
Dobór literatury ma charakter celowy: źródła służą wyjaśnieniu określonego zagadnienia, zweryfikowaniu liczby albo przedstawieniu dobrze opisanej metody. Nie przeprowadzono pełnego przeszukania wszystkich baz z kryteriami przeglądu systematycznego. Doboru przykładów nie należy traktować jako rankingu najważniejszych prac ani pełnego obrazu wszystkich wyników w danej dziedzinie.
W opisach badań rozdzielono jednostkę pomiaru od poziomu uogólnienia. Wynik uzyskany dla wyizolowanego narządu, sekwencji RNA, próbki wody, konkretnego rocznika lub stanowiska nie jest sam przez się pomiarem funkcjonowania całego gatunku. Wyjaśnienia łączące wyniki mają charakter syntezy porównawczej. Sformułowania o potencjalnym mechanizmie zachowano tam, gdzie źródło nie przedstawiało bezpośredniego dowodu jego działania w każdych warunkach.
Dla części prac odczytano pełny tekst, dla innych abstrakt lub indeksowane fragmenty wraz z potwierdzonymi metadanymi. Nie uzupełniano nieodczytanych szczegółów, takich jak liczebność próby, przebieg eksperymentu czy niepodana data publikacji, na podstawie przypuszczeń.
Obliczenia dodane w wydaniu rozszerzonym
Indeks o podstawie 2000 = 100 otrzymano przez podzielenie wartości danego roku przez wartość z 2000 r. i pomnożenie przez 100. Wzrost całkowity obliczono jako różnicę wartości końcowej i początkowej, podzieloną przez wartość początkową. CAGR opisuje równoważne tempo składane pomiędzy krańcami szeregu. Nie jest średnią arytmetyczną rocznych zmian ani prognozą.
Numeracja źródeł
Numery źródeł nadano według pierwszego wystąpienia w tekście. Nie należy łączyć ich z numeracją bibliografii z wcześniejszych wydań.
Odtwarzalność nowego przykładu ilościowego
Nowy zbiór dotyczący chronologii muszlowej ma odrębną dokumentację źródła, definicji kolumn i przekształceń. Liczba składowych szeregu w danym roku nie jest liczebnością dzikiej populacji. Nie przeliczono pomiarów przyrostu na temperaturę bez odpowiedniej kalibracji.
Zakres sprawdzenia źródeł
Zakres sprawdzenia nie jest jednakowy dla wszystkich pozycji: dla części odczytano pełny tekst, dla innych określone fragmenty, abstrakt lub metadane instytucjonalne. Umieszczenie pozycji w bibliografii nie jest deklaracją pełnego odczytu publikacji.
Indeks nazw gatunkowych
Wskazano pełne dwuczłonowe nazwy wyróżnione w tekście oraz rozdziały, w których występują. Zachowano nazwy używane w omawianych źródłach; synonimy i historyczne kombinacje mogą mieć odrębne wpisy. Liczby poniżej oznaczają rozdziały, a nie pozycje bibliografii. Zestawienie nie jest spisem wszystkich mięczaków ani oceną ich statusu taksonomicznego.
Tabela 31. Indeks nazw i rozdziałów
| Nazwa użyta w tekście | Rozdziały |
|---|---|
| Acanthopleura granulata | 23 |
| Actinonaias ligamentina | 14 |
| Angustopila psammion | 23 |
| Anisus vorticulus | 17 |
| Arctica islandica | 6, 23, 25, 29 |
| Ariolimax californicus | 5 |
| Astarte borealis | 25 |
| Astarte elliptica | 25 |
| Biomphalaria glabrata | 4 |
| Cepaea nemoralis | 14 |
| Cryptochiton stelleri | 6 |
| Deroceras reticulatum | 5 |
| Dreissena polymorpha | 17, 18 |
| Eledone moschata | 4 |
| Elysia timida | 15 |
| Ensis directus | 5 |
| Gonidea angulata | 28 |
| Haliotis asinina | 11 |
| Haliotis rufescens | 11 |
| Helix aspersa | 5 |
| Helix pomatia | 17 |
| Hypsipetes amaurotis | 13 |
| Lampsilis fasciola | 28 |
| Loligo pealeii | 10 |
| Lucina pensylvanica | 25 |
| Lymnaea stagnalis | 4 |
| Macoma balthica | 17 |
| Margaritifera margaritifera | 17 |
| Mesonychoteuthis hamiltoni | 23 |
| Mytilus californianus | 24 |
| Mytilus edulis | 4, 6 |
| Mytilus trossulus | 17 |
| Nipponacmea fuscoviridis | 7 |
| Octopus bimaculoides | 10, 11 |
| Octopus pallidus | 4 |
| Octopus vulgaris | 4 |
| Pareledone charcoti | 4 |
| Patella vulgata | 6, 14 |
| Pinctada fucata | 6 |
| Pinna nobilis | 6 |
| Rastellum diluvianum | 25 |
| Sepia officinalis | 9 |
| Sinanodonta woodiana | 17 |
| Tornatellides boeningi | 13 |
| Tridacna maxima | 15 |
| Unio crassus | 17, 28 |
| Unio nanus | 28 |
| Unio tumidiformis | 11 |
| Vertigo moulinsiana | 17 |
| Zosterops japonicus | 13 |
Bibliografia
Numeracja odpowiada kolejności pierwszego przywołania w tekście. Materiały internetowe sprawdzano 12–13 listopada 2026 r.. Rok danych i rok publikacji mogą się różnić.
[1] Natural History Museum, London (b.d.). Molluscs. Źródło.
[2] Western Australian Museum (b.d.). Mollusc (Malacology) Section. Źródło.
[3] Western Australian Museum (b.d.). Class: Gastropoda. Źródło.
[4] Western Australian Museum (b.d.). Class: Cephalopoda. Źródło.
[5] Eurostat (2026). EU aquaculture: 1 million tonnes produced in 2024. Źródło. Publikacja z 23 kwietnia 2026 r.; dane za 2024 r.
[6] MolluscaBase eds. (2026). MolluscaBase — About. DOI: 10.14284/448. Źródło. Dane o różnorodności oznaczone w bazie: październik 2026 r.
[7] Zeyuan Chen i in. (2025). A genome-based phylogeny for Mollusca is concordant with fossils and morphology. DOI: 10.1126/science.ads0215.
[8] Western Australian Museum (b.d.). Class: Aplacophora. Źródło. Źródło łączy Solenogastres i Caudofoveata pod nazwą Aplacophora; kompendium przyjmuje dwie odrębne klasy.
[9] Western Australian Museum (b.d.). Class: Bivalvia. Źródło.
[10] Western Australian Museum (b.d.). Class Polyplacophora (Chitons). Źródło.
[11] Western Australian Museum (b.d.). Class: Scaphopoda. Źródło.
[12] Phil Myers i John B. Burch; Museum of Zoology, University of Michigan (2001). Monoplacophora. Źródło.
[13] Senckenberg Nature Research (2025). Cracking the Mollusc Code: Genomes Reveal the Ancient Ancestor of Your Garden Snail. Źródło.
[14] OpenStax, Rice University (b.d.). 15.4 Mollusks and Annelids — Concepts of Biology. Źródło.
[15] Queensland Museum (b.d.). Gastropods — Animals of Queensland. Źródło.
[16] University of Hawaiʻi at Mānoa (b.d.). Phylum Mollusca — Exploring Our Fluid Earth. Źródło.
[17] Danielle Hall; recenzja Michael Vecchione, Smithsonian Institution (b.d.). Octopuses, Squids, and Relatives. Źródło.
[18] Jereb P., Roper C.F.E., Norman M.D., Finn J.K. (red.); FAO (2014). Cephalopods of the World. Volume 3. Octopods and Vampire Squids. Źródło.
[19] T. Inoue, Z. Haque, K. Lukowiak, N. I. Syed (2001). Hypoxia-Induced Respiratory Patterned Activity in Lymnaea Originates at the Periphery. Journal of Neurophysiology, 86(1):156–163. DOI: 10.1152/jn.2001.86.1.156. Źródło.
[20] NOAA National Ocean Service (b.d.). What is a bivalve mollusk?. Źródło.
[21] M. J. Wells; J. Wells (1995). The control of ventilatory and cardiac responses to changes in ambient oxygen tension and oxygen demand in octopus. Journal of Experimental Biology 198(8):1717–1727. DOI: 10.1242/jeb.198.8.1717. Źródło.
[22] Museum of New Zealand Te Papa Tongarewa (b.d.). Tusk shells (Class Scaphopoda). Źródło.
[23] Michael Oellermann; Bernhard Lieb; Hans-O. Pörtner; Jayson M. Semmens; Felix C. Mark (2015). Blue blood on ice: modulated blood oxygen transport facilitates cold compensation and eurythermy in an Antarctic octopod. Frontiers in Zoology 12:6. DOI: 10.1186/s12983-015-0097-x. Źródło.
[24] Bernhard Lieb; Konstantina Dimitrova; Hio-Sun Kang; Sabrina Braun; Wolfgang Gebauer; Andreas Martin; Ben Hanelt; Steven A. Saenz; Coen M. Adema; Jürgen Markl (2006). Red blood with blue-blood ancestry: Intriguing structure of a snail hemoglobin. Proceedings of the National Academy of Sciences 103(32):12011–12016. DOI: 10.1073/pnas.0601861103. Źródło.
[25] Marian Y. Hu; Po-Hsuan Sung; Ying-Jey Guh; Jay-Ron Lee; Pung-Pung Hwang; Dirk Weihrauch; Yung-Che Tseng (2017). Perfused Gills Reveal Fundamental Principles of pH Regulation and Ammonia Homeostasis in the Cephalopod Octopus vulgaris. Frontiers in Physiology 8:162. DOI: 10.3389/fphys.2017.00162. Źródło.
[26] J. Thomsen; N. Himmerkus; N. Holland; F. J. Sartoris; M. Bleich; M. Tresguerres (2016). Ammonia excretion in mytilid mussels is facilitated by ciliary beating. Journal of Experimental Biology 219(15):2300–2310. DOI: 10.1242/jeb.139550. Źródło.
[27] Melissa A. May; Karl D. Bishop; Paul D. Rawson (2017). NMR Profiling of Metabolites in Larval and Juvenile Blue Mussels (Mytilus edulis) under Ambient and Low Salinity Conditions. Metabolites 7(3):33. DOI: 10.3390/metabo7030033. Źródło.
[28] Sue C. Ebanks; Martin Grosell (2008). Fluid and osmolyte recovery in the common pond snail Lymnaea stagnalis following full-body withdrawal. Journal of Experimental Biology 211(3):327–336. DOI: 10.1242/jeb.010132. Źródło.
[29] Lai, J. H.; del Alamo, J. C.; Rodríguez-Rodríguez, J.; Lasheras, J. C. (2010). The mechanics of the adhesive locomotion of terrestrial gastropods. Journal of Experimental Biology 213(22), 3920–3933. DOI: 10.1242/jeb.046706. Źródło.
[30] Winter, A. G. V; Deits, R. L. H.; Hosoi, A. E. (2012). Localized fluidization burrowing mechanics of Ensis directus. Journal of Experimental Biology 215, 2072–2080. DOI: 10.1242/jeb.058172. Źródło.
[31] Bartol, I. K.; Krueger, P. S.; Stewart, W. J.; Thompson, J. T. (2009). Hydrodynamics of pulsed jetting in juvenile and adult brief squid Lolliguncula brevis: evidence of multiple jet modes and their implications for propulsive efficiency. Journal of Experimental Biology 212(12), 1889–1903. DOI: 10.1242/jeb.027771. Źródło.
[32] Winter, A. G. V; Deits, R. L. H.; Dorsch, D. S.; Slocum, A. H.; Hosoi, A. E. (2014). Razor clam to RoboClam: burrowing drag reduction mechanisms and their robotic adaptation. Bioinspiration & Biomimetics 9(3), 036009. DOI: 10.1088/1748-3182/9/3/036009.
[33] Clark M.S. i in. (2020). Deciphering mollusc shell production: the roles of genetic mechanisms through to ecology, aquaculture and biomimetics. Biological Reviews, 95(6):1812–1837. DOI: 10.1111/brv.12640. Źródło.
[34] Suzuki M. i in. (2009). An acidic matrix protein, Pif, is a key macromolecule for nacre formation. Science, 325(5946):1388–1390. DOI: 10.1126/science.1173793. Źródło.
[35] Adam B. Johnson, Nina S. Fogel, J. David Lambert (2019). Growth and morphogenesis of the gastropod shell. Proceedings of the National Academy of Sciences, 116(14):6878–6883. DOI: 10.1073/pnas.1816089116. Źródło.
[36] Bangor University (2013). Clams reveal secrets of changing marine climate. Źródło.
[37] Bangor University (2013). Clam found to be over 500 years old. Źródło.
[38] Kirti Ramesh; Marian Y. Hu; Jörn Thomsen; Markus Bleich; Frank Melzner (2017). Mussel larvae modify calcifying fluid carbonate chemistry to promote calcification. Nature Communications 8:1709. DOI: 10.1038/s41467-017-01806-8. Źródło.
[39] Tejaswi Yarra; Kirti Ramesh; Mark Blaxter; Anne Hüning; Frank Melzner; Melody S. Clark (2021). Transcriptomic analysis of shell repair and biomineralization in the blue mussel, Mytilus edulis. BMC Genomics, 22:437. DOI: 10.1186/s12864-021-07751-7. Źródło.
[40] Jiseok Gim; Noah Schnitzer; Laura M. Otter; Yuchi Cui; Sébastien Motreuil; Frédéric Marin; Stephan E. Wolf; Dorrit E. Jacob; Amit Misra; Robert Hovden (2019). Nanoscale deformation mechanics reveal resilience in nacre of Pinna nobilis shell. Nature Communications 10:4822. DOI: 10.1038/s41467-019-12743-z. Źródło.
[41] Linus Stegbauer; Paul J. M. Smeets; Robert Free; Shay G. Wallace; Mark C. Hersam; Esen E. Alp; Derk Joester (2021). Persistent polyamorphism in the chiton tooth: From a new biomineral to inks for additive manufacturing. Proceedings of the National Academy of Sciences 118(23):e2020160118. DOI: 10.1073/pnas.2020160118. Źródło.
[42] Asa H. Barber; Dun Lu; Nicola M. Pugno (2015). Extreme strength observed in limpet teeth. Journal of the Royal Society Interface 12(105):20141326. DOI: 10.1098/rsif.2014.1326. Źródło.
[43] Yoshihisa Kurita, Hiroshi Wada (2011). Evidence that gastropod torsion is driven by asymmetric cell proliferation activated by TGF-β signalling. Biology Letters, 7(5):759–762. DOI: 10.1098/rsbl.2011.0263. Źródło.
[44] Louise R. Page (2003). Gastropod ontogenetic torsion: Developmental remnants of an ancient evolutionary change in body plan. DOI: 10.1002/jez.b.12.
[45] Carnegie Museum of Natural History (b.d.). Land Snails Ecology — Life History. Źródło.
[46] NOAA NCCOS (2021). Quantification and Valuation of Municipal Scale Shellfish Ecosystem Services. Źródło.
[47] USGS (2023). U.S. Geological Survey science vision for native freshwater mussel research in the United States. Źródło.
[48] NOAA Fisheries (b.d.). Oyster Reef Habitat. Źródło.
[49] Olson C.S., Schulz N.G., Ragsdale C.W. (2025). Neuronal segmentation in cephalopod arms. Nature Communications, 16:443. DOI: 10.1038/s41467-024-55475-5. Źródło.
[50] Meyer F.; Smithsonian Ocean (b.d.). How Octopuses and Squids Change Color. Źródło.
[51] Alexandra K. Schnell, Markus Boeckle, Micaela Rivera, Nicola S. Clayton, Roger T. Hanlon (2021). Cuttlefish exert self-control in a delay of gratification task. DOI: 10.1098/rspb.2020.3161. Źródło.
[52] Lena van Giesen; Peter B. Kilian; Corey A. H. Allard; Nicholas W. Bellono (2020). Molecular basis of chemotactile sensation in octopus. Cell 183(3):594–604.e14. DOI: 10.1016/j.cell.2020.09.008. Źródło.
[53] Benjamin A. Palmer; Gavin J. Taylor; Vlad Brumfeld; Dvir Gur; Michal Shemesh; Nadav Elad; Aya Osherov; Dan Oron; Steve Weiner; Lia Addadi (2017). The image-forming mirror in the eye of the scallop. Science 358(6367):1172–1175. DOI: 10.1126/science.aam9506. Źródło.
[54] M. Desmond Ramirez; Todd H. Oakley (2015). Eye-independent, light-activated chromatophore expansion (LACE) and expression of phototransduction genes in the skin of Octopus bimaculoides. Journal of Experimental Biology 218(10):1513–1520. DOI: 10.1242/jeb.110908. Źródło.
[55] T. Aran Mooney; Roger T. Hanlon; Jakob Christensen-Dalsgaard; Peter T. Madsen; Darlene R. Ketten; Paul E. Nachtigall (2010). Sound detection by the longfin squid (Loligo pealeii) studied with auditory evoked potentials: sensitivity to low-frequency particle motion and not pressure. Journal of Experimental Biology 213:3748–3759. DOI: 10.1242/jeb.048348. Źródło.
[56] University of Florida IFAS (b.d.). Teach Aquaculture Curriculum: Spawning and Rearing Bivalve Molluscs — Spawning. Źródło.
[57] Catherine Gatenby, Holly Richards; U.S. Fish and Wildlife Service (2023). Freshwater mussels and fish: A timeless love affair. Źródło.
[58] Joaquim Reis, Maria João Collares-Pereira, Rafael Araujo (2014). Host specificity and metamorphosis of the glochidium of the freshwater mussel Unio tumidiformis (Bivalvia: Unionidae). DOI: 10.14411/fp.2014.005. Źródło.
[59] U.S. Geological Survey, Wetland and Aquatic Research Center (2016). Life History Characterization and Host Fish Identification for Federally Listed and Imperiled Freshwater Mussel Species in the Suwannee River Basin in Georgia and Florida. Źródło.
[60] Louise R. Page (2009). Molluscan Larvae: Pelagic Juveniles or Slowly Metamorphosing Larvae?. The Biological Bulletin, 216(3):216–225. DOI: 10.1086/BBLv216n3p216. Źródło.
[61] Jackson D., Leys S.P., Hinman V.F., Woods R., Lavin M.F., Degnan B.M. (2002). Ecological regulation of development: induction of marine invertebrate metamorphosis. International Journal of Developmental Biology, 46(4):679–686. Źródło.
[62] Baxter G., Morse D.E. (1987). G protein and diacylglycerol regulate metamorphosis of planktonic molluscan larvae. Proceedings of the National Academy of Sciences, 84(7):1867–1870. DOI: 10.1073/pnas.84.7.1867. Źródło.
[63] Helm M.M., Bourne N.; red. Lovatelli A.; FAO (2004). Hatchery culture of bivalves. A practical manual. FAO Fisheries Technical Paper, 471. Źródło.
[64] Wang Z.Y., Ragsdale C.W. (2018). Multiple optic gland signaling pathways implicated in octopus maternal behaviors and death. Journal of Experimental Biology, 221(19):jeb185751. DOI: 10.1242/jeb.185751. Źródło.
[65] Wang Z.Y., Pergande M.R., Ragsdale C.W., Cologna S.M. (2022). Steroid hormones of the octopus self-destruct system. Current Biology, 32(11):2572–2579.e4. DOI: 10.1016/j.cub.2022.04.043. Źródło.
[66] Mark D. Sutton, Julia D. Sigwart, Derek E. G. Briggs, Pierre Gueriau, Andrew King, David J. Siveter, Derek J. Siveter (2025). New Silurian aculiferan fossils reveal complex early history of Mollusca. Nature, 637:631–636. DOI: 10.1038/s41586-024-08312-0. Źródło.
[67] Mosè Manni; Matthew R. Berkeley; Mathieu Seppey; Felipe A. Simão; Evgeny M. Zdobnov (2021). BUSCO Update: Novel and Streamlined Workflows along with Broader and Deeper Phylogenetic Coverage for Scoring of Eukaryotic, Prokaryotic, and Viral Genomes. Molecular Biology and Evolution 38(10):4647–4654. DOI: 10.1093/molbev/msab199. Źródło.
[68] Kevin M. Kocot; Albert J. Poustka; Isabella Stöger; Kenneth M. Halanych; Michael Schrödl (2020). New data from Monoplacophora and a carefully-curated dataset resolve molluscan relationships. Scientific Reports 10:101. DOI: 10.1038/s41598-019-56728-w. Źródło.
[69] Jablonski, D.; Roy, K.; Valentine, J. W. (2006). Out of the Tropics: Evolutionary Dynamics of the Latitudinal Diversity Gradient. Science 314(5796): 102–106. DOI: 10.1126/science.1130880.
[70] Wilson, A. B.; Glaubrecht, M.; Meyer, A. (2004). Ancient lakes as evolutionary reservoirs: evidence from the thalassoid gastropods of Lake Tanganyika. Proceedings of the Royal Society B 271(1538): 529–536. DOI: 10.1098/rspb.2003.2624.
[71] Gittenberger, E.; Groenenberg, D. S. J.; Kokshoorn, B.; Preece, R. C. (2006). Molecular trails from hitch-hiking snails. Nature 439: 409. DOI: 10.1038/439409a.
[72] Wada, S.; Kawakami, K.; Chiba, S. (2012). Snails can survive passage through a bird’s digestive system. Journal of Biogeography 39(1): 69–73. DOI: 10.1111/j.1365-2699.2011.02559.x.
[73] Chiba, S.; Okochi, I.; Ohbayashi, T.; Miura, D.; Mori, H.; Kimura, K.; Wada, S. (2009). Effects of habitat history and extinction selectivity on species-richness patterns of an island land snail fauna. Journal of Biogeography 36(10): 1913–1922. DOI: 10.1111/j.1365-2699.2009.02115.x.
[74] Régnier, C.; Achaz, G.; Lambert, A.; Cowie, R. H.; Bouchet, P.; Fontaine, B. (2015). Mass extinction in poorly known taxa. Proceedings of the National Academy of Sciences 112(25): 7761–7766. DOI: 10.1073/pnas.1502350112.
[75] HELCOM (2023). Soft-bottom macrofauna — HELCOM indicators. Źródło.
[76] Vaughn C.C., Gido K.B., Spooner D.E. (2004). Ecosystem Processes Performed by Unionid Mussels in Stream Mesocosms: Species Roles and Effects of Abundance. Hydrobiologia 527:35–47. DOI: 10.1023/B:HYDR.0000043180.30420.00. Źródło.
[77] Vaughn C.C., Spooner D.E., Galbraith H.S. (2007). Context-dependent species identity effects within a functional group of filter-feeding bivalves. Ecology 88(7):1654–1662. DOI: 10.1890/06-0471.1. Źródło.
[78] Humphries A.T., Ayvazian S.G., Carey J.C., Hancock B.T., Grabbert S., Cobb D., Strobel C.J., Fulweiler R.W. (2016). Directly Measured Denitrification Reveals Oyster Aquaculture and Restored Oyster Reefs Remove Nitrogen at Comparable High Rates. Frontiers in Marine Science, 3:74. DOI: 10.3389/fmars.2016.00074. Źródło.
[79] Hawkins S.J. (1981). The influence of season and barnacles on the algal colonization of Patella vulgata exclusion areas. Journal of the Marine Biological Association of the United Kingdom 61(1):1–15. DOI: 10.1017/S0025315400045872. Źródło.
[80] Joly F.-X., Coq S., Coulis M., David J.-F., Hättenschwiler S., Mueller C.W., Prater I., Subke J.-A. (2020). Detritivore conversion of litter into faeces accelerates organic matter turnover. Communications Biology 3:660. DOI: 10.1038/s42003-020-01392-4. Źródło.
[81] Ansorge R. i in. (2019). Functional diversity enables multiple symbiont strains to coexist in deep-sea mussels. Nature Microbiology. DOI: 10.1038/s41564-019-0572-9. Źródło.
[82] Armstrong E.J., Roa J.N., Stillman J.H., Tresguerres M. (2018). Symbiont photosynthesis in giant clams is promoted by V-type H+-ATPase from host cells. Journal of Experimental Biology, 221(18):jeb177220. DOI: 10.1242/jeb.177220. Źródło.
[83] Cartaxana P. i in. (2021). Photosynthesis from stolen chloroplasts can support sea slug reproductive fitness. Proceedings of the Royal Society B, 288(1959):20211779. DOI: 10.1098/rspb.2021.1779. Źródło.
[84] Stoeckl K., Taeubert J.E., Geist J. (2015). Fish species composition and host fish density in streams of the thick-shelled river mussel (Unio crassus) – implications for conservation. Aquatic Conservation: Marine and Freshwater Ecosystems 25(2):276–287. DOI: 10.1002/aqc.2470. Źródło.
[85] Zając K., Florek J., Zając T., Adamski P., Bielański W., Ćmiel A.M., Klich M., Lipińska A.M. (2018). On the reintroduction of the endangered thick-shelled river mussel Unio crassus: The importance of the river’s longitudinal profile. Science of the Total Environment 624:273–282. DOI: 10.1016/j.scitotenv.2017.11.346. Źródło.
[86] Geist J., Auerswald K. (2007). Physicochemical stream bed characteristics and recruitment of the freshwater pearl mussel (Margaritifera margaritifera). Freshwater Biology 52(12):2299–2316. DOI: 10.1111/j.1365-2427.2007.01812.x. Źródło.
[87] IUCN/SSC (2013). Guidelines for Reintroductions and Other Conservation Translocations. Version 1.0. Źródło.
[88] GIOŚ (b.d.). 1016 Poczwarówka jajowata — Vertigo moulinsiana. Źródło.
[89] GIOŚ (b.d.). 4056 Zatoczek łamliwy — Anisus vorticulus. Źródło.
[90] GIOŚ (b.d.). 1032 Skójka gruboskorupowa — Unio crassus. Źródło.
[91] GIOŚ (b.d.). 1026 Ślimak winniczek — Helix pomatia. Źródło.
[92] Instytut Ochrony Przyrody PAN (b.d.). Dreissena polymorpha — Racicznica zmienna; Gatunki obce w Polsce. Źródło.
[93] Instytut Ochrony Przyrody PAN; Polska Czerwona Księga Zwierząt. Bezkręgowce (2004). Margaritifera margaritifera — perłoródka rzeczna (skójka perłorodna). Źródło. Wykorzystano historyczny status z opracowania z 2004 r.
[94] Generalna Dyrekcja Ochrony Środowiska (b.d.). Sinanodonta woodiana — szczeżuja chińska. Źródło.
[95] Itämeri.fi; fiński portal wiedzy o Bałtyku (instytucje morskie i środowiskowe) (b.d.). Blue mussel communities. Źródło.
[96] Knöbel L., Nascimento-Schulze J.C., Sanders T., Zeus D., Hiebenthal C., Barboza F.R., Stuckas H., Melzner F. (2021). Salinity Driven Selection and Local Adaptation in Baltic Sea Mytilid Mussels. Frontiers in Marine Science 8:692078. DOI: 10.3389/fmars.2021.692078. Źródło.
[97] Jansson A., Norkko J., Norkko A. (2013). Effects of Reduced pH on Macoma balthica Larvae from a System with Naturally Fluctuating pH-Dynamics. PLOS ONE 8(6):e68198. DOI: 10.1371/journal.pone.0068198. Źródło.
[98] Blackburn, T. M.; Pyšek, P.; Bacher, S.; Carlton, J. T.; Duncan, R. P.; Jarošík, V.; Wilson, J. R. U.; Richardson, D. M. (2011). A proposed unified framework for biological invasions. Trends in Ecology & Evolution 26(7): 333–339. DOI: 10.1016/j.tree.2011.03.023.
[99] Johnson, L. E.; Ricciardi, A.; Carlton, J. T. (2001). Overland dispersal of aquatic invasive species: A risk assessment of transient recreational boating. Ecological Applications 11(6): 1789–1799. DOI: 10.1890/1051-0761(2001)011[1789:ODOAIS]2.0.CO;2.
[100] Caraco, N. F.; Cole, J. J.; Raymond, P. A.; Strayer, D. L.; Pace, M. L.; Findlay, S. E. G.; Fischer, D. T. (1997). Zebra mussel invasion in a large, turbid river: Phytoplankton response to increased grazing. Ecology 78(2): 588–602. DOI: 10.1890/0012-9658(1997)078[0588:ZMIIAL]2.0.CO;2.
[101] Li, J.; Ianaiev, V.; Huff, A.; Zalusky, J.; Ozersky, T.; Katsev, S. (2021). Benthic invaders control the phosphorus cycle in the world’s largest freshwater ecosystem. Proceedings of the National Academy of Sciences 118(6): e2008223118. DOI: 10.1073/pnas.2008223118.
[102] Hedtke, S. M.; Glaubrecht, M.; Hillis, D. M. (2011). Rare gene capture in predominantly androgenetic species. Proceedings of the National Academy of Sciences 108(23): 9520–9524. DOI: 10.1073/pnas.1106742108.
[103] McDowell, W. G.; McDowell, W. H.; Byers, J. E. (2017). Mass mortality of a dominant invasive species in response to an extreme climate event: Implications for ecosystem function. Limnology and Oceanography 62(1): 177–188. DOI: 10.1002/lno.10384.
[104] FAO / Coordinating Working Party on Fishery Statistics (b.d.). Aquaculture statistics. Źródło.
[105] FAO (2026). The State of World Fisheries and Aquaculture 2026 – Blue Transformation: turning vision into impact. DOI: 10.4060/cd8357en. Odczytana kopia raportu. Komunikat FAO o wydaniu. Dane tabeli 1.5, s. 27. Odczytano oryginalny raport w publicznej kopii; przeliczenia są opracowaniem własnym.
[106] Eurostat (2018). Aquaculture Statistics Handbook (2018), 2 Methodology. Źródło. Źródło definicji masy żywej mięczaków obejmującej muszlę.
[107] Coordinating Working Party on Fishery Statistics / FAO (2017). CWP Handbook Section 4: Aquaculture Statistics, CWP-IS/2017/5, draft revised 2013. Źródło. Dokument roboczy przedstawiony na spotkaniu CWP w 2017 r.; rewizja z 2013 r.
[108] NOAA Fisheries (b.d.). Eastern Oyster: Aquaculture. Źródło.
[109] Eurostat (2024). Aquaculture production by species (fish_aq): Reference Metadata. Źródło.
[110] FAO / Coordinating Working Party on Fishery Statistics (b.d.). Conversion factors. Źródło.
[111] FAO / Coordinating Working Party on Fishery Statistics (b.d.). Catch and landings. Źródło.
[112] FAO / Coordinating Working Party on Fishery Statistics (b.d.). Aquaculture production: socio-economic dimension. Źródło.
[113] NOAA Fisheries (b.d.). Understanding Marine Aquaculture. Źródło.
[114] NOAA Fisheries (b.d.). Blue Mussel: Aquaculture. Źródło.
[115] Caffrey E., Patterson J., Francis-Floyd R., Yanong R.P.E. (2024). Current Aquaculture of the Eastern Oyster Crassostrea virginica and Its Potential for Innovative Technology in Florida. DOI: 10.32473/edis-FA265-2024.
[116] NOAA Fisheries (2025). Meet The Cultured Abalone Farm, Shellfish Growers in California. Źródło.
[117] European Commission, Joint Research Centre, Scientific Technical and Economic Committee for Fisheries (STECF) (2025). The 2024 Aquaculture Economic Report (STECF 24-14). DOI: 10.2760/5049952.
[118] NOAA Fisheries (2021). How Much is a Clam Worth to a Coastal Community?. Źródło.
[119] Bayer S.R., Cubillo A.M., Rose J.M., Ferreira J.G., Dixon M., Alvarado A., Barr J., Bernatchez G., Meseck S., Poach M., Pousse E., Wikfors G.H., Bricker S. (2024). Refining the Farm Aquaculture Resource Management Model for Shellfish Nitrogen Removal at the Local Scale. Estuaries and Coasts. DOI: 10.1007/s12237-024-01354-7.
[120] Böhm M., Dewhurst-Richman N.I., Seddon M. i in. (2021). The conservation status of the world’s freshwater molluscs. Hydrobiologia 848:3231–3254. DOI: 10.1007/s10750-020-04385-w. Źródło. Wydanie tomu: 2021; publikacja online: 2020. Zakres wykorzystania: abstrakt i opis próby.
[121] Katarzyna Zając; Główny Inspektorat Ochrony Środowiska (b.d.). Sprawozdanie z monitoringu skójki gruboskorupowej Unio crassus w latach 2023–2024. Źródło. Badania 2023–2024; ogólna ocena stanu ochrony w regionie kontynentalnym, s. 24; 58 stanowisk. Daty publikacji nie ustalono.
[122] HELCOM (2023). Acidification — HELCOM indicators. Źródło.
[123] NOAA (b.d.). Ocean acidification. Źródło.
[124] U.S. Environmental Protection Agency (2013). Aquatic Life Criteria – Ammonia; dokumenty Aquatic Life Ambient Water Quality Criteria for Ammonia – Freshwater 2013. Źródło.
[125] Vaughn C.C., Atkinson C.L., Julian J.P. (2015). Drought-induced changes in flow regimes lead to long-term losses in mussel-provided ecosystem services. Ecology and Evolution 5(6):1291–1305. DOI: 10.1002/ece3.1442. Źródło.
[126] Cuttelod A., Seddon M., Neubert E.; Komisja Europejska / IUCN (2011). European Red List of Non-marine Molluscs. DOI: 10.2779/84538. Źródło. Strona wydawcy. Ocena historyczna z 2011 r.; tabela 3, s. 12. Adres prowadzi do odczytanej kopii oryginalnej publikacji.
[127] Frost W.N., Castellucci V.F., Hawkins R.D., Kandel E.R. (1985). Monosynaptic connections made by the sensory neurons of the gill- and siphon-withdrawal reflex in Aplysia participate in the storage of long-term memory for sensitization. Proceedings of the National Academy of Sciences, 82(23):8266–8269. DOI: 10.1073/pnas.82.23.8266. Źródło.
[128] Speiser D.I., Eernisse D.J., Johnsen S. (2011). A chiton uses aragonite lenses to form images. Current Biology, 21(8):665–670. DOI: 10.1016/j.cub.2011.03.033. Źródło.
[129] Páll-Gergely B., Jochum A., Vermeulen J.J., Anker K. i in. (2022). The world’s tiniest land snails from Laos and Vietnam (Gastropoda, Pulmonata, Hypselostomatidae). Contributions to Zoology, 91(1):62–78. DOI: 10.1163/18759866-bja10025. Źródło.
[130] Museum of New Zealand Te Papa Tongarewa (b.d.). Colossal squid at Te Papa. Źródło.
[131] Museum of New Zealand Te Papa Tongarewa (b.d.). How big is the colossal squid on display?. Źródło.
[132] Yu, J.; Wei, W.; Danner, E.; Ashley, R. K.; Israelachvili, J. N.; Waite, J. H. (2011). Mussel protein adhesion depends on interprotein thiol-mediated redox modulation. Nature Chemical Biology 7(9), 588–590. DOI: 10.1038/nchembio.630. Źródło.
[133] Harrington, M. J.; Masic, A.; Holten-Andersen, N.; Waite, J. H.; Fratzl, P. (2010). Iron-Clad Fibers: A Metal-Based Biological Strategy for Hard Flexible Coatings. Science 328(5975), 216–220. DOI: 10.1126/science.1181044. Źródło.
[134] Lee, H.; Dellatore, S. M.; Miller, W. M.; Messersmith, P. B. (2007). Mussel-Inspired Surface Chemistry for Multifunctional Coatings. Science 318(5849), 426–430. DOI: 10.1126/science.1147241. Źródło.
[135] Munch, E.; Launey, M. E.; Alsem, D. H.; Saiz, E.; Tomsia, A. P.; Ritchie, R. O. (2008). Tough, Bio-Inspired Hybrid Materials. Science 322(5907), 1516–1520. DOI: 10.1126/science.1164865. Źródło.
[136] Pikul, J. H.; Li, S.; Bai, H.; Hanlon, R. T.; Cohen, I.; Shepherd, R. F. (2017). Stretchable surfaces with programmable 3D texture morphing for synthetic camouflaging skins. Science 358(6360), 210–214. DOI: 10.1126/science.aan5627. Źródło.
[137] Yu, C.; Li, Y.; Zhang, X.; Huang, X.; Malyarchuk, V.; Wang, S.; Shi, Y.; Gao, L.; Su, Y.; Zhang, Y.; Xu, H.; Hanlon, R. T.; Huang, Y.; Rogers, J. A. (2014). Adaptive optoelectronic camouflage systems with designs inspired by cephalopod skins. Proceedings of the National Academy of Sciences 111(36), 12998–13003. DOI: 10.1073/pnas.1410494111. Źródło.
[138] R. Witbaard; M. I. Jenness; K. van der Borg; G. Ganssen (1994). Verification of annual growth increments in Arctica islandica L. from the North Sea by means of oxygen and carbon isotopes. Netherlands Journal of Sea Research, 33(1):91–101. DOI: 10.1016/0077-7579(94)90054-X. Źródło.
[139] D. J. Reynolds; J. D. Scourse; P. R. Halloran; A. J. Nederbragt; A. D. Wanamaker; P. G. Butler; C. A. Richardson; J. Heinemeier; J. Eiríksson; K. L. Knudsen; I. R. Hall (2016). Annually resolved North Atlantic marine climate over the last millennium. Nature Communications, 7:13502. DOI: 10.1038/ncomms13502. Źródło.
[140] T. Trofimova; S. Milano; C. Andersson; F. G. W. Bonitz; B. R. Schöne (2018). Oxygen Isotope Composition of Arctica islandica Aragonite in the Context of Shell Architectural Organization: Implications for Paleoclimate Reconstructions. Geochemistry, Geophysics, Geosystems, 19(2):453–470. DOI: 10.1002/2017GC007239. Źródło.
[141] J. Z. Zhang; S. V. Petersen (2023). Clumped and oxygen isotope sclerochronology methods tested in the bivalve Lucina pensylvanica. Chemical Geology, 620:121346. DOI: 10.1016/j.chemgeo.2023.121346. Źródło.
[142] B. R. Schöne; X. Huang; A. Jantschke; R. Mertz-Kraus; M. L. Zettler (2022). High-Resolution Reconstruction of Dissolved Oxygen Levels in the Baltic Sea With Bivalves – a Multi-Species Comparison (Arctica islandica, Astarte borealis, Astarte elliptica). Frontiers in Marine Science, 9:820731. DOI: 10.3389/fmars.2022.820731. Źródło.
[143] N. J. de Winter; C. V. Ullmann; A. M. Sørensen; N. Thibault; S. Goderis; S. J. M. Van Malderen; C. Snoeck; S. Goolaerts; F. Vanhaecke; P. Claeys (2020). Shell chemistry of the boreal Campanian bivalve Rastellum diluvianum (Linnaeus, 1767) reveals temperature seasonality, growth rates and life cycle of an extinct Cretaceous oyster. Biogeosciences, 17:2897–2922. DOI: 10.5194/bg-17-2897-2020. Źródło.
[144] WHO (2026). Schistosomiasis. Źródło.
[145] CDC (2025). Preventing Vibrio Infection. Źródło.
[146] FDA (b.d.). CPG Sec 540.250 Clams, Mussels, Oysters, Fresh, Frozen or Canned – Paralytic Shellfish Poison. Źródło.
[147] CDC (2024). Preventing Rat Lungworm. Źródło.
[148] Zając K.; Główny Inspektorat Ochrony Środowiska (2010). Skójka gruboskorupowa Unio crassus. Metodyka monitoringu, z modyfikacją z 2015 roku. Źródło.
[149] Smith D.R. (2006). Survey design for detecting rare freshwater mussels. Journal of the North American Benthological Society 25(3):701–711. DOI: 10.1899/0887-3593(2006)25[701:SDFDRF]2.0.CO;2. Źródło.
[150] Foxfoot I.R., Cushway K.C., Schwalb A.N., Smith D.R., Swannack T.M. (2025). Evaluating freshwater mussel sampling methodologies using a simulation model. Ecological Indicators, artykuł 114172. DOI: 10.1016/j.ecolind.2025.114172. Źródło.
[151] Abbott C., Coulson M., Gagné N., Lacoursière-Roussel A., Parent G.J., Bajno R., Dietrich C., May-McNally S. (2021). Guidance on the Use of Targeted Environmental DNA (eDNA) Analysis for the Management of Aquatic Invasive Species and Species at Risk. Źródło.
[152] Lopes-Lima M. i współautorzy (2024). Integrative phylogenetic, phylogeographic and morphological characterisation of the Unio crassus species complex reveals cryptic diversity with important conservation implications. Molecular Phylogenetics and Evolution 195:108046. DOI: 10.1016/j.ympev.2024.108046. Źródło.
[153] Preece E.P., Bryan M., Mapes S.M., Wademan C., Dorazio R. (2021). Monitoring for freshwater mussel presence in rivers using environmental DNA. Environmental DNA 3(3):591–604. DOI: 10.1002/edn3.156. Źródło.
[154] Gasparini L., Crookes S., Prosser R.S., Hanner R. (2020). Detection of freshwater mussels (Unionidae) using environmental DNA in riverine systems. Environmental DNA 2(3):321–329. DOI: 10.1002/edn3.71. Źródło.
[155] NIST/SEMATECH (b.d.). Confidence Limits for the Mean. e-Handbook of Statistical Methods, sekcja 1.3.5.2. Źródło.
[156] F. Melzner; P. Stange; K. Trübenbach; J. Thomsen; I. Casties; U. Panknin; S. N. Gorb; M. A. Gutowska (2011). Food Supply and Seawater pCO2 Impact Calcification and Internal Shell Dissolution in the Blue Mussel Mytilus edulis. PLOS ONE, 6(9):e24223. DOI: 10.1371/journal.pone.0024223. Źródło.
[157] P. G. Butler; A. D. Wanamaker; J. D. Scourse; C. A. Richardson; D. J. Reynolds (2013). NOAA/WDS Paleoclimatology — North Icelandic Shelf Arctica islandica Shell Measurement 1357 Year Record. NOAA National Centers for Environmental Information, zbiór noaa-ocean-14609; podzbiór sample depth i lifetimes. DOI: 10.25921/afe4-v605. Źródło.
[158] P. G. Butler; A. D. Wanamaker Jr.; J. D. Scourse; C. A. Richardson; D. J. Reynolds (2013). Variability of marine climate on the North Icelandic Shelf in a 1357-year proxy archive based on growth increments in the bivalve Arctica islandica. Palaeogeography, Palaeoclimatology, Palaeoecology, 373:141–151. DOI: 10.1016/j.palaeo.2012.01.016. Źródło.
[159] M. Wahl; S. Schneider Covachã; V. Saderne; C. Hiebenthal; J. D. Müller; C. Pansch; Y. Sawall (2018). Macroalgae may mitigate ocean acidification effects on mussel calcification by increasing pH and its fluctuations. Limnology and Oceanography, 63(1):3–21. DOI: 10.1002/lno.10608. Źródło.