Wprowadzenie
Rozdział 1Zakres kompendium i sposób korzystania
Owady łączy wspólny plan budowy, ale ich sposoby życia są bardzo zróżnicowane. Zrozumienie tej grupy wymaga powiązania anatomii i rozwoju z pokarmem, środowiskiem oraz relacjami z innymi organizmami. Dopiero na tym tle można właściwie oceniać znaczenie zapylania, szkód w uprawach, chorób przenoszonych przez wektory czy zmian obserwowanych w monitoringu przyrody.
Kompendium prowadzi od podstaw biologii do analizy badań i działań ochronnych. Część opisowa wyjaśnia mechanizmy, tabele porównują cechy i wyniki, a schematy pokazują zależności, których nie da się wygodnie przedstawić samą listą nazw. Rozdziały o rolnictwie, żywności i zdrowiu publicznym przedstawiają owady w konkretnych zastosowaniach. Studia przypadków uczą odczytywania wyników w granicach rzeczywiście zbadanej próby.
Charakter opracowania
Jest to przegląd tematyczny, a nie systematyczna metaanaliza całej literatury entomologicznej. Źródła dobrano do zakresu omawianych zagadnień. Pierwszeństwo mają publikacje naukowe, dokumentacja zbiorów danych oraz materiały właściwych instytucji. Bibliografia umożliwia przejście do oryginalnych prac. Data sprawdzenia źródeł to 13 listopada 2026 roku; rok publikacji pozostaje odrębny od okresu, z którego pochodzą pomiary.
Przy statystykach trzeba czytać razem wartość, jednostkę, obszar i okres. Rozdział o różnorodności porównuje liczby nazwanych gatunków i szacunki całkowitego bogactwa z publikacji z lat 2015, 2018 i 2026. Są to różne rodzaje informacji. [1, 2, 3]
Dwie ścieżki lektury
Przy pierwszym kontakcie z tematem warto zacząć od systematyki, budowy i przeobrażeń, a następnie przejść do ekologii. Czytelnik pracujący z danymi może rozpocząć od rozdziałów o metodach pomiaru, trendach i monitoringu. Słownik porządkuje terminy używane w obu częściach. Końcowe pytania wyjaśniają częste nieporozumienia.
Schematy budowy i procesów są uproszczone i oznaczone jako takie. Nie zastępują klucza do oznaczania gatunków. Wykresy danych mają podane źródła; wielkości odnoszących się do różnych jednostek lub prób nie należy traktować jako jednego wspólnego pomiaru.
Biologia i różnorodność
Rozdział 2Granice pojęcia owady i systematyka
Owady wśród stawonogów
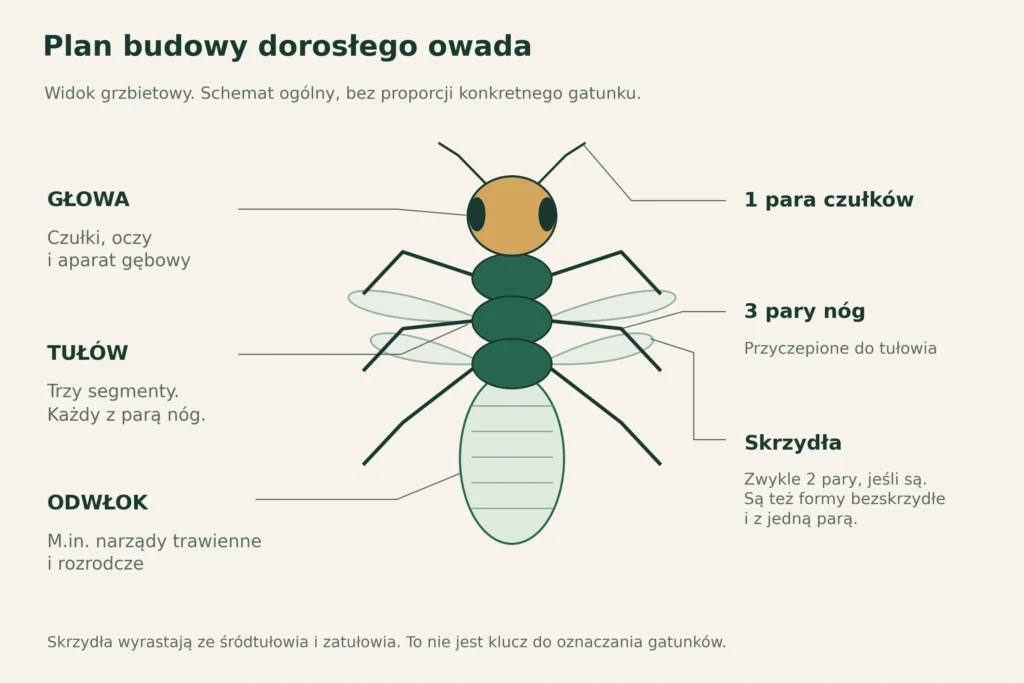
Owady, czyli Insecta, są grupą stawonogów. Ich ciało jest podzielone na głowę, tułów i odwłok, a podstawowy plan tułowia obejmuje trzy pary członowanych nóg. Głowa dorosłego owada ma jedną parę czułków. Skrzydła, jeśli występują, należą do tułowia. [4]
Plan budowy może ulegać modyfikacjom. Larwa muchy może być beznoga, natomiast dorosły motyl może mieć przednią parę nóg zredukowaną. [5, 6]
Sześcionogi, Hexapoda, mają zakres szerszy niż owady w ścisłym znaczeniu. Oprócz Insecta zalicza się do nich skoczogonki, pierwogonki i widłogonki. W starszych opracowaniach grupy te bywają ujmowane wśród owadów bezskrzydłych; nowsze podręczniki często przedstawiają je osobno. W tym kompendium słowo „owady” oznacza Insecta w węższym ujęciu. Skoczogonki można omawiać obok nich ze względu na podobne rozmiary i wspólne środowiska, lecz nie należy automatycznie włączać ich do statystyk dotyczących owadów. [7]
Samo policzenie nóg nie rozstrzyga oznaczenia. Dorosłe kleszcze i ich nimfy mają cztery pary nóg, ale larwy kleszczy mają trzy pary. Kleszcze pozostają pajęczakami na wszystkich tych etapach. [8]
Dodatkowe „nóżki” na odwłoku gąsienicy są natomiast posuwkami, odmiennymi od członowanych nóg tułowiowych. Do rozpoznania trzeba więc połączyć liczbę i położenie odnóży, obecność czułków, organizację ciała oraz stadium rozwoju. [9]
| Obserwowana grupa | Nogi i czułki | Przydatna wskazówka | Ograniczenie |
|---|---|---|---|
| Dorosły owad o typowej budowie | Trzy pary nóg tułowiowych i jedna para czułków | Głowa, tułów i odwłok; skrzydła tylko na tułowiu | Odnóża lub skrzydła mogą być zredukowane [4, 10] |
| Gąsienica motyla | Nogi tułowiowe oraz miękkie posuwki odwłokowe | Członowane nogi skupione za głową | Nie każda larwa owada jest gąsienicą [9, 6] |
| Kleszcz | Trzy pary nóg u larwy, cztery u nimfy i dorosłego | Brak czułków | Sześć nóg larwy nie oznacza przynależności do owadów [8] |
| Skoczogonek | Trzy pary nóg i jedna para czułków | U wielu gatunków występuje widełkowaty aparat skokowy | Należy do sześcionogów, lecz poza przyjętym tu zakresem Insecta [7, 11] |
Nazwa gatunku a jego pokrewieństwo
Nazwa naukowa składa się z nazwy rodzaju i epitetu gatunkowego, na przykład Apis mellifera. Pierwszy człon zapisuje się wielką literą, drugi małą. [12]
Rodzaj jest szerszą jednostką niż gatunek; rodzaje grupuje się w rodziny, a rodziny w rzędy. Nazwy te porządkują komunikację, lecz nie są miarą „wyższości” organizmów. Dwa gatunki z odległych grup mogą wyglądać podobnie wskutek przystosowania do podobnego środowiska, a bliscy krewni mogą różnić się barwą, rozmiarem i trybem życia. Systematyka łączy porównania budowy z innymi danymi, w tym sekwencjami DNA. [13]
Dobrym przykładem zmiany klasyfikacji są termity. Badania molekularne potwierdziły ich zagnieżdżenie w obrębie karaczanów, dlatego ujmuje się je w rzędzie Blattodea. Nazwa Isoptera nadal występuje w literaturze i może oznaczać wyodrębnioną grupę termitów, ale przedstawianie jej jako zupełnie niezależnego odpowiednika karaczanów zaciera wynik badań nad pokrewieństwem. Termity nie są również mrówkami: społeczny tryb życia nie przesądza o bliskim pokrewieństwie z Formicidae. [14]
Podobnie Psocodea obejmuje zarówno wolno żyjące gryzki, jak i pasożytnicze wszy, wcześniej często rozdzielane na osobne rzędy. Przy porównywaniu dawnych i nowych zestawień warto zatem sprawdzić, czy liczono te same grupy. Zmiana liczby rzędów w wykazie może wynikać z przyjętej klasyfikacji, a nie z odkrycia albo wymarcia całych linii ewolucyjnych. Nazwa „owady bezskrzydłe” również wymaga ostrożności: może opisywać wygląd, niekoniecznie jedną grupę krewniaczą. [15, 7]
Do jakiego poziomu można oznaczyć okaz
Rząd bywa zbyt szeroką kategorią do określenia roli owada. Wśród muchówek występują zapylacze, drapieżniki, pasożyty i konsumenci martwej materii; sama nazwa rzędu nie określa zatem sposobu żerowania. [5]
Błonkówka może być samotną pszczołą, rośliniarką lub parazytoidem. Ocena jej biologii wymaga znajomości węższej grupy, a niekiedy gatunku, płci i stadium. Niepewne oznaczenie należy pozostawić na udokumentowanym poziomie. [16]
Rozdział 3Budowa ciała i oskórek
Trzy odcinki ciała o różnych zadaniach
Głowa skupia narządy pobierania pokarmu i wiele narządów zmysłów. W odwłoku znajdują się między innymi znaczne części przewodu pokarmowego i układu rozrodczego. [4]
Tułów jest głównym aparatem ruchu: tworzą go przedtułów, śródtułów i zatułów, każdy z parą nóg. Skrzydła typowego uskrzydlonego owada wyrastają ze śródtułowia i zatułowia, nie z przedtułowia ani z odwłoka. [10, 17]
U wielu błonkówek segment położony pierwotnie na początku odwłoka jest funkcjonalnie związany z tułowiem, a charakterystyczne przewężenie znajduje się dalej. Widoczne przewężenie nie musi więc wyznaczać morfologicznej granicy tych odcinków. [18]
U rośliniarek połączenie jest szerokie, choć także należą one do Hymenoptera. Praktyczny opis powinien wskazywać rozpoznane struktury, zamiast opierać się wyłącznie na sylwetce przypominającej osę. [16]
Oskórek jako materiał biologiczny
Oskórek, czyli kutykula, nie jest jednorodną skorupą z samej chityny. Zawiera między innymi chitynowe mikrowłókna i białka, a jego właściwości zależą od warstwy i miejsca na ciele. Twarde płytki, czyli skleryty, chronią narządy i przenoszą siły. Elastyczne błony między nimi umożliwiają ruch. Powierzchniowe lipidy ograniczają utratę wody. Powłoka ciała jest zarazem miejscem osadzenia licznych struktur czuciowych i podłożem dla przyczepów mięśni. [19]
Barwa może wynikać z obecności pigmentów albo z oddziaływania światła z drobną strukturą powierzchni. Metaliczny połysk nie musi więc oznaczać metalicznego barwnika. [19]
Tuż po linieniu owad może być jaśniejszy i bardziej miękki niż osobnik o utwardzonej kutykuli. Porównując fotografie, trzeba uwzględnić również czas od linienia. [20]
Nogi i skrzydła jako modyfikacje wspólnego planu
W nodze owada wyróżnia się biodro, krętarz, udo, goleń i stopę, zakończoną strukturami umożliwiającymi kontakt z podłożem. [9]
Rozbudowane tylne uda wielu prostoskrzydłych wiążą się ze skakaniem, spłaszczone i owłosione nogi części owadów wodnych wspomagają pływanie, a przednie nogi turkucia są przystosowane do kopania. Są to odmiany homologicznych elementów. Posuwki gąsienic pełnią funkcję podporową, ale nie należą do tego szeregu członowanych nóg. [9, 21]
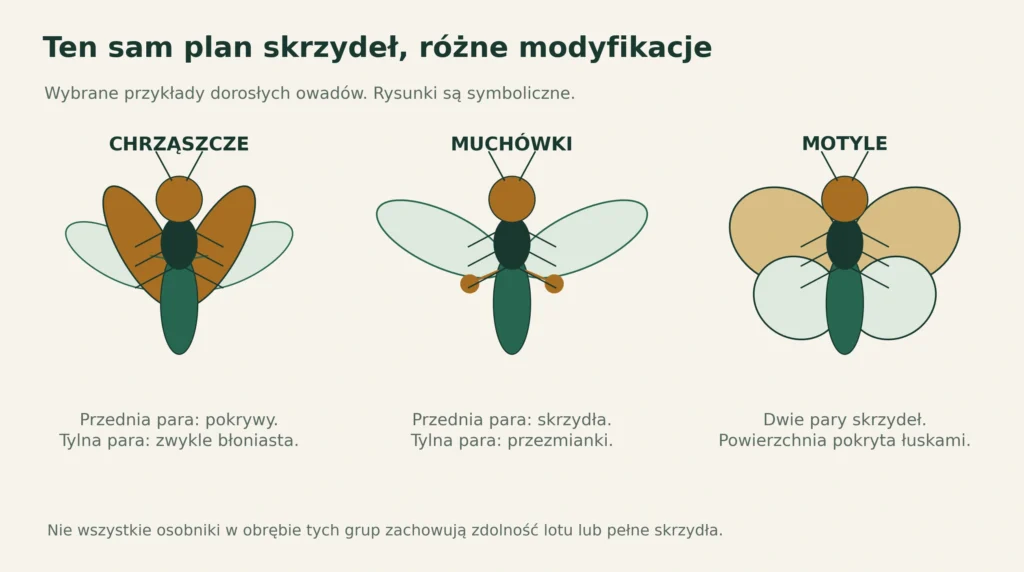
Przednie skrzydła chrząszczy tworzą pokrywy, natomiast tylna para u muchówek jest przekształcona w przezmianki, uczestniczące w stabilizacji lotu. U motyli powierzchnię skrzydeł pokrywają łuski, a u chruścików przeważają włoski. Dwie pary skrzydeł mogą być ze sobą sprzęgnięte. Widoczna z boku „jedna powierzchnia” nie zawsze oznacza zatem jedną parę. Z kolei brak skrzydeł nie wystarcza do uznania owada za młodego: istnieją dorosłe formy i całe linie ewolucyjne bezskrzydłe. [17, 22]
Aparat gębowy ujawnia sposób pobierania pokarmu
Żuwaczki działają inaczej niż ssawka, a sposób wykorzystania podobnych elementów zmienia się w różnych grupach. Aparat gryzący pozwala rozdrabniać pokarm stały; aparaty kłująco-ssące pobierają płyny po przebiciu tkanek. Budowa wskazuje możliwości, nie pełny jadłospis: owad z żuwaczkami może być roślinożercą, drapieżnikiem lub konsumentem martwej materii. [24]
Długa ssawka wielu motyli służy do pobierania płynnego pokarmu, lecz nie wszystkie motyle odżywiają się jako dorosłe. [6]
| Typ funkcjonalny | Zasada działania | Przykład | Czego nie należy zakładać |
|---|---|---|---|
| Gryzący | Odcinanie, chwytanie i rozdrabnianie | Konik polny, wiele chrząszczy | Żuwaczki nie oznaczają wyłącznie roślinożerności [24, 23] |
| Kłująco-ssący | Przebicie osłony i pobieranie płynu | Liczne pluskwiaki | Nie wszystkie takie owady pobierają krew [25] |
| Ssący z długą ssawką | Pobieranie płynu z dostępnego źródła | Wiele dorosłych motyli | Taka ssawka nie służy do żucia pokarmu [24] |
| Liżący lub liżąco-ssący | Pobieranie płynów z powierzchni | Wiele muchówek | Cały rząd nie ma jednego sposobu odżywiania [5] |
Rozdział 4Fizjologia i gospodarka wodna
Oddychanie bez płuc
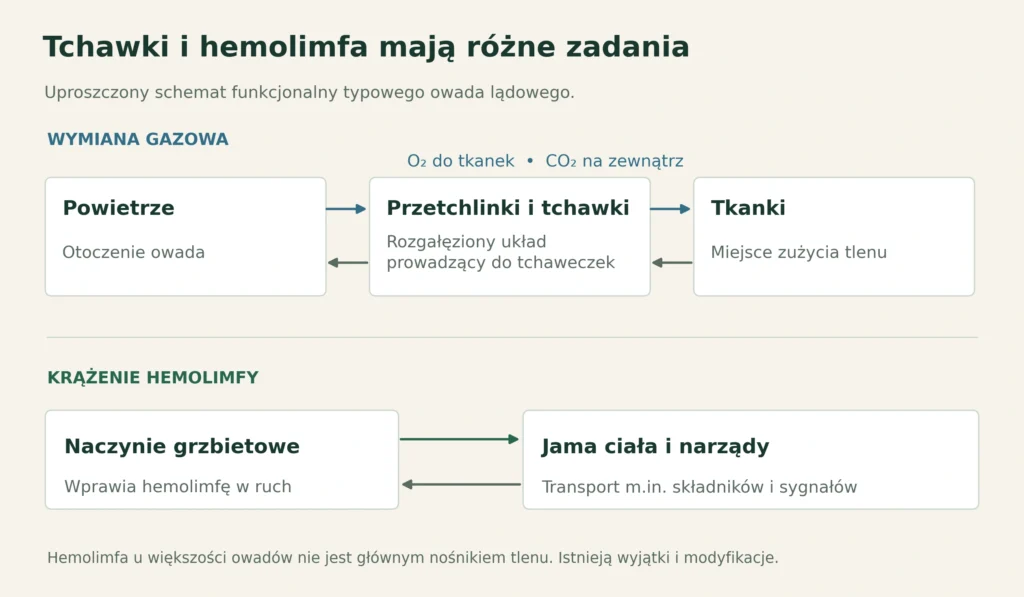
U większości owadów tlen dociera do tkanek przez układ tchawkowy. Powietrze przechodzi przez przetchlinki do rozgałęziających się tchawek i coraz drobniejszych tchaweczek. Różnica stężeń umożliwia dyfuzję gazów, a ruchy ciała i zmiany jego objętości mogą wspomagać wentylację. Sposób zaopatrywania mięśni w tlen zależy od rozmiaru, aktywności i budowy gatunku. [26]
Przetchlinki tworzą jednocześnie drogę utraty pary wodnej. Ich otwieranie i zamykanie uczestniczy w regulacji wymiany gazowej i bilansu wody. Owad musi pogodzić dopływ tlenu z ograniczaniem wysychania, zależnie od aktywności i środowiska. [26]
Utratę wody ogranicza także powierzchnia oskórka. Jej właściwości są istotne obok warunków mikrośrodowiska; sam rozmiar owada nie opisuje całej jego odporności na wysychanie. [19]
Owady wodne rozwiązują ten problem na kilka sposobów. Mogą pobierać tlen rozpuszczony w wodzie przez cienkie powierzchnie ciała lub skrzelotchawki, oddychać powietrzem atmosferycznym za pomocą syfonu albo przenosić zapas powietrza. Niektóre utrzymują przy ciele cienką warstwę gazu, zwaną plastronem. Takie rozwiązania nie są równoważne: larwa korzystająca z tlenu rozpuszczonego w wodzie ma inne ograniczenia niż owad regularnie wypływający na powierzchnię. [27]
U larw ważek różnoskrzydłych wymiana gazowa zachodzi w strukturach związanych z końcowym odcinkiem przewodu pokarmowego. Ruchy pompujące wodę mogą jednocześnie umożliwiać gwałtowny odrzut. U larw wielu ważek równoskrzydłych widoczne są natomiast zewnętrzne listkowate struktury na końcu odwłoka. Porównanie to pokazuje, że blisko spokrewnione owady mogą osiągać podobną funkcję za pomocą odmiennie położonych narządów. [28]
Hemolimfa nie pełni wszystkich funkcji ludzkiej krwi
Układ krążenia jest otwarty. Hemolimfa obmywa narządy w jamie ciała i przenosi między innymi substancje odżywcze, produkty przemiany materii i sygnały hormonalne. W jej krążeniu uczestniczy grzbietowe naczynie, którego część odwłokowa pełni funkcję serca. Ciśnienie hemolimfy pomaga również w rozprężaniu ciała i skrzydeł po linieniu. Ponieważ tlen zwykle transportuje układ tchawkowy, porównywanie hemolimfy z krwią kręgowców wymaga uwzględnienia tej zasadniczej różnicy. [29]
Nie należy jednak zamieniać słowa „zwykle” na „zawsze”. Larwy niektórych ochotkowatych mają hemoglobinę, co pomaga im funkcjonować przy ograniczonej dostępności tlenu. Jest to szczególne przystosowanie określonych muchówek, a nie dowód, że wszystkie owady mają czerwone krwinki lub oddychają jak ssaki. Fizjologia owadów jest różnorodna również wewnątrz jednego rzędu; podręcznikowy model najlepiej traktować jako punkt odniesienia do opisu wyjątków. [27]
Trawienie, wydalanie i oszczędzanie wody
Przewód pokarmowy ma odcinki o odmiennych zadaniach. Jelito przednie może uczestniczyć w pobieraniu, przechowywaniu i mechanicznym przygotowaniu pokarmu, środkowe jest głównym miejscem trawienia i wchłaniania, a tylne odgrywa istotną rolę w odzyskiwaniu wody i jonów. Cewki Malpighiego, obecne u wielu owadów, łączą funkcję wydalniczą z regulacją składu płynów ustrojowych. Wydalanie nie jest więc jedynie usuwaniem niepotrzebnych substancji: współtworzy warunki, w których komórki mogą działać. [30]
Pokarm bogaty w cukier nie musi zawierać wystarczającej ilości aminokwasów, a duża ilość zjedzonego materiału nie oznacza dużej ilości przyswojonych składników. Roślinożerca pobierający sok roślinny może przetwarzać znaczne ilości płynu i wydalać jego nadmiar wraz z cukrami. Z punktu widzenia biologii liczą się proporcje składników, przyswajalność i koszty ich pozyskania. Dlatego dieta larwy i dorosłego owada wymaga osobnego opisu. [31]
| Układ lub struktura | Główne zadanie | Istotne rozróżnienie |
|---|---|---|
| Tchawki i tchaweczki | Dostarczanie tlenu i usuwanie dwutlenku węgla | Zwykle działają bez udziału hemolimfy w transporcie tlenu [26, 29] |
| Układ krążenia | Transport substancji i udział w utrzymaniu ciśnienia | Układ otwarty, odmienny od krążenia krwi u człowieka [29] |
| Przewód pokarmowy | Pobieranie, trawienie i wchłanianie | Poszczególne odcinki mają różne zadania [30] |
| Cewki Malpighiego i jelito tylne | Wydalanie oraz regulacja wody i jonów | Wydalanie jest powiązane z gospodarką wodną [30] |
| Układ nerwowy | Integracja informacji i koordynacja reakcji | Obejmuje mózg i ośrodki w zwojach segmentalnych [32] |
Temperatura i obrona przed zakażeniem
Tempo rozwoju wielu owadów zależy od temperatury, lecz zależność obowiązuje tylko w określonym zakresie. Przy chłodzie rozwój może zwalniać, a powyżej tolerowanego zakresu upał staje się obciążeniem. Suma stopniodni jest narzędziem prognozowania dla konkretnego gatunku i stadium, z określonym progiem rozwoju. Nie stanowi uniwersalnego „zegara owada”. Model ustalony dla jednej populacji nie powinien być bez sprawdzenia przenoszony na dowolne warunki, szczególnie przy temperaturach skrajnych. [33]
Owady dysponują również obroną przed drobnoustrojami. Bariera ciała współdziała z odpowiedzią komórkową i cząsteczkami przeciwdrobnoustrojowymi. Klasyczna praca Lemaitre’a i współautorów wykazała rolę szlaku Toll w odpowiedzi przeciwgrzybiczej dorosłych Drosophila. Wynik dotyczył określonego mechanizmu i organizmu modelowego; nie oznacza, że układ odpornościowy wszystkich owadów jest identyczny. Pokazuje natomiast, dlaczego małe zwierzęta mogą dostarczać informacji o podstawowych zasadach obrony organizmu. [34, 35]
Rozdział 5Zmysły, komunikacja i lot
Informacja jest zbierana całym ciałem
Narządy zmysłów owadów nie są ograniczone do głowy. Włoski i inne sensilla odbierają dotyk, ugięcie oskórka, ruchy odnóży i drgania. Dzięki informacji o położeniu własnych części ciała owad może korygować chód i chwyt. U wielu gatunków ważna jest wibracja przekazywana przez liść, łodygę lub podłoże, nawet jeśli człowiek nie słyszy żadnego dźwięku. Brak widocznego „ucha” nie dowodzi zatem braku odbioru bodźców mechanicznych. [36]
Receptory chemiczne uczestniczą zarówno w węchu, jak i w smaku. Czułki mogą wykrywać lotne substancje, a receptory kontaktowe występują między innymi na aparacie gębowym i stopach. Owad sprawdzający powierzchnię nogami może więc odbierać również informację chemiczną. Rozpoznanie zapachu jest procesem nerwowym, a nie prostym podążaniem za jedną cząsteczką. Znaczenie bodźca zależy od jego składu, intensywności, innych sygnałów i biologicznego kontekstu. [37]
Oczy złożone składają się z wielu jednostek optycznych. Ich organizacja różni się między gatunkami i wiąże się z warunkami aktywności. Obecność licznych fasetek nie oznacza, że owad ogląda wiele niezależnych, pełnych kopii tej samej sceny. Układ nerwowy wykorzystuje rozkład sygnałów, między innymi do wykrywania ruchu i orientacji. Dodatkowe przyoczka i oczy larwalne mają odmienne funkcje oraz budowę; nie powinno się przedstawiać wszystkich narządów światłoczułych jako miniaturowych odpowiedników ludzkiego oka. [38]
Widzenie barw wymaga ostrożnych porównań
Zakres odbieranych długości fali nie jest taki sam u wszystkich owadów. Peitsch i współautorzy badali czułość pojedynczych fotoreceptorów u 43 gatunków błonkówek, wykazując szerokie rozpowszechnienie układów trójbarwnych oraz różnice między taksonami. Receptor wrażliwy na ultrafiolet nie oznacza automatycznie, że owad „widzi więcej kolorów” w każdym sensie. Widzenie barw zależy od porównywania sygnałów receptorowych, a fotografie w fałszywych kolorach są wizualizacją dla człowieka. [39]
| Kanał | Co jest odbierane | Przykładowa funkcja | Ograniczenie interpretacji |
|---|---|---|---|
| Mechaniczny | Dotyk i odkształcenie | Kontrola ruchu i kontakt z podłożem | Widoczny włosek nie zawsze ma tę samą funkcję [36] |
| Wibracyjny i akustyczny | Drgania podłoża lub powietrza | Rozpoznawanie partnera i sygnałów otoczenia | Nie wszystkie sygnały są słyszalne dla człowieka [36] |
| Chemiczny | Substancje lotne lub kontaktowe | Poszukiwanie pokarmu i komunikacja | Nie każdy zapach jest feromonem [37, 40] |
| Wzrokowy | Rozkład światła, ruch i kontrasty | Nawigacja, lot i rozpoznawanie obiektów | Wynik dla jednego gatunku nie opisuje wszystkich owadów [38, 39] |
Lot jest ruchem aktywnie sterowanym
Skrzydło owada porusza się i obraca, a przepływ powietrza wokół niego zmienia się podczas każdego cyklu. Badania Dickinsona, Lehmanna i Sane’a na modelu dynamicznym wykazały znaczenie mechanizmów związanych z ruchem obrotowym skrzydła i oddziaływaniem ze śladem aerodynamicznym. Dlatego wyjaśnianie lotu wyłącznie przez porównanie nieruchomego skrzydła owada ze skrzydłem samolotu pomija istotną część zjawiska. Model nie jest jednak żywym zwierzęciem: pozwala izolować wybrane mechanizmy, a nie odtwarza całego zachowania. [41]
Mięśnie mogą działać bezpośrednio na elementy nasady skrzydła albo zmieniać kształt tułowia i w ten sposób wprawiać skrzydła w ruch. U części owadów mięśnie asynchroniczne umożliwiają wiele skurczów przy mniejszej liczbie impulsów nerwowych niż liczba uderzeń skrzydeł. Nie znosi to sterowania: drobne mięśnie i informacja czuciowa regulują ruch. Podział na mięśnie bezpośrednie i pośrednie opisuje mechanikę, a podział na synchroniczne i asynchroniczne sposób aktywacji; tych dwóch rozróżnień nie należy utożsamiać. [42]
Komunikacja nie jest dowolnym oddziaływaniem
Feromon jest sygnałem chemicznym działającym między osobnikami tego samego gatunku. Może uczestniczyć w przyciąganiu partnera, znakowaniu szlaku albo alarmowaniu. Zapach rośliny wykorzystywany przez owada jako wskazówka nie staje się z tego powodu feromonem. Sygnały bywają wieloskładnikowe, a odpowiedź zależy od stanu osobnika. Dla badacza znaczenie ma nie samo wykrycie substancji, lecz wykazanie jej roli przez obserwację lub doświadczenie z właściwą kontrolą. [40]
Rozdział 6Rozwój, przeobrażenia i strategie życiowe
Linienie jest procesem, a wylinka jego pozostałością
Wzrost wymaga okresowej wymiany oskórka. Nowa kutykula powstaje pod starą, część materiału jest odzyskiwana, a zewnętrzna osłona zostaje zrzucona. Samo wyjście ze starej osłony nazywa się ekdyzą; cały proces obejmuje również wcześniejsze przygotowanie i późniejsze rozprężenie oraz utwardzanie nowej powłoki. Stadium między kolejnymi linieniami to instar. Znaleziona wylinka może świadczyć o obecności owada, ale nie jest martwym osobnikiem i nie powinna być tak zapisywana w monitoringu. [20]
Trzy podstawowe wzorce rozwoju
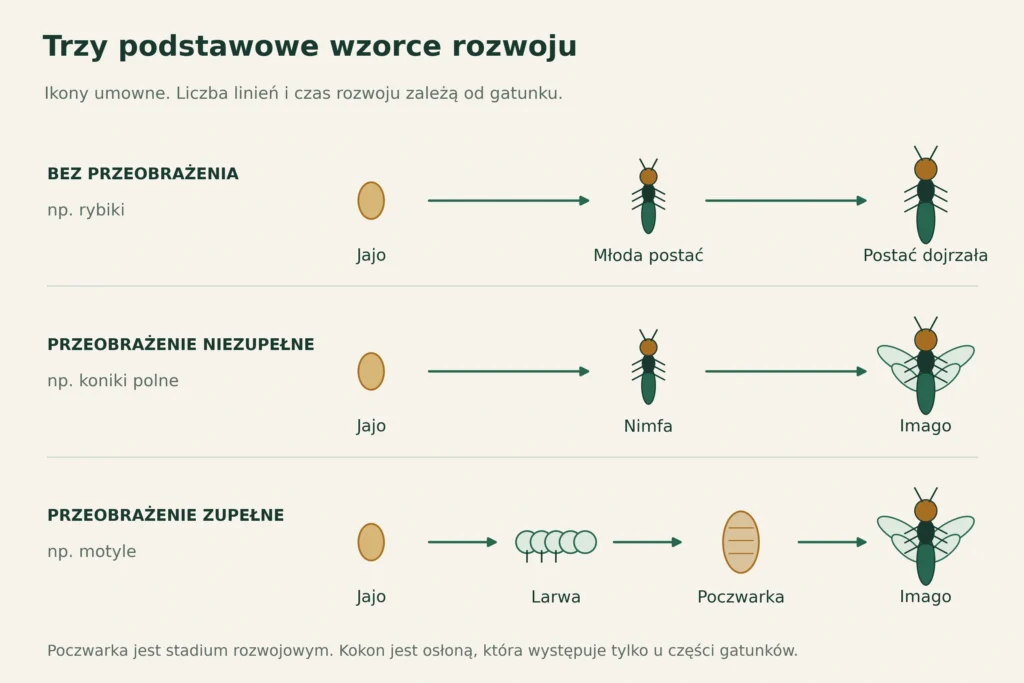
U owadów rozwijających się bez przeobrażenia młode postacie przypominają dorosłe i stopniowo osiągają większe rozmiary oraz dojrzałość rozrodczą. Dobrym przykładem są rybiki. U nich linienie może zachodzić także po uzyskaniu dojrzałości. Zdanie „dorosły owad nigdy nie linieje” jest zatem nadmiernym uogólnieniem. Zasadę odnoszącą się do większości uskrzydlonych grup trzeba oddzielić od wyjątków i od organizmów pierwotnie bezskrzydłych. [43]
Przeobrażenie niezupełne nie obejmuje poczwarki. W kolejnych stadiach młodocianych rozwijają się cechy imago, w tym zawiązki skrzydeł. U konika polnego młode i dorosłe występują w podobnym środowisku, natomiast wodna postać młodociana ważki różni się trybem życia od latającego imago. [21, 28]
Przeobrażenie zupełne obejmuje jajo, larwę, poczwarkę i postać dorosłą. Larwa może zajmować inną niszę niż imago, czego przykładem są gąsienice i dorosłe motyle. Poczwarka jest stadium intensywnej przebudowy, a nie pustą osłoną ani „uśpioną” larwą. Kokon jest zewnętrzną osłoną wytwarzaną przez niektóre owady; poczwarka może się w nim znajdować, lecz może też występować bez niego. Kokon nie stanowi dodatkowego stadium rozwoju między larwą a poczwarką. [20]
| Wzorzec | Uproszczona kolejność | Poczwarka | Przykład |
|---|---|---|---|
| Bez przeobrażenia | Jajo, młode postacie, postać dojrzała | Nie występuje | Rybiki [43] |
| Przeobrażenie niezupełne | Jajo, kolejne stadia młodociane, imago | Nie występuje | Prostoskrzydłe, ważki [21, 28] |
| Przeobrażenie zupełne | Jajo, kolejne stadia larwalne, poczwarka, imago | Występuje | Chrząszcze [23] |
Jętki wyróżniają się uskrzydlonym stadium subimago, po którym następuje jeszcze linienie prowadzące do imago. Dorosłe jętki zwykle nie pobierają pokarmu, a ich aktywna faza rozrodcza bywa bardzo krótka. Nie oznacza to, że cały owad „żyje jeden dzień”: wcześniejszy rozwój wodny trwa znacznie dłużej, zależnie od gatunku i warunków. Przy podawaniu długości życia zawsze trzeba określić, czy chodzi o imago, czy o pełny cykl od jaja. [44]
Hormony łączą wzrost z przebudową
Ekdysteroidy uczestniczą w sterowaniu linieniem, a hormon juwenilny pomaga regulować charakter kolejnych przemian. Nie działają jak dwa niezależne przełączniki mechaniczne: znaczenie ma stężenie, czas działania, stadium i zdolność tkanek do odpowiedzi. Zmiana programu rozwoju wiąże się z regulacją ekspresji genów. W praktyce różnica między kolejnym stadium larwalnym a wejściem w metamorfozę wynika ze współdziałania sygnałów hormonalnych i programu rozwojowego. [45]
Badania Konopovej i współautorów na kowalu bezskrzydłym Pyrrhocoris apterus wykazały udział genów Met i Kr-h1 w przekazywaniu sygnału hamującego przedwczesną metamorfozę. Doświadczenia polegały między innymi na wyciszaniu genów i sprawdzaniu skutków rozwojowych. Tego rodzaju wynik pozwala przejść od opisu „hormon wpływa na przeobrażenie” do testowania mechanizmu. Nie uzasadnia jednak założenia, że wszystkie szczegóły hormonalne są identyczne u pluskwiaka, chrząszcza i motyla. [46]
Diapauza i rozwój sezonowy
Diapauza jest regulowanym stanem fizjologicznym związanym z sezonowym zatrzymaniem określonych procesów rozwojowych lub rozrodczych. Może obejmować przygotowanie do trudnego okresu, jego przetrwanie i późniejsze wznowienie aktywności. Nie jest tym samym co natychmiastowe spowolnienie wywołane chwilowym zimnem. Sygnały środowiskowe, takie jak długość dnia, mogą zapowiadać przyszłe warunki. Stadium, w którym zachodzi diapauza, oraz warunki jej zakończenia zależą od gatunku i populacji. [47]
Rozwój sezonowy trzeba zatem rozpatrywać jako połączenie dwóch skal czasu. Bieżąca temperatura wpływa na szybkość procesów, natomiast program sezonowy może ograniczać samą możliwość ich rozpoczęcia. Ocieplenie nie gwarantuje prostego skrócenia całego cyklu. Dla porównania dwóch obserwacji potrzebna jest informacja o stadium, historii temperatur i warunkach sezonowych, a nie tylko o temperaturze odczytanej w chwili znalezienia owada. Jest to praktyczny wniosek z rozróżnienia czasu fizjologicznego i diapauzy. [33, 47]
Czy podczas przeobrażenia znika cała wcześniejsza organizacja
Przebudowa nie oznacza, że larwa w całości rozpływa się w bezkształtną masę. Część struktur ulega przekształceniu, inne są usuwane lub powstają z odpowiednich zawiązków. Badanie Blackistona, Silvy Casey i Weiss wykazało, że dorosłe Manduca sexta mogły zachować wyuczoną w późnym stadium larwalnym awersję do zapachu. Autorzy zastosowali kontrole ograniczające wyjaśnienie przez pozostałości chemiczne. Wynik nie dowodzi pamiętania wszystkich doświadczeń ani identycznej sytuacji u każdego owada; pokazuje jednak, że pełne przeobrażenie nie musi usuwać całego wpływu wcześniejszego uczenia. [48]
Rozdział 7Ewolucja i zapis kopalny
Datowanie wymaga rozróżnienia rodzaju dowodu
Skamieniałość potwierdza występowanie organizmu o rozpoznanych cechach w określonym czasie i miejscu. Nie wyznacza automatycznie daty powstania całej grupy: linia ewolucyjna może być starsza niż jej najstarszy zachowany przedstawiciel. [49]
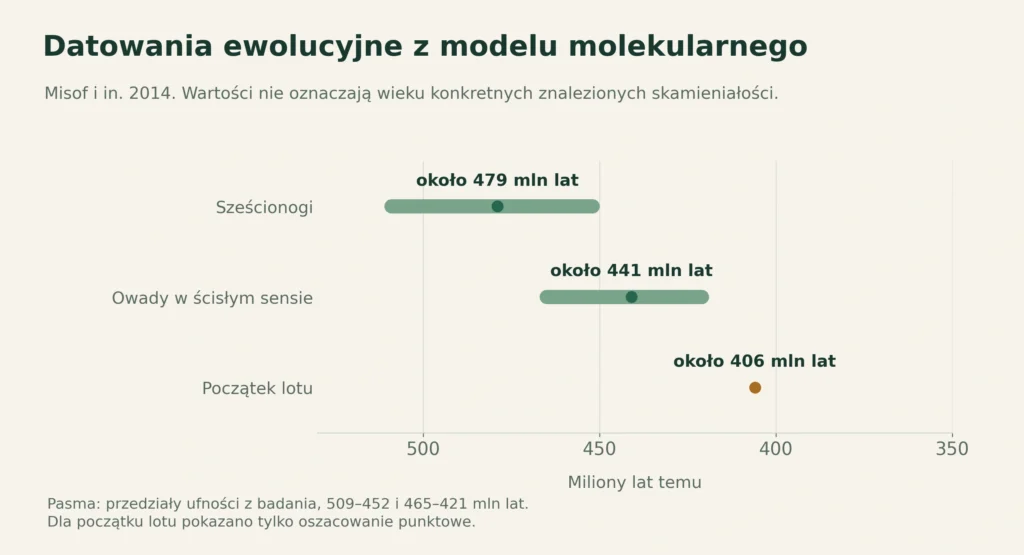
Zegar molekularny szacuje czas rozdzielenia linii na podstawie danych genetycznych, modelu i kalibracji. Datowanie molekularne i zapis kopalny odpowiadają więc na powiązane, ale nie identyczne pytania. [50]
Poniższe wyniki pochodzą z analizy Misofa i współautorów z 2014 roku. Datowania Hexapoda i owadów w ścisłym znaczeniu nie są zamienne: dotyczą odmiennych węzłów drzewa pokrewieństwa. [50]
| Zdarzenie lub zakres | Wynik Misofa i współautorów z 2014 roku | Znaczenie |
|---|---|---|
| Początek Hexapoda | Około 479 mln lat temu | Szacunek modelowy dla sześcionogów [50] |
| Radiacja owadów o zewnętrznych aparatach gębowych | Około 441 mln lat temu | Węższy zakres niż wszystkie Hexapoda [50] |
| Początek lotu owadów | Około 406 mln lat temu | Datowanie modelowe, nie wiek znalezionego skrzydła [50] |
Nie każda słynna skamieniałość ma bezsporną interpretację
Przynależność fragmentarycznych skamieniałości może być przedmiotem sporu. Haug i Haug ponownie zbadali Rhyniognatha hirsti, wcześniej przedstawianą jako bardzo wczesny owad, i wskazali możliwość przynależności do wijów. Problem dotyczy rozpoznania struktur w konkretnym materiale, a nie dowolności całej paleontologii. Rzetelny opis zachowuje rozróżnienie między obserwowaną strukturą, jej interpretacją anatomiczną i wnioskiem o pokrewieństwie. [49]
Również pochodzenie skrzydeł jest pytaniem o przekształcenia struktur przodków. Bruce i Patel porównali skutki wyłączania genów związanych z budową nóg u skorupiaka Parhyale hawaiensis z wynikami badań owadów. Uzyskane dane wspierają scenariusz, w którym elementy dawnych segmentów nogi zostały włączone do ściany ciała, a związany z nimi wyrostek uczestniczył w powstaniu skrzydła. To wsparcie dla określonej rekonstrukcji ewolucyjnej, a nie bezpośrednia obserwacja historycznego pojawienia się lotu. [51]
Rozmiar dawnych owadów nie ma jednego wyjaśnienia
Niektóre późnopaleozoiczne owady osiągały rozpiętość skrzydeł rzędu 70 cm. Clapham i Karr przeanalizowali ponad 10 500 długości kopalnych skrzydeł i wykazali, że relacja maksymalnych rozmiarów z zawartością tlenu zmieniała się w dziejach. W późniejszych okresach znaczenia nabrały także zależności biologiczne, w tym pojawienie się sprawnych latających kręgowców. Zestawienie nie dowodzi, że każdy duży kopalny owad był „powiększony przez tlen”. Badanie porównywało długoterminowe wzorce, przy niepełnym zapisie kopalnym. [52]
Współczesnych ważek, jętek czy rybików nie należy traktować jak niezmienionych fotografii dawnych przodków. Dzisiejszy gatunek ma własną historię ewolucyjną, nawet jeśli zachowuje część cech występujących u starszych linii. Podobnie brak skrzydeł u rybika i brak skrzydeł u wszy nie mają tego samego znaczenia historycznego. Opis ewolucji powinien rozdzielać zachowanie cechy przodków, wtórną utratę struktury i niezależne powstanie podobnego przystosowania. [43, 15, 51]
Rozdział 8Przegląd najważniejszych rzędów
Porównanie grup jest początkiem oznaczania
Poniższe zestawienia porównują cechy postaci dorosłych i podstawowe wzorce rozwoju. Podczas oznaczania larw korzystaj z kluczy przeznaczonych dla ich stadium.
| Rząd | Przydatne cechy dorosłych | Rozwój młodociany | Przykładowe role |
|---|---|---|---|
| Chrząszcze Coleoptera | Przednia para skrzydeł przekształcona w pokrywy | Różnorodne larwy i poczwarka | Roślinożerność, drapieżnictwo, wykorzystanie martwej materii [23] |
| Motyle Lepidoptera | Skrzydła zwykle pokryte łuskami | Gąsienica i poczwarka | Roślinożerność larw, zapylanie przez część dorosłych [6] |
| Muchówki Diptera | Jedna para skrzydeł lotnych i tylne przezmianki | Larwy bez członowanych nóg tułowiowych | Zapylanie, rozkład, drapieżnictwo, pasożytnictwo [5] |
| Błonkówki Hymenoptera | U uskrzydlonych form dwie pary skrzydeł sprzęgnięte haczykami | Larwy o bardzo zróżnicowanym wyglądzie | Zapylanie, roślinożerność, drapieżnictwo i parazytoidyzm [16] |
| Sieciarki Neuroptera | Dwie pary skrzydeł z licznymi żyłkami | U wielu grup drapieżne larwy z aparatem chwytająco-ssącym | Regulowanie liczebności innych bezkręgowców [53] |
| Chruściki Trichoptera | Owłosione skrzydła, często składane dachówkowato | W większości wodne larwy, często związane z jedwabnymi konstrukcjami | Rozdrabnianie materii, filtracja lub drapieżnictwo [22] |
Chrząszcze nie są jednym typem ekologicznym. Biegacz polujący na bezkręgowce, ryjkowiec rozwijający się w roślinie i chrząszcz korzystający z martwego drewna łączy wspólny plan budowy, ale ich potrzeby różnią się zasadniczo. Także larwy mają odmienne sylwetki: od ruchliwych, wydłużonych drapieżników po masywne, wygięte pędraki. U części rodzin pokrywy są skrócone. Oznaczenie „chrząszcz” nie pozwala zatem samo w sobie ocenić znaczenia obecności owada na roślinie. [23]
W języku potocznym „motyl” często oznacza dziennego, barwnego owada, a „ćma” nocnego i szarego. Są to uproszczenia. W obrębie Lepidoptera występują gatunki o różnej porze aktywności, a część ciem lata w dzień. Barwa nie stanowi wystarczającej podstawy podziału. Przy rozpoznawaniu istotne bywają między innymi czułki, użyłkowanie i inne cechy budowy; nie każdy motyl ma również dobrze rozwiniętą ssawkę. [6]
Muchówki obejmują zarówno komary, jak i bzygi, ochotkowate, łowikowate oraz wiele mniej znanych rodzin. Podobieństwo bzyga do osy nie zmienia jego przynależności: przy odpowiednim ujęciu można sprawdzić liczbę skrzydeł i obecność przezmianek. „Larwa muchy” również nie oznacza jednego typu pokarmu ani jednej lokalizacji. Larwy muchówek występują między innymi w wodzie, wilgotnej glebie, tkankach organizmów i rozkładającej się materii. [5]
| Rząd | Przydatna cecha | Związek młodych i dorosłych ze środowiskiem | Uwaga |
|---|---|---|---|
| Ważki Odonata | Duże oczy, dwie pary silnie użyłkowanych skrzydeł | Młode zwykle wodne, dorosłe latające | Drapieżnictwo występuje w obu fazach [28] |
| Jętki Ephemeroptera | Delikatne skrzydła i długie wyrostki na końcu odwłoka | Rozwój wodny i krótka faza uskrzydlona | Występuje uskrzydlone subimago [44] |
| Widelnice Plecoptera | Długie czułki i zwykle dwa wyrostki odwłokowe | Młode zwykle wodne | Wiele gatunków jest związanych z chłodnymi ciekami [54] |
| Prostoskrzydłe Orthoptera | Tylne nogi często skoczne | Zwykle lądowe postacie młodociane i dorosłe | Dźwięk bywa ważny w oznaczaniu [21] |
| Pluskwiaki Hemiptera | Aparat gębowy kłująco-ssący | W grupie występują formy lądowe i wodne | Półpokrywy dotyczą części pluskwiaków, nie całego rzędu [25, 55] |
| Karaczany z termitami Blattodea | Zróżnicowana budowa, zwykle aparat gryzący | Zwykle lądowe | Termity są częścią tego rzędu [14] |
| Gryzki i wszy Psocodea | Często niewielkie rozmiary; skrzydła obecne albo zredukowane | Formy wolno żyjące i pasożytnicze | Dawne nazwy rzędów mogą mieć inny zakres [15] |
| Rybiki Zygentoma | Bezskrzydłe ciało i trzy wyrostki na końcu odwłoka | Młode podobne do dorosłych | Rozwój bez przeobrażenia [43] |
Widelnice, jętki i chruściki często występują obok siebie w opracowaniach o jakości wód, ale nie mają tego samego rozwoju ani jednakowej tolerancji środowiskowej. Chruścik przechodzi stadium poczwarki, a jętka i widelnica nie. U wielu chruścików larwy wykorzystują przenośne domki, lecz inne budują sieci lub żyją bez takich osłon. Sama obecność domku może być wskazówką, ale jego brak nie wyklucza chruścika. [22, 54, 44]
Sieciarki dobrze ilustrują różnicę między wyglądem imago i larwy. Delikatny, uskrzydlony złotook nie przypomina swojej wydłużonej, drapieżnej larwy. Jej aparat gębowy służy do chwytania i pobierania zawartości ciała ofiary. U niektórych sieciarek jedwab powstaje z udziałem cewek Malpighiego, co przypomina, że funkcja przędzenia nie musi być związana z identycznym narządem we wszystkich grupach. Nie należy jednak przenosić diety larwy automatycznie na dorosłego złotooka. [53]
Rozdział 9Zachowanie, rozród i społeczeństwa
Zachowanie łączy predyspozycje z doświadczeniem
Reakcje owadów nie są wyłącznie sztywnymi odruchami. Wrodzone mechanizmy działają wraz z informacją z otoczenia, stanem fizjologicznym i doświadczeniem. Uczenie można badać przez powtarzalną zmianę zachowania po określonym bodźcu, z grupami kontrolnymi wykluczającymi prostsze wyjaśnienia. Nie każde powtórzenie czynności dowodzi uczenia, tak jak sprawne wykonanie jednego zadania nie dowodzi ludzkiego sposobu rozumowania. Precyzja dotyczy zarówno opisu wyników, jak i języka używanego do ich wyjaśnienia. [56, 48]
W doświadczeniu Loukoli i współautorów trzmiele uczyły się przemieszczać małą kulkę do wyznaczonego miejsca, aby otrzymać nagrodę. Obserwacja demonstratora ułatwiała rozwiązanie zadania, a część osobników wybierała krótszy wariant działania zamiast dokładnego kopiowania dłuższej drogi. Badanie pokazało elastyczność zachowania w określonych warunkach laboratoryjnych. Nie było sprawdzianem ogólnej „inteligencji wszystkich owadów” ani pomiarem ich zdolności do dowolnego zadania. [56]
Przekazywanie informacji można mierzyć
Taniec pszczoły miodnej jest przykładem komunikacji związanej z położeniem zasobu. Riley i współautorzy wykorzystali radar harmoniczny do śledzenia lotów robotnic zwerbowanych tańcem, testując, jak przekazana informacja przekłada się na trasę. Takie podejście rozdziela interpretację ruchu tancerki od rzeczywistego zachowania odbiorcy. Wniosek dotyczy komunikacji u pszczoły miodnej, nie uniwersalnego „języka pszczół” obejmującego wszystkie gatunki i wszystkie sytuacje. [57]
Sygnały mogą także określać warunki spotkania partnerów. U wielu prostoskrzydłych dźwięk powstaje przez pocieranie określonych części ciała, czyli strydulację. Rytm i struktura sygnału bywają pomocne w rozpoznawaniu podobnych gatunków. [21]
Aby porównywać nagrania, należy znać warunki, szczególnie temperaturę, oraz odróżniać sygnał zalotny od innych dźwięków. Badania nad Gryllus firmus wykazały wpływ temperatury zarówno na tempo sygnału samca, jak i preferencje samic. Zapis akustyczny jest więc obserwacją biologiczną wymagającą kontekstu. [58]
Zapłodnienie i składanie jaj są różnymi zdarzeniami
U wielu gatunków samica przechowuje plemniki w zbiorniczku nasiennym, spermatece, i wykorzystuje je podczas późniejszego zapładniania jaj. Kopulacja, zapłodnienie i złożenie jaja nie muszą więc następować jednocześnie. [59]
Pokładełko służy do umieszczania jaj w odpowiednim miejscu rozwoju. Długi wyrostek na końcu odwłoka samicy nie jest zatem automatycznie żądłem. [16]
Rozmnażanie może również obejmować dzieworództwo, czyli rozwój z niezapłodnionych komórek jajowych. Mszyca grochowa Acyrthosiphon pisum jest przykładem organizmu, u którego występują fazy rozmnażania płciowego i bezpłciowego, a przebieg cyklu różni się między populacjami i warunkami. Nie wszystkie mszyce w każdej porze roku realizują identyczny program. Zależność rozrodu od sezonu pomaga zrozumieć szybkie przyrosty populacji, ale sama w sobie nie pozwala przewidzieć liczebności bez danych o przeżywalności i zasobach. [55]
Zgromadzenie osobników nie musi być społeczeństwem
Eusocjalność opisuje połączenie współpracy w opiece nad potomstwem, podziału funkcji rozrodczych oraz nakładania się pokoleń. Skupisko owadów korzystających z tego samego pokarmu nie musi spełniać tych kryteriów. Także wspólne miejsce gniazdowania nie wystarcza do uznania, że występują robotnice i królowa. Organizacja grupy powinna wynikać z obserwowanego podziału czynności i reprodukcji, a nie z samej liczby owadów widocznych w jednym miejscu. [60]
| Sytuacja | Co łączy osobniki | Czy występuje podział rozrodu | Co trzeba ustalić |
|---|---|---|---|
| Przypadkowe skupienie | Wspólny zasób lub miejsce | Nie wynika z samego skupienia | Czy osobniki współdziałają [60] |
| Opieka rodzicielska | Rodzic i potomstwo | Sama opieka nie oznacza kast | Zakres i czas opieki [60] |
| Wspólne gniazdowanie | Wspólna przestrzeń | Nie musi występować | Czy każda samica rozmnaża się niezależnie [60] |
| Eusocjalność | Współpraca i powiązane pokolenia | Występuje podział funkcji rozrodczych | Organizacja konkretnej kolonii i gatunku [60] |
Wśród błonkówek występują mrówki, społeczne pszczoły i osy, ale także liczne samotne gatunki. Samotna pszczoła może samodzielnie budować gniazdo i zaopatrywać je dla potomstwa, nie tworząc rodziny o organizacji pszczoły miodnej. Zwiększenie liczby obserwowanych osobników przy otworach gniazdowych nie dowodzi istnienia wspólnej królowej. Terminologia społeczna jest opisem biologii, a nie etykietą obejmującą wszystkie owady kojarzone z gniazdami. [16]
Eusocjalność termitów powstała w innej linii niż społeczeństwa mrówek. Podobne funkcje, takie jak opieka nad potomstwem czy obrona kolonii, nie muszą oznaczać identycznego mechanizmu rozwoju kast. Porównanie tych grup jest wartościowe właśnie dlatego, że podobne problemy organizacji życia zbiorowego zostały rozwiązane w odmiennym kontekście ewolucyjnym. W naukowym opisie trzeba oddzielić funkcję pełnioną w kolonii od pokrewieństwa struktur i procesów, które ją umożliwiają. [14]
Gatunek jest pełnym cyklem życia
Motyl odwiedzający kwiaty może jako gąsienica zależeć od zupełnie innego pokarmu. Zasoby wykorzystywane przez dorosłego nie opisują wszystkich potrzeb gatunku. [6]
Ważka latająca nad łąką pozostaje powiązana z wodnym etapem rozwoju. Obserwacja imago nie pozwala pominąć wymagań postaci młodocianej. [28]
Z tych różnic wynika praktyczna zasada oceny siedliska: trzeba pytać o możliwość zamknięcia pełnego cyklu, uwzględniając miejsca składania jaj, żerowania i zimowania, a nie tylko chwilową obecność dorosłego owada.
Rozdział 10Różnorodność gatunkowa i granice szacunków
Gatunki nazwane i gatunki istniejące
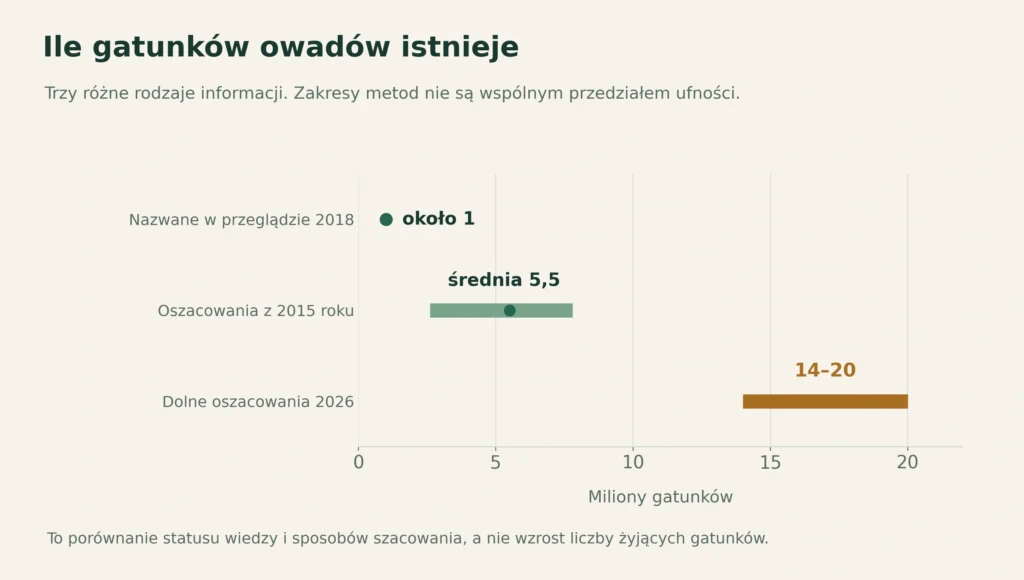
Liczba gatunków rozpoznanych przez naukę jest wynikiem wieloletniej pracy nad materiałem, opisami i klasyfikacją. Całkowita liczba gatunków obejmuje także te, których jeszcze nie odkryto lub nie odróżniono od podobnych form. W syntezie opublikowanej w 2018 roku Nigel Stork przyjmował około miliona nazwanych gatunków owadów oraz około 5,5 mln gatunków łącznie. Pierwsza liczba opisuje stan rozpoznania przyjęty w tamtej publikacji; druga jest oszacowaniem różnorodności, a nie wynikiem kompletnego spisu. [1]
Oszacowania zależą między innymi od tego, jakie grupy i regiony zbadano oraz jak brakujące elementy przeliczono na skalę świata. W pracy Storka i współautorów z 2015 roku średnia przytoczonych oszacowań dla owadów wynosiła 5,5 mln, a zakres wyników różnych podejść 2,6–7,8 mln. Tego zakresu nie należy podpisywać jako statystycznego przedziału ufności wokół jednego pomiaru. [2]
Model z 2026 roku
Colwell i współautorzy wykorzystali ponad 1,6 mln osobników z kodami DNA, reprezentujących 53 945 jednostek gatunkowych w próbie z kostarykańskiego Área de Conservación Guanacaste. Niedoszacowanie różnorodności oceniali z użyciem szczegółowo badanych błonkówek pasożytniczych, a następnie skalowali wynik regionalny za pomocą grup odniesienia. Otrzymali globalne dolne oszacowania od 14 do 20 mln gatunków, zależne od przyjętego skalowania. Jest to wynik modelu, oparty na konkretnych założeniach dotyczących próbkowania i przenoszenia relacji z regionu na świat. Nie oznacza odkrycia i formalnego opisania tylu gatunków. [3]
| Wartość | Co przedstawia | Publikacja | Jak ją interpretować |
|---|---|---|---|
| Około 1 mln | Liczba nazwanych gatunków przyjęta w przeglądzie | Stork 2018 | Historyczny stan rozpoznania, nie dzisiejszy licznik katalogowy [1] |
| 5,5 mln; zakres 2,6–7,8 mln | Średnia i rozrzut wyników różnych metod szacowania | Stork i in. 2015 | Zakres metod, nie przedział ufności [2] |
| 14–20 mln | Dolne oszacowania globalne po skalowaniu bogactwa regionalnego | Colwell i in. 2026 | Wynik modelowy zależny od grupy odniesienia [3] |
Zestawienie pokazuje rozwój wiedzy i metod. Nie przedstawia wzrostu rzeczywistej liczby gatunków między latami publikacji. Z tego powodu wykres tych wartości jako zwykłego szeregu czasowego „przyrostu owadów” byłby mylący.
Co wnosi kodowanie DNA
Kodowanie DNA, nazywane barcodingiem, porównuje wybrany fragment sekwencji z materiałem odniesienia. Klasyczna propozycja Heberta i współautorów wskazała mitochondrialny gen COI jako podstawę systemu identyfikacji zwierząt. Taka informacja pozwala łączyć okazy, stadia rozwojowe i materiał, którego rozpoznanie morfologiczne jest trudne. Wynik ma jednak znaczenie w kontekście jakości próbek oraz poprawności przypisania nazw w bazie odniesienia. [61]
Rozpoznanie podobieństwa sekwencji i wyznaczenie granic gatunku są powiązanymi, lecz odrębnymi zadaniami. Przegląd Dupuis i współautorów obejmujący 101 badań blisko spokrewnionych zwierząt i grzybów wskazał korzyści z dołączania kolejnych loci. Autorzy poparli podejście integrujące wiele źródeł dowodów. W praktyce taksonomicznej sekwencje warto zestawiać z morfologią, rozmieszczeniem i biologią organizmów. Sam próg różnicy w pojedynczym markerze nie stanowi uniwersalnej definicji gatunku. [62]
Ekologia i gospodarka
Rozdział 11Siedliska i sezonowość
Siedlisko jest układem zasobów
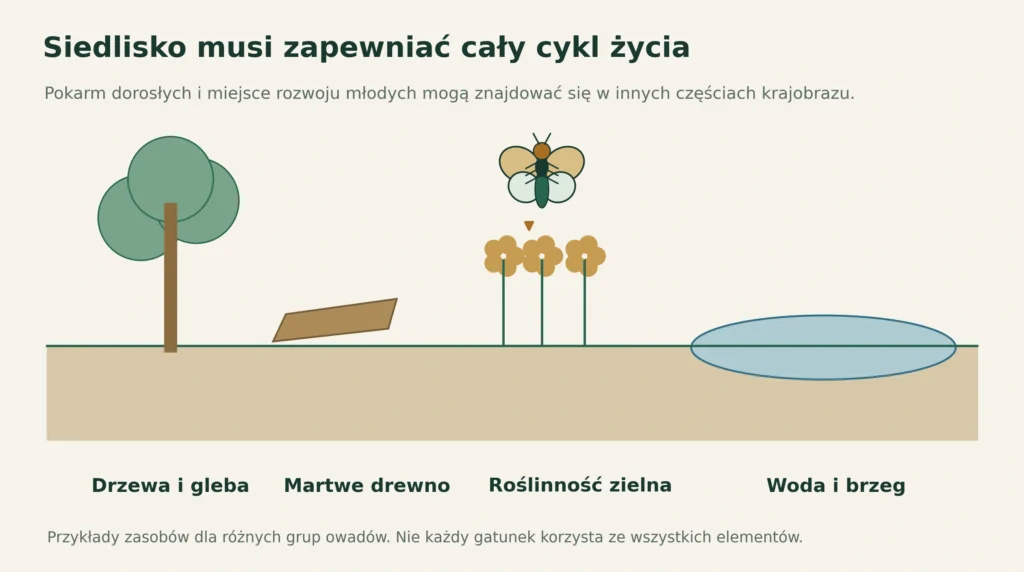
Określenia „owad leśny”, „łąkowy” lub „wodny” są przydatnym początkiem opisu, ale nie wyjaśniają jeszcze potrzeb gatunku. Istotne są konkretne zasoby: pokarm, miejsce złożenia jaj, odpowiednia wilgotność, struktura podłoża i schronienie w trudnym okresie. Larwa oraz postać dorosła mogą korzystać z innych części krajobrazu. Ochrona miejsca odwiedzanego przez dorosłe osobniki daje więc pełniejszy efekt wtedy, gdy zachowane są także warunki rozwoju potomstwa. Materiały Xerces Society dotyczące gniazdowania i zimowania pokazują znaczenie gleby, roślinności oraz naturalnych struktur, które zapewniają kilka takich funkcji jednocześnie. [63]
Warto przy tym rozróżniać obecność, wykorzystywanie zasobu i rozród. Motyl przelatujący nad parkingiem został tam zaobserwowany, lecz obserwacja nie dowodzi, że parking umożliwia mu zamknięcie cyklu życia. Z kolei miejsce bez widocznych dorosłych owadów może zawierać stadia spoczynkowe. To podstawowa różnica między chwilowym obrazem aktywności a oceną funkcjonowania siedliska. W praktyce potrzebne są obserwacje powtarzane w czasie oraz rozpoznanie biologii gatunku; sama fotografia krajobrazu nie dostarcza tych informacji. [64]
Woda i ląd pozostają połączone
Larwy licznych owadów rozwijają się w wodzie, korzystając z roślin, kamieni, drewna i osadów dennych. Zespoły makrobezkręgowców bentosowych są wykorzystywane do oceny stanu wód, ponieważ poszczególne taksony różnią się tolerancją na zaburzenia. Ich skład odzwierciedla oddziaływanie środowiska w dłuższym okresie niż pojedynczy pomiar chemiczny. Ocena obejmuje jednak także bezkręgowce inne niż owady, a interpretacja wymaga uwzględnienia naturalnego typu zbiornika lub cieku. Sama obecność jednej larwy ważki nie stanowi wystarczającego testu jakości wody. [65]
Wylot dorosłych owadów przenosi biomasę wyprodukowaną w wodzie do środowiska lądowego. W przeciwnym kierunku działają owady lądowe spadające do strumienia i zjadane przez ryby. Nakano i Murakami wykazali znaczenie takich wzajemnych dopływów pokarmu na granicy lasu i potoku w Japonii. Ważny okazał się również termin: zasób pochodzący z sąsiedniego środowiska może mieć szczególną wartość wtedy, gdy własny zasób pokarmowy jest ograniczony. Granica między wodą a lądem nie rozdziela zatem dwóch niezależnych sieci pokarmowych. [66]
Gleba i martwe drewno
W glebie owady należą do zespołu obejmującego również bakterie, grzyby, nicienie, roztocze, skoczogonki i dżdżownice. Wśród zwierząt występują rozdrabniacze materii organicznej, roślinożercy, organizmy żerujące na mikroorganizmach oraz drapieżniki. Ich działalność łączy przemiany resztek organicznych ze strukturą gleby i dostępnością składników pokarmowych. Przypisywanie całej aktywności fauny glebowej owadom pomijałoby udział pozostałych grup. [67]
Podobnie zróżnicowane jest martwe drewno. Pień nasłoneczniony i leżący w wilgotnym cieniu tworzą inne warunki, podobnie jak cienka gałąź i gruby kłodowy fragment. W doświadczeniu Seibolda i współautorów na 190 powierzchniach leśnych znaczenie dla chrząszczy związanych z martwym drewnem miały mikroklimat i różnorodność substratów. Gatunki saproksyliczne korzystają z drewna, związanego z nim rozkładu lub innych organizmów; nie wszystkie odżywiają się samym drewnem. Zwiększanie jego zasobów warto zatem rozpatrywać również pod względem jakości i przestrzennego zróżnicowania. [68]
| Środowisko | Przykładowy zasób | Pytanie o funkcjonowanie siedliska |
|---|---|---|
| Ciek lub zbiornik | Podłoże larwalne, roślinność, warunki tlenowe | Czy utrzymuje się odpowiedni zespół organizmów wodnych? [65] |
| Gleba i ściółka | Resztki organiczne, pory glebowe, wilgoć | Jakie grupy pokarmowe korzystają z tego podłoża? [67] |
| Martwe drewno | Drewno różnych gatunków, rozmiarów i ekspozycji | Czy zachowano różnorodność mikrośrodowisk? [68] |
| Roślinność zielna | Pokarm, łodygi, miejsca ukrycia | Czy dostępne są zasoby potrzebne także poza okresem kwitnienia? [63] |
| Strefa brzegowa | Kontakt między wodą a lądem | Czy organizmy mogą przemieszczać się między częściami cyklu życia? [66] |
Rok owada nie jest prostym kalendarzem
Sezonowość obejmuje rozwój, rozród, przemieszczanie się i przetrwanie okresów niekorzystnych. Reakcje na temperaturę, długość dnia, wilgotność i pokarm mogą współdziałać. Diapauza jest elementem regulacji cyklu życiowego, a nie synonimem każdej chwilowej bezczynności. Gatunki różnią się stadium zimującym i liczbą pokoleń, a wzorce bywają odmienne także między populacjami. Dlatego określenie jednego „terminu aktywności owadów” dla całej grupy byłoby mało użyteczne. [64]
Przy obserwacji siedliska należy zatem zestawiać informacje przestrzenne i czasowe. Kwietna powierzchnia może dostarczać obfitego zasobu przez krótki okres, lecz nie zapewniać go wcześniej i później. Roślina może być atrakcyjna dla dorosłego owada, a jednocześnie nie odpowiadać potrzebom jego larw. Ocenia się ciągłość wymaganych zasobów, a nie tylko chwilową obfitość kwiatów. [69]
Rozdział 12Owady i rośliny
Żerowanie jest relacją między organizmami
Owady mogą zjadać tkanki roślin, pobierać płyny, rozwijać się w ich wnętrzu, korzystać z pyłku lub nektaru. Znaczenie tej relacji zależy od miejsca żerowania, czasu i reakcji rośliny. Utrata części blaszki liściowej, zniszczenie pąka oraz uszkodzenie nasienia dotyczą różnych składników wzrostu i rozrodu. Ocena gospodarcza wymaga dodatkowo ustalenia, czy uszkodzenie przekłada się na wielkość albo jakość zbieranego plonu. Widoczny ślad żerowania nie jest jeszcze pomiarem straty ekonomicznej. [70]
Roślinożerca napotyka bariery mechaniczne i chemiczne, a dostępność pokarmu obejmuje zarówno ilość, jak i jego skład. Historia ewolucyjna relacji może prowadzić do specjalizacji. Nie oznacza ona jednak prostego podziału na rośliny całkowicie odporne i owady zawsze zdolne pokonać obronę. Wynik zależy od konkretnego zestawienia gatunków, stadium rozwoju i warunków. Dobrym sposobem poznawania tych mechanizmów są eksperymenty wyjaśniające, co dzieje się z określoną substancją po zjedzeniu rośliny. [71]
Jak specjalista obchodzi obronę chemiczną
Wittstock i współautorzy zbadali gąsienice bielinka rzepnika Pieris rapae żerujące na roślinach zawierających glukozynolany. Uszkodzenie tkanek uruchamia w roślinie system, który może prowadzić do powstawania obronnych produktów rozkładu. Białko obecne w przewodzie pokarmowym gąsienicy kieruje przemianę w stronę innych produktów, ograniczając działanie tej bariery. To przykład wyspecjalizowanego mechanizmu biochemicznego, a nie ogólnej niewrażliwości owada na związki roślinne. [71]
Posiadanie przez roślinę związku obronnego nie musi zatem oznaczać braku roślinożerców. Przystosowanie do konkretnej substancji nie dowodzi jednak, że ten sam owad poradzi sobie z dowolną inną rośliną. Zakres pokarmowy wymaga rozpoznania w badaniach. [71]
Roślina może oddziaływać przez trzeciego partnera
Po uszkodzeniu przez roślinożercę zmienia się także mieszanina związków lotnych uwalnianych przez roślinę. W klasycznym doświadczeniu Turlingsa, Tumlinsona i Lewisa pasożytnicze błonkówki wykorzystywały zapach kukurydzy uszkadzanej przez gąsienice do odnajdywania gospodarzy. Relacja obejmowała więc roślinę, jej roślinożercę i jego naturalnego wroga. Takie działanie określa się jako pośrednią obronę rośliny; opis dotyczy procesu chemicznego i reakcji organizmów, bez przypisywania roślinie zamiaru lub świadomego „wzywania pomocy”. [72]
Inną drogą jest dostarczanie pożywienia obrońcom. Heil i współautorzy badali nektar pozakwiatowy u Macaranga tanarius. Wydzielanie nektaru może stanowić indukowaną odpowiedź obronną, powiązaną z sygnalizacją jasmonianową i aktywnością odwiedzających roślinę stawonogów. Nektar poza kwiatem nie służy w tym przypadku bezpośrednio przenoszeniu pyłku. To użyteczny przykład pokazujący, że podobny zasób, cukrowa wydzielina, może uczestniczyć w różnych relacjach ekologicznych. [73]
Partnerzy mikrobiologiczni zmieniają możliwości owada
Odżywiania owada nie zawsze da się wyjaśnić wyłącznie jego własnymi enzymami. Mszyce żyją w ścisłej symbiozie z bakteriami Buchnera, uczestniczącymi w uzupełnianiu braków pokarmowych diety. Russell i współautorzy wykazali, że wytwarzanie części aminokwasów wynika ze współpracy szlaków metabolicznych gospodarza i bakterii: związki pośrednie oraz reakcje po obu stronach składają się na wspólną funkcję. Symbioza nie jest zatem tylko obecnością bakterii w ciele, lecz może oznaczać fizjologiczną zależność partnerów. [74]
Nie należy automatycznie przenosić tego modelu na wszystkie owady. Znaczenie mikroorganizmów trzeba badać dla konkretnego gospodarza, diety i warunków. Samo wykrycie bakteryjnego DNA nie dowodzi, że dany mikrob dostarcza składników pokarmowych: może być partnerem stałym, przejściowym pasażerem albo organizmem związanym ze zjedzonym pokarmem. Do wykazania funkcji potrzebne są dane o lokalizacji, aktywności i skutkach oddziaływania. Badanie metabolizmu mszyc pokazuje wartość łączenia przewidywań genomowych z doświadczeniem. [74]
| Relacja | Co zachodzi | Co należy rozróżnić |
|---|---|---|
| Roślinożerność | Pobieranie tkanek lub płynów | Uszkodzenie biologiczne i strata gospodarcza [70] |
| Przełamywanie obrony | Zmiana działania roślinnych związków obronnych | Mechanizm specyficzny i ogólna tolerancja [71] |
| Obrona pośrednia | Zapach rośliny pomaga wrogowi roślinożercy znaleźć gospodarza | Wykazany efekt chemiczny i metafora intencjonalnego działania [72] |
| Nektar pozakwiatowy | Zasób dla odwiedzających roślinę stawonogów | Relację obronną i zapylanie kwiatu [73] |
| Symbioza pokarmowa | Bakterie i owad współtworzą funkcję metaboliczną | Obecność mikroba i potwierdzoną korzyść funkcjonalną [74] |
Rozdział 13Zapylanie
Od wizyty na kwiecie do powstania nasion
U roślin okrytonasiennych zapylanie polega na przeniesieniu pyłku na znamię słupka. Jest etapem procesu rozmnażania rośliny, a jego skuteczność zależy między innymi od zgodności pyłku i sposobu jego przeniesienia. Owady mogą wykonywać tę funkcję podczas poszukiwania pokarmu lub innych zasobów. Budowa kwiatu i zachowanie odwiedzającego wpływają na kontakt z częściami rozrodczymi. [69]
Wizyta, osadzenie pyłku i zawiązanie owocu to odrębne zmienne. Liczenie odwiedzin opisuje aktywność zwierząt, ale nie daje automatycznie miary końcowego plonu. Ocena efektu wymaga także uwzględnienia jakości pyłku, liczby zapłodnionych zalążków i dalszego rozwoju rośliny. Badania zależności upraw od zapylania posługują się dlatego różnymi miarami: zawiązywaniem owoców, produkcją nasion, masą plonu lub jego jakością. [75, 76]
Szczególnym mechanizmem jest uwalnianie pyłku za pomocą wibracji. Niektóre kwiaty, w tym pomidora, udostępniają pyłek przez niewielkie otwory pylników. Odpowiednio zachowujące się pszczoły, między innymi trzmiele, wprawiają pylniki w drgania. Przykład ten pokazuje, że nie każda duża liczba odwiedzin jest funkcjonalnie równoważna: znaczenie ma również zachowanie pasujące do budowy kwiatu. [69]
Udział owadów i innych zwierząt
Zapylacze to nie tylko pszczoły. W syntezie Rader i współautorów, obejmującej 39 badań terenowych z pięciu kontynentów, muchówki, chrząszcze, motyle i inne owady poza pszczołami wnosiły istotny wkład w zapylanie upraw. Niższą skuteczność pojedynczej wizyty mogła kompensować większa liczba odwiedzin. W części badań mierzących zawiązywanie owoców dodatkowy efekt tych owadów utrzymywał się po uwzględnieniu odwiedzin pszczół. [77]
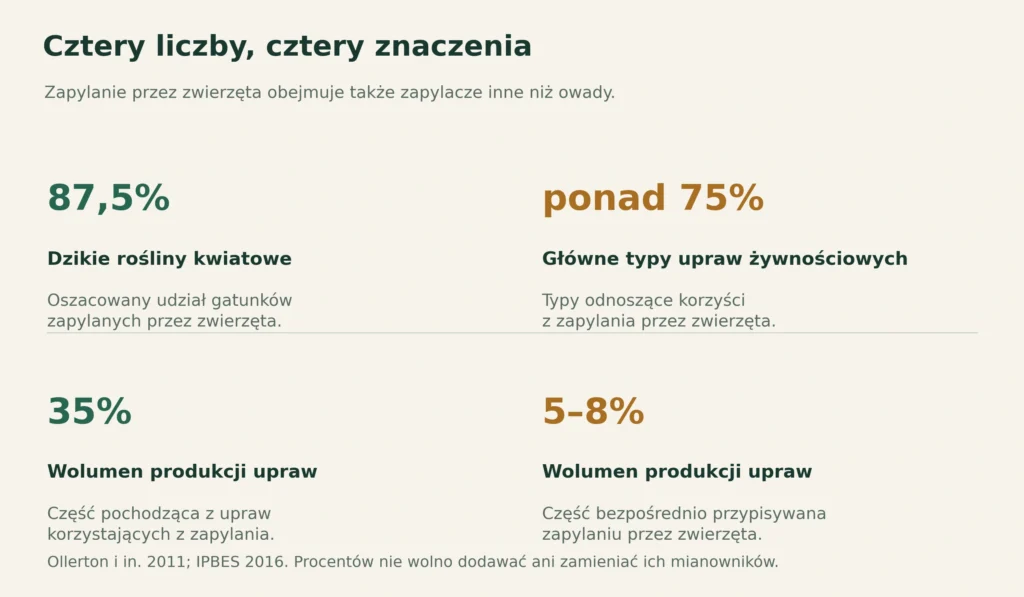
Znaczenie ma także skala uogólnienia. Ollerton, Winfree i Tarrant oszacowali w 2011 roku, że zapylaniu przez zwierzęta podlega 87,5% gatunków roślin kwiatowych. Tong i współautorzy w 2023 roku, wykorzystując inne zestawienie danych taksonomicznych i sposobów zapylania, otrzymali około 90%. Są to oszacowania udziału gatunków roślin, a nie odsetka wszystkich osobników, powierzchni roślinności lub plonów. W obu przypadkach „zwierzęta” obejmują także zapylacze inne niż owady. [78, 79]
Trzy procenty opisujące różne pytania
Według oceny IPBES z 2016 roku ponad trzy czwarte najważniejszych typów upraw żywnościowych korzysta w pewnym stopniu z zapylania przez zwierzęta. Uprawy zależne w różnym stopniu odpowiadają za około 35% globalnego wolumenu produkcji roślinnej, natomiast udział produkcji bezpośrednio przypisywany zapylaniu oszacowano na 5–8%. Te wartości odnoszą się do innych pytań i nie są zamienne. [80]
| Wartość | Co opisuje | Czego nie oznacza | Źródło |
|---|---|---|---|
| 87,5% | Oszacowany udział gatunków roślin kwiatowych zapylanych przez zwierzęta | Udział owadów w produkcji żywności | Ollerton i in. 2011 [78] |
| Około 90% | Nowsze oszacowanie udziału takich gatunków | Uniwersalny stopień zależności każdej rośliny | Tong i in. 2023 [79] |
| Ponad 75% | Typy najważniejszych upraw korzystające z zapylania zwierzęcego | 75% masy zbieranych plonów | IPBES 2016 [80] |
| 35% | Wolumen produkcji pochodzący z upraw zależnych w różnym stopniu | Cała produkcja znikająca bez zapylaczy | IPBES 2016 [80] |
| 5–8% | Wolumen produkcji bezpośrednio przypisywany zapylaniu zwierzęcemu | Udział samych pszczół miodnych | IPBES 2016 [80] |
Różnicę można zrozumieć bez upraszczania biologii do jednego hasła. Uprawa może korzystać z zapylaczy i jednocześnie wytwarzać część plonu bez ich udziału. Liczba typów upraw nie uwzględnia ich nierównego znaczenia w masie światowej produkcji. Z kolei masa plonu nie opisuje całej jego jakości. Dlatego właściwa interpretacja zaczyna się od sprawdzenia jednostki oraz mierzonego efektu, a dopiero potem od porównania procentów. [75]
Studium przypadku dzikich zapylaczy
Garibaldi i współautorzy zestawili dane z 41 systemów uprawnych na świecie. We wszystkich analizowanych systemach stwierdzili dodatnią zależność między odwiedzinami dzikich owadów a zawiązywaniem owoców. Średni wzrost związany z jednostkowym przyrostem ich odwiedzin był większy niż odpowiedni efekt odwiedzin pszczoły miodnej. Korzyści obu grup miały charakter uzupełniający. [81]
To badanie dotyczyło zależności obserwowanych w konkretnych systemach, a nie prostego przelicznika „jeden dziki owad zastępuje dwie pszczoły”. Zawiązanie owoców jest ważną miarą reprodukcji, lecz nie jest tożsame z końcową masą handlowego plonu. Wynik uzasadnia uwzględnianie dzikich zapylaczy w zarządzaniu uprawami; nie określa jednej właściwej obsady uli dla każdego gospodarstwa. [81]
Uzupełniającego mechanizmu dostarczyło badanie Brittain i współautorów w kalifornijskich sadach migdałowych. Obecność pszczół innych niż Apis wiązała się ze zmianą zachowania pszczoły miodnej i skuteczności zapylania; wyniki wsparło doświadczenie z kontrolowanym składem zespołu. Różnorodność może więc oddziaływać nie tylko przez dodawanie kolejnych wizyt, ale również przez zmianę sposobu wykorzystania kwiatów przez inne gatunki. Zakres takiej synergii wymaga sprawdzenia osobno w innych uprawach. [82]
Jakość jest osobnym wynikiem
W doświadczeniu dotyczącym truskawek Klatt i współautorzy porównali owoce powstające przy różnym dostępie zapylaczy. Zapylanie przez pszczoły wiązało się z mniejszą liczbą deformacji, większą masą owoców oraz dłuższą trwałością. Ocena znaczenia zapylania obejmuje zatem nie tylko liczbę owoców, lecz również ich przydatność handlową i straty po zbiorze. Wynik dla truskawki nie przesądza, że wszystkie parametry jakości każdej uprawy reagują tak samo. [76]
Praktyczne pytanie brzmi więc: jaki wynik chcemy poprawić i jak będziemy go mierzyć? Większa liczba owadów na kwiatach może być pożądana, ale potrzebne są również dane o owocach, nasionach lub jakości zbioru. W badaniach należy rozdzielić aktywność odwiedzających, skuteczność przenoszenia pyłku i odpowiedź uprawy. Takie rozdzielenie ułatwia ocenę, na którym etapie powstaje ograniczenie oraz czy planowane działanie odpowiada rzeczywistemu problemowi.
Rozdział 14Rozkład materii i obieg pierwiastków
Rozdrabnianie i mineralizacja są różnymi procesami
Rozkład martwej materii jest wynikiem współdziałania organizmów i warunków fizycznych. Owady mogą rozdrabniać podłoże, przenosić jego fragmenty i zmieniać dostępność dla innych organizmów. Bakterie oraz grzyby uczestniczą w przemianach chemicznych, które prowadzą do uwalniania i ponownego wykorzystania składników pokarmowych. Część materii przechodzi przy tym przez ciała organizmów i trafia dalej do sieci pokarmowej. Zniknięcie widocznego fragmentu liścia nie jest zatem równoznaczne z jego natychmiastowym i całkowitym przekształceniem w związki mineralne. [67]
W przypadku drewna owady mogą zarówno trawić składniki pokarmowe z udziałem własnych enzymów i symbiontów, jak i mechanicznie zmieniać substrat. Korytarze, fragmentacja, przemieszczanie mikroorganizmów oraz żerowanie na grzybni wpływają na dalszy przebieg rozkładu. Efekt pojedynczej grupy może być dodatni lub ujemny, zależnie od oddziaływań. Przegląd Ulyshena podkreśla znaczenie mikroorganizmów, ale również rolę bezkręgowców, szczególnie w początkowych fazach rozkładu. [83]
Studium przypadku martwego drewna
Seibold i współautorzy rozmieścili drewno na 55 stanowiskach leśnych na sześciu kontynentach. Porównali ubytek suchej masy w wariantach otwartych i osłoniętych siatką; dodatkowy wariant otwartej klatki pomagał ocenić wpływ samej osłony. Eksperyment obejmował dostęp owadów i innych zwierząt, zbiorczo nazywanych przez autorów owadami. Efekt netto uwzględniał także oddziaływania z mikroorganizmami. [84]
Po połączeniu modelu rozkładu z mapą zasobów martwego drewna autorzy oszacowali ten wkład na około 29% strumienia węgla uwalnianego z martwego drewna. Jest to wynik globalnego modelowania, a nie bezpośredni pomiar identycznego udziału w każdym lesie. Nie opisuje udziału owadów w całkowitych emisjach gazów cieplarnianych ani nie stanowi argumentu za usuwaniem martwego drewna. [84]
Badanie pokazuje również różnicę między pytaniem o skład zespołu a pytaniem o jego funkcję. Spis gatunków informuje, kto występuje w siedlisku. Pomiar ubytku masy bada tempo procesu. Aby wyjaśnić rolę organizmów, trzeba powiązać oba rodzaje danych i uwzględnić warunki eksperymentu. Wyniku uzyskanego przez wykluczenie określonej grupy nie można bez dodatkowych założeń utożsamić z samą ilością pokarmu zjedzonego przez jej osobniki: zmieniają się również relacje z pozostałymi organizmami. [83]
Odchody jako zasób i droga przemieszczania nasion
Odchody dużych zwierząt stanowią skupiony zasób materii organicznej. Chrząszcze koprofagiczne różnią się sposobem jego wykorzystania: część przenosi materiał, część zakopuje go, a inne rozwijają się w obrębie odchodów. W doświadczeniu Slade i współautorów w lesie tropikalnym na Borneo manipulowano dostępem grup funkcjonalnych chrząszczy i badano usuwanie odchodów oraz wtórne przemieszczanie nasion. Znaczenie miała nie tylko liczba grup, ale również ich skład. [85]
Wynik ten wyjaśnia, dlaczego samo zastąpienie wielu gatunków podobną liczbą osobników jednego gatunku nie musi odtworzyć funkcjonowania zespołu. Organizm duży i kopiący głęboko może przemieszczać materiał inaczej niż drobny gatunek pozostający blisko powierzchni. Zróżnicowanie funkcjonalne dotyczy konkretnych sposobów działania, nie jest jedynie inną nazwą liczby gatunków. W odniesieniu do nasion należy dodatkowo sprawdzić, gdzie trafiły i czy warunki pozwalają im wykiełkować; samo przemieszczenie nie przesądza o skutecznym odnowieniu roślin. [85]
Termity jako organizmy zmieniające środowisko
Ashton i współautorzy wykorzystali eksperymentalne ograniczenie liczebności termitów w lesie na Borneo, aby zbadać ich znaczenie podczas silnej suszy związanej z El Niño w latach 2015–2016. Na powierzchniach z zachowanymi zespołami termitów utrzymywały się korzystniejsze warunki dotyczące wilgotności gleby, rozkładu ściółki i przeżywania siewek niż na powierzchniach, gdzie termity ograniczano. [86]
Jest to przykład inżynierii ekosystemu: organizm wpływa na warunki życia innych gatunków przez zmianę środowiska. Wynik dotyczy określonego lasu i doświadczenia. Nie uprawnia do stwierdzenia, że dowolny gatunek termita zawsze poprawia warunki dla wszystkich roślin, ani do przenoszenia oceny korzyści leśnych na szkody w konstrukcjach drewnianych. Ta sama szeroka grupa taksonomiczna może obejmować organizmy o różnym znaczeniu w różnych miejscach. [86]
| Proces | Przykładowy mechanizm | Właściwa interpretacja |
|---|---|---|
| Rozdrabnianie | Powstawanie mniejszych fragmentów podłoża | Zmiana dostępności substratu, a nie pełny pomiar mineralizacji [67] |
| Rozkład drewna | Żerowanie i interakcje z mikroorganizmami | Około 29% to modelowany efekt netto dostępu zwierząt, określany przez autorów jako wkład owadów w strumień węgla z martwego drewna [84] |
| Usuwanie odchodów | Przenoszenie i zakopywanie materiału | Efekt zależy od obecnych grup funkcjonalnych [85] |
| Zmiana gleby | Przemieszczanie materiału i tworzenie struktur | W doświadczeniu na Borneo wiązała się z osłabieniem skutków suszy [86] |
Rozdział 15Sieci pokarmowe i naturalni wrogowie
Jedna grupa może pełnić kilka funkcji
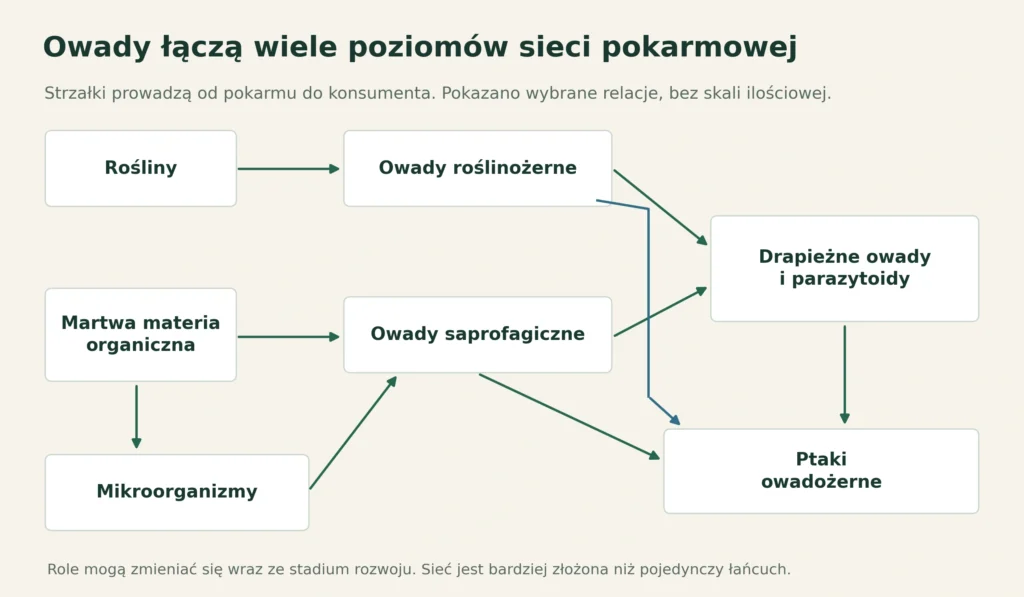
Sieć pokarmowa opisuje relacje żywieniowe między organizmami. Owady uczestniczą w niej jako konsumenci roślin, drapieżniki, parazytoidy, organizmy korzystające z martwej materii oraz pokarm innych zwierząt. Rola może zmieniać się w trakcie życia. U części bzygowatych larwy polują na mszyce, podczas gdy postacie dorosłe odwiedzają kwiaty. Oceniając funkcję, trzeba więc rozpoznać nie tylko rodzinę lub rząd, lecz również gatunek i stadium. [87]
Drapieżnik zwykle zjada w życiu wiele ofiar. Larwa parazytoida rozwija się kosztem gospodarza, którego ostatecznie zabija; jeden gospodarz może utrzymywać jedną albo więcej larw. Są to odmienne strategie odżywiania, choć obie mogą ograniczać organizmy uszkadzające uprawy. W biologicznej regulacji uczestniczą także patogeny, które nie są owadami. Zaliczanie każdej formy kontroli biologicznej do „pożytecznych owadów” zaciera tę różnicę. [87]
Efekt zależy od połączeń w sieci
Nie każda obserwacja większej liczby drapieżników oznacza skuteczniejsze ograniczenie szkód. Naturalni wrogowie mogą przybywać tam, gdzie jest dużo ofiar, a wynik gospodarczy zależy również od terminu ich działania i wrażliwości uprawy. Ochrona biologiczna powinna być oceniana przez porównanie presji szkodnika, uszkodzeń i plonu, nie tylko przez spis odwiedzających pole drapieżników. Tę ostrożność uzasadnia analiza Karpa i współautorów: reakcje szkodników, wrogów naturalnych, uszkodzeń oraz plonów na skład otaczającego krajobrazu były niejednorodne. [88]
Mapa udziału zadrzewień lub użytków zielonych wokół pola nie opisuje jeszcze biologii szkodnika ani sposobu prowadzenia uprawy. Krajobrazy o podobnym procencie zieleni mogą oferować inne zasoby. Wyniki syntezy Karpa wskazują, że korzyści dla konkretnej uprawy wymagają rozpoznania lokalnego mechanizmu. [88]
Dlaczego różnorodność pozostaje istotna
Dainese i współautorzy analizowali dane z 89 badań, obejmujących 1475 lokalizacji. Rozdzielili znaczenie bogactwa gatunkowego, liczebności i dominacji dla zapylania, regulacji szkodników oraz plonowania. Bogactwo gatunkowe zapylaczy i naturalnych wrogów wnosiło korzyści wykraczające poza samą liczebność. Jest to argument za równoczesnym badaniem kilku cech zespołu: masowa obecność jednego gatunku nie stanowi pełnej informacji o funkcjonowaniu całości. [89]
Wyniki Dainese oraz Karpa odpowiadają na powiązane, lecz odmienne pytania. Pierwsza synteza badała zależności między strukturą zespołów, usługami ekosystemowymi i produkcją. Druga sprawdzała, jak różne składniki kontroli szkodników odpowiadają na skład krajobrazu. Dodatnia rola różnorodności nie gwarantuje, że każda dowolna zmiana krajobrazu wywoła taki sam efekt. Tę różnicę należy zachować przy przechodzeniu od syntezy naukowej do projektu działania na konkretnym polu. [89, 88]
Owady łączą rośliny z kręgowcami
Owady są także zasobem dla zwierząt, które nie pobierają bezpośrednio pokarmu roślinnego. Narango, Tallamy i Marra badali związki między składem roślinności w podmiejskich ogrodach w rejonie Waszyngtonu, dostępnością stawonogów i rozrodem sikory karolińskiej. Roślinność obcego pochodzenia nie zapewniała w tym układzie zasobu pokarmowego równoważnego roślinności rodzimej. To konkretny przykład wpływu doboru roślin na dalsze ogniwa sieci. [90]
Badanie nie ustanawia uniwersalnego procentowego progu dla wszystkich ogrodów, ptaków i kontynentów. Pokazuje natomiast mechanizm, który warto sprawdzać: skład roślin wpływa na dostępność roślinożernych stawonogów, a ta na możliwości odżywiania ptaków. Połączenie z obserwacjami wymiany pokarmu między potokiem a lasem pozwala dostrzec, że skutki zmian w zespole owadów mogą wykraczać poza miejsce, w którym owady rozwinęły się lub zostały policzone. [90, 66]
| Obserwacja | Co bezpośrednio pokazuje | Czego wymaga dalszy wniosek |
|---|---|---|
| Drapieżnik na roślinie | Obecność potencjalnego wroga naturalnego | Rozpoznania diety i aktywności [87] |
| Parazytoid wychodzi z gospodarza | Potwierdzoną relację rozwojową | Oceny częstości i wpływu na populację gospodarza [87] |
| Więcej gatunków zapylaczy lub wrogów | Większe lokalne bogactwo badanego zespołu | Pomiaru zapylania, presji szkodników i plonu [89] |
| Ptaki zbierają owady z roślin | Wykorzystanie pokarmu | Oceny dostępności, diety i efektu rozrodczego [90] |
| Owady wylatują z wody | Przepływ biomasy przez granicę siedlisk | Pomiaru czasu i wielkości dopływu do konsumentów [66] |
Rozdział 16Rolnictwo i integrowana ochrona roślin
Rozpoznanie poprzedza interwencję
Integrowana ochrona roślin, określana skrótem IPM, polega na łączeniu dostępnych metod w sposób ograniczający rozwój organizmów szkodliwych i uzasadniający interwencje ekonomicznie oraz ekologicznie. FAO podkreśla podejście oparte na funkcjonowaniu całego systemu uprawy. W jego ramach mieszczą się działania zapobiegawcze, obserwacja, metody agrotechniczne, fizyczne, biologiczne i odpowiednio dobrane działania chemiczne. [91]
Podstawą jest poprawne oznaczenie organizmu oraz rodzaju szkody. Objawy mogą powstawać pod wpływem wielu czynników, a widoczny na roślinie owad nie musi być ich sprawcą. Dla decyzji znaczenie mają stadium szkodnika, faza rozwoju uprawy i obecność naturalnych wrogów. Połączenie tych informacji pozwala ocenić, czy problem narasta i czy reakcja w danym momencie może poprawić wynik produkcji. [92]
Próg działania i poziom szkody ekonomicznej
W bioekonomice ochrony roślin rozróżnia się poziom uszkodzenia, przy którym strata uzasadnia koszt ograniczenia szkodnika, oraz wcześniejszy próg uruchomienia działania. Interwencja musi uwzględniać czas narastania populacji i opóźnienie efektu zastosowanej metody. Wartości progowe zależą między innymi od uprawy, fazy rozwojowej, ceny produktu, kosztu zabiegu i relacji między zagęszczeniem organizmu a uszkodzeniem. [70]
Pojedyncza liczba owadów na liściu nie jest więc uniwersalnym wskazaniem do zabiegu. Ten sam poziom uszkodzenia może mieć inne znaczenie zależnie od przeznaczenia produktu. Spadek liczebności po zabiegu również nie wystarcza do oceny opłacalności: trzeba porównać koszty i ograniczoną stratę. Praktyczne stosowanie progów wymaga aktualnych zaleceń dla konkretnego systemu uprawy. [70]
| Etap | Główne pytanie | Potrzebna informacja |
|---|---|---|
| Rozpoznanie | Co powoduje problem? | Identyfikacja organizmu i charakter uszkodzenia [92] |
| Monitoring | Czy problem narasta? | Powtarzalne obserwacje i stadium rozwojowe [91] |
| Ocena znaczenia | Czy przewidywana strata uzasadnia działanie? | Próg właściwy dla uprawy i warunków [70] |
| Wybór metody | Które działanie odpowiada mechanizmowi szkody? | Skuteczność, koszty i oddziaływanie na środowisko [91] |
| Ochrona sprzymierzeńców | Jak ograniczyć narażenie organizmów pożytecznych? | Rozpoznanie wrogów naturalnych i zapylaczy [92] |
| Ocena wyniku | Czy działanie przyniosło oczekiwany efekt? | Dane o presji szkodnika, uszkodzeniach i plonie [88] |
Studium przypadku roślin kwitnących przy polach ryżowych
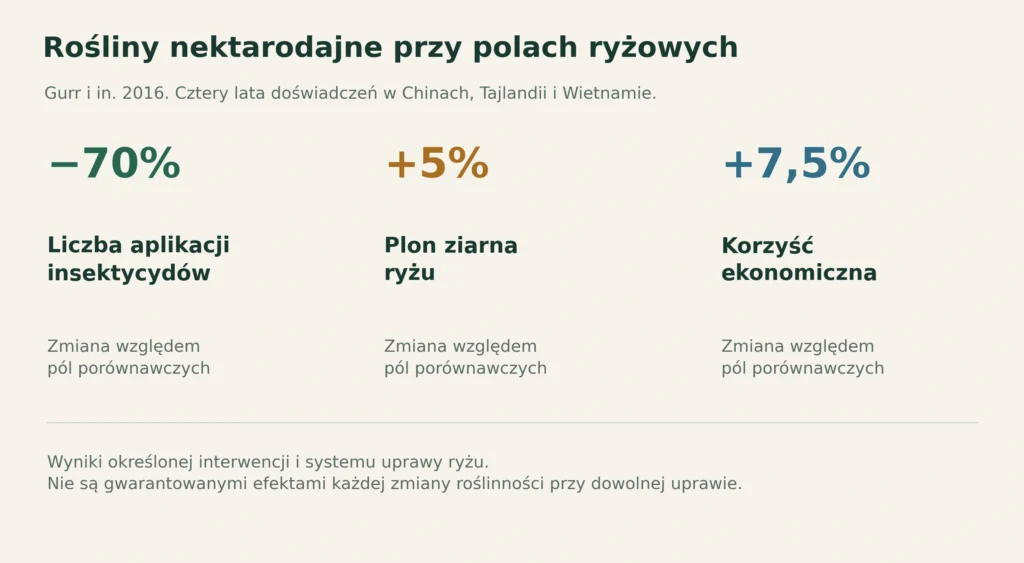
Gurr i współautorzy przeprowadzili wieloletnie badania terenowe w Chinach, Tajlandii i Wietnamie. Przez cztery lata oceniali uprawę roślin nektarodajnych przy polach ryżowych, zestawiając występowanie ważnych szkodników, stosowanie insektycydów i plony. W połączonych danych interwencja wiązała się z mniejszą liczbą aplikacji insektycydów, większym plonem i korzyścią ekonomiczną. [93]
| Miara | Wynik względem praktyki kontrolnej | Zakres interpretacji |
|---|---|---|
| Liczba aplikacji insektycydów | O 70% mniej | Liczba aplikacji, nie masa wszystkich pestycydów |
| Plon ziarna | O 5% więcej | Połączone dane z badanego systemu ryżowego |
| Korzyść ekonomiczna | 7,5% | Wynik według rachunku zastosowanego przez autorów |
Źródło tabeli: Gurr i in. 2016; doświadczenia w trzech krajach, obejmujące cztery lata. [93]
Wyniki odnoszą się do określonych roślin, szkodników i sposobu prowadzenia pól. Nie są gwarancją takich samych efektów po wysianiu dowolnej mieszanki kwiatowej obok dowolnej uprawy. Wdrożenie podobnego podejścia wymaga sprawdzenia, jakie zasoby rzeczywiście wykorzystują miejscowi naturalni wrogowie oraz czy sposób prowadzenia gospodarstwa pozwala im działać. [93]
Dywersyfikacja wymaga określenia celu
Szerszej podstawy dostarcza synteza Tamburiniego i współautorów, obejmująca metaanalizy różnych sposobów zwiększania różnorodności w systemach rolniczych. Oceniano jednocześnie produkcję oraz usługi związane między innymi z zapylaniem, regulacją szkodników, glebą i obiegiem składników. Średnio dywersyfikacja wspierała wiele funkcji bez pogorszenia plonowania, ale zależności między poszczególnymi usługami były słabiej rozpoznane niż ich pojedyncze efekty. [94]
Praktyczny wniosek powinien więc wskazywać cel, a nie ograniczać się do hasła „więcej różnorodności”. Można dążyć do zapewnienia pokarmu określonym naturalnym wrogom, wydłużenia dostępności kwiatów albo ograniczenia okresu, w którym gleba pozostaje bez okrywy. Są to różne interwencje, wymagające innych miar powodzenia. Korzyść średnia w syntezie jest argumentem za badaniem i projektowaniem takich działań, lecz nie usuwa potrzeby oceny ich kosztów oraz efektów w danym gospodarstwie. [94]
Ochrona naturalnych wrogów obejmuje także sposób używania środków ochrony roślin. Materiały UC IPM zalecają ocenę metod zgodnych z zachowaniem zapylaczy i naturalnych wrogów oraz rozpoznanie organizmów, na które mogą oddziaływać zabiegi. Znaczenie mają selektywność produktu, trwałość pozostałości oraz miejsce i sposób zastosowania. Dobór zabiegu pozostaje zadaniem wymagającym aktualnych, lokalnie właściwych informacji. [92]
Rozdział 17Znaczenie gospodarcze i granice wycen
Usługa ekosystemowa ma określonego odbiorcę
Pojęcie usługi ekosystemowej łączy funkcjonowanie przyrody z korzyścią dla ludzi. Przenoszenie pyłku jest procesem biologicznym; część wzrostu produkcji przypisywana temu procesowi może zostać oszacowana ekonomicznie. Podobnie można analizować ograniczenie strat plonu przez naturalnych wrogów lub usuwanie odchodów na pastwiskach. Wycena odpowiada na pytanie o określoną korzyść przy przyjętych założeniach. Nie jest pełną miarą znaczenia gatunku ani jego wartości przyrodniczej. [95]
Rozróżnienie to chroni przed błędem polegającym na traktowaniu wszystkich procesów jako niezależnych kwot, które można swobodnie zsumować. Produkcja nasion, rozwój roślin i plonowanie są powiązane. Jeśli różne rachunki obejmują nakładające się efekty, dodawanie wyników może policzyć tę samą korzyść więcej niż raz. Przed porównaniem wycen trzeba więc sprawdzić zakres, scenariusz odniesienia, jednostkę walutową i rok cen. Jest to zasada analizy rachunku, a nie dodatkowy współczynnik korygujący, który można dopisać bez danych.
Co mówią historyczne szacunki
Losey i Vaughan w pracy z 2006 roku oszacowali co najmniej 57 mld USD rocznie dla czterech usług dzikich owadów w Stanach Zjednoczonych: usuwania odchodów, ograniczania szkodników, zapylania i udziału w odżywianiu dzikich zwierząt. Zakres wybrano ze względu na dostępność danych i metod obliczeń. Autorzy nie przedstawili pełnej wartości wszystkich owadów na świecie. [95]
| Wynik opublikowany | Zakres | Rok i ograniczenie |
|---|---|---|
| Co najmniej 57 mld USD rocznie | Cztery usługi dzikich owadów w USA | Publikacja 2006; szacunek historyczny [95] |
| 235–577 mld USD rocznie | Produkcja upraw przypisywana zapylaniu zwierzęcemu na świecie | IPBES 2016; dolary o wartości z 2015 roku [80] |
| Co najmniej 70 mld USD rocznie | Globalne koszty inwazyjnych owadów dla dóbr i usług | Bradshaw i in. 2016; równowartość dolarów z 2014 roku [96] |
| Do 40% produkcji upraw | Straty powodowane przez szkodniki i choroby roślin | Zestawienie FAO; zakres szerszy niż same owady [97] |
Wartości w tabeli nie tworzą bilansu, który pozwalałby odjąć „szkody owadów” od „korzyści owadów”. Obejmują różne obszary, lata i kategorie. Ich zestawienie służy porównaniu zakresów, a nie wyprowadzeniu jednej sumy netto. Kwoty historyczne zachowują w opracowaniu oryginalny rok odniesienia; nie są przedstawiane jako wycena na 2026 rok.
Koszty również zależą od jakości dokumentacji
Bradshaw i współautorzy zestawili dostępne szacunki kosztów inwazyjnych owadów, zwracając uwagę na niepełne pokrycie geograficzne i nierówną jakość danych. Niektóre regiony i gatunki były dobrze opisane, inne niemal nieobecne w rachunkach. Koszt wykazany w publikacjach nie jest zatem automatycznie pełnym kosztem wszystkich oddziaływań. Z kolei brak oszacowania nie dowodzi braku szkód. [96]
Podobnej ostrożności wymaga podawana przez FAO informacja o stratach produkcji roślinnej. Zestawienie dotyczy szkodników i chorób, a więc obejmuje więcej czynników niż owady. Przypisanie całej wartości tej jednej gromadzie byłoby zmianą znaczenia źródła. Ocena dla konkretnej uprawy powinna oddzielać sprawcę, wielkość straty, stosowane już działania ochronne i scenariusz, z którym porównuje się obserwowany wynik. [97]
Jak czytać rachunek ekonomiczny
Najpierw należy ustalić przedmiot wyceny: utracony plon, uniknięty koszt, zmianę przychodu czy szerszą korzyść społeczną. Następnie sprawdza się scenariusz porównawczy. Utrata całej funkcji zapylania i niewielka zmiana liczby zapylaczy są odmiennymi zdarzeniami; ich skutków nie można utożsamiać. Trzeba również odróżnić cenę produktu od zysku gospodarstwa. Większy przychód może wymagać dodatkowych kosztów, a oszczędność w jednym elemencie produkcji nie przesądza o wyniku całego systemu.
Rzetelna wycena powinna więc pozwalać odtworzyć tok obliczeń: jakie dane wejściowe wykorzystano, jaki okres i teren obejmują, jak przyjęto zależność biologiczną oraz które koszty pominięto. Przedział oszacowania jest informacją o zakresie wyniku, a nie powodem do wybierania wyłącznie najwyższej liczby. Tam, gdzie nie ma wystarczającej podstawy do aktualizacji lub przeliczenia, lepsze jest zachowanie oryginalnej wartości wraz z opisem jej ograniczeń.
Ekonomiczne znaczenie owadów jest więc wielowymiarowe. Dla gospodarstwa ważny może być plon, dla zarządcy lasu obieg materii i trwałość siedlisk, a dla społeczeństwa również wartości edukacyjne lub możliwość zachowania różnorodności. Rachunek pieniężny pomaga porównywać niektóre skutki decyzji, lecz powinien być używany obok danych biologicznych. Tożsamość chronionych organizmów, miejsce ich życia oraz możliwość odtworzenia utraconej funkcji pozostają odrębnymi pytaniami.
Owady i człowiek
Rozdział 18Owady jako żywność i pasza
Gatunek, stadium i produkt
Wykorzystanie owadów do celów spożywczych obejmuje różne gatunki, stadia rozwojowe i sposoby przetwarzania. Tradycyjny zbiór, kontrolowany chów, mączka z całych larw i wyizolowana frakcja białkowa tworzą odmienne produkty. Raport FAO opisuje zarówno potencjał tego sektora, jak i zagrożenia biologiczne, chemiczne oraz alergiczne. Wniosku o wartości i bezpieczeństwie jednego produktu nie można przenosić na całą gromadę owadów. [98]
| Obszar oceny | Co trzeba ustalić | Znaczenie |
|---|---|---|
| Tożsamość materiału | Gatunek i stadium rozwojowe | Larwy, poczwarki i osobniki dorosłe mogą różnić się składem [98] |
| Produkcja | Pasza, warunki chowu i moment zbioru | Mogą wpływać na zanieczyszczenia biologiczne i chemiczne [99] |
| Przetwarzanie | Obróbka, suszenie, przechowywanie | Ocenia się cały proces i końcowy produkt [99] |
| Wartość odżywcza | Świeża lub sucha masa i metoda analizy | Różne podstawy obliczeń utrudniają porównania [100] |
| Wpływ środowiskowy | Jednostka funkcjonalna i granice analizy | Wynik na kilogram produktu nie jest wynikiem na kilogram białka [101] |
| Warunki dopuszczenia | Konkretna postać produktu i sposób użycia | Zezwolenie nie obejmuje automatycznie wszystkich produktów z danego gatunku [102] |
Jak czytać informację o białku
Porównanie składu ma sens dopiero po sprawdzeniu, czy wynik odnosi się do świeżej masy, suchej masy czy wydzielonego preparatu. Suszenie zmienia udział procentowy składników przez usunięcie wody. Nie jest samo w sobie dowodem, że organizm wytworzył więcej białka. Równie istotna jest metoda analityczna. Janssen i współautorzy wykazali dla badanych larw trzech gatunków i ich ekstraktów, że uniwersalne przeliczanie azotu na białko może zawyżać wynik ze względu na obecność azotu niebiałkowego. [100]
Dlatego hasło o „zawartości białka w owadach” powinno mieć dopowiedzenie: w jakim gatunku, w jakim produkcie i jak ją zmierzono. Podobnej ostrożności wymaga porównywanie produktów żywnościowych o różnej zawartości wody lub różnym udziale frakcji jadalnej. Sens praktyczny zależy od rzeczywistego zastosowania produktu, a nie wyłącznie od jednego procentu na etykiecie. [100, 101]
Studium przypadku analizy cyklu życia
Oonincx i de Boer ocenili w 2012 roku holenderski system chowu Tenebrio molitor i Zophobas morio. Analiza obejmowała wytworzenie świeżego produktu do momentu opuszczenia gospodarstwa, w tym paszę i energię. Autorzy podali wyniki dla dwóch jednostek funkcjonalnych. To użyteczny przykład, jak zmiana podstawy porównania zmienia liczby, chociaż dotyczy tego samego systemu produkcyjnego. [103]
| Wskaźnik | Na 1 kg świeżego produktu | Na 1 kg jadalnego białka |
|---|---|---|
| Potencjał tworzenia efektu cieplarnianego | 2,7 kg ekwiwalentu CO₂ | 14 kg ekwiwalentu CO₂ |
| Zużycie energii kopalnej | 34 MJ | 173 MJ |
Źródło: Oonincx i de Boer, 2012; wartości zaokrąglone w części wynikowej publikacji. Granica systemu kończyła się na bramie gospodarstwa. Są to wyniki historycznego systemu, nie bieżąca średnia dla wszystkich hodowli owadów. [103]
W przeglądzie Halloran i współautorów zwrócono uwagę na potrzebę uwzględniania gatunku, stadium, rzeczywistych danych produkcyjnych i kilku kategorii oddziaływania. Ocena powinna obejmować także procesy istotne dla danego produktu, na przykład suszenie i przechowywanie. Wynik dotyczący emisji nie rozstrzyga automatycznie kwestii zapotrzebowania na energię, zużycia wody czy zajęcia terenu. Porównywane produkty muszą ponadto pełnić rzeczywiście podobną funkcję. [101]
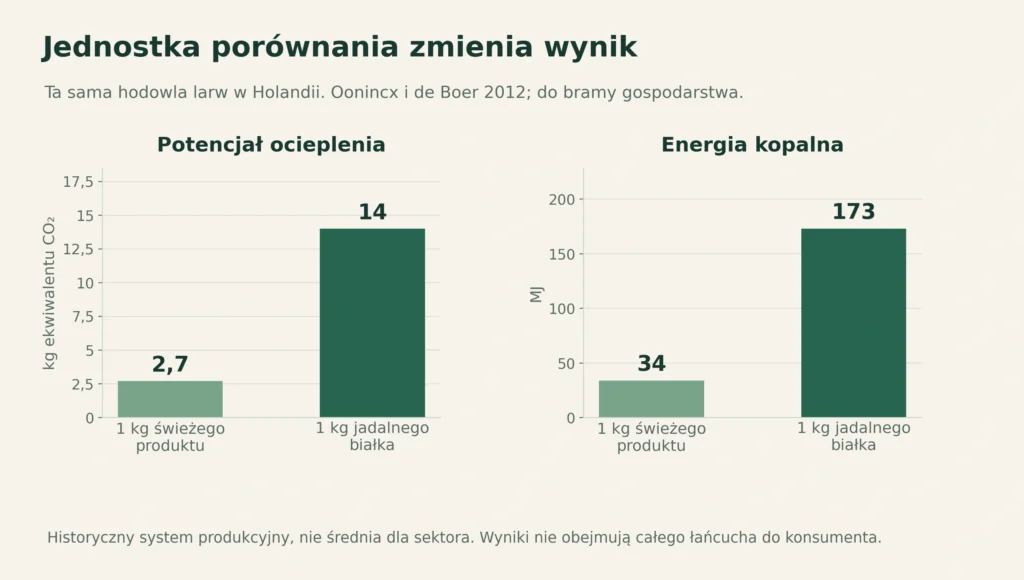
Bezpieczeństwo i warunki wykorzystania
Według opinii EFSA o występowaniu zagrożeń decydują między innymi substrat żywieniowy, gatunek, stadium oraz dalsze przetwarzanie. System wykorzystujący materiał uboczny wymaga oceny tego materiału; określenie go mianem odpadu lub produktu ubocznego nie przesądza o przydatności do produkcji żywności i paszy. Kontrola procesu jest równie istotna jak identyfikacja organizmu. [99]
W Unii Europejskiej zezwolenia dotyczące nowej żywności odnoszą się do określonych produktów i warunków stosowania. Komisja Europejska opisuje możliwość reakcji alergicznych, w tym u części osób uczulonych na skorupiaki lub roztocze, oraz wymogi odpowiedniego oznakowania. Ocenę konkretnego produktu należy czytać łącznie ze specyfikacją i zakresem zezwolenia. Jest to odrębne zagadnienie od pytania o ekologiczną rolę dzikich owadów. [102]
Rozwój chowu kilku gatunków nie zastępuje ochrony różnorodności w krajobrazie. Produkcja żywności służy wytwarzaniu określonego surowca; ochrona przyrody dotyczy utrzymania populacji, siedlisk i relacji ekologicznych. Oba zagadnienia wymagają własnych mierników sukcesu.
Rozdział 19Owady a zdrowie człowieka
Wektor i czynnik chorobotwórczy
Wektor jest organizmem uczestniczącym w przenoszeniu czynnika chorobotwórczego. W przypadku malarii sprawcą są pasożyty z rodzaju Plasmodium, a wektorami odpowiednie gatunki komarów Anopheles. W przypadku dengi czynnikiem chorobotwórczym jest wirus, przenoszony przede wszystkim przez komary Aedes. Obecność gatunku zdolnego do transmisji i występowanie patogenu na danym terenie trzeba oceniać oddzielnie. [104]
| Grupa wektorów | Przykład choroby | Rodzaj czynnika |
|---|---|---|
| Niektóre komary Anopheles | Malaria | Pierwotniaki |
| Niektóre komary Aedes | Denga | Wirusy |
| Niektóre komary Culex | Gorączka Zachodniego Nilu | Wirusy |
| Muchówki tse-tse | Śpiączka afrykańska | Pierwotniaki |
| Niektóre meszki | Onchocerkoza | Nicienie |
| Wybrane muchówki z podrodziny Phlebotominae | Leiszmaniozy | Pierwotniaki |
| Niektóre pchły | Dżuma | Bakterie |
Źródło tabeli: WHO. Zestawienie jest przykładowe; kompetencja wektorowa zależy od gatunku i patogenu. Kleszcze należą do pajęczaków, dlatego nie zostały tu umieszczone. [104]
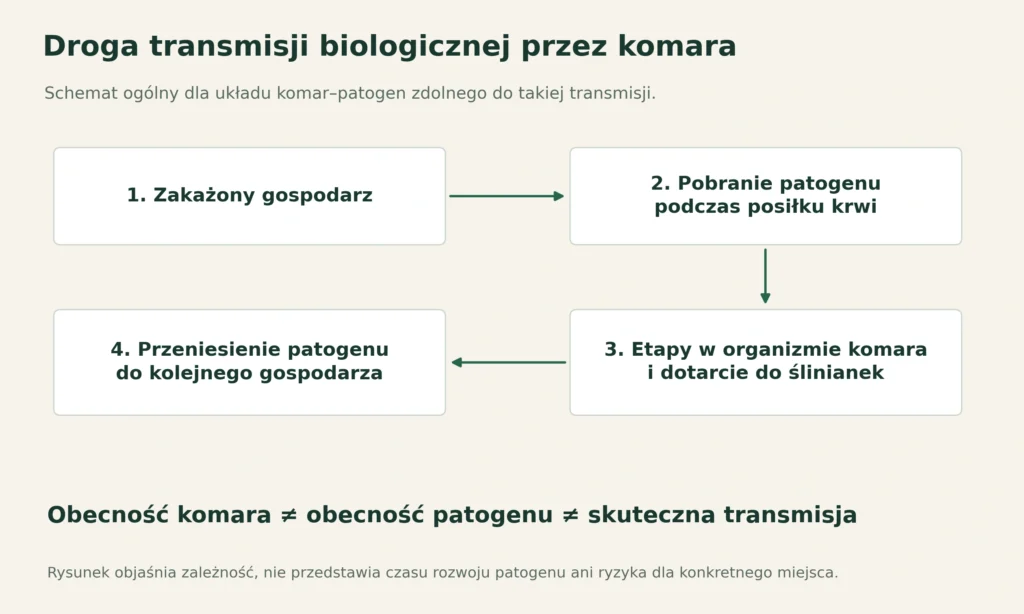
Co oznacza ukłucie komara
Krew pobierają samice komarów. U większości z nich posiłek krwi dostarcza składników potrzebnych do produkcji jaj. Ukłuciu towarzyszy wprowadzenie śliny, na którą organizm może zareagować świądem i obrzękiem. Sam miejscowy odczyn nie dowodzi zakażenia. Nie każdy gatunek komara przenosi patogeny istotne dla ludzi, a samo pobranie krwi nie wystarcza do skutecznej transmisji konkretnej choroby. [106, 105]
Przy transmisji biologicznej patogen musi przejść odpowiednie etapy w organizmie wektora. CDC opisuje drogę od pobrania z zakażonym gospodarzem do gruczołów ślinowych komara i kolejnego gospodarza. Zdolność takiej transmisji jest właściwością konkretnego układu wektor–patogen–środowisko. Wyjaśnia to, dlaczego obserwacja owada nie jest samodzielnym testem zagrożenia epidemiologicznego. [105]
Skala obciążenia malarią
W raporcie World malaria report 2025 WHO oszacowała liczbę przypadków malarii w 2024 roku na 282 mln, a liczbę zgonów na 610 tys. Dane te dotyczą jednej choroby i konkretnego roku. Nie przedstawiają liczby ukłuć ani łącznego bilansu wszystkich relacji człowieka z owadami. Raport rozróżnia też liczbę zdarzeń od wskaźników uwzględniających wielkość populacji narażonej; oba rodzaje miar mogą zmieniać się inaczej. [107]
| Liczba | Zakres | Czego z niej nie wyliczać |
|---|---|---|
| 282 mln przypadków malarii | Oszacowanie globalne dla 2024 roku | Liczby zakażonych komarów lub ukłuć |
| 610 tys. zgonów z powodu malarii | Oszacowanie globalne dla 2024 roku | Sumy zgonów wywoływanych przez wszystkie choroby wektorowe |
Źródło: WHO, World malaria report 2025. [107]
Nadzór i działania ukierunkowane
Strategia WHO dotycząca kontroli wektorów łączy nadzór, ocenę skuteczności interwencji, badania oraz współpracę między sektorami. Cel interwencji wynika z rozpoznanego problemu epidemiologicznego. Z punktu widzenia planowania oznacza to potrzebę wskazania gatunku lub grupy, miejsc rozwoju, rodzaju narażenia oraz miernika efektu. Ogólna liczba „wszystkich owadów” nie zastępuje takiej informacji. [108]
Biologia rozwoju pozwala zrozumieć, dlaczego różne działania obejmują różne stadia. Ocena programu powinna odpowiadać jego celowi: redukcji ryzyka transmisji, kontaktu ludzi z wektorem lub określonej populacji. Wspólnym zadaniem ochrony zdrowia i odpowiedzialnego zarządzania środowiskiem jest dobór skutecznego działania do rozpoznanej sytuacji oraz sprawdzenie jego efektów. [108]
Rozdział 20Owady w badaniach naukowych
Organizm modelowy i granice przenoszenia wyników
Drosophila melanogaster, wywilżna karłowata, należy do najważniejszych organizmów modelowych biologii. Badania nad jej rozwojem pozwoliły określić rolę genów organizujących plan ciała. Prace Christiane Nüsslein-Volhard i innych badaczy nad genetyką rozwoju znalazły odzwierciedlenie w Nagrodzie Nobla z 1995 roku. Znaczenie modelu polega na możliwości testowania mechanizmów w kontrolowanych warunkach. Wynik odnoszący się do jednego gatunku wymaga jednak sprawdzenia zakresu, w jakim wyjaśnia procesy u innych organizmów. [109]
Badania muszek miały też zasadnicze znaczenie dla poznania molekularnych mechanizmów rytmu dobowego, wyróżnionych Nagrodą Nobla w 2017 roku. Zegar biologiczny wynika z działania układu regulacji, w którym ekspresja genów i produkty tych genów tworzą sprzężenia zwrotne. Obserwowane rytmy aktywności są więc związane z wewnętrzną organizacją procesów, a nie wyłącznie z natychmiastową reakcją na zapalenie lub zgaszenie światła. [110]
Studium przypadku mapy połączeń mózgowych
W 2024 roku Dorkenwald i współautorzy opublikowali rekonstrukcję połączeń mózgowych dorosłej samicy D. melanogaster. Obejmowała ona 139 255 neuronów i 54,5 mln synaps chemicznych między nimi. Jest to opis konkretnej rekonstrukcji z mikroskopii elektronowej. Liczby nie stanowią uniwersalnej wartości dla mózgów wszystkich owadów, a mapa połączeń sama nie jest pełnym opisem aktywności i zachowania. [111]
| Element | Informacja | Granica interpretacji |
|---|---|---|
| Neurony | Rozpoznane komórki w danej rekonstrukcji | Liczba zależy od zakresu materiału i opracowania |
| Synapsy | Zidentyfikowane kontakty między neuronami | Kontakt strukturalny nie opisuje całej dynamiki sygnału |
| Przebieg połączeń | Drogi możliwego przepływu informacji | Funkcję obwodu trzeba badać również eksperymentalnie |
Źródło: Dorkenwald i in., 2024. [111]
Entomologia sądowa
Owady związane z rozkładem szczątków mogą dostarczać informacji o czasie i warunkach kolonizacji. Analiza wymaga oznaczenia materiału, określenia stadium rozwojowego oraz odtworzenia warunków temperatury. Czas rozwoju owada nie musi być równy czasowi, który upłynął od zgonu, ponieważ dostęp do szczątków i początek kolonizacji mogą być opóźnione. Przegląd Matuszewskiego wskazuje potrzebę walidacji metod i jawnego uwzględniania niepewności. [112]
Praca Matuszewskiego i Mądrej-Bielewicz z 2025 roku opisuje przypadek połączenia oceny rozwoju larw muchówek z informacją o sukcesji chrząszczy. Znany rzeczywisty czas pozwolił sprawdzić błąd oszacowania. Autorzy uzyskali wyjątkowo dobry wynik, ale zaznaczyli wyjątkowość sytuacji. Błąd rzędu 1% w tym przypadku nie jest deklaracją dokładności entomologii sądowej we wszystkich sprawach. Wartość przykładu polega na połączeniu niezależnych informacji i możliwości porównania wyniku z rzeczywistością. [113]
Wspólna zasada pracy badawczej
Kod DNA, rekonstrukcja neuronu i stadium larwy odpowiadają na różne pytania. Łączy je potrzeba określenia, co jest bezpośrednio obserwowane, co wynika z modelu, a co stanowi dalszą interpretację. Nowa metoda może zwiększyć rozdzielczość opisu, lecz nie usuwa automatycznie błędu identyfikacji, niepełnego próbkowania ani różnic między środowiskami. Dlatego w badaniach nad owadami technologia i klasyczna wiedza biologiczna uzupełniają się. [61, 62, 111, 112]
Zmiany, ochrona i monitoring
Rozdział 21Jak mierzy się stan owadów
Ocena stanu owadów zaczyna się od określenia celu pomiaru. Standardy monitoringu porządkują metody według badanej zmiennej, skali przestrzennej, czasu i wymaganych metadanych. Powtarzalna procedura pomaga odróżniać zmiany populacji od zmian warunków jej wykrywania. [114]
Pięć miar i pięć odmiennych pytań
Liczebność określa liczbę osobników w zdefiniowanej jednostce. W praktyce często dysponujemy wskaźnikiem, na przykład liczbą osobników na kilometr transektu lub na dobę działania pułapki. Biomasa zależy dodatkowo od rozmiaru i składu zwierząt. Bogactwo gatunkowe mówi, ile gatunków stwierdzono, ale nie określa ich liczebności ani równomierności udziałów. Do porównania wyników potrzebne są zgodne jednostki i podobny wysiłek obserwacyjny. [114]
| Miara | Podstawowe pytanie | Czego sama nie rozstrzyga |
|---|---|---|
| Liczebność lub wskaźnik liczebności | Ile osobników zarejestrowano na jednostkę obserwacji | Ilu jest gatunków |
| Biomasa | Jaka była łączna masa określonej próby | Czy ubyły głównie małe czy duże gatunki |
| Bogactwo gatunkowe | Ile gatunków występuje w badanej jednostce | Czy ich populacje są liczne |
| Zajętość stanowisk | Na jakiej części stanowisk gatunek występuje | Ile osobników żyje na zajętym stanowisku |
| Fenologia | Kiedy przypada aktywność lub etap rozwoju | Czy roczna wielkość populacji wzrosła |
Zestawienie pojęć na podstawie [114, 115].
Zajętość stanowisk, określana także angielskim terminem occupancy, jest szczególnie użyteczna w badaniu rozmieszczenia. Ważne jest odróżnienie rzeczywistej obecności od wyniku poszukiwań. Niewykrycie gatunku podczas jednej wizyty nie dowodzi jego nieobecności. Modele MacKenziego i współautorów wykorzystują powtarzane obserwacje, aby osobno oszacować występowanie i wykrywalność. Nie usuwają automatycznie wszystkich błędów: wymagają odpowiedniego projektu badania oraz założeń zgodnych z biologią organizmu. [115]
Praktycznym przykładem wykorzystania tej logiki jest analiza Powneya i współautorów dotycząca 353 gatunków dzikich pszczół i bzygowatych w Wielkiej Brytanii w latach 1980–2013. Autorzy zastosowali modele zajętości z wykrywalnością do rozległego zbioru zapisów przyrodniczych. Wyniki pokazały znaczne różnice między gatunkami. Zmianę powierzchni występowania należy zatem opisywać jako zmianę rozmieszczenia, nawet gdy ma ona znaczenie dla oceny populacji. Zapis gatunku na mapie nie zawiera jeszcze informacji o zagęszczeniu jego osobników. [116]
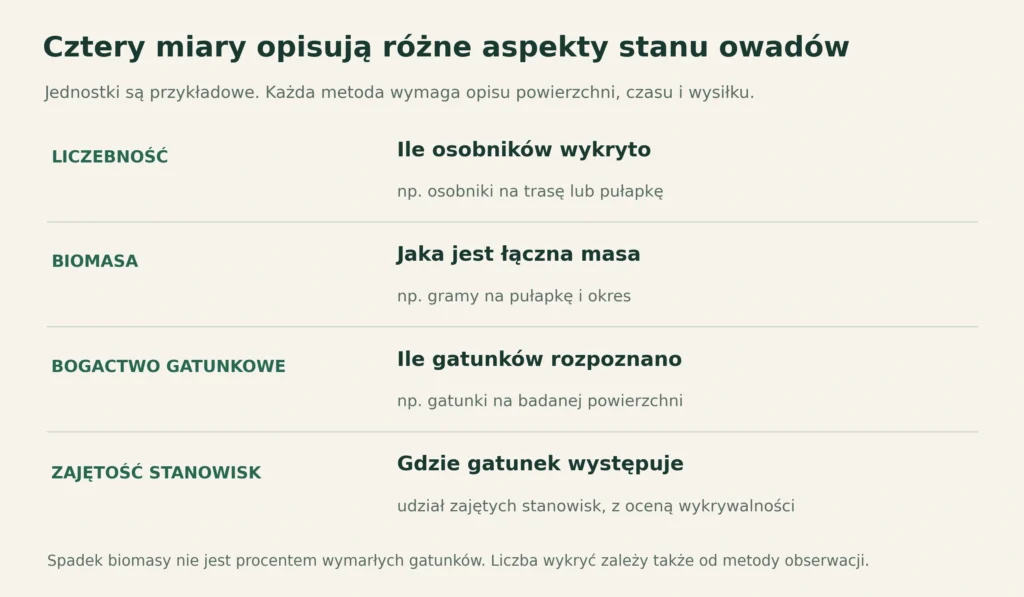
Punkt odniesienia i porównywalność
Trend jest własnością szeregu danych w określonym przedziale czasu. Rok początkowy może przypadać na okres wyjątkowo korzystny, niekorzystny albo już silnie przekształcony. Dochodzą do tego zmiany aparatury, obserwatorów, siedliska wokół stanowiska i terminów aktywności. Didham i współautorzy wskazali, że wiarygodne wnioskowanie wymaga kontroli takich różnic, a także oceny reprezentatywności stanowisk. Stała metoda jest warunkiem porównania, lecz sama nie czyni niewielkiej próby reprezentacją całego kontynentu. [118]
W analizie trzeba rozdzielić trzy poziomy: surowy zapis, oszacowanie statystyczne i interpretację ekologiczną. Zdanie „pułapka zebrała mniej biomasy” opisuje obserwację. Zdanie „model wskazuje spadek po uwzględnieniu sezonu” opisuje wynik analizy. Przypisanie tego spadku konkretnej presji wymaga dalszych dowodów. Tak uporządkowany opis pozwala ocenić siłę wniosku bez ukrywania rzeczywistych sygnałów pogorszenia stanu przyrody. [118]
| Projekt badania | Najbardziej bezpośredni wynik | Warunek mocniejszego wnioskowania |
|---|---|---|
| Pojedynczy zapis fotograficzny | Obecność rozpoznanego organizmu | Dokumentacja oznaczenia i miejsca |
| Powtarzany transekt | Zmiana wskaźnika na stałej trasie | Zgodna metoda i pokrycie sezonu |
| Sieć stanowisk | Zróżnicowanie przestrzenne i czasowe | Reprezentatywność oraz kontrola wykrywalności |
| Eksperyment z kontrolą | Reakcja na zdefiniowany zabieg | Replikacja i ograniczenie czynników zakłócających |
| Synteza wielu badań | Wspólny wzorzec i jego zmienność | Zgodność miar oraz ocena doboru badań |
Opracowanie porównawcze na podstawie [115, 118, 119, 120].
Rekord obserwacji i ryzyko wymarcia
Zbiory muzealne oraz bazy obserwacji rozszerzają perspektywę historyczną. Zattara i Aizen analizowali światowe rekordy występowania pszczół i wykazali spadek liczby gatunków reprezentowanych w zapisach od lat 90. XX wieku. Autorzy rozważali zarówno rzeczywiste zmiany różnorodności, jak i nierównomierność gromadzenia danych. Taki wynik stanowi sygnał wymagający dalszego badania; nie jest listą gatunków, których wymarcie zostało potwierdzone. Wartość tych baz rośnie dzięki poprawnemu oznaczeniu okazów, uzupełnianiu metadanych i udostępnianiu starszych zbiorów. [121]
Kategoria zagrożenia jest osobną oceną. System IUCN wykorzystuje kryteria dotyczące między innymi spadku populacji, wielkości zasięgu i liczebności. Kategoria „niedostateczne dane” nie oznacza bezpieczeństwa gatunku, a brak oceny nie stanowi dowodu braku zagrożeń. Z kolei wysoki udział gatunków zagrożonych w starannie wybranej grupie nie może być automatycznie przenoszony na wszystkie owady. Ocena taksonu, stan lokalnej populacji i zbiorczy wskaźnik ekologiczny powinny pozostać rozpoznawalnymi, odrębnymi wynikami. [122]
Rozdział 22Co pokazują badania zmian populacji
Najlepszy obraz zmian powstaje z zestawienia badań o jasno opisanym zakresie. Rozbieżności między wynikami mogą wynikać z odmiennych siedlisk, grup organizmów i okresów obserwacji. Wspólnym zadaniem jest wyjaśnienie, gdzie następuje pogorszenie, gdzie poprawa i jakie mechanizmy odpowiadają za oba zjawiska. W poniższym zestawieniu wartości zachowują własne jednostki; nie tworzą jednego rankingu tempa zanikania owadów.
Niemieckie obszary chronione i biomasa latających owadów
Hallmann i współautorzy wykorzystali odłowy pułapkami Malaise’a z 63 obszarów chronionych w Niemczech z lat 1989–2016. Zbiór obejmował 96 kombinacji lokalizacji i roku, a nie pełną, coroczną serię ze wszystkich stanowisk. Model wskazał spadek sezonowej biomasy o 76,7%; wynik dotyczący środka lata wynosił 81,6%. Powtórna analiza stanowisk badanych w więcej niż jednym roku dała podobny obraz. [123]
Siłą badania było utrzymanie standardu odłowu oraz uwzględnienie sezonowości. Ograniczeniem pozostaje zakres przestrzenny i taksonomiczny próby: dotyczyła ona latających organizmów wpadających do określonej pułapki. Wynik nie określa procentu wymarłych gatunków. Nie jest też bezpośrednim eksperymentem rozstrzygającym udział pojedynczego pestycydu, ocieplenia czy zmiany użytkowania. Wskazuje silną zmianę wybranej miary w badanym systemie i uzasadnia poszukiwanie mechanizmów. [123]
Metaanaliza środowisk lądowych i słodkowodnych
Van Klink i współautorzy zestawili 166 długoterminowych badań z 1676 stanowisk w 41 krajach. Dane obejmowały okresy mieszczące się między 1925 a 2018 rokiem. Średnie oszacowania wynosiły −8,81% na dekadę dla zespołów lądowych oraz +11,33% na dekadę dla słodkowodnych. W artykule roboczo połączono owady i pajęczaki, dlatego przy omawianiu wyników trzeba zachować to rozszerzenie zakresu. [124]
Różnice między sąsiadującymi stanowiskami były duże, a pokrycie geograficzne nierównomierne. Średnia metaanalityczna opisuje zebrane serie i model ich zmienności; nie jest spisem wszystkich osobników na Ziemi. Odpowiednia interpretacja obejmuje równocześnie kierunek średniej, rozrzut wyników i luki w danych. Wzrost w części wód nie kompensuje arytmetycznie spadku na lądzie, ponieważ porównywane środowiska, powierzchnie i jednostki próbkowania różnią się między sobą. [124]
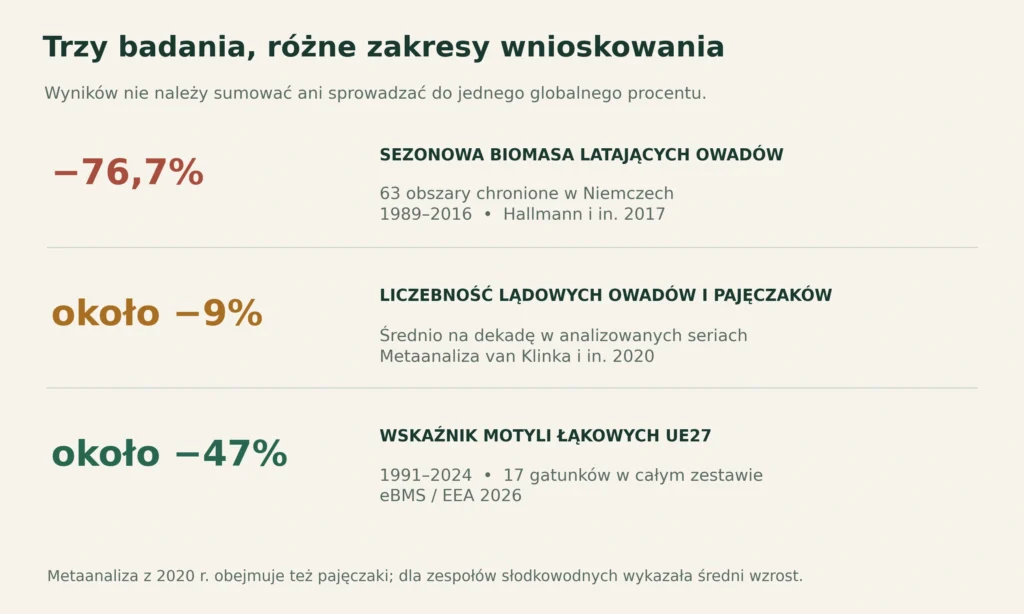
Motyle łąkowe Unii Europejskiej
Wskaźnik EEA i eBMS dla UE27 pokazuje spadek o około 47% między 1991 a 2024 rokiem. Dotyczy 17 wybranych gatunków motyli łąkowych. Jest wielogatunkowym wskaźnikiem zmian względnej liczebności, a nie odsetkiem zanikłych gatunków. EEA wiąże utrzymujący się niekorzystny obraz między innymi z utratą, degradacją i zmianą użytkowania siedlisk. Monitoring opiera się w dużym stopniu na pracy przeszkolonych wolontariuszy. [125]
W udostępnionym zbiorze wygładzony indeks, przy podstawie 100 w 1991 roku, osiąga w 2024 roku 52,65. Liczba gatunków wnoszących dane do szeregu zmienia się w czasie: we wczesnych latach jest ich siedem, później siedemnaście. Rozszerza się również pokrycie krajów. Wersję zestawu i sposób obliczenia wskaźnika należy zatem zachować razem z wykresem, aby kolejne aktualizacje można było uczciwie porównać. Wykres kompendium prezentuje serię wygładzoną; szczegółowe objaśnienia niepewności znajdują się przy dołączonych danych. [126]
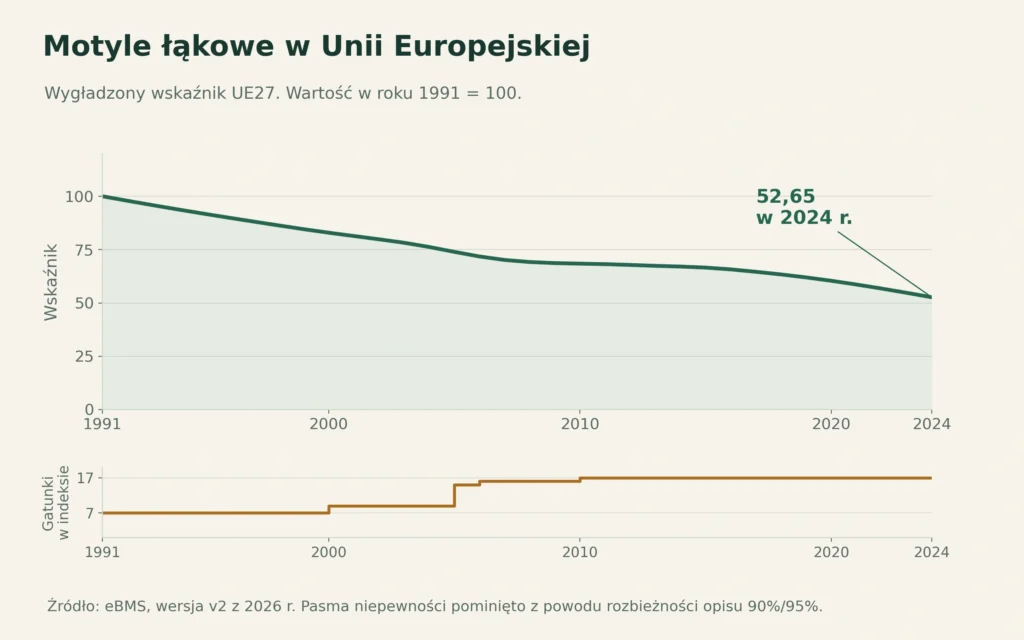
Dziewięć dekad w Szwajcarii i przesunięta baza porównawcza
Neff i współautorzy odtworzyli zmiany na podstawie około 1,2 mln rekordów 595 gatunków chrząszczy saproksylicznych oraz 216 gatunków grupy obejmującej motyle dzienne i kraśniki. Analiza dotyczyła lat 1930–2021 oraz bogactwa w jednostkach przestrzennych 5 × 5 km, szacowanego z modeli występowania. Dla motyli wynik całego okresu wyniósł −12,0%, natomiast ograniczenie analizy do ostatnich czterech dekad dawało +6,5%. [127]
To szczególnie czytelny przykład znaczenia punktu odniesienia. Poprawa względem historycznego minimum nie musi oznaczać powrotu do stanu wcześniejszego. Równocześnie bogactwo lokalne może zmieniać się wskutek pojawiania gatunków ciepłolubnych i ustępowania chłodnolubnych. Artykuł nie dostarcza procentowej zmiany liczby wszystkich osobników. Jego wkładem jest długi kontekst historyczny oraz pokazanie, że cel odtwarzania przyrody trzeba formułować świadomie, z uwzględnieniem składu zespołu. [127]
| Badanie | Miara i zakres | Wynik | Czego nie należy z niego wyprowadzać |
|---|---|---|---|
| Hallmann i in. 2017 | Sezonowa biomasa latających owadów, Niemcy, 1989–2016 | −76,7% | Procent wymarłych gatunków na świecie |
| van Klink i in. 2020 | Średni trend zespołów lądowych w zebranych seriach | −8,81% na dekadę | Jednolity trend każdego kraju |
| van Klink i in. 2020 | Średni trend zespołów słodkowodnych | +11,33% na dekadę | Gwarancja dalszej poprawy |
| EEA i eBMS 2026 | Wskaźnik 17 gatunków motyli łąkowych, UE27, 1991–2024 | Około −47% | Wskaźnik wyłącznie dla Polski |
| Neff i in. 2026 | Modelowane bogactwo motyli, Szwajcaria, 1930–2021 | −12,0% | Zmiana liczebności wszystkich owadów |
Źródła tabeli: [123, 124, 125, 127].
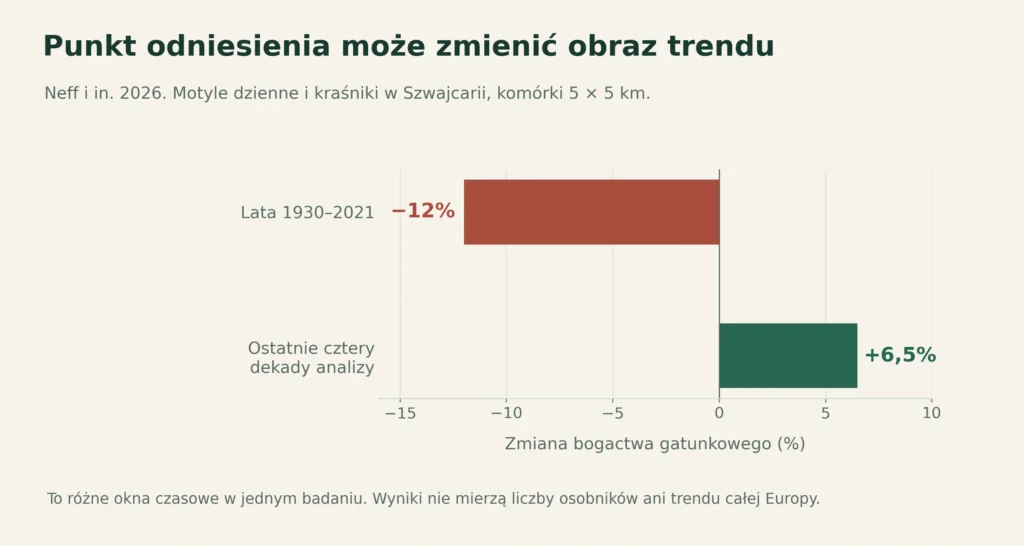
Poprawa może zwolnić lub się zatrzymać
Haase i współautorzy przeanalizowali 1816 szeregów zespołów bezkręgowców słodkowodnych z 22 krajów europejskich, obejmujących lata 1968–2020. Poprawa różnorodności zachodziła przede wszystkim przed 2010 rokiem, po czym uległa wypłaszczeniu. Niższe prawdopodobieństwo odbudowy dotyczyło między innymi stanowisk poniżej zapór oraz w otoczeniu urbanizacji i upraw. Badanie obejmuje bezkręgowce, więc jego wynik nie powinien być podpisywany jako wyłącznie owadzi. [128]
W zestawieniu z wcześniejszą metaanalizą otrzymujemy zgodny logicznie obraz: dodatni średni trend z długiego okresu może współistnieć z późniejszą stagnacją. Nie należy więc mechanicznie przedłużać historycznego tempa zmian. Monitoring służy również do wykrywania momentu, w którym dotychczasowe działania przestają przynosić oczekiwany efekt. [128]
Rozdział 23Zagrożenia i mechanizmy zmian
Presje środowiskowe działają na rozród, przeżywalność, przemieszczanie i dostęp do zasobów. Ich znaczenie zależy od gatunku oraz etapu rozwoju. Dla jednego owada ograniczeniem może być brak rośliny żywicielskiej, dla innego odpowiedniego drewna lub warunków wodnych. W ocenie zagrożeń potrzebna jest zarówno mapa siedlisk, jak i wiedza o zależnościach organizmu. Samo wyliczenie potencjalnych presji nie wyjaśnia jeszcze konkretnego zaniku.
Procesy zachodzące poza granicą stanowiska
Seibold i współautorzy badali stawonogi na 150 powierzchniach trawiastych i 140 leśnych w trzech regionach Niemiec w latach 2008–2017. W corocznie badanych zbiorowiskach trawiastych odnotowano spadek biomasy, liczebności i liczby gatunków; silniejsze zmiany wiązały się z większym udziałem gruntów rolnych w krajobrazie. Zmiany leśne także obejmowały biomasę i bogactwo, lecz nie wszystkie miary zachowywały się identycznie. [129]
Wniosek dla ochrony jest przestrzenny: dobre warunki w małym płacie mogą nie wystarczyć, gdy otoczenie ogranicza przemieszczanie lub zwiększa presję. Stanowisko badawcze jest miejscem pomiaru, nie zamkniętym ekosystemem. Oceniając jego los, należy rozważyć procesy działające w szerszym krajobrazie i zachować rozróżnienie między owadami a całym zespołem stawonogów. [129]
Fragmentacja i czas odpowiedzi
Krauss i współautorzy porównali rośliny oraz motyle w 147 fragmentach europejskich muraw i łąk. Bogactwo specjalistycznych roślin było związane również z historycznym układem siedlisk, podczas gdy dla badanych motyli nie wykazano analogicznego, wieloletniego długu wymierania. Organizmy o różnej długości życia i zdolności przemieszczania mogą więc reagować w odmiennym tempie. [130]
Ta różnica zmienia sposób planowania działań. Obecność gatunku tuż po przekształceniu siedliska nie musi dowodzić trwałej odporności populacji, ale również nie każde późniejsze pogorszenie można przypisać odległej zmianie bez sprawdzenia danych. Należy badać konkretny układ przestrzenny, historię użytkowania i grupę organizmów. Łączność siedlisk jest funkcjonalna: znaczenie mają odległości oraz warunki, przez które zwierzę musi się przemieścić. [130]
Ocieplenie połączone z intensywnym rolnictwem
Outhwaite, McCann i Newbold wykazali, że połączenie silnego historycznego ocieplenia z intensywnym użytkowaniem rolniczym wiązało się z prawie 50% niższą liczebnością oraz 27% mniejszą liczbą gatunków niż w mniej przekształconych i słabiej ocieplonych warunkach. Są to różnice między porównywanymi układami, a nie spadek całej światowej populacji od jednego roku bazowego. [131]
Dostępność naturalnych siedlisk w otoczeniu łagodziła niekorzystne zależności przede wszystkim w mniej intensywnych systemach rolniczych. Taki wynik przemawia za łączeniem ochrony krajobrazu, ograniczania presji rolniczej i działań klimatycznych. Nie uzasadnia przypisywania każdemu niewielkiemu pasowi zieleni stałej, uniwersalnej skuteczności. Reakcja zależy od skali przemian i od tego, czy pozostałe warunki pozwalają owadom korzystać z zachowanych zasobów. [131]
Ekstrema termiczne i przesuwanie rozmieszczenia
Średnia temperatura nie opisuje wszystkich biologicznie istotnych zmian klimatu. Soroye, Newbold i Kerr analizowali rozmieszczenie trzmieli w Europie oraz Ameryce Północnej. Wykazali, że częstsze występowanie temperatur przekraczających historycznie obserwowane tolerancje pomaga wyjaśnić lokalne zaniki, ograniczoną kolonizację i zmiany zajętości. Analiza obejmowała 66 gatunków, a jej przedmiotem była dynamika rozmieszczenia, nie liczba wszystkich robotnic. [132]
Wynik kieruje uwagę na warunki skrajne oraz na różnicę między utratą dotychczasowego obszaru a zajmowaniem nowego. Nie można zakładać, że gatunek automatycznie przeniesie się w każde miejsce, które stało się cieplejsze lub chłodniejsze. W ocenie przyszłego stanu trzeba zestawić tolerancję organizmu z dostępnością siedliska i możliwością jego zasiedlenia. Zysk gatunków korzystających z ocieplenia nie jest też równoważny zachowaniu dawnych zespołów. [132]
Pestycydy i rzeczywista ekspozycja
Woodcock i współautorzy przeprowadzili duże doświadczenia polowe na rzepaku w Wielkiej Brytanii, Niemczech i na Węgrzech. Oceniano zaprawy neonikotynoidowe oraz reakcje pszczoły miodnej, trzmiela ziemnego i murarki ogrodowej. Wyniki dla rodzin pszczoły miodnej różniły się między krajami, natomiast rozród badanych dzikich pszczół był ujemnie powiązany z pozostałościami neonikotynoidów. [133]
Ocena ryzyka wymaga zatem uwzględnienia substancji, dawki, drogi narażenia, czasu, gatunku i warunków otoczenia. Wynik laboratoryjny pomaga rozpoznać mechanizm, doświadczenie terenowe pokazuje skutki w konkretnym systemie, a monitoring krajobrazowy bada ich szerszy kontekst. Przeniesienie wniosku między tymi skalami wymaga uzasadnienia. Unikanie zbędnej ekspozycji organizmów niebędących celem zabiegu pozostaje ważnym kierunkiem postępowania. [133]
Sztuczne światło obejmuje więcej niż dorosłe ćmy
Boyes i współautorzy porównali oświetlone oraz nieoświetlone fragmenty żywopłotów i trawiastych poboczy. Liczebność gąsienic była niższa odpowiednio o 47% i 33% w miejscach oświetlonych. Oddzielny eksperyment wykazał zaburzenie nocnego żerowania gąsienic. Silniejsze efekty obserwowano przy białych diodach LED niż przy badanych lampach sodowych. [134]
Znaczenie tego badania polega na objęciu mniej mobilnego stadium rozwojowego. Wpływ oświetlenia nie ogranicza się do przywabiania dorosłych owadów do lampy. Dla zarządzania przestrzenią istotne są kierunek emisji, czas działania, natężenie i widmo światła. Utrzymywanie ciemnych fragmentów siedliska powinno być planowane z uwzględnieniem potrzeb miejsca i funkcji oświetlenia; badanie nie wskazuje jednego procentu strat dla wszystkich nocnych owadów. [134]
| Presja | Proces wymagający sprawdzenia | Pytanie dla danego miejsca |
|---|---|---|
| Utrata siedliska | Zanik zasobów i miejsca rozrodu | Czy pozostał pełny zestaw warunków życia |
| Fragmentacja | Ograniczenie wymiany między płatami | Czy gatunek może pokonać istniejące bariery |
| Intensywne użytkowanie i klimat | Nakładanie się stresorów | Które działania zmniejszą rzeczywiste narażenie |
| Pestycydy | Ekspozycja organizmów niecelowych | Kiedy i jak dochodzi do kontaktu z substancją |
| Światło nocne | Zaburzenie aktywności i rozwoju | Gdzie można ograniczyć oświetlanie siedliska |
Opracowanie interpretacyjne na podstawie [129, 131, 133, 134, 130].
Rozdział 24Ochrona całego cyklu życia
Skuteczny projekt ochronny powinien wskazywać organizmy, zasób ograniczający ich przetrwanie oraz sposób sprawdzenia wyniku. Samo wykonanie prac nie jest jeszcze dowodem poprawy stanu populacji. Warto oddzielać mierniki realizacji, takie jak powierzchnia zabiegu, od mierników efektu, takich jak utrzymanie rozrodu lub zasiedlenia. Poniższe przykłady pokazują, dlaczego właściwa diagnoza biologiczna jest równie ważna jak skala działania.
Najpierw rozpoznanie zależności
Klasyczne badanie Thomasa, Simcoxa i Clarke’a dotyczyło odwrócenia spadku modraszka ariona, opisywanego w publikacji jako Maculinea arion. Rozwój jego larw jest związany ze społeczeństwami mrówek Myrmica. Zmiany wypasu i struktury roślinności sprzyjały zastępowaniu właściwego gospodarza przez podobne, lecz nieodpowiednie gatunki mrówek. Po rozpoznaniu mechanizmu odpowiednie zarządzanie siedliskiem pozwoliło zweryfikować przewidywania odbudowy na sieci stanowisk. [135]
Przykład wyjaśnia, dlaczego obecność kwiatów dla dorosłych motyli może nie wystarczyć. Ochrona obejmuje również wcześniejsze stadia i organizmy, od których są one zależne. Przygotowanie siedliska do odtworzenia populacji wymaga sprawdzenia tych relacji przed przenoszeniem zwierząt. Powodzenie jednego programu jest argumentem za badaniem mechanizmu, a nie gotową instrukcją reintrodukcji każdego motyla. [135]
Koszenie jako zabieg i jako zaburzenie
Berger i współautorzy wykorzystali 11 lat danych ze 111 niemieckich powierzchni rolniczych. Analizowali pająki, chrząszcze, pluskwiaki i prostoskrzydłe. Koszenie silnie obniżało rejestrowaną liczebność, a wraz z upływem czasu od zabiegu następowała odbudowa. Autorzy wskazali ograniczenie częstotliwości, pozostawianie nieskoszonych ostoi i odpowiedni ekstensywny wypas jako działania o dużym potencjale. [136]
Z perspektywy zarządzania łąką trzeba pogodzić dwa cele: utrzymać otwarte siedlisko i ograniczać straty podczas prac. Termin, częstotliwość, technika oraz przestrzenna mozaika zabiegów powinny wynikać z miejscowych warunków. Pozostawiona ostoja musi zachowywać zasoby w okresie, gdy pozostała część terenu jest przekształcana. Wniosku nie należy redukować do jednego kalendarza koszenia dla wszystkich gatunków i typów łąk. [136]
Kwiaty muszą pasować do potrzeb i pory roku
Scheper i współautorzy badali pasy kwietne w czterech krajach europejskich, porównując sytuację przed ich założeniem i po nim oraz wykorzystując powierzchnie kontrolne. Pasy na ogół zwiększały lokalną liczebność i bogactwo dzikich pszczół, ale skuteczność zależała od poprawy różnorodności kwiatów i zasobów w krajobrazie. Trzmiele oraz pszczoły samotnice reagowały odmiennie. [120]
Plan nasadzeń powinien więc uwzględniać dostępność pokarmu przez sezon i trwałość roślinności. Sama liczba wysianych gatunków nie opisuje tego, ile zasobów faktycznie powstanie w kolejnym roku. W ocenie efektu przydatne są zarówno dane o kwiatach, jak i o korzystających z nich owadach. Badanie z kontrolą pomaga odróżnić efekt działania od różnic pogodowych między sezonami. [120]
Domki dla owadów i granice ich zastosowania
MacIvor i Packer sprawdzali użytkowników sztucznych miejsc gniazdowych. Konstrukcje mogą wspierać część gatunków gniazdujących w istniejących otworach, lecz nie zapewniają miejsc rozwoju wszystkim pszczołom. W ich badaniu znaczenie miały również gatunki obce, osy oraz pasożyty. Autorzy przestrzegali przed traktowaniem samego zasiedlenia hotelu jako wystarczającego dowodu korzyści dla rodzimych zapylaczy. [137]
Domek może być wartościowym narzędziem edukacyjnym lub elementem dobrze zaplanowanego działania. Wcześniej należy jednak określić, dla jakiej grupy jest przeznaczony, jakie ma otoczenie pokarmowe i jak będzie oceniany jego stan. Ochrona obejmuje także naturalne struktury siedliska, w tym glebę, łodygi i drewno. Jedna konstrukcja nie zastępuje całej różnorodności miejsc gniazdowych. [137]
Pszczoła miodna i dzikie zapylacze
Henry i Rodet badali relacje dzikich pszczół oraz pszczoły miodnej w śródziemnomorskim obszarze chronionym. Wzorce występowania i wykorzystania pokarmu były zgodne z konkurencją przy dużym zagęszczeniu rodzin hodowlanych. Badanie było osadzone w konkretnym krajobrazie, a jego wyniki nie określają uniwersalnej, dopuszczalnej obsady pasiek. [138]
Zwiększanie liczby uli jest działaniem pszczelarskim, którego skutki dla dzikich zapylaczy wymagają osobnej oceny. Rozstrzygające pytania dotyczą dostępności kwiatów, sezonu, lokalizacji pasiek i wrażliwych gatunków. Ochrona różnorodności zapylaczy wymaga uwzględnienia całej wspólnoty, również organizmów niewytwarzających produktów użytkowych. [138]
| Cel | Element do rozpoznania | Przykładowy miernik efektu |
|---|---|---|
| Zachowanie rozrodu | Miejsce rozwoju jaj i larw | Powtarzalne stwierdzenia rozwoju |
| Ochrona specjalisty | Roślina, gospodarz lub mikrosiedlisko | Trwanie właściwej interakcji |
| Poprawa bazy pokarmowej | Dostępność kwiatów w sezonie | Użytkowanie przez docelowe grupy |
| Zmiana koszenia | Terminy oraz rozmieszczenie ostoi | Trend na powierzchniach z zabiegiem i bez niego |
| Zarządzanie gniazdowaniem | Rodzaj miejsc gniazdowych | Tożsamość użytkowników i sukces rozwoju |
| Ocena pasiek | Zasoby i dzikie zapylacze w otoczeniu | Reakcja całej badanej wspólnoty |
Tabela przedstawia autorską strukturę planowania, opartą na mechanizmach opisanych w [136, 137, 138, 135, 120].
Plan powinien zawierać także termin ponownej oceny i warunek zmiany postępowania. Jeżeli roślinność rozwija się inaczej niż przewidywano albo docelowa grupa nie korzysta z terenu, potrzebna jest korekta diagnozy. Taka elastyczność pozwala traktować monitoring jako część ochrony, a nie końcowy dodatek do gotowej inwestycji.
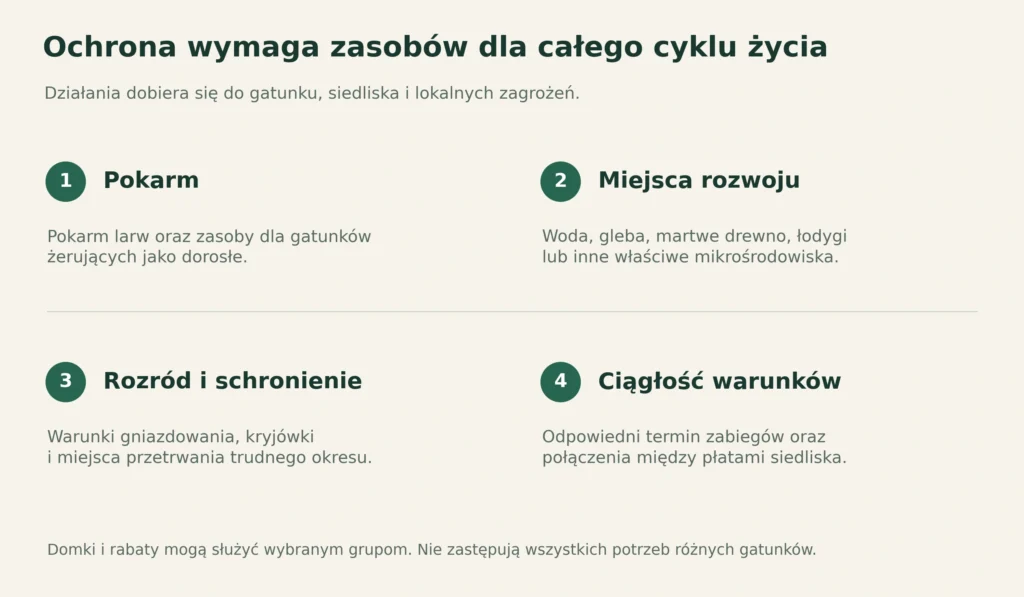
Rozdział 25Monitoring i nauka obywatelska
Wartość obserwacji rośnie, gdy kolejna osoba może zrozumieć, co i jak zrobiono. Dobrze udokumentowany, skromny projekt daje mocniejszą podstawę porównania niż duży zbiór niezgodnych zapisów. Przed rozpoczęciem należy ustalić cel, grupę organizmów, przestrzeń obserwacji oraz zasady zapisu. Pomocne jest włączenie się do istniejącego programu, który zapewnia procedurę i kontrolę jakości. [139]
Stała trasa i powtarzanie obserwacji
Metoda Pollarda opiera się na liczeniu motyli wzdłuż ustalonego transektu. Dzięki powtarzalności można porównywać wskaźniki między sezonami, a podział trasy na odcinki pozwala odnieść wyniki do siedliska i jego zmian. Projekt służy badaniu dynamiki, dlatego wybór trasy nie powinien być codziennie dostosowywany do miejsca, w którym akurat najłatwiej znaleźć owady. Zmiana trasy powinna być zapisana jako zmiana projektu, a nie ukryta w ciągłym szeregu danych. [119]
eBMS wykorzystuje transekty jako podstawę monitoringu motyli dziennych. Zaleca regularne wizyty w sezonie oraz obserwacje w odpowiedniej pogodzie. Dodatkową metodą są 15-minutowe liczenia, określane jako Motylowy Kwadrans. Każda metoda ma własny protokół; dane nie powinny być łączone przez proste sumowanie bez uwzględnienia różnic w wysiłku i sposobie zbierania. Szczegóły należy sprawdzać w aktualnej instrukcji programu. W Motylowym Spacerze eBMS przestrzeń zliczania sięga 2,5 m na lewo i na prawo od obserwatora oraz 5 m przed niego i 5 m w górę. Są to granice konkretnej procedury, które trzeba zachować podczas kolejnych wizyt. [140]
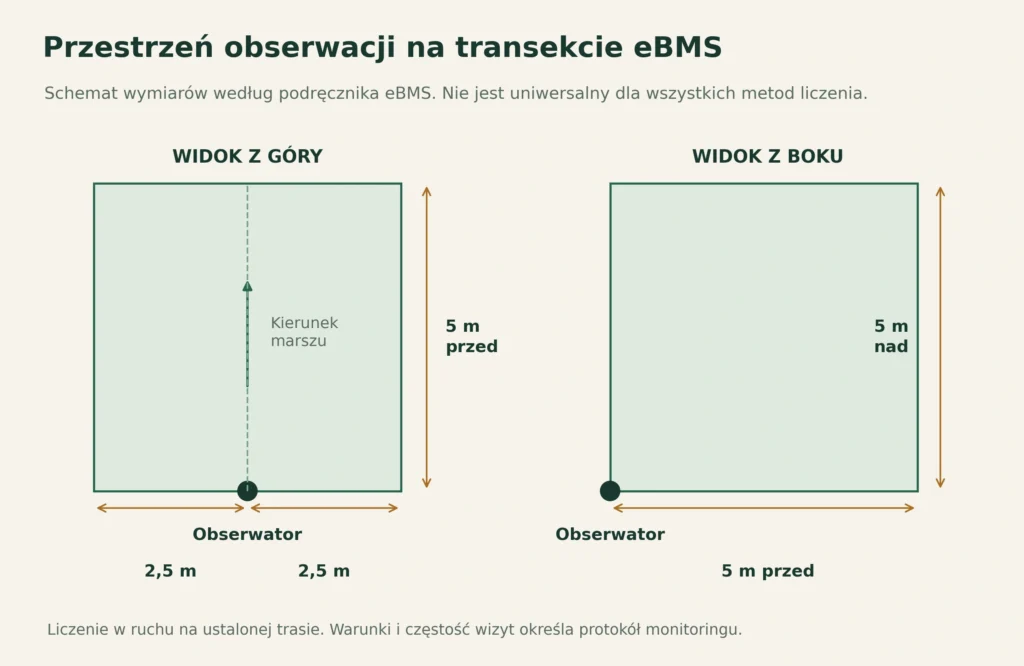
Notatka terenowa jest częścią pomiaru
Własny arkusz może pomagać w organizacji obserwacji, lecz w programie monitoringowym pierwszeństwo ma jego oficjalny formularz. Poniższa lista porządkuje informacje do zapisania. Warunki dopuszczalne dla konkretnej metody, w tym pogodę, określa właściwa instrukcja. Dokumentacja powinna zachowywać lokalizację, czas, metodę, jednostkę pomiaru i wysiłek obserwacji. [140, 117]
| Pole | Co zapisać | Znaczenie dla porównania |
|---|---|---|
| Identyfikator miejsca | Stały kod i położenie | Łączenie kolejnych wizyt |
| Data i czas | Początek, koniec, przerwy | Wysiłek i pora aktywności |
| Metoda | Nazwa protokołu i wersja | Zgodność sposobu liczenia |
| Obserwator | Identyfikator osoby lub zespołu | Kontrola zmian wykonawcy |
| Pogoda | Parametry wymagane w protokole | Warunki wykrywania |
| Siedlisko | Roślinność oraz świeże zabiegi | Kontekst ekologiczny |
| Takson | Najdokładniejsze pewne oznaczenie | Ograniczenie błędów identyfikacji |
| Stadium i liczba | Dane zgodne z metodą | Jednoznaczność pomiaru |
| Dokumentacja | Identyfikator zdjęcia lub okazu referencyjnego | Możliwość weryfikacji |
| Odstępstwa | Przerwana wizyta, zmiana trasy, awaria | Właściwa ocena jakości |
Autorski układ arkusza na podstawie zasad dokumentacji [119, 117]; wymagania pogodowe według właściwego protokołu [140].
Brak obserwacji powinien być interpretowany z uwzględnieniem tego, czy wizyta faktycznie się odbyła i czy dotyczyła danego gatunku. Puste pole, brak wizyty oraz wynik zerowy są różnymi informacjami. [117] Podobnie niepewne oznaczenie nie powinno otrzymywać nazwy gatunkowej tylko po to, aby tabela była kompletna. Poprawny zapis szerszej grupy wraz ze zdjęciem może być bardziej użyteczny niż błędna pewność.
Nowe technologie i ich rzeczywisty sygnał
Współczesne narzędzia obejmują automatyczne obrazowanie, analizę dźwięków, radar i metody molekularne. Przegląd van Klinka i współautorów pokazuje ich potencjał w zwiększaniu częstotliwości oraz zasięgu obserwacji. Każda technika rejestruje jednak inny sygnał. Kamera rozpoznaje widoczne cechy, mikrofon odgłosy, a radar ruch obiektów w swojej przestrzeni pomiarowej. Walidacja wymaga porównania z poprawnie oznaczonym materiałem i kontrolą terenową. [141]
Wynik modelu rozpoznającego zdjęcie powinien zachowywać informację o niepewności. Należy szczególnie kontrolować rzadkie gatunki, nowe obszary zastosowania i słabo widoczne cechy diagnostyczne. Dobry system umożliwia powrót do obrazu źródłowego oraz odróżnienie oznaczenia automatycznego od zatwierdzonego przez człowieka. Rozwój automatyzacji zwiększa znaczenie dobrze opracowanych zbiorów referencyjnych. [141]
| Technika | Rejestrowany sygnał | Kluczowe ograniczenie |
|---|---|---|
| Obserwacja wizualna | Dostrzegalne osobniki | Pogoda i wykrywalność |
| Kamera | Obrazy w polu widzenia | Widoczność cech i błędy klasyfikacji |
| Rejestracja akustyczna | Dźwięki aktywnych organizmów | Milczące gatunki i zakłócenia |
| Radar | Ruch i charakterystyka obiektów | Rozdzielczość oznaczenia taksonu |
| Metabarkoding DNA | Sekwencje z próbki zbiorczej | Błędy amplifikacji i niepełna baza odniesienia |
Elbrecht i Leese wykazali doświadczalnie, że podobna biomasa różnych taksonów bezkręgowców może dawać bardzo odmienne liczby odczytów DNA. Istotna jest między innymi wydajność starterów używanych w reakcji PCR. Liczba sekwencji nie powinna więc być bez kalibracji traktowana jako liczba osobników. Metabarkoding jest użyteczny w rozpoznawaniu składu próbki, lecz oszacowanie ilościowe wymaga dodatkowej walidacji właściwej metodzie i organizmom. [142]
Jak ocenić skuteczność własnego działania
Przed zabiegiem warto określić, jaka zmiana będzie uznana za sukces i w jakim czasie można jej oczekiwać. Porównanie przed i po jest mocniejsze, gdy obejmuje również odpowiednią powierzchnię bez zabiegu; taką logikę zastosowano w opisanym doświadczeniu z pasami kwietnymi. Dzięki temu korzystny sezon nie zostaje automatycznie przypisany nowej metodzie zarządzania. [120]
W praktyce plan analizy powinien poprzedzać gromadzenie danych. Należy ustalić, które wizyty będą porównywane, co oznacza brak danych i jak traktować zmianę protokołu. Po zakończeniu sezonu warto zachować zarówno surowe zapisy, jak i objaśnienia korekt. Pozwala to sprawdzić wynik po latach i wykorzystać wysiłek obserwatorów w kolejnych analizach.
Dlaczego potrzebne są niezależne powierzchnie
Projekt określany skrótem BACI porównuje stan przed zmianą i po niej na powierzchniach objętych oddziaływaniem oraz kontrolnych. Underwood pokazał, że pojedyncza kontrola może być niewystarczająca, ponieważ każde miejsce ma własną zmienność. Powtórzenia przestrzenne i czasowe pomagają oddzielić efekt interwencji od różnic charakterystycznych dla stanowiska. Wielokrotne wizyty na jednej powierzchni dostarczają ważnych informacji, lecz nie zastępują niezależnych powierzchni w badaniu tego, czy działanie sprawdza się w różnych miejscach. [143]
W projekcie ochrony owadów oznacza to potrzebę realistycznego określenia zasięgu wniosku. Jeżeli porównano dwie konkretne łąki, wynik należy przedstawić jako ocenę tych miejsc i danego zabiegu. Uogólnienie na wszystkie łąki wymaga szerszej podstawy. Planowanie replikacji powinno uwzględniać zmienność siedlisk, możliwość powtarzania obserwacji oraz zasoby zespołu. Dobre uzasadnienie projektu jest ważniejsze niż samo użycie nazwy zaawansowanej metody statystycznej. [143]
Odbiorca raportu powinien móc odtworzyć tok porównania: wskazać jednostkę obserwacji, znaleźć surowy zapis i rozpoznać, które pomiary są niezależne. Dlatego warto obok wykresu podać liczbę miejsc oraz liczbę wizyt, zamiast ukrywać obie wartości pod jednym określeniem „próba”. Nie wymaga to rozbudowanej matematyki w tekście popularnonaukowym. Wymaga konsekwencji w opisie tego, co rzeczywiście wykonano.
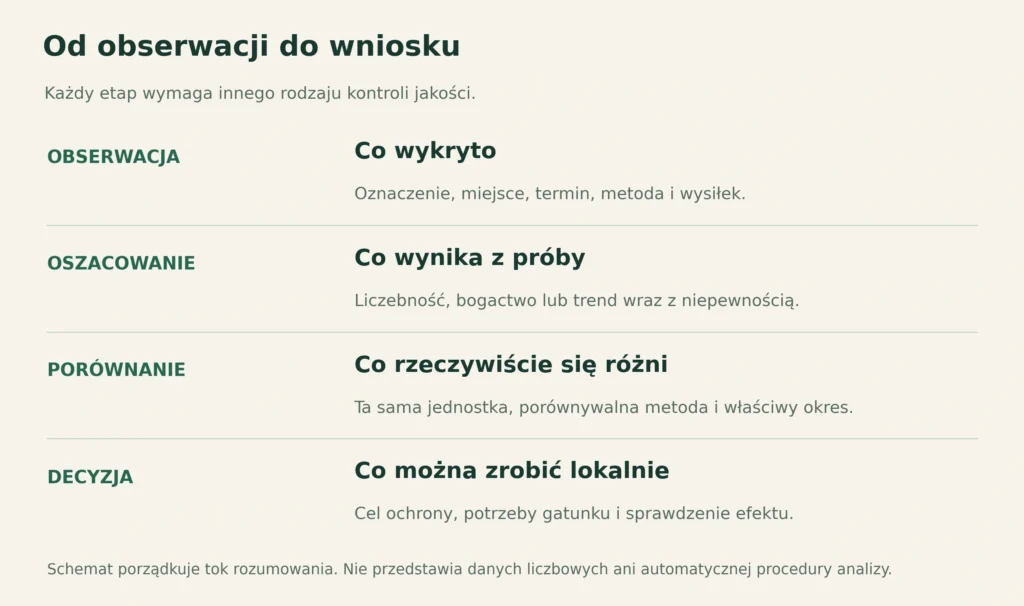
Rozdział 26Polska w krajobrazie europejskich badań
Polskie obserwacje mają największą wartość, gdy łączą wiedzę o lokalnej biologii z metodą pozwalającą na porównanie. Europejski wskaźnik wskazuje kierunek szerszych zmian, natomiast decyzja o konkretnej łące, parku czy kompleksie leśnym wymaga rozpoznania miejscowego. Nie ma potrzeby wybierania między tymi skalami: odpowiadają na odmienne pytania i mogą się wzajemnie uzupełniać.
Łąki pod presją zabudowy i sukcesji
Kajzer-Bonk i Nowicki analizowali przez dwie dekady dwa zagrożone modraszki z rodzaju Phengaris w krajobrazie obejmującym początkowo 70 płatów siedliska. Blisko połowa płatów pozostawała nieużytkowana, a około jedna czwarta została bezpośrednio zniszczona przez zabudowę. Niekorzystne skutki dotyczyły również zalesiania oraz zarastania łąk. Bezpośrednia zabudowa szczególnie silnie ograniczała badane populacje. [144]
Badanie pokazuje, dlaczego ochrona łąki nie zawsze polega na zaniechaniu wszystkich prac. W siedlisku zależnym od ekstensywnego użytkowania zarastanie może usuwać warunki potrzebne specjaliście. Również sadzenie drzew na cennej łące wymaga oceny dotychczasowych wartości przyrodniczych. Wniosek dotyczy konkretnych siedlisk otwartych i nie podważa potrzeby ochrony lasów. [144]
Roślina żywicielska i lokalna populacja
Krzosek i Nowicki badali modraszka alkona oraz jego wilgotne siedliska w krajobrazie miejskim, wykorzystując monitoring z lat 2003–2022. Analizowano zabudowę, zalesianie i sukcesję po zaprzestaniu użytkowania. Zmiany dotyczyły zarówno motyli, jak i zagęszczenia roślin żywicielskich. W tym systemie ważną rolę odgrywa goryczka wąskolistna, Gentiana pneumonanthe. [145]
Jest to przykład monitoringu mechanizmu, a nie wyłącznie liczenia dorosłych. Spadek jakości siedliska może być widoczny w zasobach potrzebnych wcześniejszym etapom życia. Śledzenie rośliny, stanu płatu i populacji pomaga wskazać, który element wymaga interwencji. Jednocześnie podobny krajobraz nie gwarantuje identycznej hierarchii zagrożeń dla dwóch spokrewnionych gatunków. [145]
Miejskie nieużytki jako fragmenty siedliska
Pietrzak i Pabis badali w latach 2019–2020 pięć miejskich nieużytków w Łodzi. Stwierdzili 46 gatunków motyli, a poszczególne powierzchnie mieściły od 34 do 41 gatunków. Zespoły łączyły organizmy związane z różnymi typami siedlisk i wykazywały wyraźną sezonowość. Wynik pokazuje przyrodniczą wartość niewielkich fragmentów roślinności ruderalnej. [146]
Nie oznacza to, że dowolny nieużytek zastępuje siedlisko naturalne albo że duża lokalna lista gatunków dowodzi trwałości ich rozrodu. W planowaniu zieleni potrzebne są rozpoznanie składu, ciągłość zasobów i relacje z otoczeniem. Badanie terenowe pozwala zauważyć wartości, które łatwo przeoczyć, oceniając teren jedynie przez jego formalną funkcję lub estetykę. [146]
| Przykład | Zakres obserwacji | Najważniejsza lekcja |
|---|---|---|
| Modraszki w krajobrazie podmiejskim | Dwie dekady, początkowo 70 płatów | Zabudowa, zalesianie i zarastanie działają odmiennymi drogami |
| Modraszek alkon | Populacje i rośliny żywicielskie, 2003–2022 | Monitoring powinien obejmować zasoby rozwojowe |
| Nieużytki Łodzi | Pięć powierzchni, 2019–2020 | Małe fragmenty zieleni wymagają oceny przyrodniczej |
| BMS Polska | Powtarzalne transekty i dokumentacja | Wspólny protokół umożliwia udział w szerszej sieci |
Źródła tabeli: [139, 144, 145, 146].
Udział w BMS Polska
Polski program udostępnia instrukcję transektu, arkusz terenowy i poradnik oznaczania wybranych motyli. Przed założeniem trasy zaleca kontakt z koordynatorami, aby właściwie wybrać miejsce i dopasować obserwacje do sieci. Początkująca osoba może zacząć od nauki pospolitych gatunków i regularnego dokumentowania obserwacji; kluczowe są rzetelność oznaczeń oraz gotowość do przestrzegania metody. [139]
W europejskim zestawie wykorzystanym do wskaźnika 1991–2024 polskie dane zaczynają się w 2019 roku. Nie należy więc przedstawiać całej europejskiej krzywej jako szeregu pomiarowego prowadzonego w Polsce od początku lat 90. Rozwijająca się krajowa sieć zwiększa podstawę przyszłych ocen, lecz krótki okres wymaga ostrożności w oddzielaniu trendu od wahań między sezonami. [126]
Dla obserwatora najbardziej użytecznym celem jest pozostawienie materiału, który da się sprawdzić i połączyć z kolejnymi latami. Dla zarządcy terenu celem jest podtrzymanie konkretnych populacji oraz zasobów potrzebnych ich pełnemu cyklowi życia. Dla czytelnika danych podstawową umiejętnością pozostaje rozpoznanie, co zostało zmierzone i jak daleko sięga wynik. Te trzy perspektywy łączą wiedzę przyrodniczą z praktyczną odpowiedzialnością za stan siedlisk.
Pytania i pojęcia
Rozdział 27Najczęstsze pytania i błędy interpretacji
Poniższe odpowiedzi pomagają przełożyć informacje z kompendium na obserwacje, decyzje i ocenę popularnych twierdzeń. Punktem wyjścia jest zawsze to samo pytanie: co rzeczywiście zaobserwowano, a co dopiero wywnioskowano?
Czy lot owada można wyjaśnić tak samo jak lot samolotu?
Nie wystarczy potraktować jego skrzydła jak nieruchomej powierzchni. Skrzydła owada poruszają się i obracają, a warunki przepływu zmieniają się w trakcie uderzenia. Dlatego uproszczone obliczenie pomijające te ruchy może dawać błędny wynik. Nie świadczy to o naruszaniu praw fizyki, lecz o ograniczeniach modelu. Przy ocenie wyjaśnienia trzeba sprawdzić, jaki ruch skrzydła uwzględniono i które mechanizmy celowo uproszczono. [41]
Czy duże skupisko owadów oznacza społeczeństwo z królową?
Sama liczba osobników tego nie rozstrzyga. Wspólny pokarm lub miejsce gniazdowania mogą przyciągać organizmy, które nie tworzą kast rozrodczych. O eusocjalności mówi zestaw cech: współpraca przy potomstwie, podział funkcji rozrodczych i nakładanie się pokoleń. W praktycznej obserwacji warto więc zapytać, co osobniki robią wspólnie i które się rozmnażają. Zdjęcie tłumu dokumentuje skupienie, lecz nie wyjaśnia jeszcze jego organizacji. [60]
Czy każdy kawałek martwego drewna jest takim samym siedliskiem?
Nie. Znaczenie mają właściwości materiału i jego otoczenie, w tym mikroklimat oraz ekspozycja. Podobna ilość drewna nie musi zapewniać podobnego zestawu warunków dla chrząszczy. Ocena siedliska powinna zatem obejmować różnorodność substratów, a nie tylko ich sumaryczną obecność. Wniosek praktyczny nie polega na znalezieniu jednego „idealnego” kawałka: trzeba rozpoznać potrzeby grup, których występowanie chce się zachować lub wyjaśnić. [68]
Czy zapylacze to po prostu pszczoły?
Pszczoły są ważną częścią tej grupy, ale w zapylaniu upraw uczestniczą również inne owady. O znaczeniu odwiedzającego kwiat organizmu decyduje zarówno skuteczność pojedynczej wizyty, jak i częstość wizyt. Dlatego sama fotografia pszczoły albo lista najliczniejszych gości nie opisuje całej usługi. W obserwacjach warto zachowywać informacje o różnych grupach odwiedzających kwiaty, zamiast sprowadzać ocenę do liczby pszczół miodnych. [77]
Czy owad na uszkodzonym liściu oznacza konieczność zwalczania?
Nie podejmuje się decyzji na podstawie samego współwystępowania owada i uszkodzenia. Integrowana ochrona wymaga rozpoznania problemu, obserwacji jego rozwoju i oceny dostępnych metod. Praktyczne pytania brzmią: co powoduje szkodę, czy sytuacja narasta i jaki cel miałaby interwencja? Działanie powinno odpowiadać rozpoznanej potrzebie. Samo usunięcie wszystkich widocznych owadów nie jest miarą skutecznej ochrony roślin ani dowodem usunięcia przyczyny problemu. [91]
Czy więcej owadów oznacza większą różnorodność?
Nie musi. Dużo osobników może należeć do niewielu gatunków. Z kolei lista wielu gatunków nie mówi jeszcze, czy ich populacje są liczne. Warto osobno zapisywać liczbę osobników i liczbę rozpoznanych gatunków, zachowując tę samą metodę oraz wysiłek obserwacji. Jeżeli raport podaje tylko biomasę, nie można na jej podstawie odtworzyć wszystkich tych informacji. Każda miara odpowiada na inne pytanie. [114]
Czy niewykrycie owada dowodzi jego nieobecności?
Nie. Wynik wizyty zależy także od wykrywalności, więc zapis „nie zaobserwowano” jest precyzyjniejszy niż automatyczne stwierdzenie „nie występuje”. Powtarzane obserwacje pozwalają lepiej oddzielać te sytuacje. Nie oznacza to, że dowolna liczba powtórzeń usuwa niepewność: metoda i założenia muszą odpowiadać biologii badanego organizmu. W dokumentacji warto zachować również wizyty bez stwierdzeń, jeżeli wykonano je zgodnie z przyjętym projektem. [115]
Czy zasiedlony hotel dla owadów dowodzi sukcesu ochrony?
Dowodzi wykorzystania określonej konstrukcji, lecz ocena korzyści wymaga rozpoznania jej mieszkańców. Sztuczne otwory służą tylko części gatunków, a mogą korzystać z nich także organizmy inne niż zamierzeni odbiorcy działania. Dlatego sukcesu nie należy utożsamiać z liczbą zajętych otworów. Trzeba określić cel, sprawdzać użytkowników oraz uwzględniać otoczenie. Hotel pozostaje jednym elementem siedliska i nie zastępuje jego naturalnej różnorodności. [137]
Czy ochrona owadów na łące wymaga całkowitego zaprzestania koszenia?
Nie ma jednego zalecenia dla wszystkich łąk. Koszenie może powodować straty, a jednocześnie zarządzanie ma utrzymywać właściwe siedlisko. Rozwiązania wymagają dostosowania terminu, częstotliwości i przestrzennego układu zabiegów do lokalnych warunków. Nieskoszone ostoje mogą zachować zasoby w czasie prac na sąsiedniej części terenu. Pytanie powinno więc dotyczyć sposobu prowadzenia zabiegu i potrzeb chronionych organizmów, a nie wyłącznie odpowiedzi „kosić” albo „nie kosić”. [136]
Czy wyższy procent białka zawsze oznacza lepszy produkt z owadów?
Najpierw trzeba sprawdzić podstawę wyniku. Procent w suchej masie nie jest bezpośrednio porównywalny z procentem w świeżym produkcie. Znaczenie ma również metoda analizy: azot obecny w próbce nie pochodzi wyłącznie z białek. W praktyce warto porównywać jasno opisane produkty i zgodne jednostki. Sama duża liczba na etykiecie nie zastępuje informacji o składzie, zawartości wody i sposobie oznaczenia. [100]
Czy każda hodowla owadów ma mały wpływ na środowisko?
Nie można tego ustalić na podstawie samej grupy zwierząt. Analiza wymaga określenia systemu produkcji, jednostki porównania i granic uwzględnionych procesów. Wynik dotyczący jednej kategorii oddziaływania nie rozstrzyga pozostałych. Przed porównaniem dwóch produktów trzeba zatem sprawdzić, czy obliczenia obejmują podobne etapy i czy produkty pełnią podobną funkcję. Dobry wynik konkretnego systemu jest informacją o tym systemie, nie automatyczną oceną całego sektora. [101]
Czy kod DNA daje bezbłędną nazwę gatunku?
Sekwencję trzeba porównać z odpowiednio opisanym materiałem odniesienia. Rozpoznanie podobieństwa DNA i wyznaczenie granic gatunku są powiązanymi, lecz odrębnymi zadaniami. Dlatego wynik warto łączyć z budową organizmu, rozmieszczeniem i biologią. Sama zgodność z rekordem w bazie nie usuwa problemu błędnego przypisania nazwy, a jeden próg różnicy sekwencji nie stanowi uniwersalnej definicji gatunku. Technologia wspomaga rozpoznanie, lecz nie zastępuje oceny dowodów. [61, 62]
Dalej w atlasieGatunki i tematy z tego opracowania
Hasła gatunków omawianych w kompendium, z wymiarami, występowaniem i mapą.

Pszczoła miodna
Apis mellifera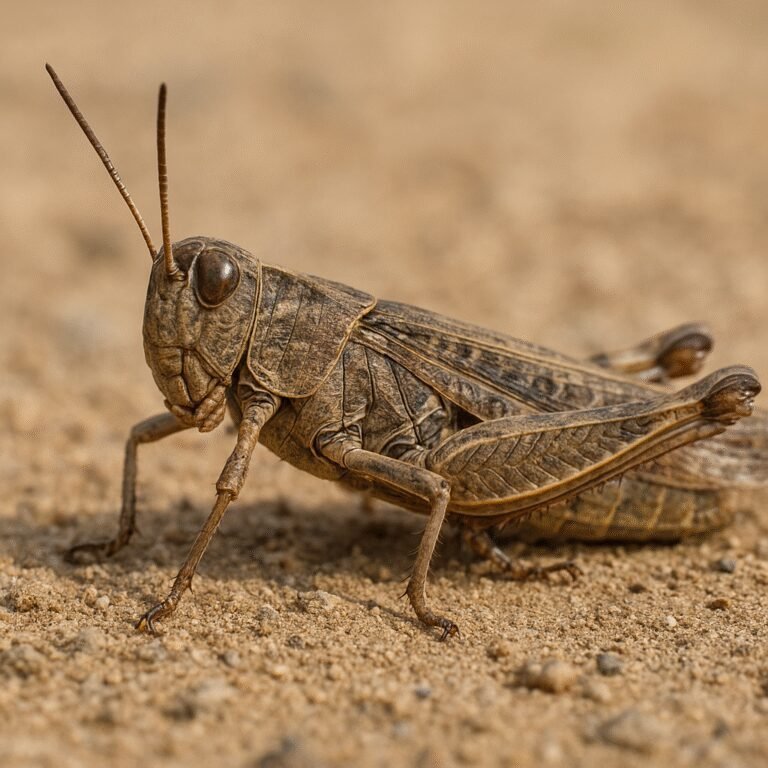
Konik polny
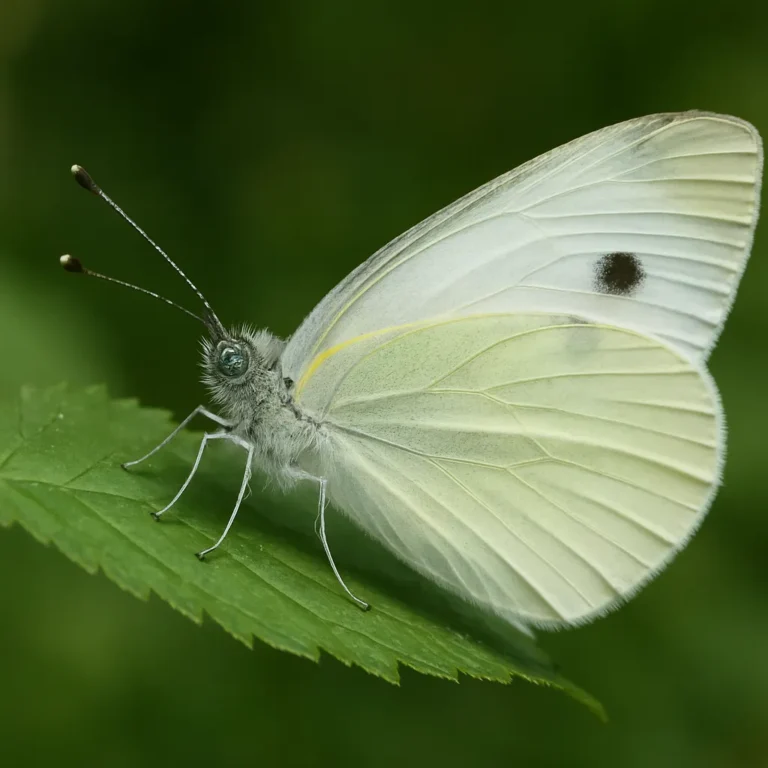
Bielinek rzepnik
Pieris rapae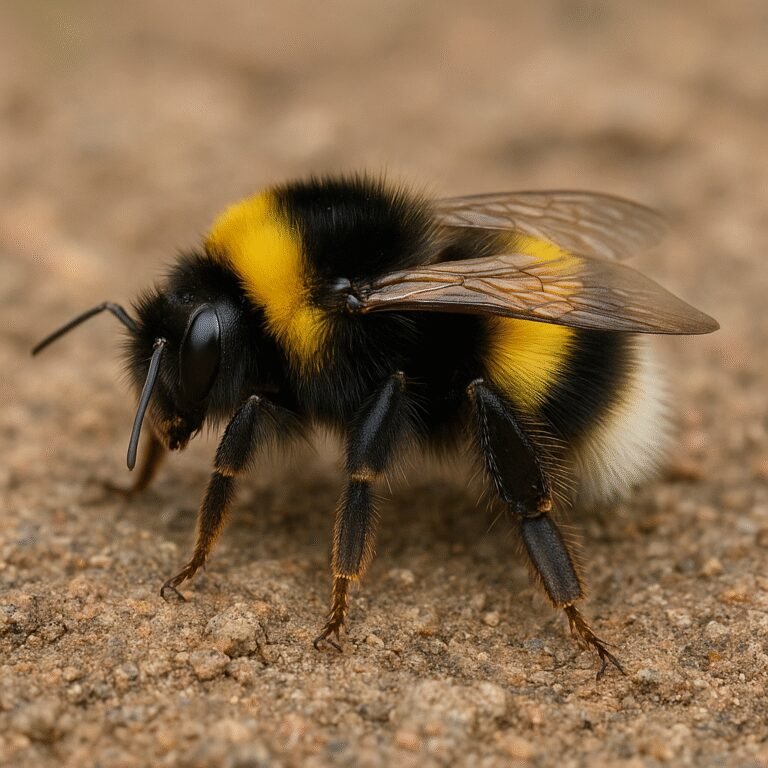
Trzmiel ziemny
Bombus terrestris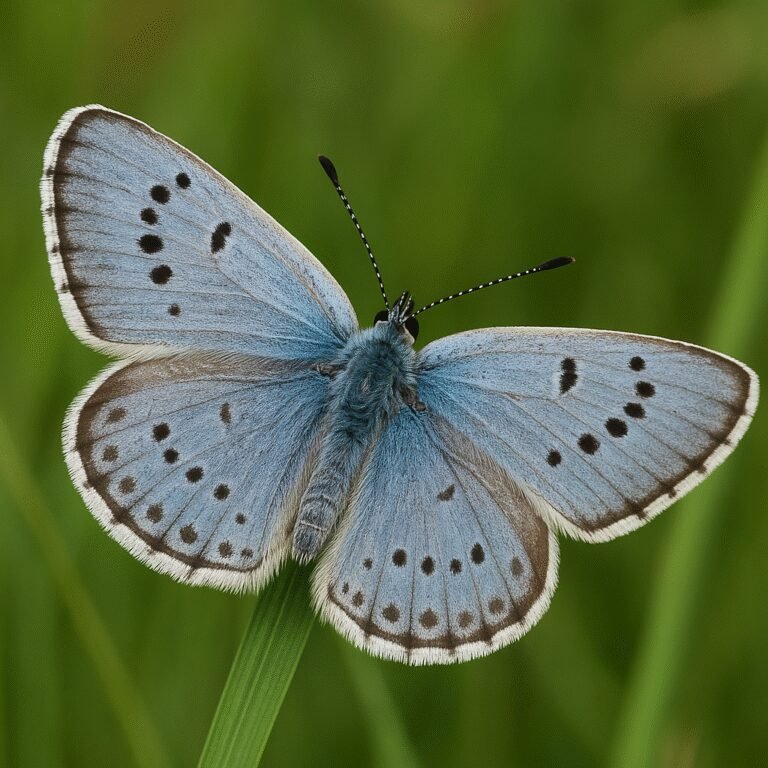
Modraszek arion
Phengaris arionRodziny w atlasie
Przeglądaj dalej
- Wszystkie hasła: owady
- Owady występujące w Polsce
- Quiz: owady
- Oś czasu: dinozaury i zwierzęta wymarłe
- Porównaj dwa gatunki
Inne kompendia
Rozdział 28Słownik pojęć
Poniższe hasła porządkują podstawowe terminy używane w kompendium. Definicje odnoszą się do kontekstu entomologicznego. Przy opisie konkretnego gatunku należy uwzględniać jego stadium rozwoju oraz wyjątki omówione w odpowiednich rozdziałach.
| Termin | Znaczenie |
|---|---|
| Cewki Malpighiego | Struktury uczestniczące w wydalaniu oraz regulowaniu wody i jonów. Współdziałają z jelitem tylnym w utrzymywaniu składu płynów ustrojowych. [30] |
| Diapauza | Regulowany stan fizjologiczny związany z sezonowym wstrzymaniem rozwoju lub rozrodu. Nie oznacza dowolnego, chwilowego spowolnienia aktywności przez chłód. [47] |
| Dzieworództwo | Rozwój potomstwa z niezapłodnionych komórek jajowych. U niektórych owadów występuje naprzemiennie z rozmnażaniem płciowym, zależnie od przebiegu cyklu. [55] |
| Ekdyza | Zrzucenie starego oskórka podczas linienia. Jest częścią dłuższego procesu, obejmującego również przygotowanie nowej powłoki i jej późniejsze utwardzanie. [45] |
| Ekdysteroidy | Grupa hormonów uczestniczących w regulacji linienia i przemian rozwojowych. Ich działanie zależy między innymi od stadium i reakcji tkanek. [45] |
| Eusocjalność | Organizacja życia łącząca współpracę w opiece nad potomstwem, podział funkcji rozrodczych i nakładanie się pokoleń. Samo skupienie owadów nie wystarcza. [60] |
| Feromon | Sygnał chemiczny przekazywany między osobnikami tego samego gatunku. Może uczestniczyć w rozrodzie, alarmowaniu lub znakowaniu szlaku przemieszczania. [40] |
| Hemolimfa | Płyn krążący w otwartym układzie krążenia, obmywający narządy i transportujący różne substancje. Zwykle nie jest głównym nośnikiem tlenu. [29] |
| Hexapoda, sześcionogi | Grupa szersza niż owady w przyjętym tutaj ścisłym znaczeniu. Obejmuje także skoczogonki, pierwogonki i widłogonki. [7] |
| Homologia | Odpowiedniość struktur wynikająca ze wspólnego pochodzenia ewolucyjnego. Homologiczne części ciała mogą różnić się wyglądem oraz pełnić odmienne funkcje. [51] |
| Hormon juwenilny | Sygnał hormonalny współuczestniczący w regulowaniu charakteru kolejnych przemian rozwojowych. Jego roli nie należy sprowadzać do jednego niezależnego przełącznika. [45] |
| Imago | Postać dorosła owada. Termin określa etap cyklu życiowego; nie jest synonimem osobnika uskrzydlonego, ponieważ istnieją bezskrzydłe formy dorosłe. [17] |
| Insecta, owady | Grupa stawonogów, której podstawowy plan obejmuje głowę, tułów i odwłok oraz trzy pary nóg tułowiowych, z możliwymi redukcjami. [4] |
| Instar | Stadium rozwojowe pomiędzy kolejnymi linieniami. Określenie instaru jest dokładniejsze niż ogólne stwierdzenie, że obserwowano młodego owada. [20] |
| Kokon | Zewnętrzna osłona wytwarzana przez niektóre owady, wewnątrz której może znajdować się poczwarka. Nie jest osobnym stadium rozwoju. [22] |
| Konwergencja | Niezależne powstawanie podobnych cech w różnych liniach ewolucyjnych. Podobieństwo wyglądu lub funkcji nie musi więc oznaczać bliskiego pokrewieństwa. [13] |
| Kutykula, oskórek | Zewnętrzna powłoka ciała zawierająca między innymi chitynę i białka. Jej właściwości zależą od warstwy oraz miejsca występowania. [19] |
| Larwa | Młodociana postać owada; w przeobrażeniu zupełnym poprzedza poczwarkę. Larwy różnych grup mają odmienne kształty, narządy ruchu i sposoby żerowania. [23, 53] |
| Linienie | Proces wymiany oskórka związany ze wzrostem i rozwojem. Obejmuje więcej zdarzeń niż samo zrzucenie starej zewnętrznej osłony. [45] |
| Nazwa gatunkowa | Naukowa nazwa złożona z nazwy rodzaju i epitetu gatunkowego, na przykład Apis mellifera. Pierwszy człon rozpoczyna wielka litera. [12] |
| Nimfa | Określenie młodocianej postaci owada o przeobrażeniu niezupełnym. Kolejne stadia stopniowo uzyskują cechy imago, bez pośredniego stadium poczwarki. [21] |
| Oko złożone | Narząd wzroku zbudowany z licznych jednostek optycznych. Nie oznacza oglądania wielu oddzielnych, pełnych kopii tej samej sceny. [38] |
| Poczwarka | Stadium przeobrażenia zupełnego między larwą a imago, związane z intensywną przebudową organizmu. Nie należy utożsamiać jej z kokonem. [48] |
| Pokładełko | Struktura samicy służąca do umieszczania jaj w odpowiednim miejscu. Długi wyrostek odwłoka nie musi być żądłem. [59, 16] |
| Pokrywy | Przekształcona przednia para skrzydeł chrząszczy. Osłania części ciała i zwykle znajdujące się pod nią tylne skrzydła. [23] |
| Posuwki | Miękkie wyrostki odwłokowe, na przykład u gąsienic, pomagające w podpieraniu ciała i poruszaniu. Nie są członowanymi nogami tułowiowymi. [9] |
| Przeobrażenie niezupełne | Rozwój obejmujący jajo, stadia młodociane i imago, bez poczwarki. Młode i dorosłe mogą żyć w odmiennych środowiskach. [28] |
| Przeobrażenie zupełne | Rozwój obejmujący jajo, larwę, poczwarkę i imago. Rozdzielenie stadiów umożliwia znaczne różnice ich budowy oraz sposobu życia. [23, 53] |
| Przetchlinka | Otwór łączący układ tchawkowy z otoczeniem. Regulowanie jego otwarcia wiąże wymianę gazową z ograniczaniem utraty wody. [26] |
| Przezmianki | Przekształcona tylna para skrzydeł muchówek, uczestnicząca w stabilizacji lotu. Skrzydła lotne tych owadów stanowią parę przednią. [17] |
| Rozwój bez przeobrażenia | Rozwój, w którym młode postacie przypominają dorosłe. U rybików linienie może zachodzić również po osiągnięciu dojrzałości rozrodczej. [43] |
| Sensillum | Drobna struktura czuciowa odbierająca określone bodźce. Różne sensilla mogą uczestniczyć w odbiorze dotyku, odkształcenia lub substancji chemicznych. [36, 37] |
| Spermateka | Zbiorniczek nasienny samicy, umożliwiający przechowywanie plemników. Dzięki temu kopulacja i zapłodnienie kolejnych jaj mogą być rozdzielone w czasie. [59] |
| Stopniodni | Miara sumowania temperatury powyżej określonego progu, wykorzystywana w prognozowaniu rozwoju. Model wymaga parametrów właściwych dla badanego owada. [33] |
| Strydulacja | Wytwarzanie dźwięku przez pocieranie określonych części ciała. Jest jednym ze sposobów sygnalizacji spotykanych między innymi u prostoskrzydłych. [21] |
| Subimago | Uskrzydlone stadium jętek poprzedzające imago. Po jego osiągnięciu następuje jeszcze linienie, co wyróżnia rozwój tej grupy. [44] |
| Systematyka | Dziedzina porządkująca różnorodność organizmów i badająca ich pokrewieństwo. Wykorzystuje między innymi cechy budowy oraz dane genetyczne. [13] |
| Takson | Wyróżniona w klasyfikacji grupa organizmów, na przykład określony gatunek, rodzina lub rząd. Jednostki te mają różny zakres. [13] |
| Tchawka | Przewód układu oddechowego prowadzący gazy w głąb organizmu. Rozgałęziająca się sieć tchawek zaopatruje tkanki za pośrednictwem drobniejszych zakończeń. [26] |
| Tchaweczka | Drobne końcowe odgałęzienie układu tchawkowego, związane z dostarczaniem tlenu do tkanek. Stanowi część układu oddechowego, a nie krwionośnego. [26] |
| Wylinka | Pozostałość starego oskórka zrzuconego podczas linienia. Jej znalezienie świadczy o obecności owada, lecz nie oznacza znalezienia martwego osobnika. [19] |
| Zegar molekularny | Metoda szacowania czasu rozdzielenia linii ewolucyjnych na podstawie danych genetycznych, modelu i kalibracji. Wynik nie jest datą znalezienia skamieniałości. [50] |
Bibliografia
[1] Stork, N. E. (2018). How Many Species of Insects and Other Terrestrial Arthropods Are There on Earth? https://doi.org/10.1146/annurev-ento-020117-043348
[2] Stork, N. E. i in. (2015). New approaches narrow global species estimates for beetles, insects, and terrestrial arthropods. https://doi.org/10.1073/pnas.1502408112
[3] Colwell, R. K. i in. (2026). Constructing a lower-bound estimate of the global number of insect species on a hyperdiverse empirical foundation. https://doi.org/10.1073/pnas.2524283123
[4] American Museum of Natural History (b.d.). Arthropod Morphology: Parts of an Insect (Grasshopper). https://www.amnh.org/learn-teach/curriculum-collections/biodiversity-counts/arthropod-identification/arthropod-morphology/parts-of-an-insect-grasshopper
[5] North Carolina State University (b.d.). Order Diptera. https://genent.cals.ncsu.edu/insect-identification/order-diptera/
[6] North Carolina State University (b.d.). Order Lepidoptera. https://genent.cals.ncsu.edu/insect-identification/order-lepidoptera/
[7] North Carolina State University (b.d.). Hexapods. https://genent.cals.ncsu.edu/bug-bytes/hexapods/
[8] Centers for Disease Control and Prevention (b.d.). Tick Lifecycles. https://www.cdc.gov/ticks/about/tick-lifecycles.html
[9] North Carolina State University (b.d.). Legs. https://genent.cals.ncsu.edu/bug-bytes/thorax/legs/
[10] North Carolina State University (b.d.). Thorax. https://genent.cals.ncsu.edu/bug-bytes/thorax/
[11] North Carolina State University (b.d.). Class Collembola. https://genent.cals.ncsu.edu/insect-identification/class-collembola/
[12] International Commission on Zoological Nomenclature (b.d.). International Code of Zoological Nomenclature. Article 5: Principle of Binominal Nomenclature. https://code.iczn.org/chapter-2-the-number-of-words-in-the-scientific-names-of-animals/article-5-principle-of-binominal-nomenclature/
[13] North Carolina State University (b.d.). Introduction to Systematics. https://genent.cals.ncsu.edu/bug-bytes/systematics/
[14] Inward D.; Beccaloni G.; Eggleton P. (2007). Death of an order: a comprehensive molecular phylogenetic study confirms that termites are eusocial cockroaches. https://doi.org/10.1098/rsbl.2007.0102
[15] North Carolina State University (b.d.). Order Psocodea. https://genent.cals.ncsu.edu/insect-identification/order-psocodea/
[16] North Carolina State University (b.d.). Order Hymenoptera. https://genent.cals.ncsu.edu/insect-identification/order-hymenoptera/
[17] North Carolina State University (b.d.). Wings. https://genent.cals.ncsu.edu/bug-bytes/thorax/wings-2/
[18] Ebeling W.; University of California, Riverside, Department of Entomology (b.d.). Urban Entomology. Chapter 4: Classes of Arthropod Pests of the Urban Community. https://entomology.ucr.edu/we-ch-4
[19] North Carolina State University (b.d.). The Exoskeleton. https://genent.cals.ncsu.edu/bug-bytes/exoskeleton/
[20] North Carolina State University (b.d.). Morphogenesis. https://genent.cals.ncsu.edu/bug-bytes/morphogenesis/
[21] North Carolina State University (b.d.). Order Orthoptera. https://genent.cals.ncsu.edu/insect-identification/order-orthoptera/
[22] North Carolina State University (b.d.). Order Trichoptera. https://genent.cals.ncsu.edu/insect-identification/order-trichoptera/
[23] North Carolina State University (b.d.). Order Coleoptera. https://genent.cals.ncsu.edu/insect-identification/order-coleoptera/
[24] North Carolina State University (b.d.). Mouthparts. https://genent.cals.ncsu.edu/bug-bytes/mouthparts/
[25] North Carolina State University (b.d.). Order Hemiptera, Suborder Heteroptera. https://genent.cals.ncsu.edu/insect-identification/order-hemiptera-suborder-heteroptera/
[26] North Carolina State University (b.d.). Respiratory System. https://genent.cals.ncsu.edu/bug-bytes/respiratory-system/
[27] North Carolina State University (b.d.). Respiration in Aquatic Insects. https://genent.cals.ncsu.edu/bug-bytes/aquatic-respiration/
[28] North Carolina State University (b.d.). Order Odonata. https://genent.cals.ncsu.edu/insect-identification/order-odonata/
[29] North Carolina State University (b.d.). Circulatory System. https://genent.cals.ncsu.edu/bug-bytes/circulatory-system/
[30] North Carolina State University (b.d.). Digestive and Excretory Systems. https://genent.cals.ncsu.edu/bug-bytes/digestive-system/
[31] North Carolina State University (b.d.). Insect Nutrition. https://genent.cals.ncsu.edu/bug-bytes/nutrition/
[32] North Carolina State University (b.d.). Nervous System. https://genent.cals.ncsu.edu/bug-bytes/nervous-system/
[33] North Carolina State University (b.d.). The Concept of Physiological Time. https://genent.cals.ncsu.edu/bug-bytes/phystime/
[34] Lemaitre B.; Nicolas E.; Michaut L.; Reichhart J.-M.; Hoffmann J. A. (1996). The dorsoventral regulatory gene cassette spätzle/Toll/cactus controls the potent antifungal response in Drosophila adults. https://doi.org/10.1016/S0092-8674(00)80172-5
[35] The Nobel Assembly at Karolinska Institutet (2011). The Nobel Prize in Physiology or Medicine 2011: Advanced information. https://www.nobelprize.org/prizes/medicine/2011/advanced-information/
[36] North Carolina State University (b.d.). Mechanoreceptors. https://genent.cals.ncsu.edu/bug-bytes/senses/mechanoreceptors/
[37] North Carolina State University (b.d.). Chemoreceptors. https://genent.cals.ncsu.edu/bug-bytes/senses/chemoreceptors/
[38] North Carolina State University (b.d.). Photoreceptors. https://genent.cals.ncsu.edu/bug-bytes/senses/photoreceptors/
[39] Peitsch D.; Fietz A.; Hertel H.; de Souza J.; Ventura D. F.; Menzel R. (1992). The spectral input systems of hymenopteran insects and their receptor-based colour vision. https://doi.org/10.1007/BF00190398
[40] North Carolina State University (b.d.). Chemical Communication. https://genent.cals.ncsu.edu/bug-bytes/communication/chemical-communication/
[41] Dickinson M. H.; Lehmann F.-O.; Sane S. P. (1999). Wing rotation and the aerodynamic basis of insect flight. https://doi.org/10.1126/science.284.5422.1954
[42] North Carolina State University (b.d.). Locomotion. https://genent.cals.ncsu.edu/bug-bytes/thorax/locomotion/
[43] North Carolina State University (b.d.). Order Zygentoma. https://genent.cals.ncsu.edu/insect-identification/order-zygentoma/
[44] North Carolina State University (b.d.). Order Ephemeroptera. https://genent.cals.ncsu.edu/insect-identification/order-ephemeroptera/
[45] North Carolina State University (b.d.). Hormonal Control of Molting and Metamorphosis. https://genent.cals.ncsu.edu/bug-bytes/hormonal-control/
[46] Konopova B.; Smykal V.; Jindra M. (2011). Common and Distinct Roles of Juvenile Hormone Signaling Genes in Metamorphosis of Holometabolous and Hemimetabolous Insects. https://doi.org/10.1371/journal.pone.0028728
[47] Koštál V. (2006). Eco-physiological phases of insect diapause. https://doi.org/10.1016/j.jinsphys.2005.09.008
[48] Blackiston D. J.; Silva Casey E.; Weiss M. R. (2008). Retention of Memory through Metamorphosis: Can a Moth Remember What It Learned As a Caterpillar? https://doi.org/10.1371/journal.pone.0001736
[49] Haug C.; Haug J. T. (2017). The presumed oldest flying insect: more likely a myriapod? https://doi.org/10.7717/peerj.3402
[50] Misof B. i in. (2014). Phylogenomics resolves the timing and pattern of insect evolution. https://doi.org/10.1126/science.1257570
[51] Bruce H. S.; Patel N. H. (2020). Knockout of crustacean leg patterning genes suggests that insect wings and body walls evolved from ancient leg segments. https://doi.org/10.1038/s41559-020-01349-0
[52] Clapham M. E.; Karr J. A. (2012). Environmental and biotic controls on the evolutionary history of insect body size. https://doi.org/10.1073/pnas.1204026109
[53] North Carolina State University (b.d.). Order Neuroptera. https://genent.cals.ncsu.edu/insect-identification/order-neuroptera/
[54] North Carolina State University (b.d.). Order Plecoptera. https://genent.cals.ncsu.edu/insect-identification/order-plecoptera/
[55] The International Aphid Genomics Consortium (2010). Genome Sequence of the Pea Aphid Acyrthosiphon pisum. https://doi.org/10.1371/journal.pbio.1000313
[56] Loukola O. J.; Solvi C.; Coscos L.; Chittka L. (2017). Bumblebees show cognitive flexibility by improving on an observed complex behavior. https://doi.org/10.1126/science.aag2360
[57] Riley J. R.; Greggers U.; Smith A. D.; Reynolds D. R.; Menzel R. (2005). The flight paths of honeybees recruited by the waggle dance. https://doi.org/10.1038/nature03526
[58] Pires A.; Hoy R. R. (1992). Temperature coupling in cricket acoustic communication. I. Field and laboratory studies of temperature effects on calling song production and recognition in Gryllus firmus. https://doi.org/10.1007/BF00195962
[59] North Carolina State University (b.d.). Female Reproductive System. https://genent.cals.ncsu.edu/bug-bytes/reproductive-system/females/
[60] North Carolina State University (b.d.). Social Insects. https://genent.cals.ncsu.edu/bug-bytes/social-insects/
[61] Hebert, P. D. N.; Cywinska, A.; Ball, S. L.; deWaard, J. R. (2003). Biological identifications through DNA barcodes. https://doi.org/10.1098/rspb.2002.2218
[62] Dupuis, J. R.; Roe, A. D.; Sperling, F. A. H. (2012). Multi-locus species delimitation in closely related animals and fungi: one marker is not enough. https://doi.org/10.1111/j.1365-294X.2012.05642.x
[63] The Xerces Society for Invertebrate Conservation (b.d.). Nesting and Overwintering Habitat for Pollinators and Other Beneficial Insects. https://xerces.org/publications/fact-sheets/nesting-overwintering-habitat
[64] Danks, Hugh V. (2007). The elements of seasonal adaptations in insects. https://doi.org/10.4039/n06-048
[65] United States Environmental Protection Agency (2025). Indicators: Benthic Macroinvertebrates. https://www.epa.gov/national-aquatic-resource-surveys/indicators-benthic-macroinvertebrates
[66] Nakano, Shigeru; Murakami, Masashi (2001). Reciprocal subsidies: Dynamic interdependence between terrestrial and aquatic food webs. https://doi.org/10.1073/pnas.98.1.166
[67] Tugel, Arlene J.; Lewandowski, Ann M.; Happe-vonArb, Deb (red.) (2000). Soil Biology Primer. https://www.nrcs.usda.gov/resources/education-and-teaching-materials/soil-biology-primer
[68] Seibold, Sebastian; Bässler, Claus; Brandl, Roland; i in. (2016). Microclimate and habitat heterogeneity as the major drivers of beetle diversity in dead wood. https://doi.org/10.1111/1365-2664.12607
[69] Smithsonian Gardens (b.d.). The Why, What, When, Where, Who, How of Pollination. https://gardens.si.edu/gardens/pollinator-garden/why-what-when-where-who-how-pollination/
[70] Pedigo, Larry P. (b.d.). Economic Thresholds and Economic Injury Levels. https://ipmworld.umn.edu/pedigo
[71] Wittstock, U.; Agerbirk, N.; Stauber, E. J.; i in. (2004). Successful herbivore attack due to metabolic diversion of a plant chemical defense. https://doi.org/10.1073/pnas.0308007101
[72] Turlings, T. C. J.; Tumlinson, J. H.; Lewis, W. J. (1990). Exploitation of herbivore-induced plant odors by host-seeking parasitic wasps. https://doi.org/10.1126/science.250.4985.1251
[73] Heil, M.; Koch, T.; Hilpert, A.; Fiala, B.; Boland, W.; Linsenmair, K. E. (2001). Extrafloral nectar production of the ant-associated plant, Macaranga tanarius, is an induced, indirect, defensive response elicited by jasmonic acid. https://doi.org/10.1073/pnas.031563398
[74] Russell, Calum W.; Bouvaine, Sophie; Newell, Peter D.; Douglas, Angela E. (2013). Shared Metabolic Pathways in a Coevolved Insect-Bacterial Symbiosis. https://doi.org/10.1128/AEM.01543-13
[75] Klein, Alexandra-Maria; Vaissière, Bernard E.; Cane, James H.; i in. (2007). Importance of pollinators in changing landscapes for world crops. https://doi.org/10.1098/rspb.2006.3721
[76] Klatt, Björn K.; Holzschuh, Andrea; Westphal, Catrin; Clough, Yann; Smit, Inga; Pawelzik, Elke; Tscharntke, Teja (2014). Bee pollination improves crop quality, shelf life and commercial value. https://doi.org/10.1098/rspb.2013.2440
[77] Rader, Romina; Bartomeus, Ignasi; Garibaldi, Lucas A.; i in. (2016). Non-bee insects are important contributors to global crop pollination. https://doi.org/10.1073/pnas.1517092112
[78] Ollerton, Jeff; Winfree, Rachael; Tarrant, Sam (2011). How many flowering plants are pollinated by animals? https://doi.org/10.1111/j.1600-0706.2010.18644.x
[79] Tong, Z.-Y.; Wu, L.-Y.; Feng, H.-H.; Zhang, M.; Armbruster, W. S.; Renner, S. S.; Huang, S.-Q. (2023). New calculations indicate that 90% of flowering plant species are animal-pollinated. https://doi.org/10.1093/nsr/nwad219
[80] IPBES (2016). Summary for policymakers of the assessment report of the Intergovernmental Science-Policy Platform on Biodiversity and Ecosystem Services on pollinators, pollination and food production. https://files.ipbes.net/ipbes-web-prod-public-files/downloads/pdf/ipbes_4_19_annex_ii_spm_pollination_en.pdf
[81] Garibaldi, Lucas A.; Steffan-Dewenter, Ingolf; Winfree, Rachael; i in. (2013). Wild Pollinators Enhance Fruit Set of Crops Regardless of Honey Bee Abundance. https://doi.org/10.1126/science.1230200
[82] Brittain, Claire; Williams, Neal; Kremen, Claire; Klein, Alexandra-Maria (2013). Synergistic effects of non-Apis bees and honey bees for pollination services. https://doi.org/10.1098/rspb.2012.2767
[83] Ulyshen, Michael D. (2016). Wood decomposition as influenced by invertebrates. https://doi.org/10.1111/brv.12158
[84] Seibold, Sebastian; Rammer, Werner; Hothorn, Torsten; i in. (2021). The contribution of insects to global forest deadwood decomposition. https://doi.org/10.1038/s41586-021-03740-8
[85] Slade, Eleanor M.; Mann, Darren J.; Villanueva, Jerome F.; Lewis, Owen T. (2007). Experimental evidence for the effects of dung beetle functional group richness and composition on ecosystem function in a tropical forest. https://doi.org/10.1111/j.1365-2656.2007.01296.x
[86] Ashton, L. A.; Griffiths, H. M.; Parr, C. L.; i in. (2019). Termites mitigate the effects of drought in tropical rainforest. https://doi.org/10.1126/science.aau9565
[87] University of California Statewide Integrated Pest Management Program (2014). Biological Control and Natural Enemies of Invertebrates. https://ipm.ucanr.edu/home-and-landscape/biological-control-and-natural-enemies-of-invertebrates/
[88] Karp, Daniel S.; Chaplin-Kramer, Rebecca; Meehan, Timothy D.; i in. (2018). Crop pests and predators exhibit inconsistent responses to surrounding landscape composition. https://doi.org/10.1073/pnas.1800042115
[89] Dainese, Matteo; Martin, Emily A.; Aizen, Marcelo A.; i in. (2019). A global synthesis reveals biodiversity-mediated benefits for crop production. https://doi.org/10.1126/sciadv.aax0121
[90] Narango, Desirée L.; Tallamy, Douglas W.; Marra, Peter P. (2018). Nonnative plants reduce population growth of an insectivorous bird. https://doi.org/10.1073/pnas.1809259115
[91] Food and Agriculture Organization of the United Nations (b.d.). Integrated Pest Management (IPM). https://www.fao.org/pest-and-pesticide-management/ipm/integrated-pest-management/en/
[92] University of California Statewide Integrated Pest Management Program (2025). Protecting Natural Enemies and Pollinators. https://ipm.ucanr.edu/environmental-protection-and-pesticide-stewardship/protecting-natural-enemies-and-pollinators/
[93] Gurr, Geoff M.; Lu, Zhongxian; Zheng, Xusong; i in. (2016). Multi-country evidence that crop diversification promotes ecological intensification of agriculture. https://doi.org/10.1038/nplants.2016.14
[94] Tamburini, Giovanni; Bommarco, Riccardo; Wanger, Thomas Cherico; Kremen, Claire; van der Heijden, Marcel G. A.; Liebman, Matt; Hallin, Sara (2020). Agricultural diversification promotes multiple ecosystem services without compromising yield. https://doi.org/10.1126/sciadv.aba1715
[95] Losey, J. E.; Vaughan, M. (2006). The Economic Value of Ecological Services Provided by Insects. https://doi.org/10.1641/0006-3568(2006)56[311:TEVOES]2.0.CO;2
[96] Bradshaw, Corey J. A.; Leroy, Boris; Bellard, Céline; i in. (2016). Massive yet grossly underestimated global costs of invasive insects. https://doi.org/10.1038/ncomms12986
[97] Food and Agriculture Organization of the United Nations (b.d.). Plant Production and Protection: About. https://www.fao.org/plant-production-protection/about/
[98] FAO (2021). Looking at edible insects from a food safety perspective. Challenges and opportunities for the sector. https://doi.org/10.4060/cb4094en
[99] EFSA Scientific Committee (2015). Risk profile related to production and consumption of insects as food and feed. https://doi.org/10.2903/j.efsa.2015.4257
[100] Janssen, R. H.; Vincken, J.-P.; van den Broek, L. A. M.; Fogliano, V.; Lakemond, C. M. M. (2017). Nitrogen-to-Protein Conversion Factors for Three Edible Insects: Tenebrio molitor, Alphitobius diaperinus, and Hermetia illucens. https://doi.org/10.1021/acs.jafc.7b00471
[101] Halloran, A.; Roos, N.; Eilenberg, J.; Cerutti, A.; Bruun, S. (2016). Life cycle assessment of edible insects for food protein: a review. https://doi.org/10.1007/s13593-016-0392-8
[102] Komisja Europejska (2025). Approval of another insect/insect-derived food as a Novel Food. https://food.ec.europa.eu/food-safety/novel-food/authorisations/approval-insect-novel-food_en
[103] Oonincx, D. G. A. B.; de Boer, I. J. M. (2012). Environmental Impact of the Production of Mealworms as a Protein Source for Humans – A Life Cycle Assessment. https://doi.org/10.1371/journal.pone.0051145
[104] WHO (2024). Vector-borne diseases. https://www.who.int/news-room/fact-sheets/detail/vector-borne-diseases
[105] CDC (2024). About Mosquitoes in the United States. https://www.cdc.gov/mosquitoes/about/about-mosquitoes-in-the-united-states.html
[106] CDC (2024). About Mosquito Bites. https://www.cdc.gov/mosquitoes/about/about-mosquito-bites.html
[107] WHO (2025). World malaria report 2025. https://www.who.int/teams/global-malaria-programme/reports/world-malaria-report-2025
[108] WHO (2017). Global vector control response 2017–2030. https://www.who.int/publications/i/item/9789241512978
[109] NobelPrize.org (b.d.). Christiane Nüsslein-Volhard. https://www.nobelprize.org/stories/women-who-changed-science/christiane-nusslein-volhard/
[110] Nobel Assembly at Karolinska Institutet (2017). Discoveries of Molecular Mechanisms Controlling the Circadian Rhythm. Scientific Background. https://www.nobelprize.org/prizes/medicine/2017/advanced-information/
[111] Dorkenwald, S. i in.; FlyWire Consortium (2024). Neuronal wiring diagram of an adult brain. https://doi.org/10.1038/s41586-024-07558-y
[112] Matuszewski, S. (2021). Post-Mortem Interval Estimation Based on Insect Evidence: Current Challenges. https://doi.org/10.3390/insects12040314
[113] Matuszewski, S.; Mądra-Bielewicz, A. (2025). When insect development meets insect succession: Advantages of combining different methods and insect taxa in estimating the post-mortem interval. https://doi.org/10.1016/j.fsisyn.2025.100574
[114] Montgomery, Graham A.; Belitz, Michael W.; Guralnick, Rob P.; Tingley, Morgan W. (2021). Standards and Best Practices for Monitoring and Benchmarking Insects. https://doi.org/10.3389/fevo.2020.579193
[115] MacKenzie, Darryl I.; Nichols, James D.; Lachman, Gideon B.; Droege, Sam; Royle, J. Andrew; Langtimm, Catherine A. (2002). Estimating Site Occupancy Rates When Detection Probabilities Are Less Than One. https://doi.org/10.1890/0012-9658(2002)083[2248:ESORWD]2.0.CO;2
[116] Powney, Gary D. i in. (2019). Widespread losses of pollinating insects in Britain. https://doi.org/10.1038/s41467-019-08974-9
[117] GBIF Secretariat (b.d.). Data quality recommendations. https://techdocs.gbif.org/en/data-publishing/data-quality-recommendations
[118] Didham, Raphael K. i in. (2020). Interpreting insect declines: seven challenges and a way forward. https://doi.org/10.1111/icad.12408
[119] Pollard, Ernie (1977). A method for assessing changes in the abundance of butterflies. https://doi.org/10.1016/0006-3207(77)90065-9
[120] Scheper, Jeroen i in. (2015). Local and landscape-level floral resources explain effects of wildflower strips on wild bees across four European countries. https://doi.org/10.1111/1365-2664.12479
[121] Zattara, Eduardo E.; Aizen, Marcelo A. (2021). Worldwide occurrence records suggest a global decline in bee species richness. https://doi.org/10.1016/j.oneear.2020.12.005
[122] IUCN (2012). IUCN Red List Categories and Criteria Version 3.1 Second edition. https://iucn.org/resources/publication/iucn-red-list-categories-and-criteria-version-31-second-edition
[123] Hallmann, Caspar A. i in. (2017). More than 75 percent decline over 27 years in total flying insect biomass in protected areas. https://doi.org/10.1371/journal.pone.0185809
[124] van Klink, Roel; Bowler, Diana E.; Gongalsky, Konstantin B.; Swengel, Ann B.; Gentile, Alessandro; Chase, Jonathan M. (2020). Meta-analysis reveals declines in terrestrial but increases in freshwater insect abundances. https://doi.org/10.1126/science.aax9931
[125] European Environment Agency (2026). Grassland butterfly index in Europe. https://www.eea.europa.eu/en/analysis/indicators/grassland-butterfly-index-in-europe-1
[126] van Swaay, Chris A. M. i in. (2026). EU Grassland Butterfly Index 1991-2024 Technical report. https://doi.org/10.5281/zenodo.22302276
[127] Neff, Felix i in. (2026). Ninety-year trends reveal sharpest insect declines in the mid-twentieth century. https://doi.org/10.1038/s41559-026-03074-6
[128] Haase, Peter i in. (2023). The recovery of European freshwater biodiversity has come to a halt. https://doi.org/10.1038/s41586-023-06400-1
[129] Seibold, Sebastian i in. (2019). Arthropod decline in grasslands and forests is associated with landscape-level drivers. https://doi.org/10.1038/s41586-019-1684-3
[130] Krauss, Jochen i in. (2010). Habitat fragmentation causes immediate and time-delayed biodiversity loss at different trophic levels. https://doi.org/10.1111/j.1461-0248.2010.01457.x
[131] Outhwaite, Charlotte L.; McCann, Peter; Newbold, Tim (2022). Agriculture and climate change are reshaping insect biodiversity worldwide. https://doi.org/10.1038/s41586-022-04644-x
[132] Soroye, Peter; Newbold, Tim; Kerr, Jeremy (2020). Climate change contributes to widespread declines among bumble bees across continents. https://doi.org/10.1126/science.aax8591
[133] Woodcock, Ben A. i in. (2017). Country-specific effects of neonicotinoid pesticides on honey bees and wild bees. https://doi.org/10.1126/science.aaa1190
[134] Boyes, Douglas H.; Evans, Darren M.; Fox, Richard; Parsons, Mark S.; Pocock, Michael J. O. (2021). Street lighting has detrimental impacts on local insect populations. https://doi.org/10.1126/sciadv.abi8322
[135] Thomas, Jeremy A.; Simcox, David J.; Clarke, Ralph T. (2009). Successful conservation of a threatened Maculinea butterfly. https://doi.org/10.1126/science.1175726
[136] Berger, Johanna L. i in. (2024). The day after mowing: Time and type of mowing influence grassland arthropods. https://doi.org/10.1002/eap.3022
[137] MacIvor, J. Scott; Packer, Laurence (2015). Bee Hotels as Tools for Native Pollinator Conservation: A Premature Verdict? https://doi.org/10.1371/journal.pone.0122126
[138] Henry, Mickaël; Rodet, Guy (2018). Controlling the impact of the managed honeybee on wild bees in protected areas. https://doi.org/10.1038/s41598-018-27591-y
[139] European Butterfly Monitoring Scheme (2022). BMS Polska. https://butterfly-monitoring.net/pl/node/90
[140] European Butterfly Monitoring Scheme (b.d.). Metody. https://butterfly-monitoring.net/pl/bms-methods
[141] van Klink, Roel i in. (2022). Emerging technologies revolutionise insect ecology and monitoring. https://doi.org/10.1016/j.tree.2022.06.001
[142] Elbrecht, Vasco; Leese, Florian (2015). Can DNA-Based Ecosystem Assessments Quantify Species Abundance? Testing Primer Bias and Biomass—Sequence Relationships with an Innovative Metabarcoding Protocol. https://doi.org/10.1371/journal.pone.0130324
[143] Underwood, A. J. (1994). On Beyond BACI: Sampling Designs that Might Reliably Detect Environmental Disturbances. https://doi.org/10.2307/1942110
[144] Kajzer-Bonk, Joanna; Nowicki, Piotr (2023). Vanishing meadows — Quantitative analysis of factors driving population declines of endangered butterflies. https://doi.org/10.1016/j.biocon.2023.110050
[145] Krzosek, K.; Nowicki, Piotr (2025). Quantification of land use threats to a flagship species and its meadow habitats within urban landscape. https://doi.org/10.1080/24750263.2024.2447446
[146] Pietrzak, Sylwia; Pabis, Krzysztof (2024). Life on Green Patches: Diversity and Seasonal Changes of Butterfly Communities Associated With Wastelands of the Post-Industrial Central European City. https://doi.org/10.1002/ece3.70695
Opracowanie ma charakter przeglądu tematycznego. Zakres i ograniczenia badań opisano przy wynikach. Schematy są opracowaniami na potrzeby tej publikacji; nie są kluczami do oznaczania gatunków ani fotografiami okazów.