Rozdział 1Świat pajęczaków w perspektywie
Pajęczaki obejmują znacznie więcej niż pająki spotykane na parapecie albo na leśnej ścieżce. Należą do nich również skorpiony, kosarze, zaleszczotki, kleszcze i ogromna różnorodność innych roztoczy, a także mniej znane grupy, takie jak Amblypygi, solfugi czy Palpigradi. Łączy je dziedzictwo ewolucyjne szczękoczułkowców, ale różnią się sposobem zdobywania pokarmu, budową, rozwojem i relacją z człowiekiem. Nie istnieje jeden „typowy pajęczak”, którego wszystkie cechy można bez zastrzeżeń przypisać pozostałym. [1]
Pajęczaki warto rozumieć przez związek budowy ze sposobem życia. Szczękoczułki, nogogłaszczki, narządy czuciowe i jedwab uczestniczą w zdobywaniu pokarmu, rozrodzie oraz korzystaniu z siedlisk. Różnice między grupami są tak duże, że opis pająka nie zastępuje opisu kosarza, skorpiona czy roztocza. Kompendium przedstawia te zależności od podstaw morfologii po analizę współczesnych badań, ze szczególnym uwzględnieniem fauny Polski i znaczenia pajęczaków dla człowieka.
Jak korzystać z opracowania. Rozdziały o budowie i głównych grupach tworzą podstawę do dalszej lektury. Atlas porównuje wybrane gatunki występujące w Polsce; studia eksperymentalne pokazują, jak uzyskano konkretne wnioski. Tabele liczbowe zachowują jednostki i zakres badania, a słownik wyjaśnia pojęcia techniczne. Odsyłacze prowadzą do wspólnej bibliografii, dzięki czemu można sprawdzić źródło bez przerywania toku głównego wywodu.
Słowa kluczowe: Arachnida, Araneae, Acari, różnorodność biologiczna, jedwab, zachowanie, ekologia, fauna Polski, kleszcze, monitoring.
Stan weryfikacji źródeł: 12 listopada 2026 r. Dane historyczne zachowują datę publikacji lub okres badania. „Opisany gatunek” nie oznacza wszystkich gatunków rzeczywiście istniejących, a data dostępu do strony nie zamienia starszego badania w nowe. Przy nieporównywalnych zestawieniach nie obliczono wspólnej sumy. Wszystkie ilustracje w tym opracowaniu są autorskimi schematami lub wykresami; nie stanowią fotografii ani atlasu do oznaczania gatunków.
| Wartość | Czego dotyczy | Jak ją rozumieć |
|---|---|---|
| 54 251 | Gatunki pająków w World Spider Catalog | Stan odczytanego katalogu, wersja 27; nie liczba wszystkich pajęczaków. [2] |
| 400–800 mln t/rok | Świeża masa ofiar zabijanych przez pająki | Zakres oszacowania modelowego opublikowanego w 2017 r.; nie pomiar roczny z 2026 r. [3] |
| 48 742 | Zarejestrowane zachorowania na boreliozę w Polsce w 2025 r. | Liczba z rocznego biuletynu; nie liczba zakażonych kleszczy ani ryzyko po jednym wkłuciu. [4] |
Rozdział 2Czym są pajęczaki i jak je rozpoznawać
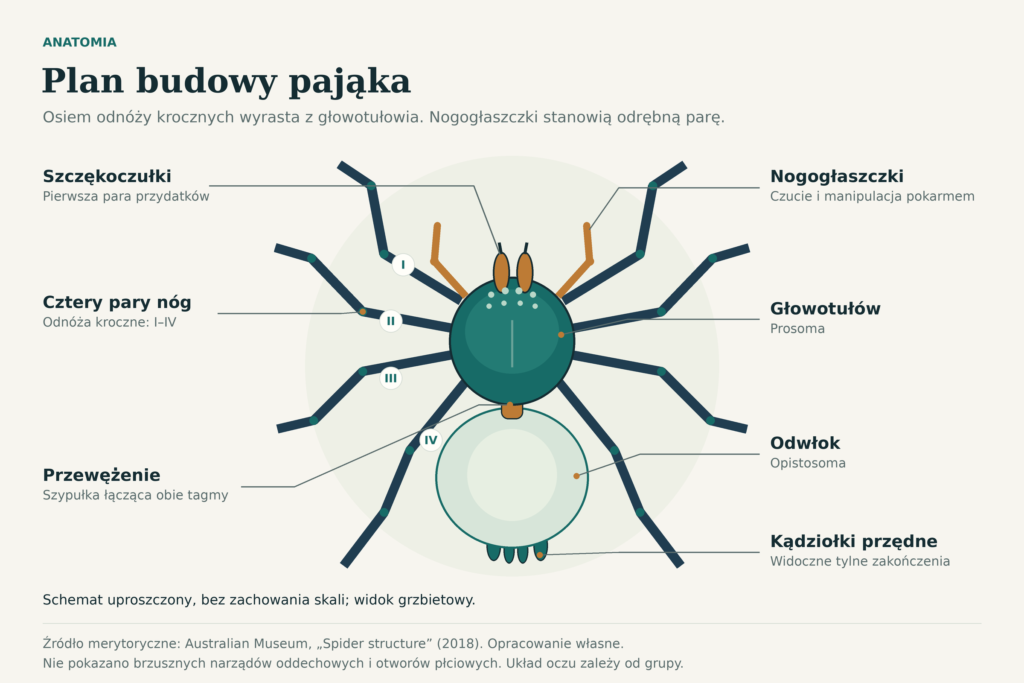
Pajęczaki zalicza się do stawonogów, czyli zwierząt o członowanych odnóżach i zewnętrznym szkielecie. W tradycyjnej klasyfikacji Arachnida są gromadą w obrębie szczękoczułkowców (Chelicerata). Charakterystyczne przednie przydatki nazywa się szczękoczułkami. Za nimi znajduje się para nogogłaszczków, a dalej typowo cztery pary nóg. Pajęczaki nie mają prawdziwych czułków ani skrzydeł. Ich przednie przydatki mogą jednak wyglądać jak dodatkowe nogi, szczypce lub wydłużone narządy dotyku. [5]
Najbardziej użyteczną regułą terenową jest porównanie dorosłego pająka z dorosłym owadem. Pająk ma cztery pary nóg, owad trzy. U pająka widoczne są zwykle dwa główne regiony ciała: głowotułów i odwłok, połączone wąskim przewężeniem. U owada wyróżnia się głowę, tułów i odwłok. Trzeba oglądać miejsca osadzenia odnóży, nie tylko liczyć wystające elementy: nogogłaszczki nie są piątą parą nóg. [5]
Ta reguła nie jest uniwersalnym kluczem do wszystkich stadiów i wszystkich grup. Larwy roztoczy zwykle mają trzy pary nóg, natomiast nimfy i postacie dorosłe najczęściej cztery. Szpeciele mają tylko dwie pary również jako osobniki dorosłe. U Amblypygi pierwsza para nóg służy głównie odbieraniu bodźców, a do chodzenia wykorzystywane są trzy pozostałe pary. Liczba nóg jest więc dobrym początkiem rozpoznania, lecz wymaga informacji o stadium rozwojowym i budowie całego zwierzęcia. [6][7]
| Cecha | Typowy dorosły pajęczak | Typowy dorosły owad |
|---|---|---|
| Nogi | Cztery pary; istnieją wyjątki i modyfikacje funkcji. | Trzy pary osadzone na tułowiu. |
| Czułki | Brak prawdziwych czułków. | Jedna para. |
| Skrzydła | Brak. | Mogą występować; liczne owady są bezskrzydłe. |
| Przednie przydatki | Szczękoczułki i nogogłaszczki. | Zróżnicowany aparat gębowy, bez szczękoczułków. |
| Regiony ciała | Zwykle prosoma i opistosoma; granice mogą być zatarte. | Głowa, tułów i odwłok. |
| Pułapka identyfikacji | Larwa kleszcza ma sześć nóg. | Brak skrzydeł nie wyklucza owada. |
Tabela porządkuje typowe cechy, a nie wszystkie odstępstwa od planu budowy. [5][6]
Kosarz ma ciało wyglądające często jak jednolita owalna bryłka, bez wyraźnej pająkowej szypułki. Nie oznacza to, że jest pająkiem o nietypowym odwłoku: należy do osobnego rzędu Opiliones. Podobnie zaleszczotek przypomina małego skorpiona ze szczypcami, ale nie ma jego wydłużonej metasomy zakończonej telsonem. Rozpoznawanie dużej grupy powinno poprzedzać próbę dopasowania nazwy gatunkowej do koloru lub kształtu plam. [8][9]
Rozdział 3Systematyka i skala poznanej różnorodności
Nazwa naukowa porządkuje wiedzę, lecz nie jest niezmienną etykietą. Gatunek może zostać przeniesiony do innego rodzaju, dwie nazwy mogą okazać się synonimami, a populacje traktowane wcześniej jako jeden gatunek mogą zostać rozdzielone. Dlatego wzrost liczby pozycji katalogowych nie oznacza, że w tym samym czasie powstało tyle nowych gatunków. Obejmuje odkrycia i opisy, ale także rewizje wcześniejszych decyzji.
W World Spider Catalog odczytanym podczas przygotowywania artykułu znajdowało się 54 251 uznanych gatunków pająków, 4538 rodzajów i 139 rodzin. Jest to migawka wersji 27 z 2026 r. Liczba odnosi się do Araneae, nie do całej gromady Arachnida. Baza jest aktualizowana na bieżąco, dlatego inny dzień odczytu lub starsza kopia strony mogą dać odmienny wynik. [2]
Nie podajemy jednej pozornie dokładnej liczby wszystkich pajęczaków. Opracowania poszczególnych grup różnią się kompletnością, datą i zakresem. Szczególnie kłopotliwe są roztocze: tradycyjne Acari obejmują Acariformes i Parasitiformes, a ranga tych jednostek zależy od systemu. Kleszcze należą do roztoczy; dodanie ich do liczby Acari jako niezależnej grupy prowadziłoby do podwójnego liczenia. [11]
| Grupa | Liczba | Zakres i źródło |
|---|---|---|
| Pająki · Araneae | 54 251 | Uznane gatunki w WSC, wersja 27; odczyt 12.11.2026. [2] |
| Zaleszczotki · Pseudoscorpiones | 4404 | Gatunki współczesne w odczytanym module WAC. [12] |
| Solfugi · Solifugae | 1224 | Gatunki współczesne w odczytanym module WAC. [13] |
| Schizomida | 382 | Gatunki współczesne w odczytanym module WAC. [14] |
| Amblypygi | 287 | Gatunki współczesne w odczytanym module WAC. [15] |
| Palpigradi | 139 | Gatunki współczesne w odczytanym module WAC. [16] |
| Uropygi | 133 | Gatunki współczesne w odczytanym module WAC. [17] |
| Ricinulei | Ponad 100 | Zaokrąglenie ostrożnościowe: statystyka modułu i nowszy dziennik zmian nie miały jednolitej daty. [18] |
| Skorpiony · Scorpiones | 2918 | Żyjące gatunki w rewizji Prendiniego (2026), zakres opracowania do końca 2025 r.; nie bieżący licznik. [19] |
| Kosarze · Opiliones | Około 6900 | Ujęcie katalogowe Kury i in. (2026); praca obejmuje także taksony kopalne. [20] |
| Roztocze · tradycyjne Acari | Ponad 54 000 | Przybliżenie przywołane przez AAS za Beaulieu i in. (2019); nie pełny spis z 2026 r. [21][22] |
Nie należy sumować kolumny liczbowej. Łączy ona bieżące odczyty katalogów z datowanymi rewizjami i przybliżeniami o odmiennym zakresie.
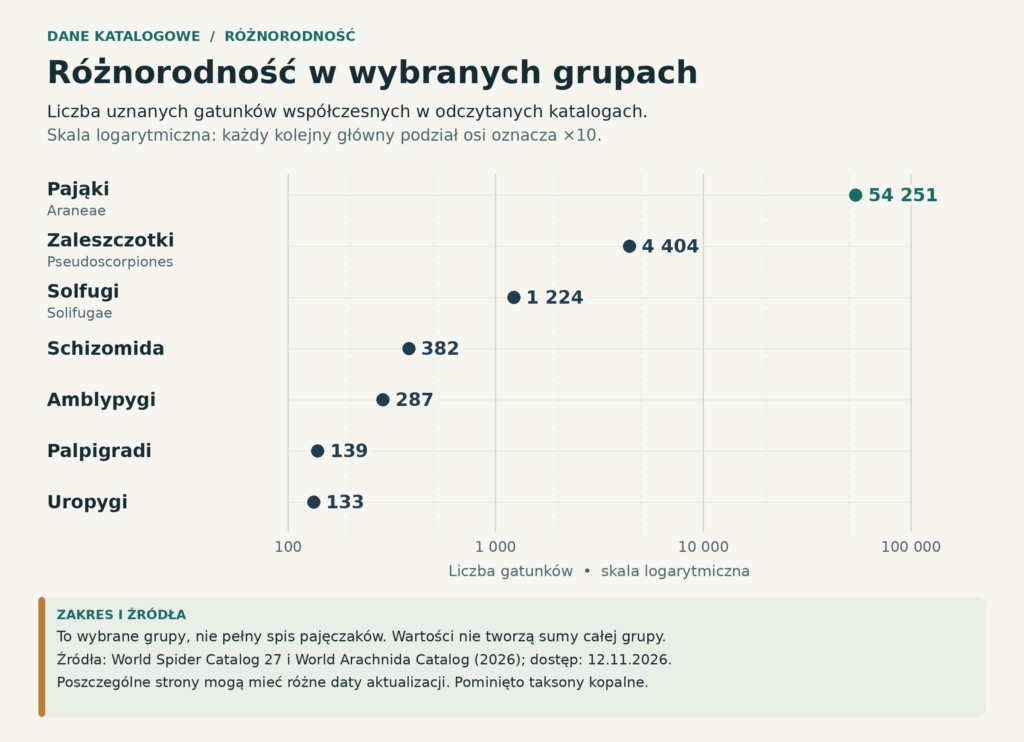
Liczebność gatunkowa nie mierzy ekologicznej dominacji. Grupa opisana w setkach gatunków może lokalnie odgrywać ważną rolę, a grupa licząca dziesiątki tysięcy może pozostawać słabo rozpoznana w konkretnym kraju. Trzeba też odróżniać gatunek od rekordu w bazie: jeden gatunek może mieć tysiące obserwacji, a jedna lista może zawierać równocześnie gatunki, podgatunki i synonimy. Dobra tabela podaje jednostkę liczenia oraz źródło, zamiast traktować liczbę wierszy jako wynik biologiczny.
Rozdział 4Ewolucja i granice współczesnej wiedzy
Pajęczaki mają głęboką historię sięgającą paleozoiku. Nie należy jednak utożsamiać wieku całej linii ewolucyjnej z wiekiem jej najstarszego znanego przedstawiciela ani z momentem zajęcia lądu. Skamieniałość dostarcza dowodu obecności organizmu w określonym miejscu i czasie. Brak starszych znalezisk nie dowodzi, że wcześniej jego linia nie istniała.
Dobrym przykładem są trigonotarbidy Palaeocharinus z krzemieni Rhynie w Szkocji, datowanych na około 408 mln lat. Badania ich aparatu gębowego, obejmujące mikroskopię i modele przestrzenne, wskazują na przystosowania do pobierania płynnego pokarmu. Były to jednak Trigonotarbida, wymarła grupa pajęczaków, a nie właściwe pająki z rzędu Araneae. Ilustracji takiego zwierzęcia nie należy podpisywać „najstarszy pająk” tylko dlatego, że przypomina go sylwetką. [23]
Otwartym problemem pozostaje pokrewieństwo najgłębszych linii szczękoczułkowców. Analiza Ballesterosa i współautorów z 2022 r., obejmująca 506 genomów i transkryptomów, umieściła skrzypłocze wewnątrz tradycyjnie rozumianych pajęczaków. Inne badania, łączące dane molekularne, morfologię i skamieniałości, wspierały monofiletyczność Arachnida, czyli pochodzenie grupy od wspólnego przodka wraz ze wszystkimi jego potomkami. Różnica nie jest wyłącznie terminologiczna: zmienia scenariusze przechodzenia między środowiskiem wodnym a lądowym. [24][25]
W tym artykule używamy tradycyjnego zakresu nazwy „pajęczaki” do porządkowania informacji o biologii. Nie przedstawiamy tego zakresu jako definitywnie rozstrzygniętego drzewa rodowego. Skrzypłocze są ważnym elementem dyskusji o ewolucji Chelicerata, lecz nie dodajemy ich automatycznie do tabeli liczebności tradycyjnych rzędów. Podobnie określenie „morskie pająki” dotyczy Pycnogonida i nie oznacza morskich przedstawicieli rzędu Araneae.
Także Acari pozostają przedmiotem analiz. Praca Bhoi i współautorów z 2026 r. wykorzystała 90 genomów, ultrakonserwowane elementy DNA oraz dawne powiązania genów. Wspierała monofiletyczność Acariformes i Parasitiformes rozpatrywanych osobno. Nie jest to automatyczny dowód, że całe tradycyjne Acari tworzą jedną bezsporną gałąź. W publikacji popularnonaukowej wystarczy ujawnić tę niepewność i unikać rysowania kategorycznych relacji tam, gdzie konkurują różne wyniki. [11]
Co do rekonstrukcji ewolucji wnosi genom
Genom pozwala porównywać nie tylko pojedyncze podobieństwa, lecz także układ i liczbę kopii genów. Schwager i współautorzy opisali w 2017 r. genom Parasteatoda tepidariorum, wykazując liczne duplikacje, w tym dwa zespoły genów Hox, związanych z rozwojem osi ciała. Porównanie ze skorpionem Centruroides sculpturatus wspierało hipotezę dawnego podwojenia genomu we wspólnej linii przodków pająków i skorpionów. Autorzy odróżnili ten proces od duplikacji rozpoznanych u skrzypłoczy. [26]
Podwojenie nie oznacza, że współczesny organizm ma po dwie identyczne kopie każdego dawnego genu. Kopie mogą zanikać albo stopniowo różnicować funkcje. W badaniu analizowano również ekspresję genów, czyli to, gdzie i kiedy są aktywne. Właśnie połączenie danych o sekwencji, położeniu i ekspresji czyni genomikę użyteczną dla biologii rozwoju. Samo stwierdzenie duplikacji nie dowodzi natomiast, że była ona jedyną przyczyną pojawienia się jedwabiu, jadu lub konkretnego planu budowy. [26]
Rozdział 5Anatomia i fizjologia
Dwie tagmy i zróżnicowane przydatki
U pająków prosoma, nazywana głowotułowiem, skupia aparat gębowy i odnóża. Opistosoma, czyli odwłok, mieści znaczną część narządów związanych z trawieniem, rozrodem i oddychaniem. Te nazwy opisują regiony ciała, nie prosty zestaw identycznych kształtów. U kosarzy granica między nimi jest słabo widoczna, a u roztoczy organizacja zewnętrzna została silnie zmodyfikowana. Termin „głowotułów i odwłok” jest użyteczny, o ile nie narzuca się wszystkim grupom pająkowej sylwetki. [27][21]
Szczękoczułki mogą przekłuwać, rozdrabniać lub manipulować pokarmem. U skorpionów dominujące wizualnie szczypce są nogogłaszczkami, nie szczękoczułkami. U pająków nogogłaszczki uczestniczą w odbieraniu bodźców i kontakcie z pokarmem; u dojrzałych samców ich zakończenia służą przekazywaniu nasienia. Takie różnice funkcji wyjaśniają, dlaczego pozornie podobne „szczypce” albo „czułki” nie zawsze są tym samym narządem. [10][28]
Oskórek i wzrost
Zewnętrzny szkielet jest jednocześnie osłoną, powierzchnią przyczepu mięśni i strukturą uczestniczącą w ograniczaniu utraty wody. Jego względna sztywność utrudnia ciągłe zwiększanie rozmiarów, dlatego wzrost wiąże się z linieniem. Tuż po zrzuceniu starego oskórka zwierzę jest szczególnie wrażliwe, zanim nowa osłona stwardnieje. Pustej wylinki nie należy automatycznie uznawać za martwego pajęczaka. [27]
Oddychanie i gospodarka wodna
Pajęczaki korzystają z różnych rozwiązań oddechowych. Płucotchawki mają liczne cienkie blaszki zwiększające powierzchnię wymiany gazowej. Tchawki tworzą układ przewodów doprowadzających powietrze. W zależności od grupy mogą występować jedne, drugie albo obie struktury. Skorpiony mają cztery pary płucotchawek. U bardzo małych Palpigradi wymianę gazową wiąże się przede wszystkim z cienką powierzchnią ciała; szczegóły fizjologii tej grupy pozostają słabiej poznane. [29][30]
Nie da się więc uczciwie opisać wszystkich pajęczaków jednym zdaniem „oddychają płucami”. Rozmiar, mikrośrodowisko i budowa osłon ciała współtworzą możliwości zwierzęcia. Podobny problem dotyczy aktywności: osobnik ukryty w wilgotnej szczelinie doświadcza innych warunków niż zwierzę na odsłoniętej powierzchni. Temperatura podawana dla całego regionu nie jest równoznaczna z temperaturą i wilgotnością konkretnej kryjówki. To istotne przy interpretacji obserwacji przyrodniczych i porównywaniu siedlisk.
Trawienie nie jest jednym procesem dla całej grupy
Wiele drapieżnych pajęczaków wykorzystuje trawienie rozpoczynające się poza właściwą jamą przewodu pokarmowego: wydzieliny pomagają rozkładać tkanki ofiary, a następnie pobierany jest pokarm płynny. Nie należy jednak przenosić popularnego opisu odżywiania pająka na wszystkie roztocze czy kosarze. W obrębie pajęczaków spotyka się drapieżniki, pasożyty, roślinożerców oraz organizmy związane z grzybami i rozkładającą się materią. Zróżnicowanie diety jest równie istotne jak wspólne cechy budowy. [31][21]
Hemolimfa, ruch i wydalanie
Pająki mają otwarty układ krążenia. Grzbietowo położone, rurkowate serce tłoczy hemolimfę do naczyń; część drogi płyn pokonuje w przestrzeniach między narządami. Kierunek przepływu wyznaczają układ tych przestrzeni i różnice ciśnień. [27]
Ruch łączy pracę mięśni z hydrauliką. W stawach udowo-rzepkowym i piszczelowo-nadstopowym brak mięśni prostowników; w odciążonej nodze prostowanie zapewnia ciśnienie hemolimfy. [32] Nie oznacza to, że wszystkie siły napędowe powstają hydraulicznie: podczas ucieczki dużego pająka Ancylometes concolor wykazano dominującą rolę mechanizmów mięśniowych w napędzie tylnych nóg. [33]
W wydalaniu uczestniczą cewki Malpighiego połączone z przewodem pokarmowym, a ważnym wydalanym związkiem azotowym jest guanina. [27] Gruczoły biodrowe uczestniczą także w gospodarce wodnej i jonowej: ich działanie podczas odżywiania i odwodnienia zbadano doświadczalnie u Porrhothele antipodiana. Wyniku tego nie należy automatycznie przenosić na każdy gatunek. [34]
Rozdział 6Jak pajęczaki odbierają świat
Wiele informacji dociera do pajęczaka przez kontakt z powierzchnią, drgania i ruch powietrza. Szczecinki nie są tylko „owłosieniem”: część stanowi wyspecjalizowane struktury czuciowe. Trichobotria reagują na subtelne ruchy powietrza, a narządy szczelinowe na odkształcenia oskórka. Zwierzę może wykrywać nadchodzącą ofiarę lub zagrożenie bez tworzenia szczegółowego obrazu otoczenia. [35]
Sieć jest dla jej budowniczego także medium informacyjnym. Drgania powstające w różnych miejscach mogą oznaczać ofiarę, partnera, ruch powietrza albo uszkodzenie konstrukcji. Reakcja nie wynika wyłącznie z obecności drgań, lecz z ich cech i sytuacji. Użyteczne jest tu rozróżnienie między narządem zmysłu a strukturą środowiskową, która dostarcza mu sygnału: nić nie zastępuje receptorów, ale rozszerza obszar kontaktu zwierzęcia z otoczeniem. [35][36]
Wzrok ma różne znaczenie w różnych liniach. U wielu pająków występuje osiem oczu prostych, lecz ich liczba i układ bywają inne; część gatunków jaskiniowych ma oczy zredukowane. U skakunów duże przednie oczy główne umożliwiają dokładną analizę obrazu, a pozostałe pary pomagają wykrywać ruch i obserwować szersze otoczenie. Samo policzenie oczu nie opisuje więc jakości widzenia. [31][37]
U skorpionów szczególną strukturą są grzebienie, czyli pectines, na brzusznej stronie ciała. Uczestniczą w odbieraniu bodźców z podłoża. Skorpion może reagować na drgania mimo ograniczonej szczegółowości widzenia. Znana fluorescencja oskórka w ultrafiolecie pomaga badaczom odnajdywać osobniki, ale funkcji adaptacyjnej tego zjawiska nie należy przedstawiać jako ostatecznie wyjaśnionej. [29]
Amblypygi dostarczają efektownego przykładu przewagi informacji pozawzrokowej. W doświadczeniu na Paraphrynus laevifrons osobniki przemieszczano o 10 m od kryjówek. Zakłócenie działania końców wydłużonych nóg czuciowych utrudniało powrót, podczas gdy samo ograniczenie widzenia nie wywoływało porównywalnego efektu. Wynik dotyczy badanego gatunku i procedury; pokazuje znaczenie nóg antenniformnych, lecz nie dowodzi, że wszystkie pajęczaki nawigują w ten sam sposób. [38]
Rzetelny opis zachowania wymaga zatem oddzielenia obserwacji od ludzkiej interpretacji. Nagła zmiana kierunku nie musi oznaczać „ataku”, a bezruch nie dowodzi braku odbierania bodźców. W badaniu można manipulować światłem, ruchem powietrza lub dostępnością sygnałów z podłoża i dopiero wtedy oceniać, które informacje wpływają na reakcję. Takie doświadczenia pozwalają zastąpić intuicyjne historie sprawdzalnymi hipotezami.
Rozdział 7Percepcja, wybór drogi i sen w badaniach eksperymentalnych
Widzenie barw zależy od budowy oka
Badania skakunów Habronattus ujawniły filtr barwny umieszczony w siatkówce oczu głównych. Przepuszcza on przede wszystkim światło o dłuższej fali i przesuwa efektywną czułość części fotoreceptorów z zieleni ku czerwieni. W połączeniu z pozostałymi receptorami daje to podstawę widzenia trójchromatycznego. Istotny jest mechanizm: dodatkowy kanał barwny może wynikać z filtrowania docierającego światła, a nie wyłącznie z powstania nowego barwnika światłoczułego. U badanych gatunków jest to ważny kontekst interpretacji barwnych ornamentów. Sam fakt, że człowiek widzi kolorowy wzór na samcu, nie mówi jeszcze, jak odbiera go samica; potrzebna jest wiedza o jej receptorach. [39]
Droga do celu może początkowo prowadzić od niego
W klasycznym badaniu Tarsitana i Jacksona Portia fimbriata wybierała między dwiema drogami, z których tylko jedna prowadziła do przynęty: martwego, wysuszonego pająka. Zastosowano 12 różnych układów doświadczalnych. Zamiast sprawdzać, czy drapieżnik ruszy po prostej ku widocznej zdobyczy, badano wybór przejścia prowadzącego do niej okrężnie. Rozdzielenie geometrycznej bliskości i osiągalności celu pozwala badać przetwarzanie informacji o przestrzeni. Zadanie to nie przypomina swobodnej obserwacji polowania: jego wartość polega właśnie na kontrolowaniu dostępnych dróg i wskazówek. [40]
Cross i Jackson rozszerzyli później podobne podejście na 15 gatunków skakunów z podrodziny Spartaeinae, specjalizujących się w zjadaniu innych pająków. Wszystkie badane gatunki wybierały właściwe przejście istotnie częściej niż błędne. Po zejściu z punktu startowego przynęta znikała z pola widzenia, dlatego dalsze podążanie właściwą trasą nie mogło opierać się tylko na ciągłym patrzeniu na zdobycz. Wynik wspiera zdolność zachowania informacji potrzebnej do wykonania obejścia. Nie wyznacza jednak jednej miary „inteligencji pająka”: badanie dotyczy określonego zadania i grupy o szczególnej ekologii pokarmowej. [41]
Od ruchów siatkówek do behawioralnych kryteriów snu
W 2022 r. u nocą odpoczywających Evarcha arcuata opisano nawracające epizody ruchów siatkówek, drgania odnóży i charakterystyczne podkurczanie nóg. U młodych, słabo pigmentowanych osobników wnętrze ciała pozwalało obserwować ruchy struktur wzrokowych bez inwazyjnej preparatyki. Zespół Rößler przedstawił te zjawiska jako stan podobny do REM. Był to precyzyjnie opisany wzorzec zachowania, a nie odczyt treści doświadczeń zwierzęcia. W nauce obserwowany ruch oka, określenie stadium snu i hipoteza o marzeniu sennym pozostają różnymi poziomami wnioskowania. [42]
Kolejna praca, opublikowana online 26 października 2026 r., dostarczyła szerszych testów u Portia fimbriata. Geiger i współautorzy wykazali dobową organizację aktywności, utrzymywanie rytmu w stałych warunkach, uporządkowane okresy spoczynku oraz epizody podobne do REM. Badali również próg wybudzenia i kompensacyjne zmiany po zakłócaniu snu. Łączne zastosowanie tych kryteriów pozwoliło autorom uznać badany stan za sen w rozumieniu behawioralnym. Wartość tej pracy polega na przejściu od podobieństwa wyglądu do sprawdzania właściwości regulacyjnych. Nadal nie jest to dowód, że zwierzę ma marzenia senne o określonej treści. [43]
Te przykłady pokazują, jak buduje się wyjaśnienie zachowania. Najpierw określa się mierzalną odpowiedź, następnie zmienia jeden z elementów sytuacji i sprawdza, czy wynik się utrzymuje. Podczas badania orientacji rozdziela się widoczność celu od dostępności drogi; przy analizie zalotów rozdziela obraz od drgań; przy badaniu snu odróżnia bezruch od stanu o zmienionej reaktywności. Taki sposób porównywania badań pomaga czytelnikowi ocenić nie tylko atrakcyjność odkrycia, lecz także to, jakie pytanie rzeczywiście rozstrzygnięto. [41][44][43]
Rozdział 8Jedwab i jad jako narzędzia biologiczne
Jedwab jest rodziną materiałów
Jedwab pająków powstaje z wydzielin gruczołów przędnych. Jego głównymi składnikami są spidroiny: białka magazynowane w postaci rozpuszczalnej i przekształcane we włókno podczas przędzenia. Andersson i współautorzy wykazali znaczenie zmian pH oraz anhydrazy węglanowej w tym procesie. Skład białek i warunki formowania nici współtworzą właściwości gotowego materiału. [45]
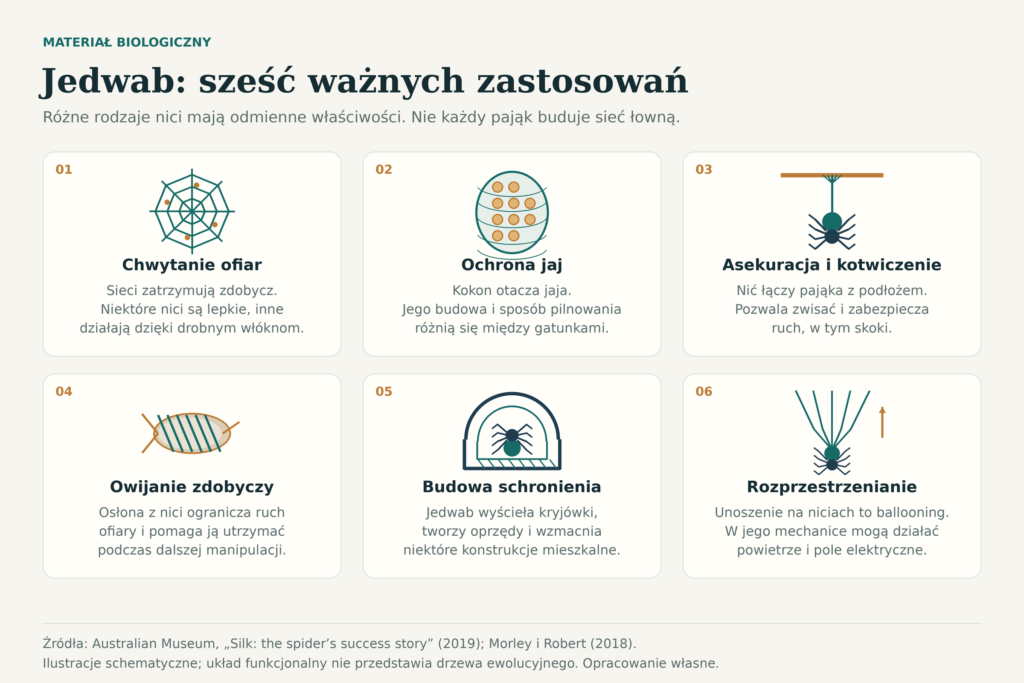
W klasycznej sieci kolistej rama i promienie tworzą konstrukcję, a spirala chwytna zatrzymuje ofiary. Część pająków korzysta z lepkich kropli, inne z gęstych, bardzo drobnych włókien. Sieć łowna jest tylko jednym z zastosowań jedwabiu. Nić może służyć bezpiecznemu przemieszczaniu, wyściełaniu kryjówki, owijaniu zdobyczy, ochronie potomstwa albo rozprzestrzenianiu się. Pająk polujący skokiem nadal może wytwarzać jedwab, nawet jeśli nie buduje widocznej pułapki. [36]
Co znaczy wytrzymały materiał
Właściwości mechaniczne wymagają precyzyjnego słownictwa. Wytrzymałość na rozciąganie opisuje naprężenie, przy którym włókno ulega zerwaniu. Wydłużenie określa, o ile może się rozciągnąć. Sztywność informuje, jak mocno opiera się odkształceniu. Z kolei toughness oznacza energię pochłoniętą przed zerwaniem w przeliczeniu na objętość. Materiał może mieć dużą wartość jednej cechy i umiarkowaną innej; slogan „mocniejszy od stali” nie wyjaśnia, co faktycznie porównano.
| Parametr | Wynik | Zakres interpretacji |
|---|---|---|
| Materiał | Główny jedwab ampułkowy Caerostris darwini | Włókno pobierane w określonej procedurze laboratoryjnej. |
| Średnia energia do zerwania | 354 MJ/m³ | Energia pochłaniana na jednostkę objętości, nie siła i nie naprężenie. |
| Zakres zmierzonych wartości | 233–520 MJ/m³ | Rozrzut wyników badanego materiału; nie zakres dla wszystkich pająków. |
| Publikacja | Agnarsson i in., 2010 | Wynik historyczny; nie deklaracja aktualnego rekordu świata. |
Źródło: oryginalna praca eksperymentalna w PLOS ONE. [48]
Tak podane dane są użyteczne także poza zoologią: pokazują, dlaczego inżynierowie badają materiały biologiczne. Nie oznaczają jednak, że dowolna nić znaleziona w domu ma te same parametry albo że wyrób przemysłowy z białka podobnego do spidroiny automatycznie je zachowa. Metoda wytwarzania, średnica włókna i warunki badania należą do opisu wyniku, a nie do nieistotnych szczegółów.
Jad służy przede wszystkim interakcjom z innymi zwierzętami
Jad jest mieszaniną substancji wprowadzanych do organizmu innego zwierzęcia za pomocą wyspecjalizowanego aparatu. Jego działanie należy rozpatrywać w kontekście ofiary i sposobu polowania. Większość pająków wykorzystuje aparat jadowy związany ze szczękoczułkami, ale istnieją wyjątki. U Uloboridae brak typowych gruczołów jadowych; zdobycz jest intensywnie owijana. Badania z 2025 r. wykazały przy tym obecność składników podobnych do toksyn w układzie trawiennym i aktywność wydzielin trawiennych. „Brak aparatu jadowego” nie oznacza zatem braku biologicznie aktywnych cząsteczek. [49]
Nie wszystkie pajęczaki są jadowite. Kosarze nie mają pająkowego aparatu jadowego ani nie wytwarzają jedwabiu. U części zaleszczotków jad uchodzi przez palce szczypiec nogogłaszczków, a jedwab przez struktury szczękoczułków. To dwa dobre przykłady, dlaczego narzędzi pająka nie można uznać za obowiązkowe cechy całej gromady. Sama obecność jadu również nie jest miarą zagrożenia dla człowieka. [50][9]
Rozdział 9Strategie łowieckie i specjalizacja pokarmowa
Polowanie można podzielić na wykrycie zdobyczy, dotarcie do niej, zatrzymanie i obezwładnienie. U pająków poszczególne etapy bywają realizowane przez różne narzędzia: wzrok, drgania, zachowanie ciała, jedwab i wydzieliny gruczołów. Dzięki temu podobny cel może zostać osiągnięty przez odmienne rozwiązania. Duża sieć pozostawiona między roślinami, niewielka siatka trzymana w odnóżach i lepka kropla na pojedynczej nici nie są wariantami jednej techniki: inaczej przechwytują ofiarę i wymagają od łowcy innych informacji. [51][52][53]
Sieć działa jako materiał i jako konstrukcja
Cranford i współautorzy połączyli eksperymenty odkształcania sieci z symulacjami mechanicznymi. Wykazali, że znaczenie ma nieliniowa odpowiedź nici na obciążenie: początkowe zmniejszenie sztywności, a następnie silne usztywnianie przy dużych odkształceniach. Taka odpowiedź może skupiać uszkodzenie w ograniczonej części konstrukcji. Zerwanie jednej nici nie musi więc pociągać za sobą zniszczenia całej sieci. Jest to właściwość układu złożonego z materiału i geometrii, a nie wyłącznie laboratoryjnego włókna. W analizie architektury pajęczyny warto zatem osobno pytać, jaką siłę wytrzymuje nić i jak sieć rozdziela obciążenie między swoje elementy. [51]
Wyrzucanie lepkiej wydzieliny i zarzucanie siatki
Pająki z rodzaju Scytodes potrafią z odległości przytwierdzić ofiarę do podłoża lepką wydzieliną wyrzucaną ze szczękoczułków. Strumień układa się w zygzakowaty wzór; do skuteczności przyczyniają się zarówno przyleganie, jak i kurczenie się materiału. Przytwierdzoną ofiarę pająk następnie kąsa, wprowadzając jad do jej ciała. Analiza transkryptomu i białek tej wydzieliny pokazuje, że potoczne słowo „plucie” ukrywa wyspecjalizowany układ biologiczny. Nie jest to wypuszczanie zwykłej nici z kądziołków. Rozdzielenie działania mechanicznego i chemicznego ułatwia zrozumienie, w którym momencie ofiara zostaje zatrzymana, a w którym obezwładniona toksykologicznie. [54]
U pająka opisanego w badaniu jako Deinopis spinosa pułapka ma postać małej siatki trzymanej między czterema przednimi nogami. Atak skierowany ku podłożu korzysta z informacji wzrokowej, natomiast gwałtowny atak wstecz może przechwytywać lecące owady. W doświadczeniach dźwięk wywoływał ten drugi rodzaj ruchu. Reakcje układu nerwowego stwierdzano w szerokim zakresie częstotliwości, lecz nie każda częstotliwość wywoływała polowanie. Różnica między wykryciem sygnału a wykonaniem ataku jest tu szczególnie wyraźna: aparat zmysłowy odbiera więcej informacji, niż prowadzi bezpośrednio do zdobycia pokarmu. [52]
Bolas i wąska specjalizacja pokarmowa
Późne stadia samic Mastophora hutchinsoni polują, wymachując nicią zakończoną lepką kroplą, zwaną bolas. Młode po wykluciu korzystają z innej taktyki i czatują na drobne stawonogi przy brzegach liści. W badaniu terenowym Yeargana z dwóch stanowisk w Kentucky odnotowano 492 ofiary schwytane w latach 1985–1986; 93% stanowiły dwa gatunki ciem. Schwytane ćmy były samcami, co wraz z ich zachowaniem wspierało hipotezę zwabiania przez naśladowanie sygnału chemicznego samicy. Liczby te opisują konkretną populację i próbę. Dobrze ilustrują jednak, jak wybiórcze może być polowanie pająka w środowisku pełnym innych owadów. [53]
| Rozwiązanie | Przykład | Sposób zatrzymania | Co decyduje o skuteczności |
|---|---|---|---|
| Sieć jako konstrukcja | Badane sieci i modele mechaniczne | Przenoszenie obciążenia przez układ nici. | Współdziałanie geometrii i właściwości materiału. [51] |
| Wyrzucana lepka wydzielina | Scytodes | Przytwierdzenie ofiary do powierzchni. | Przyleganie i kurczenie się wydzieliny; później jad. [54] |
| Siatka trzymana w nogach | Deinopis spinosa w pracy z 2020 r. | Aktywne narzucenie siatki. | Bodźce wzrokowe lub akustyczne, zależnie od ataku. [52] |
| Bolas | Samice Mastophora hutchinsoni | Kontakt lecącej ćmy z lepką kroplą. | Wybiórczość ofiar i dopasowanie aktywności łowcy. [53] |
| Podejście trasą okrężną | Portia fimbriata | Osiągnięcie pozycji umożliwiającej kontakt ze zdobyczą. | Wybór drogi prowadzącej do celu. [40] |
Zestawienie funkcjonalne; wymienione rozwiązania nie wyczerpują różnorodności polowania pająków.
Rozdział 10Od jedwabiu do biomateriałów
Jedwab łączy trzy poziomy organizacji: sekwencję białka, sposób uporządkowania jego cząsteczek i architekturę gotowego włókna. Każdy poziom można badać osobno, ale właściwości nici powstają przez ich współdziałanie. Dlatego przeniesienie biologicznego rozwiązania do technologii wymaga zarówno wytworzenia odpowiedniego materiału, jak i odtworzenia warunków jego formowania. Wynik testu rozciągania opisuje konkretną próbkę otrzymaną w konkretnej procedurze.
Przędzenie jest kontrolowaną zmianą materiału
W badaniu Andersson i współautorów z 2014 r. mikroelektrody pozwoliły śledzić warunki wewnątrz gruczołu przędnego Nephila clavipes, zgodnie z nazwą używaną w publikacji. Wartość pH zmieniała się w badanych miejscach od około 7,6 do 5,7. Autorzy powiązali gradient z aktywnością anhydrazy węglanowej i odmienną odpowiedzią końcowych domen spidroin. Przędzenie jest więc procesem regulowanej reorganizacji białka, a nie samym wysychaniem dowolnej lepkiej wydzieliny. [45]
Ten mechanizm stał się inspiracją do wytwarzania nici poza organizmem. W 2017 r. Andersson i współautorzy przedstawili chimerowe minispidroiny, czyli zaprojektowane białka łączące wybrane fragmenty spidroin, oraz układ wykorzystujący wodne bufory, obniżenie pH i siły ścinające. Według opisu eksperymentu białko otrzymane z jednego litra hodowli bakteryjnej wystarczało do wytworzenia około kilometra badanego włókna. Długość nici jest tu miarą wydajności konkretnego procesu; bez jej średnicy i masy nie określa ilości gotowego materiału użytkowego. [55]
Wynik mechaniczny wymaga kilku miar
Bowen i współautorzy uzyskali rekombinowane spidroiny o masie 556 kDa, zawierające 192 powtórzenia motywu białkowego. Włókno z tego materiału osiągało wytrzymałość na rozciąganie około 1,03 GPa. Jednocześnie mierzono jego sztywność, wydłużenie i energię pochłanianą do zerwania. [56]
| Wielkość | Wynik | Znaczenie pomiaru |
|---|---|---|
| Wytrzymałość na rozciąganie | 1,03 ± 0,11 GPa | Naprężenie przy zerwaniu. |
| Moduł Younga | 13,7 ± 3,0 GPa | Sztywność w początkowym zakresie odkształcenia. |
| Wydłużenie przy zerwaniu | 18 ± 6% | Zmiana długości odniesiona do długości początkowej. |
| Energia do zerwania na objętość | 114 ± 51 MJ/m³ | Pole pod krzywą naprężenie–odkształcenie. |
Bowen i in. (2018). Wartości średnie ± odchylenie standardowe; 14 włókien na wariant. Zapis parametrów potwierdzono w publikacji i wersji autorskiej. [56][57]
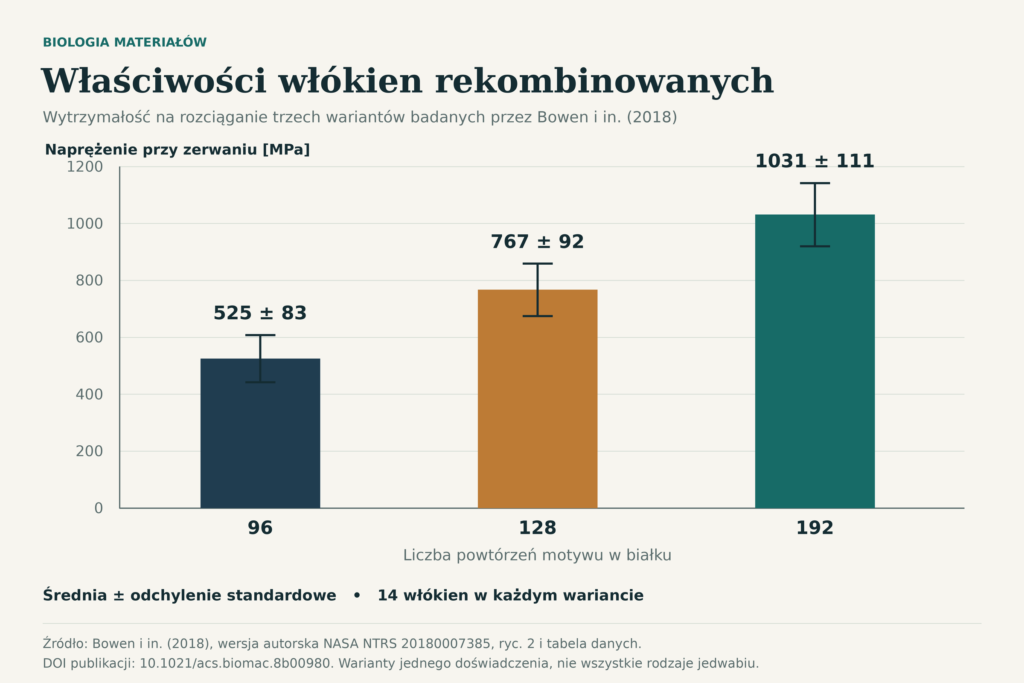
Tabela i wykres odpowiadają na różne pytania. Tabela charakteryzuje jeden wariant kilkoma parametrami; wykres porównuje jedną cechę między wariantami. Nie powinno się umieszczać wartości wyrażonych w GPa, procentach i MJ/m³ na jednej wspólnej osi liczbowej. Odchylenie standardowe opisuje rozrzut wyników próbek. Nie jest prawdopodobieństwem skuteczności materiału, przedziałem gwarancji dla produktu ani zakresem cech wszystkich nici pająków.
Trwałość w wodzie i powtarzalność procesu
Greco i współautorzy badali w 2020 r. wpływ inkubacji rekombinowanych włókien w kąpieli po przędzeniu. W zastosowanym układzie co najmniej pięć godzin inkubacji przy pH 5 zwiększało odporność na rozpuszczanie w wodzie i buforze PBS. Zmianie towarzyszyło większe wydłużenie przy zerwaniu i zwiększony udział struktur beta. Wynik dotyczył konkretnego białka oraz składu kąpieli. Pokazuje jednak, że obróbka po przędzeniu może istotnie zmieniać cechy użytkowe materiału. [58]
Ocena możliwego zastosowania wymaga następnie pytań o powtarzalność partii, koszt oczyszczania białka, stabilność podczas przechowywania, zachowanie po zmoczeniu oraz sposób łączenia włókien w większą strukturę. Wynik laboratoryjny jest punktem wyjścia do tych badań. Jeżeli celem ma być kontakt z żywą tkanką, dochodzą osobne wymagania dotyczące odpowiedzi biologicznej. Sama duża wytrzymałość nie rozstrzyga przydatności do wszystkich zastosowań.
Dla zoologii równie interesujący jest kierunek odwrotny: próba odtworzenia nici w laboratorium ujawnia, które elementy naturalnego procesu są istotne. Badania materiałowe pomagają formułować precyzyjne pytania o gruczoł przędny, a analiza biologiczna dostarcza pomysłów do projektowania włókien. To przykład współpracy dyscyplin, w której sprawdzalny mechanizm jest cenniejszy niż ogólne hasło o niezwykłości pajęczyny.
Rozdział 11Odżywianie i znaczenie w ekosystemach
Pajęczaki uczestniczą w wielu poziomach sieci pokarmowej. Pająki, skorpiony, zaleszczotki i solfugi obejmują drapieżniki zdobywające inne bezkręgowce. Wśród roztoczy występują zarówno drapieżniki, jak i pasożyty, roślinożercy oraz gatunki korzystające z zasobów gleby i rozkładającej się materii. Nie da się zatem przypisać wszystkim jednej funkcji „tępienia owadów”. Skład pokarmu i wpływ na środowisko trzeba rozpatrywać przynajmniej na poziomie grupy ekologicznej. [22][59]
Nawet u pająków dominacja drapieżnictwa nie jest tożsama z wyłącznym pobieraniem pokarmu zwierzęcego. W badaniach skakuna Bagheera kiplingi wykazano przewagę roślinnych ciałek pokarmowych w diecie. Są to struktury produkowane przez rośliny rodzaju Vachellia, związane z ich relacją z mrówkami. Obserwacje terenowe uzupełniono analizą izotopową, co pozwoliło wyjść poza pojedynczy przypadek zauważony na zdjęciu. Ten pająk nie jest jednak dowodem, że drapieżnictwo ma w Araneae małe znaczenie. [60]
Skala globalna i ograniczenia modelu
Nyffeler i Birkhofer oszacowali w pracy z 2017 r. globalną świeżą biomasę pająków na około 25 mln ton, a świeżą masę zabijanych przez nie ofiar na 400–800 mln ton rocznie. Autorzy zestawili dane z różnych biomów i zastosowali dwa podejścia obliczeniowe. Jest to ekstrapolacja, nie bezpośrednie ważenie całej światowej populacji. Zakres nie jest 95-procentowym przedziałem ufności i nie oznacza statystyki aktualizowanej każdego roku. [3]
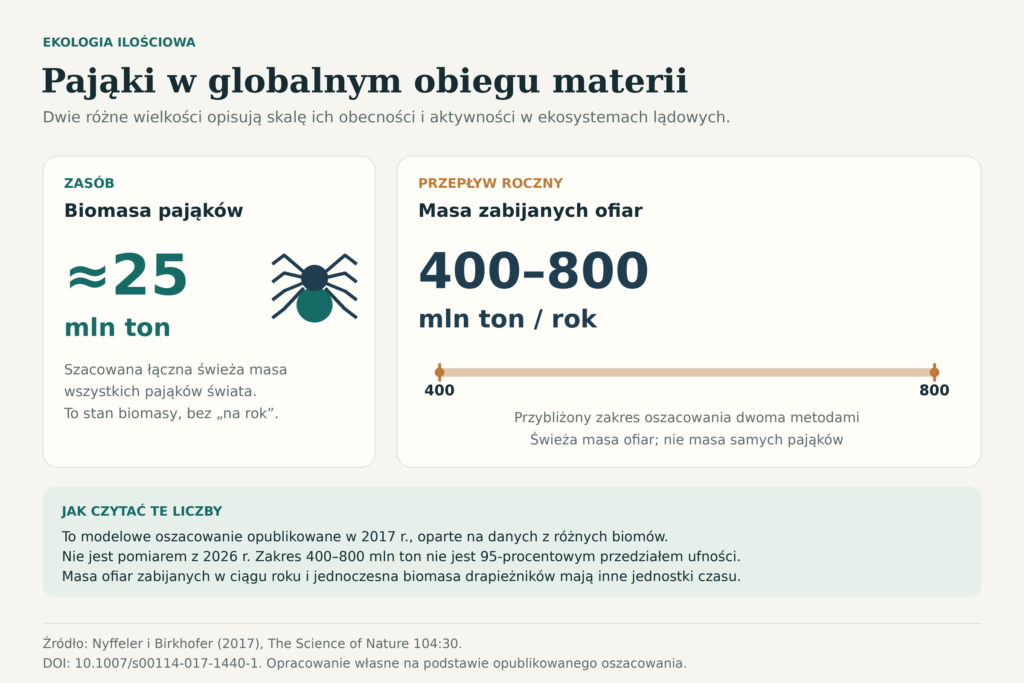
Znaczenie takiego wyniku polega na pokazaniu skali procesów ekologicznych. Nie wynika z niego, że wszystkie zabijane ofiary są szkodnikami upraw albo że taką samą presję drapieżniczą obserwuje się w każdym siedlisku. Do oceny konkretnego ogrodu, pola lub lasu potrzebne są dane o lokalnym składzie gatunkowym, dostępności pokarmu i sezonie. Globalna masa nie odpowiada też na pytanie, ile pająków żyje w jednym metrze kwadratowym.
Drapieżnik jest również pokarmem
Pajęczaki nie stoją poza siecią zależności. Same są zjadane przez inne bezkręgowce oraz kręgowce, a część drapieżnych pajęczaków poluje także na inne pajęczaki. [28] Efekt ekologiczny nie jest więc prostą sumą „liczba drapieżników razy liczba szkodników”. Zmiana liczebności jednej grupy może oddziaływać na konkurentów, inne ofiary i kolejnych konsumentów. Badania skuteczności biologicznej ochrony roślin analizują właśnie wynik tych relacji w danych warunkach. [61]
W glebie rolę małych organizmów łatwo przeoczyć, ponieważ procesy zachodzą w przestrzeniach między cząstkami podłoża i fragmentami ściółki. Obecność roztoczy nie oznacza automatycznie problemu sanitarnego ani uszkadzania korzeni. Rozpoznanie funkcji wymaga ustalenia, z jaką grupą mamy do czynienia. Kategoria „małe, ośmionogie zwierzę” jest zbyt szeroka, aby zdecydować, czy dany organizm jest pasożytem, drapieżnikiem czy elementem zespołu rozkładającego materię.
Rozdział 12Roztocze w glebie, wodzie i sieciach zależności
Akarologia odsłania część świata pajęczaków, której nie widać podczas obserwowania sieci łownych. W ściółce trzeba rozdzielić zjadanie rozkładających się tkanek roślin od korzystania z grzybów porastających te tkanki. Rozdrobniony liść jest równocześnie podłożem, kryjówką i miejscem zdobywania pokarmu. Samo znalezienie roztocza w takim materiale nie wyjaśnia jeszcze jego diety; potrzebne są pomiary odnoszące się do tego, co organizm rzeczywiście przyswaja. [62]
Mechowce: różne diety pod podobnym oskórkiem
Schneider i współautorzy zbadali proporcje stabilnych izotopów azotu u 36 gatunków lub taksonów mechowców z czterech lasów bukowych i bukowo-dębowych. Sygnatury izotopowe tworzyły rozległy gradient, interpretowany jako zajmowanie odmiennych nisz i kilku poziomów troficznych. Ważny jest sposób uzyskania wniosku: skład izotopowy tkanek odzwierciedla przyswajany pokarm w dłuższym okresie, podczas gdy zawartość przewodu pokarmowego pokazuje głównie niedawne żerowanie. Badanie podważyło traktowanie wszystkich mechowców jako jednej, jednorodnej grupy konsumentów martwej materii. [62]
W odrębnym eksperymencie trzem gatunkom mechowców oferowano dziesięć taksonów grzybów, obejmujących grzyby mikoryzowe oraz saprotroficzne. Zwierzęta pobierały również niektóre grzyby tworzące związki z korzeniami roślin, a preferencje pokarmowe różniły się między gatunkami roztoczy. To rozszerza obraz mikoryzy: grzyb będący partnerem rośliny może równocześnie stanowić pokarm zwierzęcia. Eksperyment wykazał możliwość i selektywność żerowania, ale sam nie określa bilansu tego oddziaływania dla drzewa w lesie. Właśnie połączenie wyboru pokarmu w laboratorium z pomiarami terenowymi pozwala stopniowo odtwarzać zależności w glebie. [63]
Wodopójki: zmiana sposobu życia w toku rozwoju
Wodopójki, czyli Hydrachnidia, pokazują, że funkcja ekologiczna może zmieniać się wraz ze stadium. W typowym cyklu larwa pasożytuje na owadzie, natomiast aktywna deutonimfa i osobnik dorosły są drapieżne. Etapy aktywne oddzielają stadia spoczynkowe. U form związanych z owadami latającymi kontakt z gospodarzem łączy zdobywanie pokarmu z przemieszczaniem między wodami. Pasożytnictwo larwy i późniejsze polowanie są więc częściami jednego cyklu, a nie cechami dwóch niezależnych „rodzajów roztoczy”. [64]
W badaniu z południowo-wschodniej Hiszpanii, obejmującym materiał z lat 2013–2015, sprawdzono 15 396 poczwarek meszek. Larwy wodopójek znaleziono przy 426 z nich, przeważnie w kokonach. Nie zaobserwowano przyczepienia do oskórka poczwarek. Było to około 2,8% całej zbadanej próby. Autorzy pozostawili oznaczenie larw jako Sperchon sp., ponieważ gatunku nie udało się rozstrzygnąć. Wynik dokumentuje konkretną zależność terenową; nie określa skuteczności gotowej metody zwalczania meszek ani częstości tej relacji w Polsce. [64]
Forezja i zależna od warunków współpraca
Roztocz Poecilochirus carabi podróżuje na chrząszczu Nicrophorus vespilloides, lecz podczas tego transportu nie pobiera z niego pokarmu. Relacja zmienia się po dotarciu do padliny, gdzie rozmnażają się oba organizmy. Sun i Kilner wykazali eksperymentalnie, że bez konkurencyjnych muchówek roztocze mogą obniżać sukces rozrodczy chrząszczy, konkurując o zasób. W obecności muchówek z rodziny Calliphoridae zjadają ich jaja i mogą zwiększać sukces chrząszczy. Siła efektu zależała również od temperatury i liczby roztoczy. Forezja opisuje zatem transport; nie przesądza o bilansie wszystkich późniejszych kontaktów między partnerami. [65]
| Relacja | Co zachodzi | Przykład i znaczenie |
|---|---|---|
| Grzybożerność | Pobieranie tkanek grzyba jako pokarmu. | U badanych mechowców obejmowała także wybrane grzyby mikoryzowe. [63] |
| Pasożytnictwo | Pobieranie zasobów żywego gospodarza. | Larwy wielu wodopójek wykorzystują owady; późniejsze stadia mają inną dietę. [64] |
| Forezja | Korzystanie z innego zwierzęcia jako środka transportu. | Etap podróży P. carabi na chrząszczu nie jest żerowaniem na nim. [65] |
| Mutualizm zależny od warunków | Dodatni bilans kontaktu dla obu stron w określonym układzie. | Zjadanie jaj konkurencyjnych muchówek może przynosić korzyść chrząszczowi. [65] |
Terminy opisują mechanizm relacji. Jeden gatunek może uczestniczyć w kilku takich relacjach w różnych momentach życia.
Rozdział 13Rozród, rozwój i opieka nad potomstwem
Pajęczaki nie mają jednego cyklu życiowego. Rozród może obejmować bezpośredni kontakt partnerów, przekazywanie nasienia za pomocą nogogłaszczków albo odkładanie spermatoforu pobieranego przez samicę. Różnią się także liczba etapów rozwoju, tempo dojrzewania i sposób opieki. Nie należy nadawać całej grupie jednego czasu życia ani jednej liczby jaj: wartości takie mają sens dopiero dla określonego gatunku i warunków.
U pająków samiec przekazuje nasienie za pomocą wyspecjalizowanych zakończeń nogogłaszczków. Zachowania godowe obejmują rozmaite sygnały; mogą one pomagać rozpoznać partnera i odróżnić go od zdobyczy. Opisy kanibalizmu płciowego są biologicznie interesujące, ale nie uzasadniają twierdzenia, że każdy samiec jest po kopulacji zjadany. Taki wniosek wymagałby danych obejmujących wszystkie gatunki i sytuacje, których pojedyncza obserwacja nie dostarcza. [10]
Jaja pająków są zwykle osłaniane jedwabiem. Kokony różnią się kształtem i umiejscowieniem, a samice mogą je pozostawiać, pilnować lub przenosić. Pogońcowate często noszą kokon przy kądziołkach, natomiast nasosznikowate przy szczękoczułkach. Osłona ma znaczenie mechaniczne i mikrośrodowiskowe, a opieka może ograniczać utratę potomstwa. U części pająków młode po opuszczeniu kokonu pozostają przez pewien czas w pobliżu matki. [46]
Skorpiony rodzą żywe młode. We wczesnym okresie potomstwo przebywa na grzbiecie samicy. Godowe prowadzenie partnerki pomaga w pobraniu spermatoforu z podłoża. Ten sposób rozrodu wyraźnie różni się od obrazu pająka siedzącego przy kokonie; oba przykłady pokazują różnorodność opieki wśród szczękoczułkowców. [29]
Kleszcz jako przykład rozwoju przez stadia
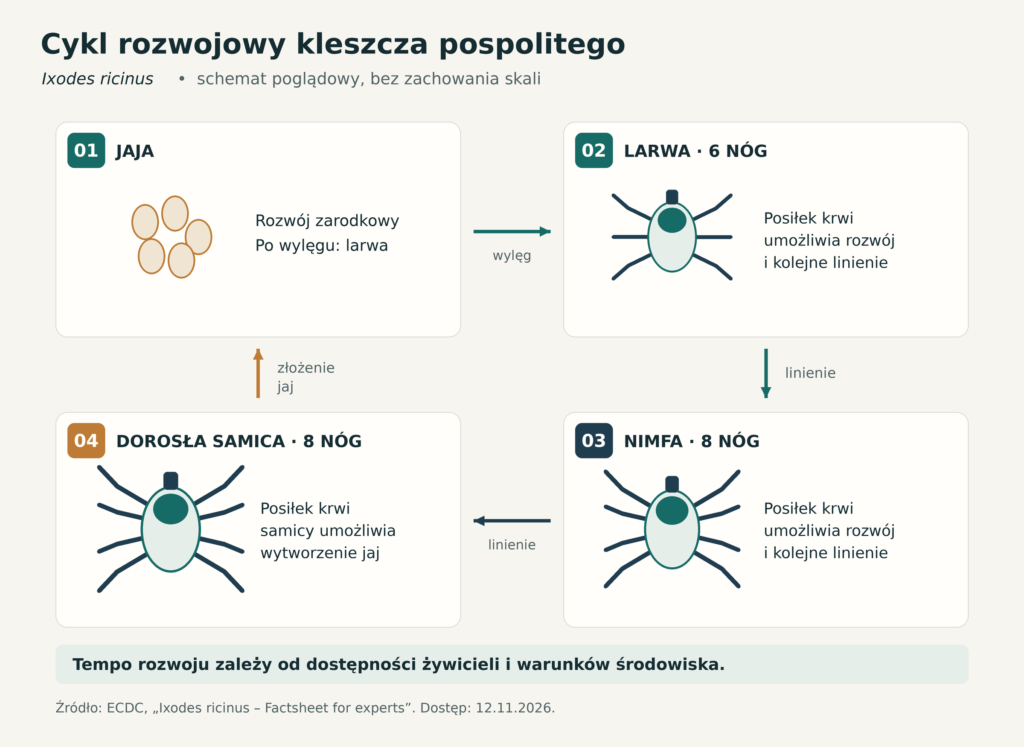
Cykl Ixodes ricinus obejmuje jajo, sześcionogą larwę, ośmionogą nimfę i osobnika dorosłego. Kolejne żerujące stadia korzystają z kolejnych osobników żywicieli, niekoniecznie różnych gatunków. [66]
Rozdział 14Zaloty, odżywianie potomstwa i życie społeczne
Zachowania rozrodcze obejmują sygnalizację, wymianę zasobów i opiekę nad młodymi. Osobnym zjawiskiem jest współpraca podczas polowania. Rozróżnienie doboru partnera, inwestycji rodzicielskiej i działań członków kolonii pozwala dokładniej porównywać wyniki badań. [67][68][69]
Sygnał godowy może docierać kilkoma drogami
U skakuna Habronattus dossenus zaloty łączą ruchy widoczne dla samicy z drganiami przenoszonymi przez podłoże. Elias i współautorzy rejestrowali oba kanały jednocześnie, wykorzystując filmowanie oraz wibrometrię laserową. Rozróżnili trzy kategorie sygnałów wibracyjnych, a eksperymentalne ograniczanie ruchów odwłoka pozwoliło oddzielić mechanizmy ich wytwarzania. Część wizualna mogła pozostać zachowana mimo wyciszenia drgań. Oglądanie samego nagrania wideo pokazuje więc tylko fragment zalotów. Ten przykład wyjaśnia również, dlaczego budowa powierzchni, na której stoi zwierzę, może być elementem jego środowiska komunikacyjnego. [44]
U Pisaura mirabilis samiec może zaoferować samicy owada owiniętego jedwabiem. W doświadczeniu Albo i współautorów porównano prezenty odżywcze, pakunki bez wartości pokarmowej i brak prezentu. Samce z bezwartościowym pakunkiem uzyskiwały kopulacje podobnie często jak oferujące pokarm, ale krótszy był czas wprowadzenia nogogłaszczków, związany z transferem nasienia. Różnica całkowitego czasu kopulacji między tymi dwiema kategoriami nie osiągnęła istotności statystycznej. To ważne rozróżnienie wyniku. Eksperyment ujawnia konflikt między korzyścią samca z uzyskania kojarzenia a korzyścią pokarmową samicy; słowo „oszustwo” opisuje tu funkcję zachowania, nie dowód świadomego zamiaru. [67]
Karmienie młodych: wyspecjalizowana wydzielina i tkanki matki
Samice skakuna Toxeus magnus dostarczają młodym odżywczej wydzieliny wypływającej z bruzdy epigastrycznej. W badaniu Chena i współautorów młode początkowo pobierały krople z powierzchni gniazda, a następnie bezpośrednio od matki. Samodzielne poszukiwanie pokarmu rozpoczynało się około 20. dnia, natomiast pobieranie wydzieliny trwało do około 40. dnia. Zablokowanie jej dostępu tuż po wykluciu uniemożliwiało prawidłowy rozwój i prowadziło do śmierci młodych. W kolejnych etapach można było rozdzielić znaczenie samej wydzieliny od znaczenia obecności matki, która nadal opiekowała się gniazdem. Termin „mleko pająka” jest porównaniem funkcjonalnym: nie oznacza występowania gruczołów sutkowych ani jednej wspólnej historii ewolucyjnej ze ssakami. [68]
U Stegodyphus lineatus opieka przybiera inną formę. Samica początkowo przekazuje młodym pokarm przez regurgitację, czyli cofanie płynnej zawartości przewodu pokarmowego. Następnie potomstwo zjada jej ciało; zjawisko nazywa się matriphagią. Badania histologiczne wykazały, że tkanki uchyłków jelita środkowego zaczynają ulegać degradacji już podczas opieki nad kokonem. Proces nasila się w czasie karmienia młodych, a upłynnione tkanki stają się zasobem pokarmowym. Jest to wyspecjalizowany sposób inwestycji w rozród, powiązany w tym gatunku z jednym głównym epizodem reprodukcyjnym. Opis mechanizmu jest bardziej informacyjny niż przedstawianie samego zjadania matki jako niezwykłej ciekawostki. [70]
Wspólna sieć zmienia dostęp do pokarmu
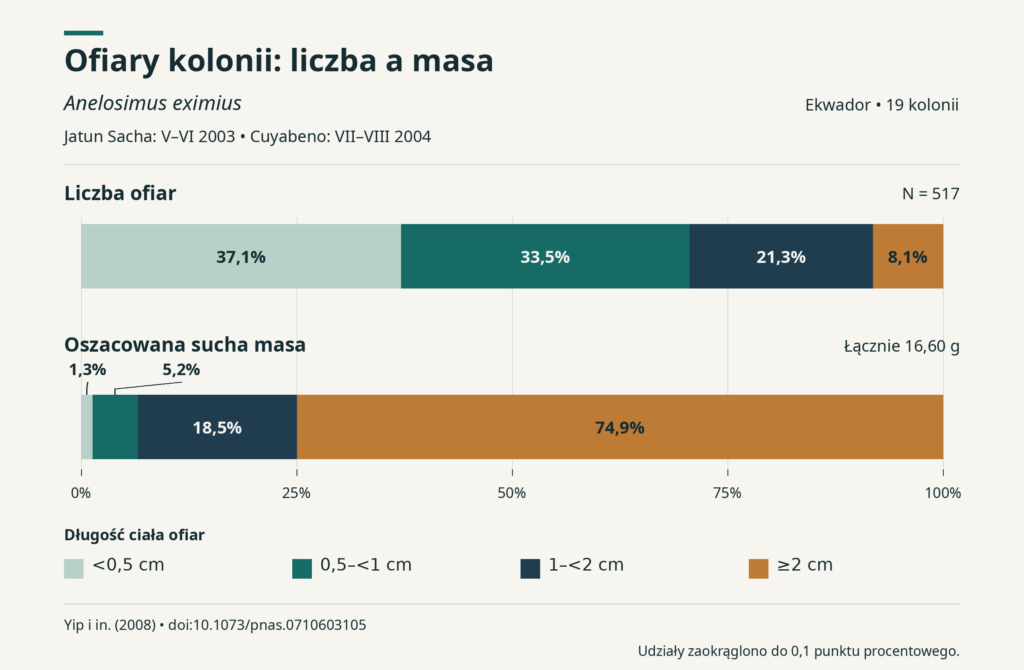
Kolonie Anelosimus eximius wspólnie budują sieci i chwytają ofiary. W badaniu Yipa i współautorów większe kolonie przechwytywały przeciętnie większe owady, choć liczba ofiar przypadająca na pająka malała. W łącznej próbie 517 ofiar największa klasa, o długości ciała co najmniej 2 cm, obejmowała 42 osobniki, lecz dostarczała 12,44 g z 16,60 g oszacowanej suchej masy. Mały udział liczbowy oznaczał zatem duży udział masowy. Współpraca ułatwia zdobywanie dużych ofiar, jednak przychód na osobnika nie rośnie bez ograniczeń. [69]
| Zjawisko | Przykład | Co jest przekazywane lub współdzielone | Właściwa interpretacja |
|---|---|---|---|
| Zaloty wielokanałowe | Habronattus dossenus | Sygnały widoczne i drgania podłoża. | Kanały są skoordynowane, ale mają odrębne mechanizmy wytwarzania. [44] |
| Prezent godowy | Pisaura mirabilis | Pakunek z pokarmem lub materiałem bez wartości odżywczej. | Uzyskanie kopulacji i czas transferu nasienia to różne wyniki. [67] |
| Odżywianie wydzieliną | Toxeus magnus | Pokarm od matki dla młodych. | Funkcjonalna analogia do karmienia mlekiem. [68] |
| Matriphagia | Stegodyphus lineatus | Zasoby tkanek samicy. | Skrajna forma inwestycji rodzicielskiej. [70] |
| Wspólne łowy | Anelosimus eximius | Sieć, udział w schwytaniu i zdobycz. | Korzyść zależy także od wielkości ofiary i kolonii. [69] |
Podane gatunki ilustrują konkretne wyniki badań; nie są modelem rozrodu i organizacji społecznej całego rzędu.
Rozdział 15Najważniejsze grupy pajęczaków
Pająki Araneae
Cechą rozpoznawczą pająków jest połączenie prosomy i opistosomy wąską szypułką oraz obecność narządów przędnych. W obrębie rzędu mieszczą się konstruktorzy sieci, aktywni łowcy, drapieżniki czatujące i gatunki wykorzystujące kryjówki. Nie wszystkie polują w widocznej pajęczynie. Wielkość, liczba oczu, budowa odnóży i tryb aktywności są zróżnicowane. Rozpoznanie rodziny często wymaga połączenia cech ciała z architekturą sieci i zachowaniem. [31]
Skorpiony Scorpiones
Skorpiona wyróżniają chwytne nogogłaszczki i wydłużona metasoma zakończona telsonem z aparatem jadowym. Potoczny „ogon” jest więc tylną częścią ciała, a nie dodatkowym odnóżem. Skorpiony zasiedlają różne środowiska; skojarzenie wyłącznie z pustynią pomija gatunki leśne i ściółkowe. Są drapieżnikami, a znaczenie szczypiec i jadu podczas obezwładniania ofiary zależy od gatunku i sytuacji. Wielkość zwierzęcia lub grubość jego szczypiec nie zastępują identyfikacji w ocenie ryzyka. [28]
Kosarze Opiliones
Kosarze nie mają wyraźnej pająkowej szypułki, a ich regiony ciała tworzą zwartą całość. Popularne długonogie gatunki są tylko częścią różnorodności: istnieją także formy o krótszych i masywniejszych odnóżach. U wielu kosarzy oczy tworzą jedną parę, ale nie jest to bezwyjątkowa cecha całego rzędu. Brak gruczołów jadowych i kądziołków sprawia, że nie należy traktować ich jako pająków o wydłużonych nogach. Angielska nazwa „daddy longlegs” jest dodatkowo wieloznaczna i bywa odnoszona również do nasoszników oraz niektórych muchówek. [8][50]
Zaleszczotki Pseudoscorpiones
Zaleszczotki to niewielkie drapieżniki wyposażone w szczypce nogogłaszczków. Żyją między innymi w ściółce, pod korą i w szczelinach. Część przemieszcza się na większych zwierzętach, przyczepiając się do nich; takie korzystanie z transportu nazywa się forezją. Nie oznacza ono automatycznie żerowania na przewoźniku. Zaleszczotki mogą wytwarzać komory z jedwabiu wykorzystywane podczas linienia i rozrodu. Brak skorpionowego telsonu nie oznacza, że wszystkie są pozbawione jadu: u Iocheirata związany jest on ze szczypcami. [9]
Roztocze i kleszcze
Roztocze zajmują mikrosiedliska często niedostępne dla większych zwierząt. Ich małe rozmiary utrudniają dostrzeganie różnic budowy, dlatego pod jedną potoczną nazwą mieszczą się organizmy pełniące bardzo różne funkcje. Roztocze kurzu domowego, pasożytniczy świerzbowiec, roślinożerny przędziorek, drapieżny dobroczynek i krwiopijny kleszcz nie są wymiennymi przykładami jednego sposobu życia. Rozpoznanie ma znaczenie zarówno w przyrodzie, jak i w ochronie roślin czy medycynie. [21][71][72]
Solfugi Solifugae
Solfugi mają duże, silne szczękoczułki i nogogłaszczki przypominające dodatkową parę nóg. Wiele gatunków jest sprawnymi biegaczami związanymi z suchymi środowiskami. Ich angielska nazwa „camel spiders” bywa źródłem mylących opisów: nie są pająkami Araneae. Wrażenie dziesięciu nóg powstaje właśnie przez podobieństwo nogogłaszczków do odnóży krocznych. Opowiadania o pogoni za człowiekiem lub niezwykłej szybkości trzeba oddzielać od pomiaru konkretnego zachowania. [59]
Amblypygi
Amblypygi mają spłaszczone ciało, chwytne, kolczaste nogogłaszczki i bardzo długą pierwszą parę nóg czuciowych. Te odnóża działają podobnie do czułków w sensie funkcji, ale nie są z nimi homologiczne. Zwierzęta chodzą głównie na trzech pozostałych parach. Są zwykle aktywne nocą, ukrywają się w szczelinach i pod osłonami, a część zasiedla jaskinie. Nie mają pająkowych kądziołków ani aparatu jadowego. Ich niezwykła sylwetka mówi więcej o sposobie badania przestrzeni niż o zagrożeniu dla człowieka. [7]
Uropygi czyli Thelyphonida
W katalogach i opracowaniach można spotkać nazwy Uropygi oraz Thelyphonida. Zwierzęta te mają chwytne nogogłaszczki i cienką, biczykowatą strukturę na końcu ciała. W obronie wykorzystują wydzielinę zawierającą między innymi kwas octowy, stąd angielska nazwa „vinegaroons”. Nie jest to skorpionowy kolec jadowy. Pierwsza para nóg ma charakter czuciowy. Samice opiekują się jajami, a młode mogą przebywać na ich ciele we wczesnym okresie rozwoju. [73]
Schizomida
Schizomida są niewielkimi, przeważnie nocnymi drapieżnikami. Mają krótką strukturę biczykowatą, a pierwszą parę nóg wykorzystują przede wszystkim czuciowo. U wielu gatunków oczy są zredukowane. Przebywają w osłoniętych mikrosiedliskach, często w regionach ciepłych. Podczas zalotów struktura na końcu ciała samca może uczestniczyć w prowadzeniu partnerki w stronę spermatoforu. Małe rozmiary i ukryty tryb życia sprawiają, że można przeoczyć je nawet tam, gdzie regularnie bada się większe bezkręgowce. [74]
Palpigradi
Palpigradi to bardzo małe, delikatne, bezokie pajęczaki z długim biczykowatym zakończeniem ciała. Związane są między innymi z wilgotnymi szczelinami, przestrzeniami pod kamieniami i jaskiniami. W ruchu mogą wykorzystywać nogogłaszczki, podczas gdy przednie nogi pełnią funkcję czuciową. Wiedza o ich zachowaniu i rozrodzie jest znacznie skromniejsza niż w przypadku pająków. Właściwy opis powinien ujawniać tę lukę, zamiast dopisywać grupie dobrze znane cechy większych krewniaków. [30]
Ricinulei
Ricinulei mają mocno zesklerotyzowany oskórek i charakterystyczną ruchomą osłonę przedniej części ciała, zwaną cucullus, przykrywającą szczękoczułki. Współczesne gatunki są związane przede wszystkim z tropikalnymi środowiskami Afryki i obu Ameryk, w tym z glebą, ściółką i jaskiniami. U samców część trzeciej pary nóg jest zmodyfikowana w związku z przekazywaniem nasienia. Pierwsze stadium po wykluciu jest sześcionogie. To kolejny argument, aby cechy rozwojowe oddzielać od typowej budowy dorosłego pajęczaka. [75]
Rozdział 16Siedliska i sposoby przemieszczania
Pajęczaki można badać w skali krajobrazu, ale ich codzienne życie często rozgrywa się w skali centymetrów. Ściółka, kora, szczelina skalna, korona rośliny i wnętrze budynku tworzą odrębne warunki. Dwie powierzchnie położone kilka metrów od siebie mogą różnić się wilgotnością, temperaturą, możliwością zaczepienia nici i dostępnością kryjówek. Dlatego określenie „gatunek leśny” nie opisuje jeszcze całego jego środowiska.
| Miejsce | Przykład | Co decyduje o przydatności siedliska |
|---|---|---|
| Roślinność łąkowa i krzewy | Pająki budujące sieci | Punkty zaczepienia, struktura roślinności i obecność ofiar. [76][77] |
| Nasłonecznione ściany i skały | Salticus scenicus | Powierzchnie umożliwiające aktywne polowanie. [78] |
| Budynki i osłonięte wnętrza | Pholcus phalangioides | Stabilne kryjówki i miejsca budowy nieregularnej sieci. [79] |
| Ściółka, kora i szczeliny | Zaleszczotki | Drobne ofiary i osłonięta przestrzeń. [9] |
| Wilgotna roślinność przy ziemi | Ixodes ricinus | Mikroklimat pozwalający ograniczać utratę wody i kontakt z żywicielem. [66] |
| Woda słodka | Argyroneta aquatica | Możliwość utrzymania zanurzonego dzwonu powietrznego. [80] |
Przykłady nie są zamkniętym wykazem siedlisk ani kluczem do gatunków.
Szczególnym przykładem jest topik Argyroneta aquatica. Buduje pod wodą konstrukcję utrzymującą pęcherz powietrza. Badania wykazały, że taki dzwon może pełnić funkcję fizycznego skrzela: tlen rozpuszczony w wodzie dyfunduje do jego wnętrza. Pająk pozostaje jednak zwierzęciem oddychającym powietrzem; nie wykształca przez to rybich skrzeli. To połączenie zachowania, jedwabiu i fizyki wymiany gazowej umożliwia wykorzystanie środowiska wodnego. [80]
Rozprzestrzenianie nie zawsze odbywa się przez chodzenie. Podczas ballooningu pająk uwalnia nici, dzięki którym może zostać uniesiony. Zjawisko wiąże się z aerodynamiką, a doświadczenia wykazały również udział pól elektrycznych w inicjowaniu zachowania i wytwarzaniu siły unoszącej. Nie wynika z tego, że wiatr przestał mieć znaczenie. Warunki laboratoryjne pozwalają rozdzielać oddziaływania, które w naturze mogą działać równocześnie. [47]
Przenoszenie przez człowieka jest odrębnym procesem. Rośliny doniczkowe, podłoże i transportowane przedmioty mogą przenosić drobne organizmy poza naturalny zasięg. Stwierdzenie egzotycznego pajęczaka w ogrzewanym obiekcie nie dowodzi, że utworzył populację zdolną przetrwać zimę na zewnątrz. Tę różnicę dobrze ilustruje opisane z Polski występowanie tropikalnego Stenochrus portoricensis w Palmiarni Poznańskiej. [81]
Rozdział 17Pajęczaki w Polsce
W odczytanej tabeli bazy Spiders of Europe, w wersji 11.2026, Polska ma 854 wykazane gatunki pająków i 328 rodzajów. Jest to wynik konkretnego zestawienia, nie obietnica kompletnego poznania fauny. Autorzy katalogu wskazują, że listy krajowe opierają się na publikacjach, mogą zawierać stwierdzenia wymagające rewizji i nie obejmować jeszcze części nowych danych. [82][83]
Porównanie liczby gatunków między państwami wymaga ostrożności. Kraj o większej powierzchni, bardziej zróżnicowanej rzeźbie terenu lub dłuższej tradycji badań może mieć bogatszy wykaz z różnych powodów. Liczba krajowa nie jest miarą zagęszczenia zwierząt, jakości ochrony przyrody ani zagrożenia dla mieszkańców. Nie wolno również dodawać list sąsiednich państw, aby obliczyć liczbę gatunków europejskich: zasięgi wielu gatunków przekraczają granice.
| Nazwa | Gdzie warto szukać | Uwaga identyfikacyjna |
|---|---|---|
| Krzyżak ogrodowy · Araneus diadematus | Krzewy, obrzeża lasów, ogrody i otoczenie zabudowań. | Krzyżopodobny wzór pomaga, lecz sam kolor jest zmienny. [76] |
| Tygrzyk paskowany · Argiope bruennichi | Roślinność łąkowa i trawiasta; sieci blisko gruntu. | Wyraźnie prążkowana samica jest łatwiejsza do zauważenia niż mniejszy samiec. [77][84] |
| Nasosznik trzęś · Pholcus phalangioides | Budynki, piwnice i inne osłonięte wnętrza. | Długie nogi nie czynią go kosarzem; ma pająkową szypułkę i sieć. [79][50] |
| Skakun arlekinowy · Salticus scenicus | Nasłonecznione mury i skały. | Jest aktywnym łowcą; fotografia jednego wzoru nie zastępuje klucza. [78] |
| Kleszcz pospolity · Ixodes ricinus | Wilgotniejsze tereny zielone, roślinność w pobliżu gruntu. | Stadium i stopień najedzenia silnie wpływają na wygląd. [66] |
| Schizomid · Stenochrus portoricensis | Udokumentowany w Palmiarni Poznańskiej. | Przykład zawleczenia do ogrzewanego obiektu; nie dowód rodzimej fauny terenowej. [81] |
Tabela ma charakter orientacyjny. Nie zastępuje oznaczania gatunków na podstawie cech diagnostycznych.
Obserwacja znanego gatunku w nowym miejscu jest cenna, ale jej interpretacja zależy od dokumentacji. W przypadku tygrzyka paskowanego analizowano zmiany występowania w Polsce na podstawie danych historycznych i baz obserwacji. Zasięg może się zmieniać, lecz wzrost liczby zgłoszeń ma także związek z liczbą obserwatorów i dostępnością fotografii. Wniosek o ekspansji wymaga porównywania danych w czasie, a nie tylko efektownego nowego zdjęcia. [84]
W polskiej faunie są również kosarze, zaleszczotki i liczne roztocze. Nie podajemy dla nich jednolitej „aktualnej sumy”, jeżeli dostępne wykazy mieszają rangi taksonomiczne, różne okresy i poziomy weryfikacji. Takie pominięcie dokładnej liczby nie jest brakiem wiedzy o obecności grupy: jest konsekwencją rozdzielenia tego, co potwierdzone, od tego, czego źródła nie pozwalają policzyć porównywalnie.
Rozdział 18Atlas wybranych gatunków występujących w Polsce
Dwanaście poniższych portretów przedstawia pajęczaki odnotowane w Polsce: dziesięć pająków, zaleszczotka i kosarza. Dobór pokazuje różnorodność sposobów życia — od roślinności ogrodu przez wnętrza budynków i powierzchnię gleby po środowisko wodne. Nazwa naukowa jednoznacznie wskazuje opisywany gatunek, także wtedy, gdy polskie nazewnictwo zwyczajowe bywa niejednolite.
Jak czytać rozmiary. Podane wartości oznaczają długość ciała dorosłego osobnika, bez nóg. Wszystkie zakresy dla pająków pochodzą z kart Spiders of Europe wskazanych przy odpowiednich gatunkach. Są opisem katalogowym, a nie wynikiem pomiaru próby polskiej populacji. Dla zaleszczotka i kosarza przytoczono zakresy z odrębnych opracowań, bez dopisywania niepodanego podziału na płeć. Portrety pokazują cechy i biologię; nie zastępują klucza do oznaczania.
Krzyżak ogrodowy — Araneus diadematus
Rząd: pająki (Araneae). Występuje wśród ziół i krzewów, na skrajach lasów, w ogrodach i przy zabudowaniach. Jasne plamki na odwłoku układają się w charakterystyczny krzyż; tło ciała może być żółtawe, brunatne, czerwonawe lub niemal czarne. Na odnóżach widoczne są ciemniejsze obrączki. Samce mają 4–11 mm długości ciała, samice 10–22,5 mm. [76] Krzyżak buduje sieć kolistą ze spiralą lepną i często oczekuje na zdobycz w jej centrum. Przy odnawianiu sieci zjada stare nici, odzyskując część materiału użytego do ich wytworzenia. [85]
Tygrzyk paskowany — Argiope bruennichi
Rząd: pająki (Araneae). Gatunek związany z roślinnością zielną, między innymi wilgotnymi łąkami. Sieć rozpięta jest nisko nad ziemią. Samica ma srebrzysty głowotułów oraz odwłok z wyraźnym układem poprzecznych pasów; samiec jest mniej kontrastowy, srebrzystoszary lub żółtawy. Różnica obejmuje też wielkość: zakres długości ciała samców wynosi 6,9–8,3 mm, a samic 9,9–22 mm. [77] W kolistej sieci może znajdować się charakterystyczny zygzakowaty pas jedwabiu, nazywany stabilimentum. Pozwala on dostrzec, jak różne konstrukcje mogą powstawać w obrębie tej samej ogólnej architektury sieci kolistej. [86]
Skakun arlekinowy — Salticus scenicus
Rząd: pająki (Araneae). Niewielki pająk nasłonecznionych murów i skał, rzadziej obserwowany na korze. Na ciemnym ciele występują jasne plamy i poprzeczne pasy. Samce osiągają 4–7 mm, samice 5,5–7,5 mm długości ciała. [78] Poluje za dnia, podchodzi do ofiary i atakuje skokiem. Wykrywanie ruchu oraz zwracanie przedniej części ciała ku zdobyczy wiążą się z istotną rolą wzroku. Przed skokiem przytwierdza nić do podłoża. Jedwab wykorzystuje także do budowy schronienia w szczelinie, w którym spędza noc lub okres mniej sprzyjającej pogody. [87]
Nasosznik trzęś — Pholcus phalangioides
Rząd: pająki (Araneae). Mieszkaniec nieregularnych sieci, często spotykany w budynkach. Zwisa spod sieci grzbietem w dół, a długie nogi nadają mu pozornie znacznie większe rozmiary niż rzeczywista długość ciała: u samców 7–10 mm, u samic 7–8 mm. Głowotułów jest blady, żółtawobrązowy, z ciemniejszym rysunkiem. Karta katalogowa łączy pierwotne środowisko gatunku z jaskiniami, a jego pochodzenie z zachodnią Azją. W Europie klasyfikuje go jako gatunek obcy, zadomowiony. Jest więc przykładem pajęczaka uwzględnianego w krajowej faunie mimo pochodzenia spoza jej pierwotnego zasięgu. [79]
Darownik przedziwny — Pisaura mirabilis
Rząd: pająki (Araneae). Zasiedla otwarte środowiska z roślinnością zielną i krzewami, w tym wilgotne łąki. Długość ciała samców wynosi 10–13 mm, a samic 12–15 mm. Charakterystycznym elementem rozrodu jest przekazywanie samicy podarunku przez samca przed kopulacją. Samica nosi następnie kokon, podtrzymując go szczękoczułkami. Przed wylęgiem młodych tworzy w roślinności osłaniający oprzęd o kształcie zbliżonym do dzwonu. Umieszcza w nim kokon i strzeże go. Zmiana od przenoszenia jaj do ich osłaniania w stałym miejscu pokazuje, że opieka nad potomstwem może obejmować kilka kolejnych etapów. [88]
Bagnik przybrzeżny — Dolomedes fimbriatus
Rząd: pająki (Araneae). Związany z terenami bagiennymi, wodami stojącymi lub wolno płynącymi oraz wilgotnymi zbiorowiskami leśnymi. Samce mierzą 9–15 mm, a samice 9–22 mm długości ciała. Czatowanie na granicy wody i roślinności pozwala mu wykorzystywać zdobycz z tego szczególnego środowiska. Wśród odnotowanych ofiar znajdują się owady, kijanki i niewielkie ryby; nie oznacza to ich jednakowego udziału w diecie. Pająk może zanurzać się w wodzie, między innymi w reakcji na zagrożenie. Samica umieszcza kokon w oprzędzie przytwierdzonym do roślinności i go pilnuje. [89]
Topik — Argyroneta aquatica
Rząd: pająki (Araneae). Żyje w czystych, stojących wodach z obfitą roślinnością; rzadko opuszcza środowisko wodne. Ciało jest ciemnobrunatne lub czarne, lecz zatrzymane przy nim powietrze daje pod wodą srebrzysty efekt. Gęste, wyspecjalizowane włoski uczestniczą w utrzymywaniu warstwy powietrza. Topik buduje zanurzone schronienie wypełnione powietrzem i może pływać brzuszną stroną ciała do góry. Jego rozmiary dobrze pokazują, dlaczego nie należy z góry zakładać większej samicy: w przyjętej karcie długość ciała samców wynosi 10–15 mm, natomiast samic 8–9 mm. [90]
Kwietnik — Misumena vatia
Rząd: pająki (Araneae). Czatownik związany z kwiatami, suchymi łąkami i nasłonecznionymi skrajami lasów. Chwyta owady odwiedzające kwiaty, między innymi pszczoły, osy i bzygowate. Samice mogą być białe, jasnożółte lub zielonkawe, niekiedy z czerwonymi pasami po bokach odwłoka; samce są wyraźnie ciemniejsze. Zmiana ubarwienia opisywana w karcie zachodzi w skali dni, a nie jako natychmiastowa reakcja. Dymorfizm wielkości jest wyraźny: samce mają 3–5 mm długości ciała, a samice 7–11,5 mm. Zestawienie obu płci zapobiega mylącemu przypisywaniu całemu gatunkowi wyłącznie wyglądu dużej, jasnej samicy. [91]
Atypus affinis — życie w jedwabnej rurce
Rząd: pająki (Araneae). Gatunek suchych, otwartych borów sosnowych, wrzosowisk, muraw oraz nasłonecznionych stoków. Samce mierzą 7–9 mm, samice 10–15 mm długości ciała. Karta podaje także wymiary budowli: część łowna rurki leży nad ziemią i ma 12–17 cm, a podziemna część schronienia sięga 20–45 cm. [92] Wykopany korytarz zostaje wyłożony jedwabiem, przedłużonym na powierzchni w zamaskowany drobinami podłoża rękaw. Pająk chwyta owada przez jego ściankę. Z punktu widzenia obserwatora widoczna rurka jest tylko częścią większej konstrukcji, której zasadniczy odcinek pozostaje ukryty w glebie. [86]
Kolczak zbrojny — Cheiracanthium punctorium
Rząd: pająki (Araneae). Zasiedla przede wszystkim warstwę ziół i krzewów w ciepłych, otwartych środowiskach. Samce osiągają 7,5–12 mm, a samice 10–15 mm długości ciała. [93] Poluje głównie nocą, aktywnie podchodząc do zdobyczy. Dzień spędza w zaokrąglonym oprzędzie, między innymi w niskiej roślinności. Jedwab służy również do tworzenia komory lęgowej wśród źdźbeł, liści i łodyg. Do cech wyglądu należą długie, mocne szczękoczułki, wydłużona pierwsza para nóg oraz jasny, żółtawozielony odwłok, na którym ciemniejszy rysunek może być słabo zaznaczony lub nieobecny. [94]
Zaleszczotek książkowy — Chelifer cancroides
Rząd: zaleszczotki (Pseudoscorpiones). Gatunek wykazany w katalogu fauny Polski. [95] Dorosłe osobniki mają około 3–4 mm długości ciała; wykorzystane źródło nie rozdziela tej wartości według płci. Brunatne ciało, cztery pary nóg oraz duże, szczypcowate nogogłaszczki tworzą sylwetkę odmienną od pająka. Spotykany jest w budynkach, gdzie może polować na drobne stawonogi, w tym gryzki. Jego rozród obejmuje złożenie przez samca spermatoforu na podłożu. Samica przenosi jaja pod odwłokiem, a młode przechodzą kolejne stadia nimfalne. Jest to przykład niewielkiego drapieżnika, którego łatwo przeoczyć podczas pobieżnej obserwacji. [96]
Kosarz pospolity — Phalangium opilio
Rząd: kosarze (Opiliones). Obecność w Polsce dokumentują między innymi badania faunistyczne prowadzone w Lublinie. [97] Gatunek występuje w ciepłych, otwartych lub częściowo otwartych miejscach: ogrodach, parkach, murawach, wrzosowiskach i na skrajach lasów. Długość ciała wynosi 4,3–7,7 mm; źródło podaje wspólny zakres bez osobnych wartości dla samców i samic. Ciało jest krępe w porównaniu z długimi nogami. Przy oznaczaniu znaczenie mają drobne guzki nad szczękoczułkami, a u samców również ich charakterystyczne rożkowate przedłużenia. Sama długość nóg nie wystarcza do odróżnienia tego gatunku od innych kosarzy. [98]
Rozmiar ciała a sposób życia — porównanie dziesięciu pająków
| Gatunek | Samiec [mm] | Samica [mm] | Środowisko i sposób życia |
|---|---|---|---|
| Araneus diadematus | 4–11 | 10–22,5 | Sieć kolista wśród roślin i przy zabudowaniach. [76] [85] |
| Argiope bruennichi | 6,9–8,3 | 9,9–22 | Sieć kolista nisko w roślinności łąkowej. [77] [86] |
| Salticus scenicus | 4–7 | 5,5–7,5 | Aktywne polowanie na nasłonecznionych powierzchniach. [78] [87] |
| Pholcus phalangioides | 7–10 | 7–8 | Nieregularna sieć, często w budynkach. [79] |
| Pisaura mirabilis | 10–13 | 12–15 | Roślinność łąkowa; samica nosi kokon i pilnuje oprzędu. [88] |
| Dolomedes fimbriatus | 9–15 | 9–22 | Zasadzka przy powierzchni wody. [89] |
| Argyroneta aquatica | 10–15 | 8–9 | Życie pod wodą; schronienie z zapasem powietrza. [90] |
| Misumena vatia | 3–5 | 7–11,5 | Czatowanie na owady odwiedzające kwiaty. [91] |
| Atypus affinis | 7–9 | 10–15 | Łowienie przez ściankę jedwabnej rurki przy ziemi. [92] [86] |
| Cheiracanthium punctorium | 7,5–12 | 10–15 | Nocne polowanie; odpoczynek w oprzędzie. [93] [94] |
Zakresy długości: Spiders of Europe, odczyt 12.11.2026. Jednostka: mm, bez nóg. Nie są to rozpiętości odnóży, przedziały ufności ani skrajne pomiary jednej badanej populacji. Opisy strategii uzupełniono źródłami wskazanymi w wierszach.
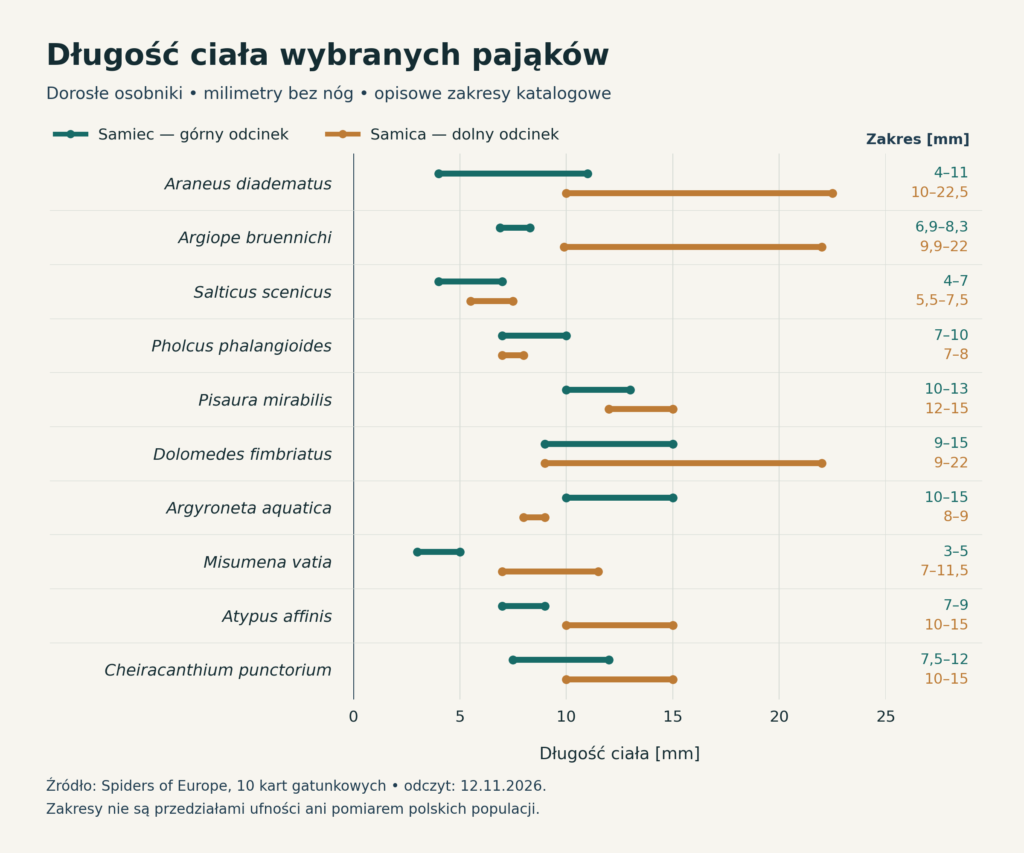
Porównanie ujawnia dwie odrębne kwestie: różnice wielkości między gatunkami oraz różnice między płciami w obrębie gatunku. U kwietnika zakres samic leży wyraźnie powyżej zakresu samców, natomiast u topika przyjęte źródło podaje większe samce. U części pozostałych gatunków zakresy się nakładają. Sama długość ciała nie stanowi więc uniwersalnego sposobu ustalania płci ani oznaczania gatunku. Szerokość odcinka informuje o granicach zakresu w karcie, lecz nie pozwala wywnioskować, które rozmiary występują najczęściej. [91] [90]
Rozdział 19Pajęczaki a zdrowie człowieka
Znaczenie medyczne pajęczaków wynika z różnych mechanizmów. Jedne mogą wprowadzić jad, inne przenoszą drobnoustroje, jeszcze inne pasożytują w skórze albo dostarczają alergenów. Utożsamienie tych sytuacji prowadzi do błędów: kleszcz nie powoduje boreliozy przez „jad”, a roztocze kurzu domowego nie są świerzbowcami. Poniższe informacje dotyczą ogólnych zasad biologii i profilaktyki, nie rozpoznania choroby u konkretnej osoby. [99][72][100]
Borelioza i kleszczowe zapalenie mózgu
Borelioza z Lyme jest chorobą bakteryjną, wywoływaną przez krętki kompleksu Borrelia burgdorferi sensu lato. Kleszczowe zapalenie mózgu, czyli KZM, jest chorobą wirusową. Ixodes ricinus ma znaczenie jako wektor obu patogenów w Europie. Samo wkłucie nie oznacza zakażenia: znaczenie mają obecność patogenu, warunki transmisji i reakcja organizmu. Nie ma podstaw do podawania jednego uniwersalnego procentu „zakażonych kleszczy w Polsce” bez datowanego i przestrzennie określonego badania. [99][101]
| Rok | Borelioza przypadki | Borelioza na 100 tys. | KZM przypadki | KZM na 100 tys. |
|---|---|---|---|---|
| 2023 | 25 285 | 67,1 | 661 | 1,75 |
| 2024 | 29 860 | 79,5 | 805 | 2,14 |
| 2025 | 48 742 | 130,3 | 938 | 2,51 |
Źródła: roczne biuletyny NIZP PZH–PIB/GIS za 2024 i 2025 r., z wykorzystaniem tabel porównawczych. Są to pełne lata kalendarzowe. Wersje danych mogą różnić się od wcześniejszych meldunków. [102][4]
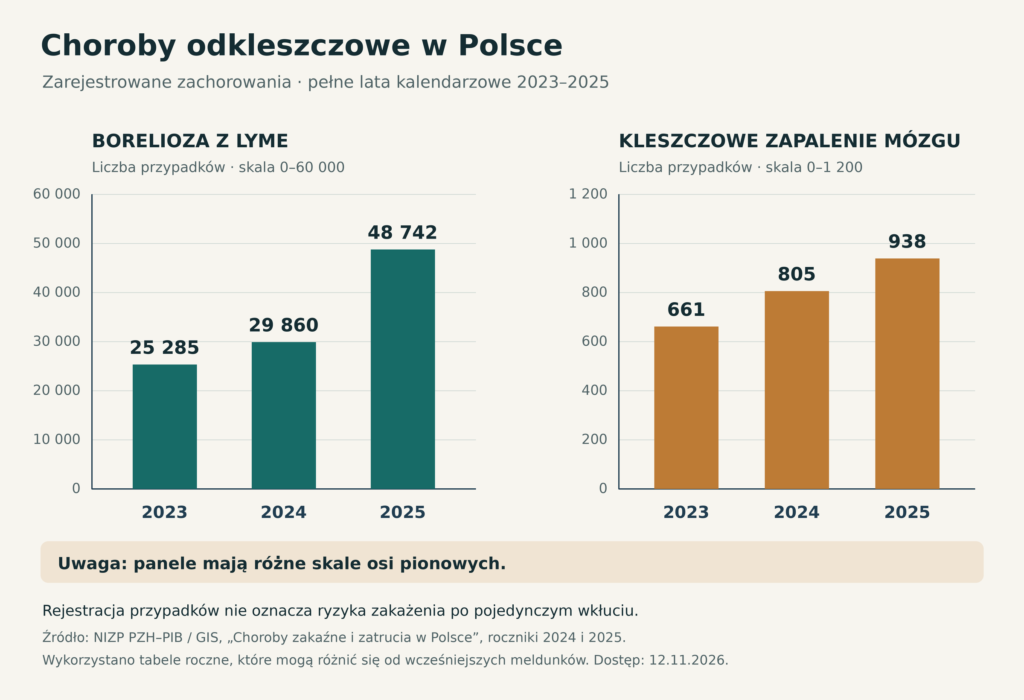
W tej serii liczba zarejestrowanych zachorowań w 2025 r. była wyższa niż w 2024 r. o 63,2% dla boreliozy i 16,5% dla KZM. Są to obliczenia własne według wzoru (liczba w 2025 / liczba w 2024 − 1) × 100%. Zmiana rejestracji nie dowodzi pojedynczej przyczyny. Nie można z niej samodzielnie wywnioskować proporcjonalnego wzrostu liczby kleszczy ani ryzyka po konkretnym wkłuciu.
Zapadalność na 100 tys. mieszkańców ułatwia odnoszenie liczby zachorowań do populacji. Nie jest częstością zakażenia patogenem u kleszczy. Na liczbę rozpoznanych i zgłoszonych przypadków mogą wpływać ekspozycja ludzi, diagnostyka, zgłaszalność i definicje stosowane w nadzorze. Interpretacja trendu wymaga więc szerszych danych niż sama para słupków. Celowo nie porównano pełnych lat z niezamkniętym jeszcze rokiem 2026.
W boreliozie ważnym objawem może być stopniowo powiększający się rumień wędrujący. Brak zauważonego rumienia nie wyklucza zakażenia, a nie każda niewielka reakcja miejscowa po wkłuciu jest boreliozą. Choroba może obejmować między innymi układ nerwowy i stawy. Utrzymujące się lub narastające objawy wymagają oceny medycznej, zamiast samodzielnego dopasowywania ich do fotografii. [99]
KZM może zajmować ośrodkowy układ nerwowy. Oprócz transmisji przez zakażone kleszcze możliwe są zakażenia związane z niepasteryzowanymi produktami mlecznymi. Istnieje szczepienie zapobiegające KZM; nie chroni ono przed boreliozą ani przed wszystkimi chorobami przenoszonymi przez kleszcze. Rozróżnienie tych chorób jest istotniejsze niż wspólna potoczna etykieta „choroby po kleszczu”. [101]
Ograniczanie ekspozycji i postępowanie po wkłuciu
Kontakt z kleszczami jest możliwy także w parkach, ogrodach i na łąkach. Ochrona obejmuje odpowiednią odzież, repelent stosowany zgodnie z etykietą oraz oglądanie ciała po pobycie w terenie zielonym. Warto sprawdzić również odzież i miejsca trudno widoczne. Obserwacja ciała pozostaje potrzebna, nawet gdy ekspozycja wydawała się krótka lub nie odbywała się w lesie. [103][104]
- Wczepionego kleszcza usuń możliwie szybko. Pęsetą o cienkich końcach chwyć go blisko skóry i wyciągaj równomiernie ku górze; specjalistyczny przyrząd stosuj zgodnie z jego instrukcją. [105]
- Nie ściskaj odwłoka, nie przypalaj i nie smaruj tłuszczem ani innymi substancjami. Po usunięciu umyj ręce i oczyść miejsce wkłucia. [103]
- Zanotuj datę i obserwuj skórę oraz samopoczucie przez kolejne tygodnie. Powiększający się rumień, gorączka lub inne niepokojące objawy wymagają konsultacji. [105][104]
- Wynik badania wyjętego kleszcza nie rozpoznaje choroby u człowieka i sam nie powinien decydować o leczeniu. Dodatni wynik nie dowodzi transmisji, a ujemny nie zastępuje obserwacji objawów. [105][104]
Świerzb i alergeny roztoczy
Świerzb wywołuje Sarcoptes scabiei var. hominis, pasożyt drążący powierzchowne warstwy skóry. Zakażenie szerzy się przede wszystkim przez bliski kontakt skóra ze skórą, a silny świąd bywa szczególnie dokuczliwy nocą. WHO w karcie informacyjnej z 2023 r. podaje szacunek co najmniej 200 mln osób ze świerzbem w dowolnym momencie. Oznacza to rozpowszechnienie choroby w danym czasie, a nie liczbę nowych przypadków w roku. Rozpoznanie oraz dobór leczenia, w tym postępowania wobec bliskich kontaktów, wymagają oceny medycznej. [72]
Roztocze kurzu domowego oddziałują na zdrowie inaczej. Ich alergeny mogą wywoływać lub nasilać objawy u osób uczulonych, w tym napady astmy. Znaczenie mają warunki wewnątrz pomieszczeń, wilgotność, tekstylia i sposób ograniczania ekspozycji. Pranie pościeli, odpowiednie osłony i kontrola wilgotności należą do zaleceń środowiskowych, ale nie stanowią obietnicy wyleczenia alergii. Wspólna przynależność do roztoczy nie czyni z tych organizmów jednego problemu medycznego. [100]
Ukąszenia pająków i ukłucia skorpionów
Zmiana skórna nie pozwala sama w sobie zidentyfikować sprawcy. W badaniu Sucharda obejmującym 182 pacjentów jednego amerykańskiego oddziału ratunkowego, którzy przypisywali problem „ukąszeniu pająka”, lekarze rozpoznali ukąszenie u 7 osób, a zakażenie skóry lub tkanek miękkich u 156. Kategorie częściowo się nakładały. Wynik ilustruje ryzyko błędnego przypisywania przyczyny, ale nie opisuje częstości ukąszeń w Polsce ani wszystkich zmian skórnych. [106]
Skutki ukłucia skorpiona zależą od gatunku, dawki jadu, wieku i stanu osoby oraz dostępu do opieki. Część gatunków może powodować ciężkie objawy ogólne, szczególnie u dzieci. Podczas podróży do regionów ich występowania warto sprawdzać buty i odzież oraz unikać wkładania dłoni w niewidoczne szczeliny. Trudności z oddychaniem, zaburzenia świadomości lub nasilone objawy ogólne po kontakcie z jadowitym zwierzęciem wymagają pilnej pomocy medycznej. Nie ma podstaw do uspokajania wyłącznie na podstawie rozmiaru zwierzęcia. [107]
Rozdział 20Rolnictwo, pszczelarstwo i zastosowania badań
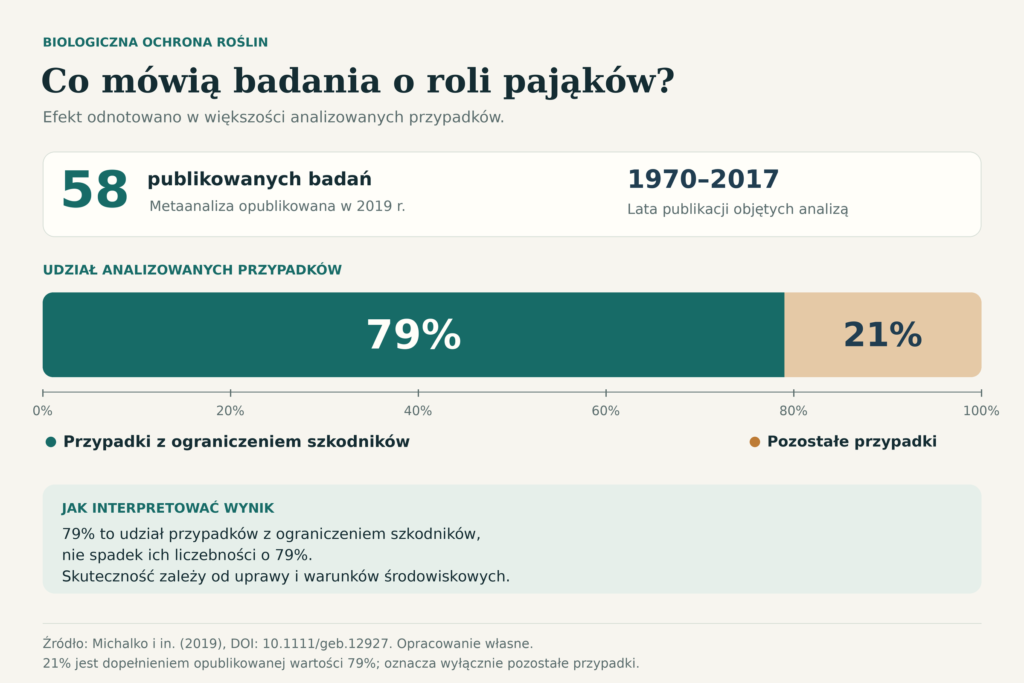
Pająki mogą pomagać ograniczać organizmy uszkadzające uprawy. Metaanaliza Michalko i współautorów z 2019 r. objęła 58 opublikowanych badań z lat 1970–2017. Ograniczenie szkodników stwierdzono w 79% analizowanych przypadków. Wartość ta opisuje częstość korzystnego wyniku, nie wielkość spadku liczebności szkodników. [61]
Wśród roztoczy istnieją zarówno szkodniki, jak i ich naturalni wrogowie. Phytoseiulus persimilis, dobroczynek szklarniowy, jest wykorzystywany do ograniczania przędziorków. Skuteczność zależy od obecności odpowiedniej ofiary, warunków środowiska i sposobu prowadzenia uprawy. Środek eliminujący drobne stawonogi bez rozróżnienia grup może zaszkodzić także drapieżnikom. Biologiczna ochrona wymaga więc rozpoznania organizmów i monitorowania efektu, nie tylko wypuszczenia „pożytecznych roztoczy”. [71]
W pszczelarstwie ważnym przykładem jest Varroa destructor, pasożyt pszczoły miodnej. Jego oddziaływanie obejmuje bezpośrednie uszkadzanie gospodarza oraz udział w przenoszeniu wirusów. Nie należy opisywać go wyłącznie jako organizmu „wysysającego krew pszczoły”: badania i dokumentacja weterynaryjna wskazują znaczenie żerowania na ciele tłuszczowym. Ten przykład pokazuje, że niewielki rozmiar pajęczaka nie oznacza małego znaczenia gospodarczego. [108]
Badania jedwabiu i jadu dostarczają także narzędzi do poznawania materiałów i aktywnych biologicznie cząsteczek. Trzeba jednak rozdzielać odkrycie właściwości w laboratorium od gotowego zastosowania. Zdolność substancji do wpływania na komórki albo wysoka energia pochłaniana przez włókno nie oznaczają automatycznie bezpiecznego leku czy produktu dostępnego przemysłowo. Ten sam standard ostrożności powinien obowiązywać w artykule naukowym, komunikacie prasowym i opisie marketingowym.
Rozdział 21Wpływ krajobrazu, światła i ocieplenia
Wpływ przekształcania środowiska najlepiej oceniać przez osobne pytania o liczbę gatunków, zagęszczenie osobników, rozród i działanie sieci pokarmowej. Zwiększenie liczby pająków na pojedynczym polu nie musi oznaczać przybycia nowych gatunków. Z kolei intensywne polowanie w jednym miejscu nie informuje jeszcze o liczbie potomstwa w następnym sezonie. Poniższe badania pokazują, jak rozdzielenie tych miar prowadzi do bardziej użytecznych wniosków.
Pole uprawne pozostaje częścią krajobrazu
Schmidt i współautorzy porównali 12 par pól pszenicy ozimej prowadzonych ekologicznie i konwencjonalnie, rozmieszczonych w krajobrazach o różnej złożoności. Większy udział siedlisk nieuprawnych wiązał się ze wzrostem lokalnego bogactwa pająków z około 12 do 20 gatunków. Gospodarowanie ekologiczne nie zwiększało w tym badaniu liczby gatunków, lecz zagęszczenie pająków było wyższe o 62%. Te wyniki dotyczą badanego układu pól. Możliwa interpretacja jest dwupoziomowa: otoczenie może dostarczać kolonizatorów i miejsc schronienia, a sposób gospodarowania zmienia warunki wewnątrz uprawy. Zachowanie miedz czy trwałej roślinności i zmiana zabiegów na polu odpowiadają więc na różne części problemu. [109]
Studium eksperymentalne: noc trwająca 12 godzin
Willmott i współautorzy hodowali młode Eriophora biapicata przy dwunastogodzinnym dniu i nocy. Grupa kontrolna doświadczała nocą około 0 luksów, druga około 20 luksów światła LED; początkowo obejmowały one odpowiednio 215 i 235 osobników. W warunkach oświetlenia nocnego pająki dojrzewały wcześniej, przechodziły mniej linień i osiągały mniejsze rozmiary. Samice wydawały mniej potomstwa. Jest to doświadczenie dotyczące przebiegu rozwoju jednego gatunku, przy określonym świetle i sposobie żywienia. Nie mierzy liczby pająków żyjących pod latarniami ani skutków każdej lampy w każdym ekosystemie. [110]
Kolejna praca tego zespołu dotyczyła zdobywania pokarmu przez młode tego samego gatunku. W laboratorium pająki wybierały miejsca z oświetleniem LED, ale dostępność ofiar silniej wpływała na pozostawanie w danym miejscu. W eksperymencie terenowym sieci umieszczone przy LED chwytały więcej ofiar. Korzyść z dodatkowego pokarmu i koszt zmienionego rozwoju mogą zatem występować równocześnie. Rozstrzygnięcie bilansu dla populacji wymaga połączenia przeżywalności, migracji i rozrodu, a nie tylko policzenia owadów w sieci przez jedną noc. [111]
Ocieplenie może zmieniać kierunek zależności
W eksperymencie w tundrze Koltz, Classen i Wright manipulowali zagęszczeniem pogońcowatych i ogrzewaniem środowiska. Przy temperaturze otoczenia większe zagęszczenie pająków prowadziło do szybszego rozkładu ściółki; w wariancie ogrzewanym kierunek efektu był odwrotny. Towarzyszyły temu przeciwne tendencje zmian liczebności grzybożernych skoczogonków, wskazujące na ich udział w przenoszeniu oddziaływania drapieżników na procesy glebowe. Wyniki sugerują więc pośredni wpływ pająków na rozkład, przez inne poziomy sieci pokarmowej. Takie doświadczenie wyjaśnia, dlaczego ocieplenie nie musi wyłącznie wzmacniać lub osłabiać istniejącej relacji: może zmienić jej wynik. Nie jest to jednak pomiar globalnego bilansu węgla ani dowód jednakowej reakcji wszystkich tundrowych pająków. [112]
Z punktu widzenia ochrony przyrody warto łączyć obserwacje stanu populacji z informacją o mechanizmie zmiany. Liczba sieci, masa pojedynczego osobnika, liczba młodych i szybkość rozkładu ściółki są różnymi zmiennymi. Każda może odpowiedzieć na ważne pytanie, jeśli wcześniej określono, co ma zostać sprawdzone. Praktycznym wnioskiem z opisanych przykładów jest potrzeba dokumentowania otoczenia stanowiska, warunków nocnych i sezonu razem z samymi zwierzętami.
Rozdział 22Zagrożenia i ochrona różnorodności
Ochrona pajęczaków zaczyna się od ochrony warunków ich życia. Zmiana struktury roślinności, osuszanie, usuwanie schronień, przekształcanie gleby i fragmentacja siedlisk mogą oddziaływać inaczej na gatunek ściółkowy, sieciowego mieszkańca łąki i specjalistę jaskiniowego. Nie każda zmiana daje ten sam wynik dla całego zespołu: gatunek tolerujący zabudowę może zyskiwać tam, gdzie specjalista traci miejsce występowania. [113]
W ankietowej ocenie zagrożeń dla pająków Branco i Cardoso zwrócili uwagę między innymi na gospodarowanie terenami rolnymi i leśnymi, urbanizację, zanieczyszczenia i zmianę klimatu. Badanie porządkuje doświadczenie ekspertów, ale nie jest globalnym pomiarem spadku liczby osobników. Nie należy zamieniać go w nieistniejącą statystykę „ubyło określonego procentu wszystkich pajęczaków”. Podobnie danych o owadach nie można automatycznie przepisać na pająki i roztocze. [113]
Handel i luki w monitoringu
Marshall i współautorzy w pracy z 2022 r. wykryli 1264 gatunki pajęczaków w połączonych źródłach dotyczących handlu: ofertach internetowych oraz rejestrach LEMIS i CITES. Był to wynik konkretnego badania, obejmującego dane historyczne i przegląd ofert online z 2021 r. Nie jest współczesną liczbą wszystkich gatunków legalnie sprzedawanych na świecie. [114]
Sama obecność nazwy w ofercie nie dowodzi skali odłowu ani tego, że dany gatunek jest zagrożony. Ujawnia jednak obszar wymagający kontroli: bez danych o pochodzeniu osobników, stanie populacji i rzeczywistym obrocie trudno ocenić zrównoważenie pozyskania. Badanie pokazało również, że pojedynczy rejestr może pomijać znaczną część różnorodności widocznej w handlu. [114]
Praktyka w ogrodzie i otoczeniu domu
Wspieranie zróżnicowanych mikrosiedlisk oznacza pozostawianie części ściółki, osłoniętych miejsc i strukturalnie różnorodnej roślinności tam, gdzie jest to możliwe. Warto ograniczać zabiegi eliminujące wszystkie drobne zwierzęta tylko dlatego, że występują licznie. Działanie powinno odpowiadać rozpoznanemu problemowi: pasożyt człowieka, szkodnik uprawy i neutralny mieszkaniec ogrodu wymagają odmiennego postępowania.
Ochrona przyrody i profilaktyka zdrowotna mogą być prowadzone równocześnie. Można zachowywać siedliska bezkręgowców, a jednocześnie stosować odzież ochronną, kontrolować kleszcze po spacerze i dbać o bezpieczne korzystanie z otoczenia domu. Zalecenia dotyczące pozostawiania ściółki nie są instrukcją tworzenia jednego identycznego rozwiązania na każdym terenie; znaczenie mają sposób użytkowania miejsca i lokalne potrzeby.
W przypadku gatunków chronionych, odłowu i handlu potrzebne są aktualne przepisy właściwe dla kraju, gatunku i czynności. Artykuł nie zawiera zamkniętej listy prawnych zakazów: takie zestawienie wymaga odrębnej, bieżącej kontroli aktów prawnych. Kluczowa zasada przyrodnicza jest prostsza: dokumentacja fotograficzna może dostarczyć użytecznych danych bez zabierania zwierzęcia ze stanowiska.
Rozdział 23Jak obserwować i oznaczać pajęczaki
Pierwszy etap oznaczania powinien odpowiadać jakości materiału. Niewyraźne zdjęcie może pozwalać rozpoznać pajęczaka albo rodzinę, ale nie gatunek. Cechy użyteczne dla jednej grupy bywają nieprzydatne w innej. U pająków znaczenie mogą mieć układ oczu, proporcje ciała, szczeciny, narządy przędne oraz narządy płciowe dorosłych osobników. Młode i samice podobnych gatunków mogą wyglądać niemal identycznie w zwykłym ujęciu terenowym. [115]
Do dokumentacji warto dołączyć datę, miejscowość lub współrzędne, opis siedliska, przybliżony rozmiar ciała oraz kilka ujęć. Rozmiar ciała należy odróżnić od rozpiętości nóg. Zdjęcie od strony grzbietowej nie pokazuje wszystkich cech, dlatego dodatkowe ujęcia mogą znacznie zwiększyć wartość obserwacji. Nie należy jednak niepotrzebnie chwytać zwierzęcia, by uzyskać fotografię: obserwacja zachowania i konstrukcji sieci również dostarcza informacji.
| Element | Co zanotować | Dlaczego to pomaga |
|---|---|---|
| Data i miejsce | Dzień obserwacji, lokalizacja oraz precyzja położenia. | Pozwala analizować sezon i zasięg. |
| Mikrosiedlisko | Na przykład ściółka, mur, kora, roślina lub wnętrze budynku. | Opisuje rzeczywiste otoczenie zwierzęcia. |
| Wielkość | Przybliżona długość ciała; osobno ewentualna rozpiętość nóg. | Zapobiega myleniu różnych miar. |
| Dokumentacja | Oryginalne zdjęcia i opis zauważonego zachowania. | Ułatwia niezależną weryfikację. |
| Pewność oznaczenia | Gatunek, rodzaj, rodzina albo wyższa grupa; nazwisko oznaczającego, jeśli znane. | Nie wymusza dokładniejszej nazwy, niż pozwalają dane. |
| Kontekst | Naturalne stanowisko, ogrzewany obiekt, materiał przywieziony z innego miejsca. | Pomaga odróżnić lokalne występowanie od zawleczenia. |
Proponowany schemat dokumentacji redakcyjnej; nie jest urzędowym formularzem.
Aplikacja rozpoznająca obraz może zaproponować hipotezę, ale jej wynik nie jest niezależnym potwierdzeniem. Jeśli wszystkie dalsze wpisy kopiują tę samą automatyczną sugestię, liczba zgodnych nazw nie zwiększa jakości dowodu. W przypadku rzadkiego gatunku, nowego stanowiska lub rekordu spoza znanego zasięgu przydatna jest ocena specjalisty i porównanie z kluczem diagnostycznym.
Katalogi i mapy rozmieszczenia służą sprawdzaniu nazw i dotychczasowych stwierdzeń. Pusta komórka mapy może oznaczać brak danych, a nie pewną nieobecność. Z kolei rekord wymaga oceny daty, lokalizacji i wiarygodności oznaczenia. Obserwacja obywatelska staje się szczególnie cenna wtedy, gdy zachowuje materiał pozwalający skorygować nazwę w przyszłości. [83]
Rozdział 24Metody badania pajęczaków
Badacz nie pobiera z natury gotowej, kompletnej listy gatunków. Każda metoda ujawnia inną część zespołu: zwierzęta chodzące po podłożu, osobniki ukryte w ściółce albo mieszkańców roślinności. Dlatego przed rozpoczęciem monitoringu trzeba ustalić cel. Poszukiwanie rzadkiego gatunku, porównywanie dwóch siedlisk i odtwarzanie diety wymagają innych próbek oraz innych kryteriów oceny wyniku.
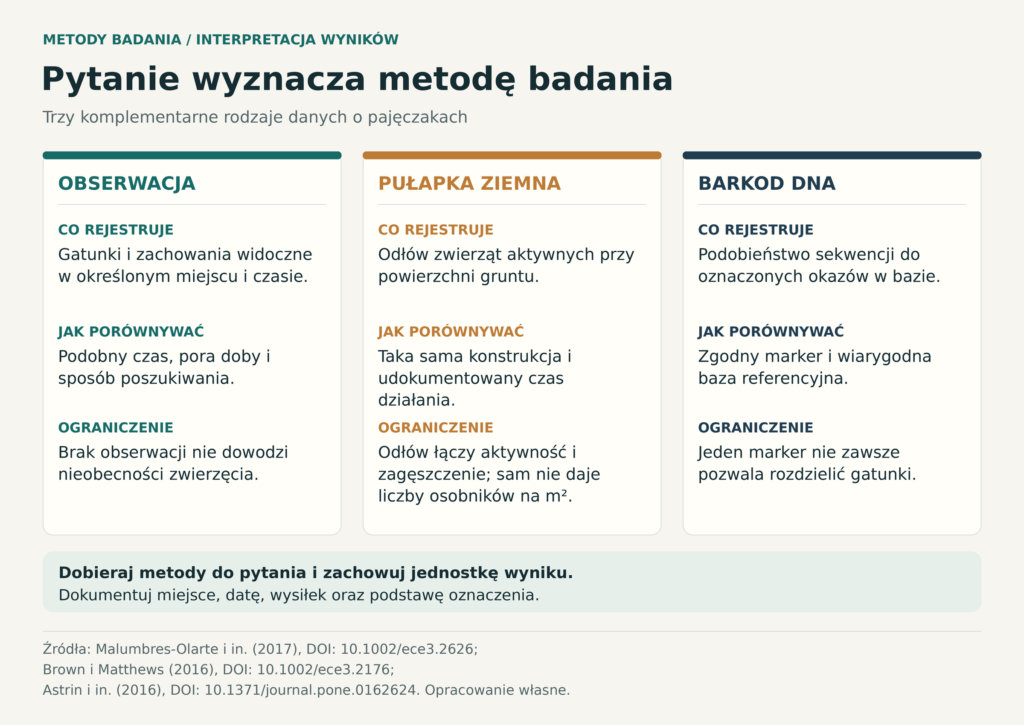
Pułapka ziemna mierzy aktywność połączoną z zagęszczeniem
Pułapki ziemne, często nazywane pułapkami Barbera, przechwytują zwierzęta przemieszczające się po powierzchni. Liczba odłowionych pająków zależy od ich zagęszczenia, ale także od aktywności, rozmiarów, zachowania oraz konstrukcji pułapki. Wynik określa się jako activity-density. Brown i Matthews wykazali dużą zmienność stosowanych konstrukcji i sposobów raportowania. Średnica otworu, osłona, okres działania i zastosowany płyn należą do opisu metody. Bez tych informacji dwie identyczne liczby okazów mogą reprezentować różne wysiłki i różną wykrywalność. Wyniku odłowu nie przelicza się więc automatycznie na liczbę osobników na metr kwadratowy. [117]
Standaryzacja łączy komplementarne metody
Protokół COBRA-TF opracowano dla zespołów pająków lasów tropikalnych, łącząc różne techniki i porównywalne jednostki wysiłku. Dobór metod oparto na danych, aby uzyskiwać możliwie dużo informacji przy ograniczonym nakładzie pracy. Przeszukiwanie roślinności, otrząsanie gałęzi, czerpakowanie i odłowy przy powierzchni gruntu docierają do różnych części zespołu. Dzień oraz noc również nie są wymiennymi porami zbioru. „Standaryzowany” oznacza tutaj porównywalny w obrębie określonego typu badania, a nie jedną receptę obejmującą wszystkie siedliska świata. W monitoringach powtarzanych w czasie szczególnie ważna jest możliwość odtworzenia procedury. [116]
| Podejście | Co pozwala badać | Co trzeba uwzględnić |
|---|---|---|
| Pułapki ziemne | Zespół zwierząt aktywnych przy powierzchni podłoża. | Aktywność i konstrukcja pułapki wpływają na odłów. [117] |
| Przeszukiwanie i zbiór z roślinności | Gatunki z warstw środowiska objętych konkretną techniką. | Porównywalny czas, pora doby i zakres poszukiwań. [116] |
| Barkoding DNA | Porównanie sekwencji badanego okazu z bazą referencyjną. | Jakość oznaczeń referencyjnych i możliwość nakładania się sygnału gatunków. [118] |
| DNA ofiar w ciele pająka | Wykrywanie wybranych relacji pokarmowych. | Czas od posiłku, pobrana część ciała i procedura molekularna. [119] |
| Stabilne izotopy | Pozycję troficzną i źródła przyswajanych zasobów. | Punkt odniesienia w środowisku; wynik nie jest listą pojedynczych posiłków. [62] |
Metody odpowiadają na różne pytania. Ich zestawianie jest użyteczne wtedy, gdy zachowuje się właściwe jednostki i zakres wnioskowania.
Barkod identyfikuje przez porównanie
W barkodingu DNA używa się krótkiego, porównywalnego fragmentu sekwencji; u badanych pająków i kosarzy często jest to mitochondrialny gen COI. W pracy Astrina i współautorów z 2016 r. przeanalizowano ponad 3500 okazów należących do prawie 600 gatunków niemieckiej fauny. Większość gatunków można było rozpoznawać tą metodą, lecz blisko 20 gatunków pająków, szczególnie pogońcowatych, nie dawało się tak rozdzielić mimo różnic morfologicznych. Baza referencyjna działa dlatego, że sekwencję powiązano z oznaczonym okazem. Nowa sekwencja sama nie nadaje sobie poprawnej nazwy; rozbieżność między DNA i morfologią jest sygnałem do dalszego badania. [118]
Pozostałości posiłku można wykrywać molekularnie
Badanie DNA ofiar rozszerza możliwości odtwarzania diety pająków pobierających płynny pokarm. Macías-Hernández i współautorzy karmili Dysdera verneaui i porównywali wykrywanie DNA pokarmu w nogach, prosomie i opistosomie. Przy zastosowanym PCR sygnał można było uzyskać z każdej z tych części, natomiast metabarkoding wskazywał przewagę opistosomy po dłuższym czasie od posiłku. Ma to uzasadnienie anatomiczne: uchyłki przewodu pokarmowego sięgają różnych części ciała. Wynik pokazuje znaczenie sposobu pobrania próbki. Sama liczba odczytów sekwencjonowania nie jest bez dodatkowej kalibracji bezpośrednią miarą liczby zjedzonych ofiar. [119]
Dobrze opisany monitoring zachowuje oryginalne rekordy, informację o wysiłku, metodę oznaczenia i możliwość ponownego sprawdzenia materiału. Przy porównaniu okresów należy najpierw sprawdzić, czy zmieniły się sposób zbioru, nazwy taksonów lub dokładność identyfikacji. Dopiero potem można interpretować różnicę liczby gatunków jako sygnał ekologiczny. To praktyczny sposób oddzielenia zmiany świata przyrody od zmiany narzędzi, którymi go obserwujemy.
Rozdział 25Najczęstsze pytania i nieporozumienia
Czy każdy pajęczak ma osiem nóg?
Typowy dorosły ma cztery pary, ale larwy wielu roztoczy mają trzy, a szpeciele dwie również w dorosłości. U niektórych grup pierwsza para pełni funkcję czuciową. Liczyć trzeba odnóża, nie wszystkie wystające przydatki. [6]
Czy kosarz jest pająkiem?
Nie. Kosarze należą do Opiliones, pająki do Araneae. Długie nogi nie są rozstrzygającą cechą. Ważne są między innymi brak pająkowej szypułki oraz brak gruczołów jadowych i narządów przędnych u kosarzy. [50]
Czy każdy pająk buduje sieć łowną?
Nie. Jedwab służy również innym celom, a liczne pająki chwytają ofiarę aktywnie albo z zasadzki. Brak pajęczyny w otoczeniu zaobserwowanego osobnika nie oznacza, że nie potrafi on wytwarzać nici. [115]
Czy kleszcze są owadami i czy każdy przenosi chorobę?
Kleszcze są pajęczakami należącymi do roztoczy. Larwa może mieć sześć nóg, co bywa mylące. Nie każde wkłucie prowadzi do zakażenia, a wygląd kleszcza nie ujawnia jego zakażenia patogenem. [6][99]
Czy jad zawsze oznacza niebezpieczeństwo dla człowieka?
Nie można oceniać ryzyka na podstawie samej obecności jadu. Znaczenie mają gatunek, sposób kontaktu, dawka i cechy osoby. Jednocześnie gwałtownych objawów po ukłuciu lub ukąszeniu nie należy bagatelizować z powodu małych rozmiarów zwierzęcia. [107]
Czy pajęczyna jest zawsze mocniejsza od stali?
Taki slogan pomija rodzaj włókna i mierzoną cechę. Wytrzymałość, sztywność i energia pochłaniana do zerwania mają różne definicje oraz jednostki. Porównanie wymaga wskazania konkretnego materiału i procedury. [48]
Czy więcej opisanych gatunków oznacza przyrost populacji?
Nie. Katalog mierzy wynik pracy taksonomicznej. Nowy opis lub rozdzielenie dawniej szeroko rozumianego gatunku może zwiększyć liczbę pozycji bez wzrostu liczby osobników. Analogicznie synonimizacja może zmniejszyć liczbę nazw bez wymierania zwierząt.
Czy zdjęcie wystarcza do pewnego oznaczenia gatunku?
Czasem tak, lecz nie zawsze. Potrzebna cecha może być niewidoczna, a młode osobniki mogą nie mieć jeszcze cech dorosłych używanych w kluczu. Poprawny wynik brzmi wtedy „rodzaj” lub „rodzina”, a nie wymuszona nazwa gatunkowa. [83]
Dalej w atlasieGatunki i tematy z tego opracowania
Hasła gatunków omawianych w kompendium, z wymiarami, występowaniem i mapą.
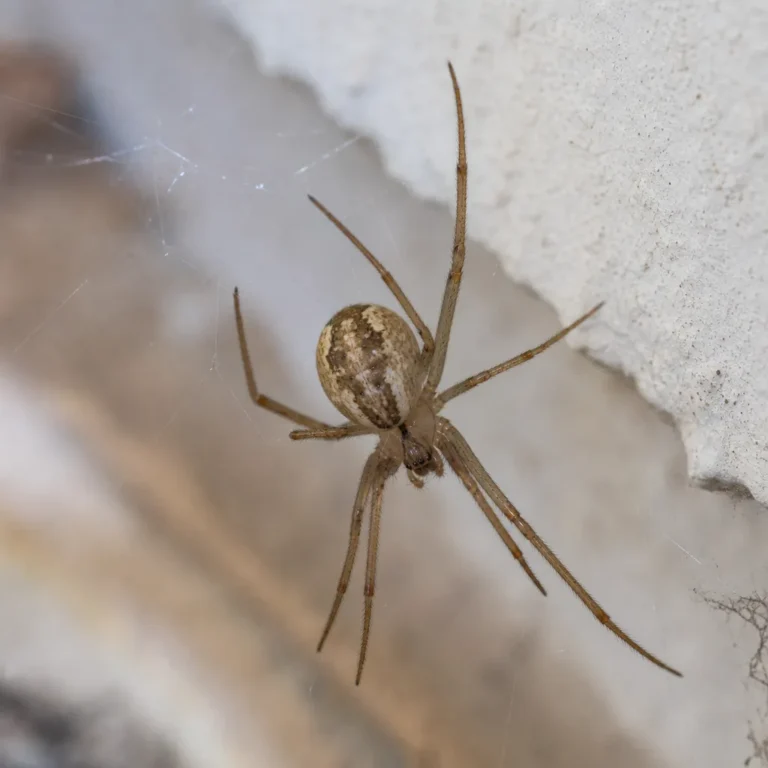
Klejnotka domowa
Parasteatoda tepidariorum
Skorpion Centruroides sculpturatus
Centruroides sculpturatus
Portia frędzlasta
Portia fimbriata
Skakun łukowaty
Evarcha arcuata
Bagheera Kiplinga
Bagheera kiplingi
Kleszcz pospolity
Ixodes ricinus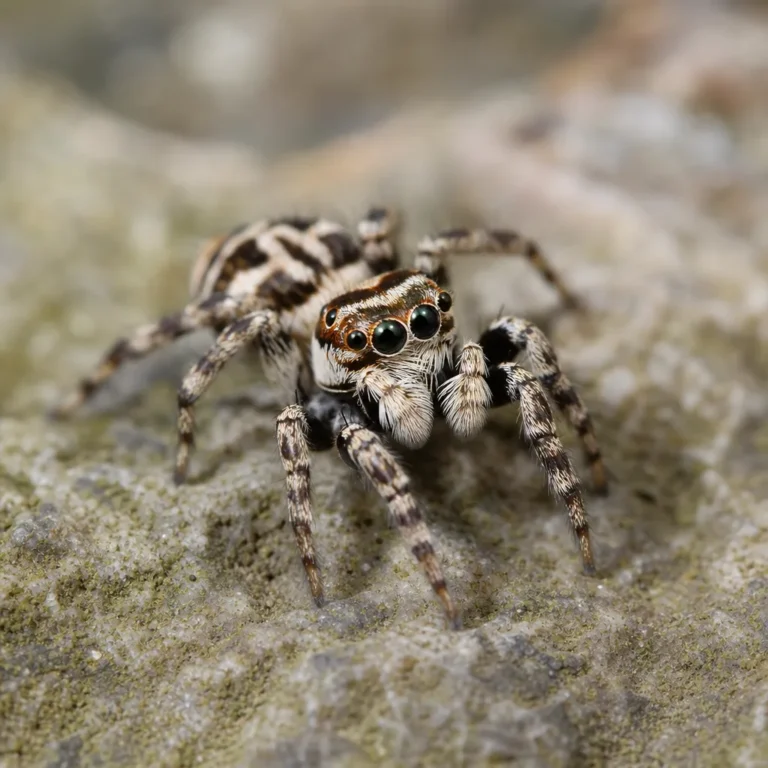
Skakun arlekinowy
Salticus scenicus
Nasosznik trzęś
Pholcus phalangioidesRodziny w atlasie
Przeglądaj dalej
- Wszystkie hasła: pajęczaki
- Pajęczaki występujące w Polsce
- Quiz: pajęczaki
- Oś czasu: dinozaury i zwierzęta wymarłe
- Porównaj dwa gatunki
Inne kompendia
Rozdział 26Słownik najważniejszych terminów
| Termin | Znaczenie |
|---|---|
| Arachnologia | Dział zoologii zajmujący się pajęczakami. |
| Akarologia | Badania roztoczy, w tym kleszczy. |
| Chelicerata | Szczękoczułkowce, grupa stawonogów obejmująca pajęczaki w tradycyjnym ujęciu. |
| Prosoma | Przedni region ciała; u pająków głowotułów. |
| Opistosoma | Tylny region ciała; u pająków odwłok. |
| Szczękoczułki | Pierwsza para przydatków, związana między innymi z pobieraniem pokarmu. |
| Nogogłaszczki | Druga para przydatków, o zróżnicowanych funkcjach czuciowych, pokarmowych, chwytnych i rozrodczych. |
| Kądziołki przędne | Przydatki pająka z ujściami przewodów gruczołów przędnych. |
| Płucotchawki | Narządy wymiany gazowej z licznymi blaszkami. |
| Spermatofor | Struktura zawierająca nasienie, przekazywana samicy bezpośrednio lub po złożeniu na podłożu. |
| Forezja | Korzystanie z innego zwierzęcia jako środka transportu. |
| Ballooning | Rozprzestrzenianie się w powietrzu z wykorzystaniem nici. |
| Wektor | Organizm uczestniczący w przenoszeniu patogenu. |
| Zapadalność | Liczba nowych zachorowań w określonym czasie w odniesieniu do populacji. |
| Chorobowość | Liczba lub odsetek osób chorujących w określonym czasie; inna miara niż nowe zachorowania. |
| Biomasa | Masa organizmów; wymaga określenia, czy chodzi o masę świeżą, suchą czy inną miarę. |
| Monofiletyczność | Obejmowanie wspólnego przodka i wszystkich jego potomków. |
| Synonim taksonomiczny | Jedna z różnych nazw uznanych za odnoszące się do tego samego taksonu. |
| Spidroina | Białko stanowiące główny składnik określonych rodzajów jedwabiu pająków. |
| Hemolimfa | Płyn krążący w układzie krążenia stawonogów. |
| Duplikacja genomu | Powielenie całego zestawu materiału genetycznego w historii linii ewolucyjnej. |
| Ekspresja genu | Proces wykorzystywania informacji genetycznej do wytworzenia funkcjonalnego produktu. |
| Odchylenie standardowe | Miara rozrzutu wartości wokół średniej; nie jest przedziałem ufności. |
| Moduł Younga | Miara sztywności materiału w zakresie sprężystym. |
| Biomimetyka | Projektowanie rozwiązań inspirowanych mechanizmami występującymi w organizmach. |
| Bogactwo gatunkowe | Liczba gatunków stwierdzonych w jasno określonej próbie lub jednostce przestrzennej. |
| Zagęszczenie | Liczba osobników przypadająca na jednostkę powierzchni lub objętości. |
| Activity-density | Wynik odłowu zależny łącznie od zagęszczenia zwierząt i ich aktywności. |
| Barkoding DNA | Identyfikowanie organizmów z wykorzystaniem porównania wybranego odcinka DNA z bazą referencyjną. |
| Metabarkoding | Analiza markerów DNA w próbce mogącej zawierać materiał wielu organizmów. |
| Izotopy stabilne | Odmiany pierwiastka niewykazujące rozpadu promieniotwórczego, wykorzystywane między innymi do badań pokarmu. |
Definicje skrócone do zakresu artykułu. Pojęcia anatomiczne i taksonomiczne należy odczytywać w kontekście omawianej grupy.
Rozdział 27Jak opracowano dane i czego nie rozstrzygamy
Podstawę artykułu stanowią specjalistyczne katalogi taksonomiczne, oryginalne badania, opracowania muzeów i towarzystw naukowych oraz materiały instytucji zdrowia publicznego. Przy statystykach pierwszeństwo mają źródła, w których można sprawdzić jednostkę, zakres i datę. Odwołania w tekście prowadzą do numerowanej bibliografii.
- Liczby gatunków: zachowano stan odczytanych katalogów i zakres datowanych publikacji. Nie zsumowano grup o niejednolitym pokryciu ani nie dodano kleszczy ponownie do roztoczy.
- Polska: liczba 854 odnosi się do tabeli araneae w wersji 11.2026, odczytanej 12 listopada 2026 r. Nie oznacza całej liczby polskich pajęczaków.
- Epidemiologia: użyto rocznych biuletynów NIZP PZH–PIB/GIS. Zachowano jedną serię źródłową; nie połączono jej ze starszymi meldunkami lub odmiennymi aktualizacjami zbiorów.
- Obliczenia własne: procentowe zmiany 2024–2025 wyliczono z podanych w tabeli liczb przypadków i zaokrąglono do jednego miejsca po przecinku. Wykresy nie prognozują kolejnych lat.
- Grafiki: wykresy odtwarzają jawne dane, a schematy pokazują wybrane zależności. Sylwetki nie służą do oznaczania gatunków; nie zachowują skali wielkości zwierząt.
Nie podano jednolitej współczesnej liczby wszystkich gatunków Arachnida, jednej światowej liczby zgonów po ukłuciach skorpionów, procentowego spadku populacji wszystkich pajęczaków ani „najbardziej jadowitego gatunku” bez określenia miary. Nie ma też pozornie dokładnych wartości dotyczących długości życia, liczby jaj czy szybkości całej gromady. Takie informacje wymagałyby węższego pytania i porównywalnego materiału.
Za istotne kwestie otwarte uznano głębokie pokrewieństwa szczękoczułkowców, granice tradycyjnych Arachnida i Acari oraz kompletność spisów drobnych, słabo badanych grup. To normalne obszary rozwoju nauki. Opracowanie zachowuje rozdział między dobrze potwierdzonym opisem, wynikiem konkretnego badania i szerszym wnioskiem, którego dostępne dane jeszcze nie uzasadniają.
W rozdziałach eksperymentalnych podano organizm, warunki doświadczenia oraz skalę wniosku. Dane z doświadczeń laboratoryjnych, lokalnych obserwacji terenowych i katalogów nie są traktowane jako zamienne. Wykresy zakresów wielkości ciała przedstawiają wartości opisowe z kart gatunkowych; wykres parametrów włókien przedstawia średnie i odchylenia standardowe. Opracowanie nie utożsamia tych dwóch rodzajów rozrzutu.
Bibliografia i źródła
Źródła uporządkowano według pierwszego przywołania w tekście. Data dostępu wskazuje termin weryfikacji, a rok publikacji lub zakres badania określa wiek danych. Bibliografia obejmuje wyłącznie źródła przywołane w artykule.
[1] Arachnid Orders. Przegląd tradycyjnie wyróżnianych grup; liczba rzędów zależy od klasyfikacji. Dostęp: 2026-11-12.https://www.americanarachnology.org/about-arachnids/arachnid-orders/
[2] World Spider Catalog, version 27. DOI: 10.24436/2. Odczyt: 54 251 gatunków, 4538 rodzajów, 139 rodzin. Dostęp: 2026-11-12.https://wsc.nmbe.ch/
[3] An estimated 400–800 million tons of prey are annually killed by the global spider community. The Science of Nature 104:30. DOI: 10.1007/s00114-017-1440-1. Szacunki modelowe świeżej masy. Dostęp: 2026-11-12.https://link.springer.com/article/10.1007/s00114-017-1440-1
[4] Choroby zakaźne i zatrucia w Polsce w 2025 roku. Warszawa 2026. Borelioza: s.70; KZM: s.73. Dane za 2025 oraz porównawcze za 2024. Numery drukowane, odpowiednio strony PDF 90 i 93. Dostęp: 2026-11-12.https://wwwold.pzh.gov.pl/oldpage/epimeld/2025/Ch_2025.pdf
[5] Arachnids and arachnology. Cechy szczękoczułkowców i porównanie planu budowy z owadami. Dostęp: 2026-11-12.https://britishspiders.org.uk/arachnids
[6] Number of legs or leg-like limbs; Invasive Mite Identification. Klucz identyfikacyjny; wyjątki od ośmionogiego planu budowy. Dostęp: 2026-11-12.https://keys.lucidcentral.org/keys/v3/mites/Invasive_Mite_Identification/key/Is_it_a_mite/Media/Html/0_Mites.htm
[7] Whip Spiders (Arachnida: Amblypygi). Źródło cech i biologii grupy; starszych liczb gatunków z tej strony nie użyto jako współczesnego spisu. Dostęp: 2026-11-12.https://www.americanarachnology.org/about-arachnids/arachnid-orders/amblypygi/
[8] Harvestmen (Arachnida: Opiliones). Źródło cech i biologii grupy; starszych liczb gatunków z tej strony nie użyto jako współczesnego spisu. Dostęp: 2026-11-12.https://www.americanarachnology.org/about-arachnids/arachnid-orders/opiliones/
[9] False Scorpions (Arachnida: Pseudoscorpiones). Źródło cech i biologii grupy; starszych liczb gatunków z tej strony nie użyto jako współczesnego spisu. Dostęp: 2026-11-12.https://www.americanarachnology.org/about-arachnids/arachnid-orders/pseudoscorpiones/
[10] Spider structure. Budowa zewnętrzna i wewnętrzna pająków. Dostęp: 2026-11-12.https://australian.museum/learn/animals/spiders/spider-structure/
[11] Ancient gene linkages and ultraconserved elements disentangle Acari interrelationships. iScience 29(2):114616. DOI: 10.1016/j.isci.2025.114616; analiza 90 genomów. Dostęp: 2026-11-12.https://pmc.ncbi.nlm.nih.gov/articles/PMC12874440/
[12] World Pseudoscorpiones Catalog: statistics. Wartości z odczytanej wersji strony; kolumna recent oznacza gatunki współczesne. Migawki modułów mogą mieć różny czas aktualizacji. Dostęp: 2026-11-12.https://wac.nmbe.ch/order/pseudoscorpiones/3
[13] World Solifugae Catalog: statistics. Wartości z odczytanej wersji strony; kolumna recent oznacza gatunki współczesne. Migawki modułów mogą mieć różny czas aktualizacji. Dostęp: 2026-11-12.https://wac.nmbe.ch/order/solifugae/6
[14] World Schizomida Catalog: statistics. Wartości z odczytanej wersji strony; kolumna recent oznacza gatunki współczesne. Migawki modułów mogą mieć różny czas aktualizacji. Dostęp: 2026-11-12.https://wac.nmbe.ch/order/schizomida/5
[15] World Amblypygi Catalog: statistics. Wartości z odczytanej wersji strony; kolumna recent oznacza gatunki współczesne. Migawki modułów mogą mieć różny czas aktualizacji. Dostęp: 2026-11-12.https://wac.nmbe.ch/order/amblypygi/1
[16] World Palpigradi Catalog: statistics. Wartości z odczytanej wersji strony; kolumna recent oznacza gatunki współczesne. Migawki modułów mogą mieć różny czas aktualizacji. Dostęp: 2026-11-12.https://wac.nmbe.ch/order/palpigradi/2
[17] World Uropygi Catalog: statistics. Wartości z odczytanej wersji strony; kolumna recent oznacza gatunki współczesne. Migawki modułów mogą mieć różny czas aktualizacji. Dostęp: 2026-11-12.https://wac.nmbe.ch/order/uropygi/7
[18] World Ricinulei Catalog: statistics. Wartości z odczytanej wersji strony; kolumna recent oznacza gatunki współczesne. Migawki modułów mogą mieć różny czas aktualizacji. Dostęp: 2026-11-12.https://wac.nmbe.ch/order/ricinulei/4
[19] All genera of the world: Order Scorpiones (Animalia: Arthropoda: Arachnida). MegaTaxa 19(2):270–378. DOI: 10.11646/megataxa.19.2.2. Rewizja obejmuje stan do końca 2025 r.; 2918 gatunków żyjących. Dostęp: 2026-11-12.https://scorpion-amnh.org/publications/megataxa-scorpiones-genera/
[20] All genera of the world: order Opiliones (Animalia: Arthropoda: Arachnida). MegaTaxa 21(1):1–148. DOI: 10.11646/megataxa.21.1.1. 6866 uznanych gatunków; opracowanie obejmuje też taksony kopalne. Dostęp: 2026-11-12.https://www.mapress.com/mt/article/view/megataxa.21.1.1
[21] Mites and Ticks (Arachnida: Acari). Informacja o ponad 54 tys. gatunków odsyła do Beaulieu i in. (2019); nie jest spisem z 2026 r. Dostęp: 2026-11-12.https://www.americanarachnology.org/about-arachnids/arachnid-orders/acari/
[22] Acari of Canada. ZooKeys 819:77–168. DOI: 10.3897/zookeys.819.28307. Oryginalne opracowanie różnorodności; nie współczesny spis całego świata. Dostęp: 2026-11-12.https://pmc.ncbi.nlm.nih.gov/articles/PMC6355733/
[23] Mouthpart morphology and feeding structures in the palaeocharinid trigonotarbids of the Rhynie chert: insights from comparisons to modern arachnids. Palaeontology 67:e12717. DOI: 10.1111/pala.12717. Dostęp: 2026-11-12.https://onlinelibrary.wiley.com/doi/10.1111/pala.12717
[24] Comprehensive Species Sampling and Sophisticated Algorithmic Approaches Refute the Monophyly of Arachnida. Molecular Biology and Evolution 39(2):msac021. DOI: 10.1093/molbev/msac021. 506 genomów i transkryptomów. Dostęp: 2026-11-12.https://academic.oup.com/mbe/article/39/2/msac021/6522129
[25] Arachnid monophyly: Morphological, palaeontological and molecular support for a single terrestrialization within Chelicerata. Arthropod Structure & Development 59:100997. DOI: 10.1016/j.asd.2020.100997. Analiza wspierająca monofiletyczność Arachnida; uwzględnia morfologię, zapis kopalny i dane molekularne. Dostęp: 2026-11-12.https://pubmed.ncbi.nlm.nih.gov/33039753/
[26] The house spider genome reveals an ancient whole-genome duplication during arachnid evolution. BMC Biology 15:62. DOI: 10.1186/s12915-017-0399-x. Genom Parasteatoda tepidariorum i porównania z innymi szczękoczułkowcami. Dostęp: 2026-11-12.https://link.springer.com/article/10.1186/s12915-017-0399-x
[27] Spiders of Europe: Glossary. Wykorzystano hasła anatomiczne i rozwojowe; nie starsze ogólne liczby gatunków. Dostęp: 2026-11-12.https://araneae.nmbe.ch/glossary?lang=en
[28] Scorpions (Arachnida: Scorpiones). Źródło cech i biologii grupy; starszych liczb gatunków z tej strony nie użyto jako współczesnego spisu. Dostęp: 2026-11-12.https://www.americanarachnology.org/about-arachnids/arachnid-orders/scorpiones/
[29] Scorpions. Wykorzystano biologię; lokalnych danych australijskich nie uogólniono na cały świat. Dostęp: 2026-11-12.https://australian.museum/learn/animals/spiders/scorpions/
[30] Micro Whip Scorpions (Arachnida: Palpigradi). Źródło cech i biologii grupy; starszych liczb gatunków z tej strony nie użyto jako współczesnego spisu. Dostęp: 2026-11-12.https://www.americanarachnology.org/about-arachnids/arachnid-orders/palpigradi/
[31] Identification of spiders. Dostęp: 2026-11-12.https://australian.museum/learn/species-identification/ask-an-expert/what-do-spiders-look-like/
[32] Crawling at High Speeds: Steady Level Locomotion in the Spider Cupiennius salei—Global Kinematics and Implications for Centre of Mass Dynamics. PLOS ONE 8(6):e65788. DOI: 10.1371/journal.pone.0065788. Wykorzystano opis hydrauliki dwóch określonych stawów nóg. Dostęp: 2026-11-12.https://journals.plos.org/plosone/article?id=10.1371/journal.pone.0065788
[33] Hydraulic leg extension is not necessarily the main drive in large spiders. Journal of Experimental Biology 215(4):578–583. DOI: 10.1242/jeb.054585. Badanie napędu tylnych nóg Ancylometes concolor podczas manewrów ucieczkowych. Dostęp: 2026-11-12.https://pubmed.ncbi.nlm.nih.gov/22279064/
[34] Regulatory responses of the coxal organs and the anal excretory system to dehydration and feeding in the spider Porrhothele antipodiana (Mygalomorpha: Dipluridae). Journal of Experimental Biology 198(5):1137–1149. DOI: 10.1242/jeb.198.5.1137. Badanie gospodarki wodnej i jonowej; historyczna nazwa rodziny zachowana w tytule pracy. Dostęp: 2026-11-12.https://pubmed.ncbi.nlm.nih.gov/9318967/
[35] The hairy spider. Dostęp: 2026-11-12.https://australian.museum/learn/animals/spiders/the-hairy-spider/
[36] Silk: the spider’s success story. Dostęp: 2026-11-12.https://australian.museum/learn/animals/spiders/silk-the-spiders-success-story/
[37] How spiders see the world. Dostęp: 2026-11-12.https://australian.museum/learn/animals/spiders/how-spiders-see-the-world/
[38] Importance of the antenniform legs, but not vision, for homing by the neotropical whip spider Paraphrynus laevifrons. Journal of Experimental Biology 220:885–890. DOI: 10.1242/jeb.149823. Dostęp: 2026-11-12.https://digitalcommons.unl.edu/bioscihebets/83/
[39] Spectral filtering enables trichromatic vision in colorful jumping spiders. Current Biology 25:R403–R404. DOI: 10.1016/j.cub.2015.03.033. Badania mechanizmu filtracji światła w oczach głównych Habronattus, w tym H. pyrrithrix; nie uniwersalny opis widzenia wszystkich pająków. Dostęp: 2026-11-12.https://www.sciencedirect.com/science/article/pii/S0960982215003486
[40] Araneophagic jumping spiders discriminate between detour routes that do and do not lead to prey. Animal Behaviour 53:257–266. DOI: 10.1006/anbe.1996.0372. Dwanaście układów doświadczalnych i dwa warianty drogi; przynęta w postaci martwego, wysuszonego pająka. Dostęp: 2026-11-12.https://www.sciencedirect.com/science/article/pii/S0003347296903723
[41] The execution of planned detours by spider-eating predators. Journal of the Experimental Analysis of Behavior 105(1):194–210. DOI: 10.1002/jeab.189. Eksperyment na 15 gatunkach araneofagicznych skakunów z podrodziny Spartaeinae. Dostęp: 2026-11-12.https://onlinelibrary.wiley.com/doi/10.1002/jeab.189
[42] Regularly occurring bouts of retinal movements suggest an REM sleep–like state in jumping spiders. PNAS 119(33):e2204754119. DOI: 10.1073/pnas.2204754119. Nocne zachowanie Evarcha arcuata; dowód stanu podobnego do REM, bez dowodu treści marzeń sennych. Dostęp: 2026-11-12.https://pmc.ncbi.nlm.nih.gov/articles/PMC9388130/
[43] Behavioral evidence for two-stage sleep in spiders. PNAS 123(45):e2618030123. Online: 26 października 2026; numer: 10 listopada 2026. DOI: 10.1073/pnas.2618030123. Behawioralne kryteria snu u Portia fimbriata; treści subiektywnych doświadczeń nie badano. Dostęp: 2026-11-12.https://doi.org/10.1073/pnas.2618030123
[44] Seismic signals in a courting male jumping spider (Araneae: Salticidae). Journal of Experimental Biology 206:4029–4039. DOI: 10.1242/jeb.00634. Rejestracja wideo i wibrometria laserowa zalotów Habronattus dossenus. Dostęp: 2026-11-12.https://pubmed.ncbi.nlm.nih.gov/14555743/
[45] Carbonic Anhydrase Generates CO2 and H+ That Drive Spider Silk Formation Via Opposite Effects on the Terminal Domains. PLOS Biology 12(8):e1001921. DOI: 10.1371/journal.pbio.1001921. Badanie mechanizmu formowania włókna ze spidroin. Dostęp: 2026-11-12.https://journals.plos.org/plosbiology/article?id=10.1371/journal.pbio.1001921
[46] Egg sacs, spiderlings and dispersal. Dostęp: 2026-11-12.https://australian.museum/learn/animals/spiders/egg-sacs-spiderlings-and-dispersal/
[47] Electric Fields Elicit Ballooning in Spiders. Current Biology 28:2324–2330.e2. DOI: 10.1016/j.cub.2018.05.057. Dostęp: 2026-11-12.https://pmc.ncbi.nlm.nih.gov/articles/PMC6065530/
[48] Bioprospecting Finds the Toughest Biological Material: Extraordinary Silk from a Giant Riverine Orb Spider. PLOS ONE 5(9):e11234. DOI: 10.1371/journal.pone.0011234; wynik dla badanego jedwabiu Caerostris darwini, nie aktualny ranking rekordów. Dostęp: 2026-11-12.https://journals.plos.org/plosone/article?id=10.1371/journal.pone.0011234
[49] Beyond venomous fangs: Uloboridae spiders have lost their venom but not their toxicity. BMC Biology 23(1):159. DOI: 10.1186/s12915-025-02248-1. Pierwszy autor: Xiaojing Peng; badania Uloborus plumipes, z rozróżnieniem aparatu jadowego i toksyczności wydzielin trawiennych. Dostęp: 2026-11-12.https://link.springer.com/article/10.1186/s12915-025-02248-1
[50] Myth: A “daddy-longlegs” is a kind of spider. Dostęp: 2026-11-12.https://www.burkemuseum.org/collections-and-research/biology/arachnology-and-entomology/spider-myths/myth-daddy-longlegs-kind-spider
[51] Nonlinear material behaviour of spider silk yields robust webs. Nature 482:72–76. DOI: 10.1038/nature10739. Eksperymenty odkształcania sieci oraz modele mechaniczne; wynik dotyczy współdziałania właściwości nici i struktury sieci. Dostęp: 2026-11-12.https://www.nature.com/articles/nature10739
[52] Ogre-Faced, Net-Casting Spiders Use Auditory Cues to Detect Airborne Prey. Current Biology 30(24):5033–5039.e3. DOI: 10.1016/j.cub.2020.09.048. Nazwa Deinopis spinosa zgodna z publikacją; reakcja nerwowa na dźwięk i atak łowiecki stanowią różne miary. Dostęp: 2026-11-12.https://pubmed.ncbi.nlm.nih.gov/33125863/
[53] Ecology of a bolas spider, Mastophora hutchinsoni: phenology, hunting tactics, and evidence for aggressive chemical mimicry. Oecologia 74(4):524–530. DOI: 10.1007/BF00380049. Dwa stanowiska w Kentucky, obserwacje 1985–1986; 492 ofiary. Mimetyzm chemiczny przedstawiono w tej pracy jako hipotezę wspieraną przez wyniki terenowe. Dostęp: 2026-11-12.https://pubmed.ncbi.nlm.nih.gov/28311758/
[54] Spit and Venom from Scytodes Spiders: A Diverse and Distinct Cocktail. Journal of Proteome Research 13(2):817–835. DOI: 10.1021/pr400875s. Wydanie zeszytowe 2014; publikacja online 2013. Rozdzielono mechaniczne unieruchomienie lepką wydzieliną od późniejszego wprowadzenia jadu. Dostęp: 2026-11-12.https://pmc.ncbi.nlm.nih.gov/articles/PMC6692171/
[55] Biomimetic spinning of artificial spider silk from a chimeric minispidroin. Nature Chemical Biology 13:262–264. DOI: 10.1038/nchembio.2269. Praca laboratoryjna, nie opis produkcji przemysłowej. Dostęp: 2026-11-12.https://www.nature.com/articles/nchembio.2269
[56] Recombinant Spidroins Fully Replicate Primary Mechanical Properties of Natural Spider Silk. Biomacromolecules 19(9):3853–3860. DOI: 10.1021/acs.biomac.8b00980. Parametry wariantu 192 powtórzeń potwierdza abstrakt publikacji. Dostęp: 2026-11-12.https://pubs.acs.org/doi/10.1021/acs.biomac.8b00980
[57] Recombinant Spidroins Fully Replicate Primary Mechanical Properties of Natural Spider Silk — wersja autorska z danymi uzupełniającymi. NTRS 20180007385; repozytorium klasyfikuje plik jako preprint. Ryc. 2 i Extended Data Table 1; 14 włókien na wariant, słupki błędu oznaczają odchylenie standardowe. Dane poszczególnych wariantów w wykresie pochodzą z tej wersji. Dostęp: 2026-11-12.https://ntrs.nasa.gov/api/citations/20180007385/downloads/20180007385.pdf?attachment=true
[58] Properties of Biomimetic Artificial Spider Silk Fibers Tuned by PostSpin Bath Incubation. Molecules 25(14):3248. DOI: 10.3390/molecules25143248. Badanie inkubacji określonego włókna rekombinowanego w kąpieli po przędzeniu. Dostęp: 2026-11-12.https://www.mdpi.com/1420-3049/25/14/3248
[59] Camel Spiders (Arachnida: Solifugae). Źródło cech i biologii grupy; starszych liczb gatunków z tej strony nie użyto jako współczesnego spisu. Dostęp: 2026-11-12.https://www.americanarachnology.org/about-arachnids/arachnid-orders/solifugae/
[60] Herbivory in a spider through exploitation of an ant–plant mutualism. Current Biology 19:R892–R893. DOI: 10.1016/j.cub.2009.08.049. Dostęp: 2026-11-12.https://pubmed.ncbi.nlm.nih.gov/19825348/
[61] Global patterns in the biocontrol efficacy of spiders: A meta-analysis. Global Ecology and Biogeography 28:1366–1378. DOI: 10.1111/geb.12927. 58 badań z lat 1970–2017; 79% analizowanych przypadków, nie 79% redukcji. Dostęp: 2026-11-12.https://www.muni.cz/en/research/publications/1607512
[62] Trophic niche differentiation in soil microarthropods (Oribatida, Acari): evidence from stable isotope ratios (15N/14N). Soil Biology and Biochemistry 36(11):1769–1774. DOI: 10.1016/j.soilbio.2004.04.033. Badanie 36 gatunków/taksonów w czterech lasach bukowych i bukowo-dębowych. Dostęp: 2026-11-12.https://www.sciencedirect.com/science/article/abs/pii/S0038071704001646
[63] Oribatid mite (Acari, Oribatida) feeding on ectomycorrhizal fungi. Mycorrhiza 16(1):67–72. DOI: 10.1007/s00572-005-0015-8. Oryginalna praca przedstawiona w repozytorium instytucji autorów; trzy gatunki mechowców i dziesięć taksonów grzybów. Dostęp: 2026-11-12.https://www.ufz.de/index.php?en=20939&pub_id=3774
[64] Parasite-host relationships of water mites (Acari: Hydrachnidia) and black flies (Diptera: Simuliidae) in southeastern Spain. Parasites & Vectors 15:474. DOI: 10.1186/s13071-022-05610-2. Materiał z lat 2013–2015; 15 396 poczwarek meszek, przy 426 obecne larwy roztoczy. Gatunek larw pozostawiono jako Sperchon sp. Dostęp: 2026-11-12.https://link.springer.com/article/10.1186/s13071-022-05610-2
[65] Temperature stress induces mites to help their carrion beetle hosts by eliminating rival blowflies. eLife 9:e55649. DOI: 10.7554/eLife.55649. Eksperyment dotyczący Poecilochirus carabi, Nicrophorus vespilloides i muchówek Calliphoridae. Dostęp: 2026-11-12.https://doi.org/10.7554/eLife.55649
[66] Ixodes ricinus: Factsheet for experts. Dostęp: 2026-11-12.https://www.ecdc.europa.eu/en/disease-vectors/facts/tick-factsheets/ixodes-ricinus
[67] Worthless donations: male deception and female counter play in a nuptial gift-giving spider. BMC Evolutionary Biology 11:329. DOI: 10.1186/1471-2148-11-329. W doświadczeniu z Pisaura mirabilis istotnie krótszy był czas wprowadzenia nogogłaszczków; różnica całkowitego czasu kopulacji między prezentami odżywczymi i bezwartościowymi nie była istotna statystycznie. Dostęp: 2026-11-12.https://pmc.ncbi.nlm.nih.gov/articles/PMC3228764/
[68] Prolonged milk provisioning in a jumping spider. Science 362(6418):1052–1055. DOI: 10.1126/science.aat3692. Toxeus magnus: obserwacje i manipulacje dostępem do wydzieliny oraz obecnością matki; ramy czasowe dotyczą warunków badania. Dostęp: 2026-11-12.https://pubmed.ncbi.nlm.nih.gov/30498127/
[69] Cooperative capture of large prey solves scaling challenge faced by spider societies. PNAS 105(33):11818–11822. DOI: 10.1073/pnas.0710603105. Anelosimus eximius. Rycina 3: 517 ofiar i 16,60 g oszacowanej suchej masy; wynik próby, nie całoroczna dieta gatunku. Dostęp: 2026-11-12.https://pmc.ncbi.nlm.nih.gov/articles/PMC2575263/
[70] Dramatic histological changes preceding suicidal maternal care in the subsocial spider Stegodyphus lineatus (Araneae: Eresidae). Journal of Arachnology 43(1):77–85. DOI: 10.1636/B14-15.1. Badania histologiczne tkanek jelita środkowego przed regurgitacją i matriphagią. Dostęp: 2026-11-12.https://cris.huji.ac.il/en/publications/dramatic-histological-changes-preceding-suicidal-maternal-care-in/
[71] Phytoseiulus Predatory Mites. Dostęp: 2026-11-12.https://ipm.ucanr.edu/natural-enemies/phytoseiulus-predatory-mites/
[72] Scabies. Karta informacyjna z 31 maja 2023 r.; co najmniej 200 mln osób w dowolnym momencie oznacza chorobowość, a nie roczną zapadalność. Dostęp: 2026-11-12.https://www.who.int/news-room/fact-sheets/detail/scabies
[73] Whip Scorpions (Arachnida: Thelyphonida). Źródło cech i biologii grupy; starszych liczb gatunków z tej strony nie użyto jako współczesnego spisu. Dostęp: 2026-11-12.https://www.americanarachnology.org/about-arachnids/arachnid-orders/thelyphonida/
[74] Short-tailed Whip Scorpions (Arachnida: Schizomida). Źródło cech i biologii grupy; starszych liczb gatunków z tej strony nie użyto jako współczesnego spisu. Dostęp: 2026-11-12.https://www.americanarachnology.org/about-arachnids/arachnid-orders/schizomida/
[75] Hooded Tick-Spiders (Arachnida: Ricinulei). Źródło cech i biologii grupy; starszych liczb gatunków z tej strony nie użyto jako współczesnego spisu. Dostęp: 2026-11-12.https://www.americanarachnology.org/about-arachnids/arachnid-orders/ricinulei/
[76] Spiders of Europe: Araneus diadematus. Karta gatunku: cechy, siedliska i zasięg. Dostęp: 2026-11-12.https://www.araneae.nmbe.ch/data/206
[77] Spiders of Europe: Argiope bruennichi. Karta gatunku: cechy, siedliska i zasięg. Dostęp: 2026-11-12.https://www.araneae.nmbe.ch/data/150/Argiope_bruennichi?lang=en
[78] Spiders of Europe: Salticus scenicus. Karta gatunku: cechy, siedliska i zasięg. Dostęp: 2026-11-12.https://www.araneae.nmbe.ch/data/1180/Salticus_scenicus
[79] Spiders of Europe: Pholcus phalangioides. Karta gatunku: cechy, siedliska i zasięg. Dostęp: 2026-11-12.https://www.araneae.nmbe.ch/data/1014/Pholcus_phalangioides
[80] The diving bell and the spider: the physical gill of Argyroneta aquatica. Journal of Experimental Biology 214(13):2175–2181. DOI: 10.1242/jeb.056093. Badanie wymiany gazowej w dzwonie wodnym Argyroneta aquatica. Dostęp: 2026-11-12.https://journals.biologists.com/jeb/article-pdf/214/13/2175/1436566/2175.pdf
[81] First record of the schizomid Stenochrus portoricensis (Schizomida: Hubbardiidae) in Poland, with DNA barcode data. Turkish Journal of Zoology 37:357–361. Stwierdzenie w Palmiarni Poznańskiej. Dostęp: 2026-11-12.https://doi.org/10.3906/zoo-1210-9
[82] Spiders of Europe: Europe Species numbers. DOI: 10.24436/1. Wersja odczytanej tabeli 11.2026; Polska 854 gatunki i 328 rodzajów. Dostęp: 2026-11-12.https://araneae.nmbe.ch/biodiversity/species
[83] Spiders of Europe: Country lists. Ograniczenia list krajowych i weryfikacji stwierdzeń. Dostęp: 2026-11-12.https://araneae.nmbe.ch/biodiversity/countrylist
[84] The Mediterranean-Pontian Argiope bruennichi (Scopoli, 1772) in Poland – overview of traits favouring range expansion. European Journal of Ecology 10(2):1–8. DOI: 10.17161/eurojecol.v10i2.22378. Analiza rozmieszczenia i cech sprzyjających ekspansji tygrzyka paskowanego; dane GBIF pobrane 10 listopada 2023 r. Dostęp: 2026-11-12.https://journals.ku.edu/EuroJEcol/article/view/22378
[85] Spider of the Year 2010: The garden spider, Araneus diadematus. Wykorzystano opis sieci łownej i odnawiania jej nici; zakresy długości ciała przyjęto z kart Spiders of Europe. Dostęp: 2026-11-12.https://european-arachnology.org/esa/?page_id=433
[86] Spider’s Webs. Wykorzystano charakterystyczne konstrukcje Argiope bruennichi i Atypus affinis. Dostęp: 2026-11-12.https://britishspiders.org.uk/spider-webs
[87] Common Zebra spider (Salticus scenicus): factsheet 10. Wykorzystano aktywne polowanie za dnia, nić asekuracyjną i schronienia; rozmiary w tabeli pochodzą konsekwentnie ze Spiders of Europe. Dostęp: 2026-11-12.https://britishspiders.org.uk/sites/default/files/2020-08/Salticus_spreads.pdf
[88] Spiders of Europe: Pisaura mirabilis. DOI: 10.24436/1. Karta gatunkowa: długość ciała samców i samic, siedlisko, biologia oraz wykaz występowania w Polsce. Zakresy opisowe, nie pomiar próby polskiej populacji. Dostęp: 2026-11-12.https://araneae.nmbe.ch/data/812?lang=en
[89] Spiders of Europe: Dolomedes fimbriatus. DOI: 10.24436/1. Karta gatunkowa: długość ciała samców i samic, siedlisko, biologia oraz wykaz występowania w Polsce. Zakresy opisowe, nie pomiar próby polskiej populacji. Dostęp: 2026-11-12.https://araneae.nmbe.ch/data/411/Dolomedes_fimbriatus?lang=en
[90] Spiders of Europe: Argyroneta aquatica. DOI: 10.24436/1. Karta gatunkowa: długość ciała samców i samic, siedlisko, biologia oraz wykaz występowania w Polsce. Zakresy opisowe, nie pomiar próby polskiej populacji. Dostęp: 2026-11-12.https://araneae.nmbe.ch/data/201/Argyroneta_aquatica?lang=en
[91] Spiders of Europe: Misumena vatia. DOI: 10.24436/1. Karta gatunkowa: długość ciała samców i samic, siedlisko, biologia oraz wykaz występowania w Polsce. Zakresy opisowe, nie pomiar próby polskiej populacji. Dostęp: 2026-11-12.https://araneae.nmbe.ch/data/1375/Misumena_vatia?lang=en
[92] Spiders of Europe: Atypus affinis. DOI: 10.24436/1. Karta gatunkowa: długość ciała samców i samic, siedlisko, biologia oraz wykaz występowania w Polsce. Zakresy opisowe, nie pomiar próby polskiej populacji. Dostęp: 2026-11-12.https://araneae.nmbe.ch/data/69/Atypus_affinis?lang=en
[93] Spiders of Europe: Cheiracanthium punctorium. DOI: 10.24436/1. Karta gatunkowa: długość ciała samców i samic, siedlisko, biologia oraz wykaz występowania w Polsce. Zakresy opisowe, nie pomiar próby polskiej populacji. Dostęp: 2026-11-12.https://araneae.nmbe.ch/data/1140/Cheiracanthium_punctorium?lang=en
[94] Spider of the year 2023: Cheiracanthium punctorium. Opis nocnego polowania, oprzędów i komór lęgowych. Nie wykorzystano historycznych liczb gatunków ani opisu medycznego. Dostęp: 2026-11-12.https://european-arachnology.org/esa/?page_id=3455
[95] Poland Species List: Order Pseudoscorpiones. Potwierdzenie obecności Chelifer cancroides w wykazie Polski; nie zliczano wierszy obejmujących również podgatunki. Dostęp: 2026-11-12.https://wac.nmbe.ch/order/pseudoscorpiones/distribution/detail/POL
[96] Pseudoscorpions. Tekst datowany lipiec 2004, przegląd styczeń 2013. Chelifer cancroides: długość ciała 3–4 mm bez rozdzielenia płci; cechy i biologia. Informacji o częstości w Pensylwanii nie przeniesiono na Polskę. Dostęp: 2026-11-12.https://extension.psu.edu/pseudoscorpions
[97] The invasive harvestman Opilio canestrinii (Thorell, 1876) (Opiliones: Phalangiidae) in Poland. Fragmenta Faunistica 55(2):161–168. Phalangium opilio wymieniono w tabeli badań fauny Lublina; określenie „invasive” w tytule dotyczy Opilio canestrinii. Dostęp: 2026-11-12.https://rcin.org.pl/Content/34842/PDF/WA058_52862_P256-T55_Frag-Faun-Nr-2.pdf
[98] De Nederlandse Hooiwagens (Opiliones): English supplement. Przedmowa: październik 2014; plik rewizji 2015. Phalangium opilio: s. 27 numeracji suplementu (30. strona PDF), długość ciała 4,3–7,7 mm bez osobnych zakresów płci. Siedliska i cechy diagnostyczne; bez przenoszenia fenologii z Niderlandów do Polski. Dostęp: 2026-11-12.https://britishspiders.org.uk/sites/default/files/2020-08/De_Hooiwagens_1st_revision140615.pdf
[99] Factsheet about Borreliosis. Dostęp: 2026-11-12.https://www.ecdc.europa.eu/en/borreliosis/facts/factsheet
[100] Controlling Asthma. Roztocze kurzu domowego i ograniczanie kontaktu z czynnikami wyzwalającymi objawy. Dostęp: 2026-11-12.https://www.cdc.gov/asthma/control/
[101] Factsheet about tick-borne encephalitis (TBE). Dostęp: 2026-11-12.https://www.ecdc.europa.eu/en/tick-borne-encephalitis/facts/factsheet
[102] Choroby zakaźne i zatrucia w Polsce w 2024 roku. Warszawa 2025. Borelioza: s.71; KZM: s.74. Dane porównawcze za 2023. Numery drukowane, odpowiednio strony PDF 91 i 94. Dostęp: 2026-11-12.https://wwwold.pzh.gov.pl/oldpage/epimeld/2024/Ch_2024
[103] Mały kleszcz – duży problem. Dostęp: 2026-11-12.https://www.gov.pl/web/gis/maly-kleszcz--duzy-problem
[104] Uważaj na kleszcze. Dostęp: 2026-11-12.https://pacjent.gov.pl/uwazaj-na-kleszcze
[105] What to Do After a Tick Bite. Dostęp: 2026-11-12.https://www.cdc.gov/ticks/after-a-tick-bite/index.html
[106] “Spider bite” lesions are usually diagnosed as skin and soft-tissue infections. Journal of Emergency Medicine 41(5):473–481. DOI: 10.1016/j.jemermed.2009.09.014. Jednoośrodkowe badanie 182 pacjentów; nie dane populacyjne dla Polski. Dostęp: 2026-11-12.https://pubmed.ncbi.nlm.nih.gov/19939602/
[107] Poisonings, Envenomations, and Toxic Exposures During Travel. Edycja 2026; aktualizacja rozdziału 23 kwietnia 2025 r. Dostęp: 2026-11-12.https://www.cdc.gov/yellow-book/hcp/environmental-hazards-risks/poisonings-envenomations-and-toxic-exposures-during-travel.html
[108] Case Definition: Varroosis of Honey Bees (Monitored). Dokument datowany December 2023, 2 s. Varroa destructor jako ektopasożyt pszczoły miodnej i wektor jej wirusów. Dostęp: 2026-11-12.https://www.aphis.usda.gov/sites/default/files/varroosis-honey-bees-case-definition.pdf
[109] Differential effects of landscape and management on diversity and density of ground-dwelling farmland spiders. Journal of Applied Ecology 42:281–287. DOI: 10.1111/j.1365-2664.2005.01014.x. Porównanie 12 par pól pszenicy ozimej; wynik lokalnego badania, nie światowa średnia dla rolnictwa ekologicznego. Dostęp: 2026-11-12.https://besjournals.onlinelibrary.wiley.com/doi/10.1111/j.1365-2664.2005.01014.x
[110] Artificial light at night alters life history in a nocturnal orb-web spider. PeerJ 6:e5599. DOI: 10.7717/peerj.5599. Eriophora biapicata; noc około 0 albo 20 luksów, początkowo odpowiednio 215 i 235 młodych osobników. Dostęp: 2026-11-12.https://pmc.ncbi.nlm.nih.gov/articles/PMC6183507/
[111] Guiding lights: Foraging responses of juvenile nocturnal orb-web spiders to the presence of artificial light at night. Ethology 125(5):289–297. DOI: 10.1111/eth.12852. Eksperymenty laboratoryjne i terenowe dotyczące młodych Eriophora biapicata. Dostęp: 2026-11-12.https://onlinelibrary.wiley.com/doi/10.1111/eth.12852
[112] Warming reverses top-down effects of predators on belowground ecosystem function in Arctic tundra. PNAS 115(32):E7541–E7549. DOI: 10.1073/pnas.1808754115. Eksperyment z ogrzewaniem i zmianą zagęszczenia pogońcowatych w tundrze; kierunku efektu nie uogólniono na wszystkie siedliska. Dostęp: 2026-11-12.https://pubmed.ncbi.nlm.nih.gov/30038011/
[113] An expert-based assessment of global threats and conservation measures for spiders. Global Ecology and Conservation 24:e01290. Badanie ankietowe ekspertów; nie globalny pomiar tempa zaniku populacji. Dostęp: 2026-11-12.https://doi.org/10.1016/j.gecco.2020.e01290
[114] Searching the web builds fuller picture of arachnid trade. Communications Biology 5(1):448. DOI: 10.1038/s42003-022-03374-0. Numer 448 oznacza artykuł. 1264 gatunki wykryte łącznie w badanych źródłach handlu; przegląd ofert online z 2021 r. i dane z rejestrów. Dostęp: 2026-11-12.https://www.nature.com/articles/s42003-022-03374-0
[115] How to study spiders and their relatives. Poradnik obserwacji i oznaczania; ograniczenia fotografii, cechy dojrzałych osobników i użycie mikroskopu. Nie wykorzystano historycznych liczebności fauny brytyjskiej. Dostęp: 2026-11-12.https://britishspiders.org.uk/sites/default/files/2020-08/How_to_study_spiders_online.pdf
[116] Gauging megadiversity with optimized and standardized sampling protocols: A case for tropical forest spiders. Ecology and Evolution 7(2):494–506. DOI: 10.1002/ece3.2626. Protokół COBRA-TF; komplementarne metody oraz porównywalny nakład pracy. Dostęp: 2026-11-12.https://pmc.ncbi.nlm.nih.gov/articles/PMC5243776/
[117] A review of extensive variation in the design of pitfall traps and a proposal for a standard pitfall trap design for monitoring ground-active arthropod biodiversity. Ecology and Evolution 6(12):3953–3964. DOI: 10.1002/ece3.2176. Analiza zmienności procedur i raportowania; pojęcie activity-density. Dostęp: 2026-11-12.https://onlinelibrary.wiley.com/doi/full/10.1002/ece3.2176
[118] Towards a DNA Barcode Reference Database for Spiders and Harvestmen of Germany. PLOS ONE 11(9):e0162624. DOI: 10.1371/journal.pone.0162624. Ponad 3500 okazów, prawie 600 gatunków; baza referencyjna dla fauny Niemiec z 2016 r., nie współczesny spis fauny. Dostęp: 2026-11-12.https://journals.plos.org/plosone/article?id=10.1371/journal.pone.0162624
[119] Molecular gut content analysis of different spider body parts. PLOS ONE 13(5):e0196589. DOI: 10.1371/journal.pone.0196589. Próby karmienia Dysdera verneaui; PCR i metabarkoding DNA ofiar w różnych częściach ciała. Dostęp: 2026-11-12.https://journals.plos.org/plosone/article?id=10.1371/journal.pone.0196589