Streszczenie
Biologię płazów wyjaśnia ich zróżnicowanie: budowa ciała, przebieg rozwoju i zależność od środowiska zmieniają się między liniami ewolucyjnymi oraz etapami życia. Kompendium prowadzi od klasyfikacji i ewolucji przez przykłady zachowań oraz przystosowań do procesów populacyjnych. Zestawienia światowe uzupełnia przegląd fauny Polski. Część dotycząca ochrony łączy dane o zagrożeniu z oceną siedlisk, wynikami działań i metodami monitoringu. Liczby opisano wraz z datą, jednostką pomiaru i zakresem badania. Tabele, grafiki, bibliografia oraz indeks nazw pozwalają przechodzić między opisem ogólnym a konkretnym przykładem.
Jak korzystać z kompendium
Różnorodność i klasyfikacja. Rozdziały 1–8 prowadzą od liczb i nazw przez ewolucję oraz genomy do porównania trzech rzędów i wybranych rodzin.
Budowa i życie. Rozdziały 9–15 wyjaśniają fizjologię, rozwój, komunikację, odżywianie, sezonowość i rozmieszczenie płazów.
Polska i procesy przyrodnicze. Rozdziały 16–19 łączą przegląd krajowej fauny z rozpoznawaniem gatunków, dynamiką populacji i rolą płazów w ekosystemach oraz nauce.
Zagrożenia i ochrona. Rozdziały 20–27 opisują stan zagrożenia, choroby, zanieczyszczenia, działania ochronne, monitoring i dokumentację.
Materiał referencyjny. Rozdziały 28–30 zawierają pytania, słownik oraz zasady interpretacji danych. Opracowanie uzupełniają indeks nazw naukowych i bibliografia.
Rozdział 1Różnorodność płazów w liczbach
Płazy tworzą zróżnicowaną biologicznie grupę kręgowców: obejmują skaczące żaby, wydłużone salamandry i niemal niewidoczne na powierzchni ziemi formy beznogie. Ich wspólną cechą nie jest jednak obowiązek spędzania połowy życia w wodzie. Współczesne płazy wykształciły wiele sposobów oddychania, rozrodu i przetrwania okresów niekorzystnych. Zrozumienie tej różnorodności wymaga połączenia systematyki z wiedzą o ekologii i rozwoju. [1]
W potocznym tytule „rodzaje płazów” chodzi o główne grupy. Formalnie są to trzy rzędy: bezogonowe Anura, ogoniaste Caudata oraz beznogie Gymnophiona. Rodzaj jest niższą rangą taksonomiczną; przykładem rodzaju jest Rana. Rozróżnienie to pozwala uniknąć mylenia ropuchy z osobnym rzędem albo salamandry z odrębną gromadą zwierząt. [2]
| Rząd | Liczba gatunków | Udział w bazie |
|---|---|---|
| Bezogonowe Anura | 8 080 | 88,2% |
| Ogoniaste Caudata | 847 | 9,2% |
| Beznogie Gymnophiona | 235 | 2,6% |
| Razem | 9 162 | 100,0% |
Źródło: AmphibiaWeb, stan 10.11.2026. Udziały obliczono jako liczba gatunków rzędu / 9162 × 100 i zaokrąglono do jednego miejsca po przecinku. [3]
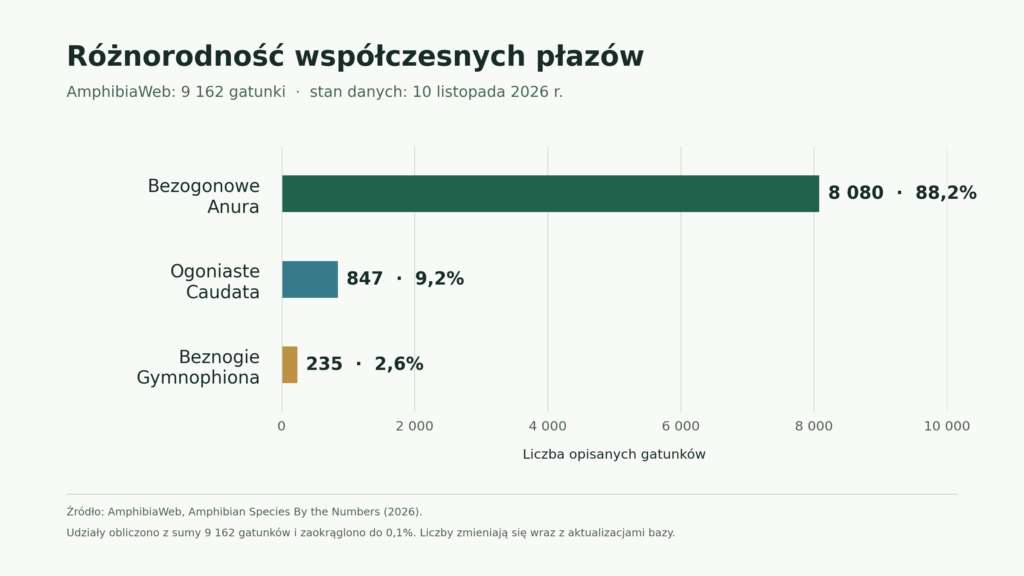
Liczba w bazie oznacza gatunki uznawane w danym ujęciu, a nie policzone osobniki, populacje ani wszystkie gatunki istniejące w przyrodzie. Nowy opis lub podział wcześniej szeroko rozumianego gatunku może zwiększyć tę liczbę bez poprawy stanu populacji. Z kolei połączenie nazw uznanych za synonimy może ją zmniejszyć bez wymarcia zwierząt. [2]
Kompendium omawia żyjące płazy, ich podstawowe grupy, przykłady niezwykłych przystosowań, faunę Polski i wyniki ocen zagrożenia. Przy danych liczbowych podano zakres oraz datę. Przykłady gatunków ilustrują różnorodność; nie są pełnym katalogiem wszystkich rodzin ani terenowym kluczem do oznaczania.
Rozdział 2Jak czytać klasyfikację płazów
| Ranga | Przykład | Znaczenie |
|---|---|---|
| Gromada | Amphibia | Płazy |
| Rząd | Anura | Płazy bezogonowe |
| Rodzina | Ranidae | Żabowate |
| Rodzaj | Rana | Grupa blisko spokrewnionych gatunków |
| Gatunek | Rana temporaria | Żaba trawna |
Schemat hierarchii, a nie pełne drzewo ewolucyjne. [2]
Nazwa naukowa gatunku składa się z nazwy rodzaju oraz epitetu gatunkowego. W tekście specjalistycznym zapisuje się je kursywą: Rana temporaria. Nazwy rzędów i rodzin, takie jak Anura i Ranidae, nie wymagają kursywy. Nazwa polska ułatwia komunikację, lecz dopiero nazwa naukowa pozwala dokładniej ustalić, o którym organizmie mówi dana publikacja. [4]
W źródłach spotyka się również nazwy Urodela dla ogoniastych i Apoda dla beznogich. Ich użycie zależy od tradycji systematycznej oraz zakresu analiz, zwłaszcza gdy uwzględnia się skamieniałości. W tym opracowaniu konsekwentnie stosowane są nazwy Caudata i Gymnophiona, zgodne z użytym zestawieniem liczebności. Różnica nazwy w starszym źródle nie musi oznaczać, że opisuje ono czwartą grupę płazów. [5] [6]
| Cecha dorosłego osobnika | Bezogonowe | Ogoniaste | Beznogie |
|---|---|---|---|
| Sylwetka | Zwykle krótki tułów | Wydłużony tułów | Wydłużona, robakowata |
| Ogon | Brak zewnętrznego ogona | Zachowany | Krótki albo brak |
| Kończyny | Dwie pary; tylne często silne | Zwykle dwie pary; istnieją redukcje | Brak |
| Przykłady | Żaby, ropuchy, rzekotki | Traszki, salamandry, aksolotl | Ichthyophis, Siphonops |
| Ważna uwaga | Kijanka może mieć ogon | Nie każda forma przypomina traszkę | Fałdy skóry nie oznaczają segmentacji jak u dżdżownicy |
Zestawienie dotyczy typowych cech i nie zastępuje diagnoz systematycznych. [7] [8]

Rozdział 3Pochodzenie płazów i współczesna systematyka
Drzewo pokrewieństwa jako wynik analizy
Rekonstrukcja pokrewieństwa wymaga porównania cech, które można zestawić między gatunkami, oraz oceny konkurencyjnych układów rozgałęzień. W badaniu Hime’a i współautorów analizowano 220 loci jądrowych, czyli określonych odcinków genomu, u 286 gatunków płazów. Wyniki silnie wspierały wspólne pochodzenie współczesnych płazów oraz bliższe pokrewieństwo bezogonowych z ogoniastymi niż z beznogimi; tę pierwszą parę nazywa się Batrachia. Poszczególne loci nie zawsze wskazywały jednak ten sam układ. Autorzy znaleźli sygnał zgodny z zachowaniem dawnej zmienności genetycznej podczas rozdzielania się linii przodków, określanym jako niepełne sortowanie linii. Dlatego pojedynczego drzewa genu nie należy utożsamiać bezwarunkowo z historią całych gatunków. Wiarygodność rekonstrukcji ocenia się przez porównanie wielu loci, metod i sposobów doboru taksonów, a także przez sprawdzanie, które rozgałęzienia uzyskują mocne, a które słabe poparcie danych. [9]
Co wnoszą skamieniałości
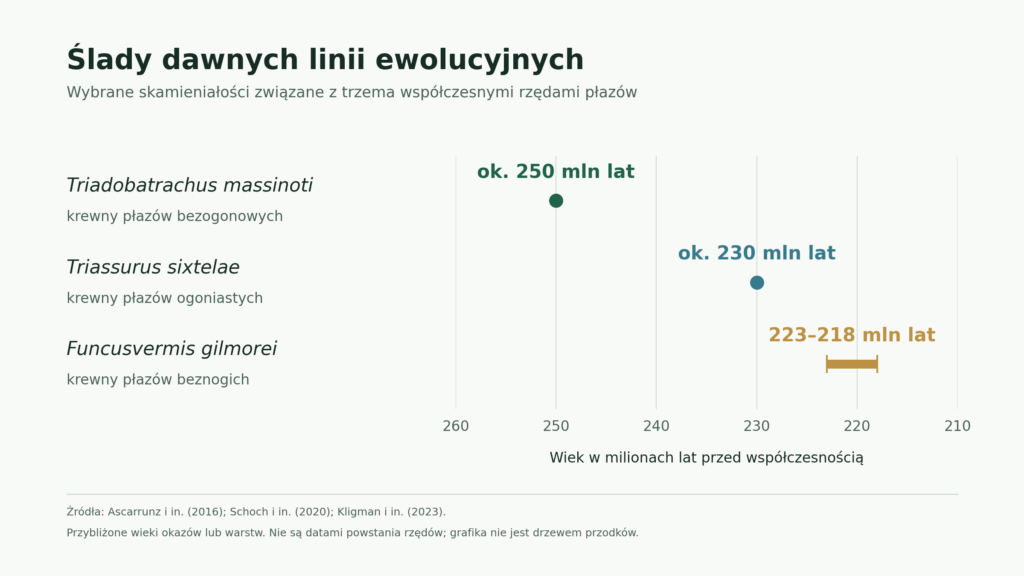
Pochodzenie współczesnych płazów, określanych jako Lissamphibia, trzeba odróżniać od samego uporządkowania trzech żyjących rzędów. Skamieniałości pozwalają porównywać je z wymarłymi liniami czworonogów, których nie można włączyć do analiz na podstawie współczesnego DNA. Opisany w 2023 roku Funcusvermis gilmorei z późnego triasu Arizony został uznany przez autorów za przedstawiciela linii pniowej beznogich. Oznacza to formę spokrewnioną z ich współczesną grupą, lecz położoną poza jej grupą koronną. Kombinacja cech szczęk, żuchwy i zębów wsparła w tej analizie pochodzenie Lissamphibia w obrębie dysorofoidowych temnospondyli. Jest to konkretny argument paleontologiczny, a nie odkrycie kompletnego łańcucha przodków. Fragmentaryczność materiału oraz odmienne umiejscowienie innych skamieniałości nadal wpływają na rekonstrukcje. Również datowanie rozgałęzień za pomocą zegara molekularnego zależy od przyjętych kalibracji kopalnych; wieku znaleziska nie należy przedstawiać jako dokładnej daty powstania całej grupy. [10]
Przykładem ewolucji mozaikowej, w której poszczególne cechy zmieniają się w różnym czasie, jest Triadobatrachus massinoti z wczesnego triasu Madagaskaru. Badanie mikrotomograficzne opublikowane w 2016 roku ujawniło elementy szkieletu niewidoczne w starszych opracowaniach i skorygowało interpretację kręgosłupa. Zwierzę łączyło cechy linii prowadzącej do żab z cechami bardziej pierwotnymi; zachowywało kręgi ogonowe i nie miało po prostu budowy współczesnej żaby. Autorzy uznali, że nie było wyspecjalizowanym skoczkiem. Ich analizy wskazywały również, że część skrócenia tułowia mogła poprzedzać późniejsze przemiany miednicy i ogona. Nie wynika z tego, że opisany okaz był bezpośrednim przodkiem dzisiejszych gatunków. Jego wartość polega na dokumentowaniu kombinacji cech i pomaganiu w ustaleniu możliwej kolejności zmian. Rekonstrukcja lokomocji pozostaje wnioskiem opartym na anatomii, a nie obserwacją zachowania żywego zwierzęcia. [11]
Ogoniaste mają własne znaleziska dokumentujące wczesne etapy ich historii. Schoch i współautorzy opisali w 2020 roku nowy okaz Triassurus sixtelae z formacji Madygen w Kirgistanie, o przybliżonym wieku 230 mln lat. Porównanie z wcześniej znanym, gorzej zachowanym okazem pozwoliło rozpoznać cechy salamander i umieścić zwierzę na ich linii pniowej. Jego anatomia zachowywała zarazem cechy wspólne z temnospondylami. Stopień rozwoju osobnika wpływa na interpretację znaleziska, ponieważ niedojrzały szkielet może utrudniać rozpoznawanie cech diagnostycznych. [12]
Jak wyznacza się granice gatunków
Ustalanie pokrewieństwa i rozpoznawanie granic gatunku to powiązane, lecz odrębne zadania. W koncepcji sformułowanej przez de Queiroza gatunek stanowi odrębnie ewoluującą linię populacji. Różnice wyglądu, izolacja rozrodcza czy zgodność genealogii są w tym podejściu dowodami odrębności, a nie obowiązkowym zestawem cech, który musi pojawić się jednocześnie. Ma to znaczenie przy badaniu linii rozdzielonych stosunkowo niedawno: różne oznaki niezależnej ewolucji mogą ujawniać się w różnej kolejności. Sam brak łatwej do zauważenia różnicy barwnej nie rozstrzyga więc o tożsamości gatunkowej, podobnie jak pojedyncza różnica wyglądu nie przesądza o odrębności. Jest to określona koncepcja metodologiczna, a nie twierdzenie, że wszystkie spory o definicję gatunku zniknęły. Jej praktyczną konsekwencją jest jasne wskazywanie, jakie dane rzeczywiście potwierdzają rozdzielenie badanych populacji. [13]
Taksonomia integratywna łączy różne źródła informacji: morfologię, dane genetyczne, zachowanie, rozmieszczenie i ekologię. Nie polega na mechanicznym liczeniu zgodnych cech. Padial i współautorzy zwracali uwagę, że wymaganie zgodności wszystkich zestawów danych może przeoczyć młode lub trudne do odróżnienia gatunki, natomiast pochopne uznawanie każdej różnicy za odrębność może dzielić zmienny gatunek na sztuczne jednostki. Dlatego rozpoznanie potencjalnej nowej linii bywa dopiero początkiem pracy: trzeba sprawdzić zmienność wewnątrz populacji, porównać materiał z innych miejsc i ocenić alternatywne wyjaśnienia. Określenie „gatunek kandydujący” oznacza hipotezę wymagającą dalszej oceny, nie automatycznie nową, formalnie opisaną pozycję w katalogu. Dobrze udokumentowana zmiana klasyfikacji powinna umożliwiać innym badaczom odtworzenie drogi od okazów i pomiarów do proponowanego podziału. [14]
Analiza krótkiego fragmentu DNA może natomiast pomagać w identyfikacji okazów, również wtedy, gdy larwa wygląda zupełnie inaczej niż dorosły. Vences i współautorzy wykorzystali fragment mitochondrialnego genu 16S do porównywania kijanek z sekwencjami dorosłych żab z Madagaskaru. Przydatność tej metody zależała między innymi od dostępności odpowiednich sekwencji porównawczych. W badanym materiale występowały zarówno wyraźne różnice między populacjami jednego gatunku, jak i współdzielenie wariantów mitochondrialnych przez niektóre blisko spokrewnione gatunki. Taki „kod kreskowy” jest zatem narzędziem rozpoznawania i stawiania hipotez. Nie daje podstaw do wyznaczenia jednej uniwersalnej wartości procentowej różnic DNA, która bez dodatkowej analizy oddzielałaby wszystkie gatunki płazów. Weryfikacja oznaczenia musi uwzględniać jakość bazy odniesienia oraz biologiczny kontekst porównania, szczególnie przy bardzo blisko spokrewnionych formach. [15]
Rozdział 4Genomy i mechanizmy determinacji płci
Co oznacza wielkość genomu
Genom można opisywać ilością DNA, liczbą chromosomów oraz zestawem genów. Każda z tych miar odpowiada na inne pytanie. W genomice dodatkowo odróżnia się szacowaną wielkość genomu od długości jego złożenia, czyli komputerowej rekonstrukcji utworzonej z odczytów sekwencji. Dobrym przykładem jest Xenopus tropicalis. Publikacja z 2010 roku podaje szacunek około 1,7 miliarda par zasad, natomiast uzyskane w niej złożenie obejmowało około 1,51 miliarda par zasad scaffoldów. Scaffold łączy fragmenty sekwencji w większą strukturę, niekoniecznie bez luk. Wartości opisują więc różne właściwości materiału i opracowania danych. W tej samej pracy obecność 97,6% znanych genów świadczyła o dobrym odtworzeniu obszarów genowych; odsetka tego nie można zamienić na procent odczytania całego genomu. [16]
Rozrost sekwencji powtarzalnych u ogoniastych
Aksolotl meksykański Ambystoma mexicanum pokazuje, jak rozległy może być genom płaza ogoniastego. W pracy z 2018 roku jego wielkość oszacowano na około 32 miliardy par zasad. Duże rozmiary wiązały się przede wszystkim z rozbudową intronów i obszarów między genami, w znacznej mierze wskutek namnażania retroelementów LTR. Introny są odcinkami usuwanymi podczas przetwarzania pierwotnego transkryptu, dlatego ich wydłużenie nie oznacza proporcjonalnego wydłużenia kodowanego białka. Autorzy osobno podali długość złożenia oraz długość sekwencji w kontigach, czyli ciągłych złożonych fragmentach. Ta różnica jest istotna przy zestawianiu wielkich genomów: rozmiar rekonstrukcji zależy również od ujęcia luk. Dane z tabeli dokumentują konkretną publikację i wersję opracowania, a nie współczesny rekord ani stałą granicę możliwości sekwencjonowania. [17]
| Gatunek i rok | Podany szacunek genomu | Długość złożenia |
|---|---|---|
| Xenopus tropicalis • 2010 | około 1,7 Gb | około 1,51 Gb scaffoldów. [16] |
| Ambystoma mexicanum • 2018 | około 32 Gb | 32,4 Gb z lukami; 28,4 Gb w kontigach. [17] |
Gb oznacza miliard par zasad. Kolumny rozdzielają miary biologiczne i wynik rekonstrukcji; wartości odnoszą się do wskazanych publikacji.
Inny mechanizm szczegółowo opisano u Pleurodeles waltl. Ten diploidalny gatunek ma 12 par chromosomów, a autorzy opracowania z 2017 roku podali wielkość genomu około 20 Gb. Wśród sekwencji powtarzalnych dominowały elementy Gypsy i Harbinger. Łącznie stanowiły one około dwóch trzecich rozpoznanej frakcji powtarzalnej; mianownikiem tego udziału nie był cały genom. Ich historie również się różniły: Gypsy wykazywały długotrwałą ekspansję, natomiast dla Harbinger odtworzono dwa wyraźne okresy namnażania. Analiza nie wykazała ogólnego, ponad dwukrotnego powiększenia lub zmniejszenia zestawu porównywanych ortologów kodujących białka po wyłączeniu elementów ruchomych. Duża ilość DNA może zatem narastać wskutek zmian w powtórzeniach, bez równoległego mnożenia całego podstawowego zestawu genów. Porównanie rodzin powtórzeń pozwala pytać zarówno o rozmiar genomu, jak i o procesy, które do niego doprowadziły. [18]
Pochodzenie podwojonego genomu Xenopus laevis
U Xenopus laevis zasadniczą rolę odegrała allopoliploidia, czyli połączenie materiału różnych gatunków przodków związane ze zwielokrotnieniem zestawów chromosomów. Analiza genomu z 2016 roku rozdzieliła dwa subgenomy oznaczone L i S. Autorzy oszacowali, że diploidalne linie przodków rozeszły się około 34 milionów lat temu, a ich połączenie prowadzące do allotetraploida nastąpiło około 17–18 milionów lat temu. Są to rekonstrukcje historii ewolucyjnej. Nie opisują prostego podwojenia genomu żyjącego dziś Xenopus tropicalis. Około 56% genów zachowało dwie kopie homeologiczne, pochodzące z obu subgenomów. Pozostałe losy genów obejmowały między innymi utratę kopii, pseudogenizację i zmiany ekspresji. Subgenomy przekształcały się nierównomiernie. Wspólna obecność dwóch dawnych zestawów DNA w jądrze komórkowym nie oznacza więc, że przez miliony lat wszystkie ich składniki pozostają równoważne i jednakowo aktywne. [19]
Zmienne systemy chromosomów płci
Różnorodność dotyczy także genetycznych podstaw płci. W systemie XX/XY samiec jest heterogametyczny, czyli ma dwa różne typy chromosomów płci. Porównanie 28 gatunków Ranidae, obejmujące nowe dane dla 19 gatunków, wykazało częste ewolucyjne zastępowanie jednej pary chromosomów pełniącej funkcję płciową inną. W odtworzonych przejściach heterogametyczność samców została zachowana z jednym wyjątkiem. System oznaczany tymi samymi literami może zatem opierać się u krewnych na różnych chromosomach. Autorzy wiązali ten wzorzec z silnym ograniczeniem rekombinacji u samców i możliwym nagromadzaniem niekorzystnych mutacji. To wyjaśnienie mechanizmu ewolucyjnego pozostaje interpretacją wyników, a zakres porównania obejmuje badaną rodzinę. Podobny wygląd chromosomów pod mikroskopem nie wystarcza do stwierdzenia, że nie różnią się genetycznie lub że płeć nie ma podłoża dziedzicznego. [20]
U Xenopus laevis występuje system ZZ/ZW, w którym heterogametyczne są samice. Z chromosomem W związany jest gen DM-W, spokrewniony z DMRT1. Badania funkcjonalne wykazały, że białko DM-W osłabiało aktywność transkrypcyjną DMRT1 w zastosowanym teście na hodowanych komórkach. Osobne doświadczenia na zwierzętach przyniosły istotny wynik: część genetycznych samic ZW z eksperymentalnie obniżoną aktywnością DM-W rozwijała gonady o budowie jąder. Wyniki wspierają model, w którym przeciwdziałanie aktywności DMRT1 przez DM-W kieruje rozwojem w stronę żeńską. Rozdzielenie testu komórkowego od doświadczenia na płazie pozwala właściwie ocenić siłę dowodu: jeden wyjaśnia możliwe oddziaływanie białek, drugi sprawdza następstwa zaburzenia genu podczas rozwoju. Nie wynika z tego jednak, że DM-W jest uniwersalnym czynnikiem determinującym płeć wszystkich płazów ani że każda manipulacja wywoła identyczny rezultat. [21]
Trzy typy chromosomów w jednym gatunku
Jeszcze inny układ opisano u Xenopus tropicalis. Krzyżowania linii oraz dodatkowe doświadczenia genetyczne wykazały współistnienie typów Y, W i Z: samce miały kombinacje YZ, YW albo ZZ, a samice ZW albo WW. Trzy typy chromosomów występują więc w rozpatrywanym systemie; diploidalny osobnik ma dwa z nich. Zależnie od zestawu rodziców potomstwo mogło odbiegać od proporcji płci 1:1. W badaniu wielopokoleniowym znajomość samej płci rodziców nie wystarczała zatem do przewidywania wszystkich wyników krzyżowania. Schemat przedstawia kombinacje rozpoznane w tej pracy, a nie uniwersalną regułę dla rodzaju Xenopus. [22]
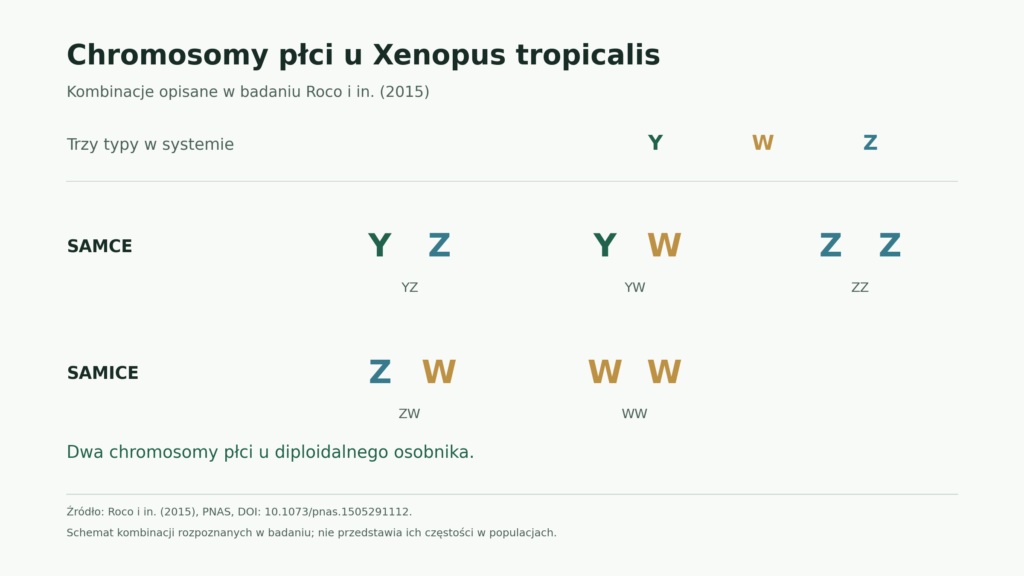
Badanie z 2020 roku połączyło ten problem z populacjami naturalnymi. Analiza Xenopus tropicalis z zachodniej i wschodniej części Ghany wykazała obecność młodego ewolucyjnie chromosomu Y. Czynnik związany z rozwojem męskim zlokalizowano w regionie bardzo podobnym położeniem do wcześniej rozpoznanego czynnika żeńskiego na W. Dane o zmienności sekwencji i transkryptach wspierały wniosek, że Y powstał z przodkowego Z, a W podlegał degeneracji. Autorzy przedstawili także dowody współwystępowania W, Z i Y w tej samej populacji. To rozszerza znaczenie wcześniejszych doświadczeń laboratoryjnych, ale nie określa częstości wszystkich wariantów w całym zasięgu gatunku. Litery X, Y, Z i W są zatem opisem funkcji i sposobu dziedziczenia w danym systemie; do odtworzenia pochodzenia chromosomów potrzebne są porównania ich sekwencji. [23]
Rozwój płci pod wpływem środowiska
Genotyp związany z płcią można porównać z płcią wykształconą podczas rozwoju. U żaby zwinki Rana dalmatina opracowano w tym celu markery DNA, a następnie zbadano 162 dorosłe osobniki z 11 populacji północno-środkowych Węgier. Według tych markerów 20% fenotypowych samców miało żeński genotyp. Odsetek odnosi się do samców, a nie do wszystkich przebadanych żab. Taką niezgodność określa się jako odwrócenie płci względem genetycznego układu odniesienia. W badanych populacjach występowała ona częściej w krajobrazie silniej przekształconym przez człowieka, szczególnie rolniczym. Zależność terenowa nie rozstrzyga jednak, jaki czynnik wywołał zmianę przebiegu rozwoju: samo powiązanie z użytkowaniem ziemi nie identyfikuje substancji chemicznej ani temperatury jako przyczyny. Pokazuje natomiast, dlaczego oszacowanie proporcji płci i zbadanie jej podłoża genetycznego to dwa odrębne zadania badawcze. [24]
Dowodu eksperymentalnego dostarczyło kolejne badanie żaby zwinki. Kijanki poddawano sześciodniowej fali ciepła o temperaturze 30°C, działaniu etynyloestradiolu w nominalnym stężeniu 30 ng/l albo obu czynnikom, w różnych okresach rozwoju larwalnego. Podwyższona temperatura wywoływała rozwój płci męskiej u osobników rozpoznanych genetycznie jako żeńskie. Towarzyszyły temu inne skutki, między innymi mniejsza przeżywalność, opóźnienie przeobrażenia i mniejsza masa przy metamorfozie. Zastosowany poziom etynyloestradiolu nie wywołał analogicznych efektów, co odnosi się do tego stężenia i układu doświadczenia. Wynik potwierdza, że genetyczna determinacja płci może współistnieć z wrażliwością rozwijających się gonad na warunki środowiska. Nie opisuje zmiany płci dorosłej żaby i nie ustanawia temperatury 30°C jako wspólnego progu dla płazów. Wnioskowanie o skutkach w naturze wymaga uwzględnienia czasu ekspozycji, etapu rozwoju oraz warunków doświadczanych przez konkretną populację. [25]
Rozdział 5Różnorodność płazów bezogonowych
Bezogonowe, czyli Anura, obejmują między innymi żaby właściwe, ropuchowate, rzekotkowate, kumaki i liczne grupy tropikalne. Nazwy potoczne opisują tylko część różnorodności i nie tworzą równorzędnego podziału całej gromady. Ropucha jest zatem płazem bezogonowym, podobnie jak rzekotka. Z kolei słowo „żaba” bywa używane szeroko wobec wielu Anura albo wężej wobec przedstawicieli określonych rodzin. Przy precyzyjnym porównaniu trzeba sprawdzić nazwę naukową i rangę taksonu. [26]
Sylwetka przystosowana do ruchu
Dorosłe bezogonowe rozpoznajemy po krótkim tułowiu i braku zewnętrznego ogona; u wielu gatunków tylne kończyny są wyraźnie dłuższe od przednich. Ich układ ruchu jest jednak czymś więcej niż zestawem „długich nóg do skakania”. Skrócenie przedkrzyżowej części kręgosłupa, przebudowa miednicy oraz obecność urostylu, czyli wydłużonego elementu tylnej części szkieletu osiowego, współtworzą charakterystyczną konstrukcję ciała. Badania porównawcze pokazują, że część tych samych mięśni uczestniczy w odbiciu do skoku, napędzie podczas pływania oraz chodzeniu, zależnie od sposobu aktywacji. Nie należy więc traktować wszystkich Anura jako jednakowo wyspecjalizowanych skoczków. [27]
Od wodnej kijanki do rozwoju na lądzie
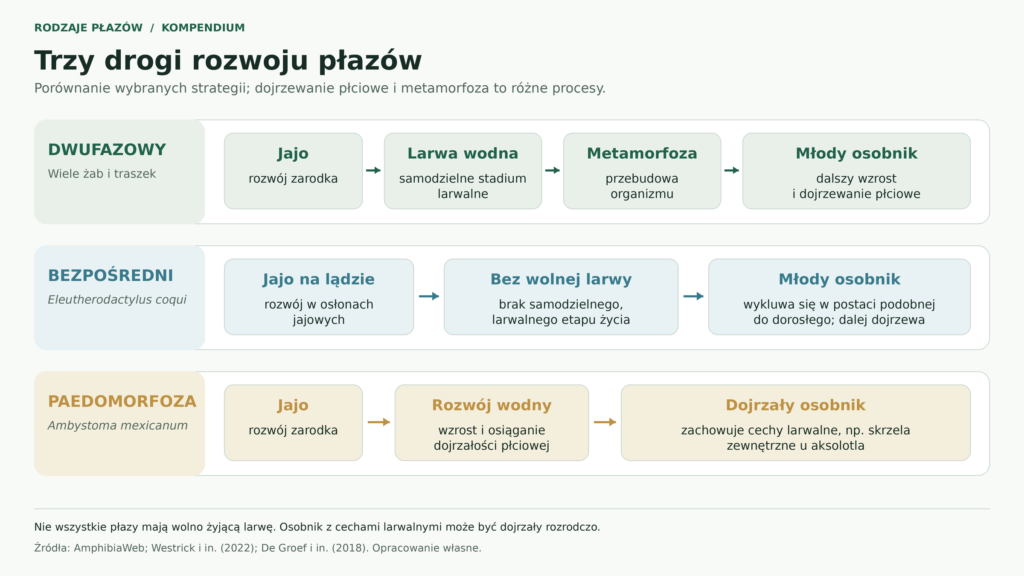
Eleutherodactylus coqui z Portoryko rozwija się bez wolno żyjącej kijanki. Z lądowych jaj wykluwają się małe żaby; samiec opiekuje się jajami i młodymi. Rozród nadal zależy od wilgotności. Gatunek należy do Eleutherodactylidae, a nie rzekotkowatych. [28]
Odmienną opiekę nad potomstwem spotykamy u Pipa pipa z rodziny Pipidae. Zapłodnione jaja trafiają na grzbiet samicy, a jej skóra obrasta je, tworząc miejsce rozwoju. U Rhinoderma darwinii z lasów Chile i Argentyny larwy rozwijają się w worku głosowym samca. Oba przypadki pokazują, że miejsce opieki nad potomstwem i udział rodziców mogą się bardzo różnić nawet w obrębie jednego rzędu. Nie są to jednak cechy wszystkich przedstawicieli rodzin, do których należą te gatunki. [29] [30]
U Conraua goliath opisano przygotowywanie miejsc rozrodu w pobliżu rzeki Mpoula w Kamerunie: oczyszczanie zagłębień i usuwanie materiału z miejsc składania jaj. W badanym odcinku o długości 400 metrów autorzy rozpoznali 19 gniazd, a fotopułapka zarejestrowała ich nocne pilnowanie przez dorosłe osobniki. To lokalny wynik badania, nie szacunek zagęszczenia gatunku w całym zasięgu. Autorzy rozważali, czy budowa takich miejsc mogła sprzyjać ewolucji dużych rozmiarów ciała; przedstawili to jako hipotezę wymagającą dalszego sprawdzania. [31]
Skrajne rozmiary i obrona chemiczna
Miniaturyzację ilustruje Paedophryne amauensis z Papui-Nowej Gwinei. W opisie gatunku z 2012 r. dorosłe samce miały 7,0–8,0 mm długości od czubka pyska do kloaki, średnio 7,7 mm. Zwierzęta znaleziono w ściółce; ich krótkie, wysokie głosy przypominały odgłosy owadów. Są to pomiary tułowia, bez wyprostowanych kończyn. Opisują skrajnie małe rozmiary badanych dorosłych samców. [32]
Drzewołazy, w tym Phyllobates terribilis, pokazują z kolei znaczenie obrony chemicznej. Ich toksyny skórne są powiązane z dietą, a jaskrawe ubarwienie może sygnalizować zagrożenie drapieżnikom. Nazwa „żaby do zatruwania strzał” nie powinna być rozciągana na każdą barwną żabę: Smithsonian wskazuje tylko trzy gatunki, dla których udokumentowano takie wykorzystanie, wszystkie należące do Phyllobates. Sam wygląd zwierzęcia nie stanowi wiarygodnej miary toksyczności, dlatego porównania wymagają znajomości gatunku i rodzaju wydzieliny. [33]
Rozdział 6Salamandry i inne płazy ogoniaste
Ogoniaste, czyli Caudata, zachowują ogon w dorosłym życiu. Typowa sylwetka obejmuje wydłużony tułów i dwie pary kończyn o bardziej zbliżonych rozmiarach niż u wielu żab. Podobieństwo do jaszczurki bywa powierzchownie przekonujące, lecz płaz ma inną budowę skóry i odrębną historię rozwojową. Ogon i cztery kończyny są użytecznymi wskazówkami do rozpoznania typowej salamandry, ale nie tworzą diagnozy pozbawionej wyjątków. [34]
Przykładem wyjątku jest północnoamerykański Siren lacertina: zwierzę o wydłużonym ciele, zewnętrznych skrzelach i bez kończyn tylnych. Jego wygląd pokazuje, dlaczego reguła „każdy płaz ogoniasty ma cztery nogi” jest błędna. Utrata części kończyn nie przenosi go do beznogich Gymnophiona. O przynależności decyduje pochodzenie ewolucyjne i zespół cech, a nie jedna podobna cecha sylwetki. [35]
Dorosłość nie zawsze wymaga metamorfozy
Aksolotl, Ambystoma mexicanum, należy do najważniejszych przykładów paedomorfozy: dojrzały rozrodczo osobnik zachowuje cechy kojarzone z młodocianym stadium rozwoju. W zwykłym cyklu życia nie przechodzi metamorfozy typowej dla wielu innych salamander. Nie jest więc poprawne przedstawianie każdego aksolotla jako „niedorosłej larwy”, ponieważ zwierzę może w tej postaci rozmnażać się. Trzeba oddzielić dojrzewanie układu rozrodczego od przemian pozostałych narządów. Ta szczególna biologia uczyniła aksolotla modelem badań nad kontrolą hormonalną rozwoju; wyników uzyskanych na nim nie należy automatycznie przenosić na wszystkie ogoniaste. [36]
Życie bez płuc i długowieczność w jaskiniach
Bezpłucne Plethodontidae pokazują, że również w obrębie ogoniastych narządy oddychania mogą być zasadniczo odmienne. U dorosłych wymiana gazowa odbywa się głównie przez skórę i śluzówkę jamy gębowo-gardzielowej. Tę cechę trzeba uwzględniać przy opisie ich związku z wilgotnymi mikrosiedliskami. [37]
Odmieniec jaskiniowy, Proteus anguinus, reprezentuje jeszcze inną specjalizację. Jego życie w środowisku podziemnym zainteresowało badaczy starzenia. W pracy opublikowanej online w 2010 roku, a w tomie czasopisma w 2011 roku, na podstawie długoterminowych danych przewidywano maksymalną długość życia przekraczającą 100 lat. Wartość ta jest prognozą wynikającą z analizy przeżywalności, nie potwierdzonym wiekiem konkretnego osobnika. [38]
Rozdział 7Budowa i życie płazów beznogich
Gymnophiona obejmują wydłużone płazy pozbawione kończyn i ich obręczy. Większość dorosłych prowadzi życie podziemne, choć istnieją również formy wodne i półwodne. Zwarta, silnie skostniała czaszka oraz wydłużony tułów wiążą się z ich sposobem poruszania. Współczesne badania anatomiczne podkreślają zarazem, że znaczna część gatunków pozostaje słabo zbadana. Mniejsza rozpoznawalność tej grupy odzwierciedla więc zarówno skryty tryb życia, jak i rzeczywiste luki w naszej wiedzy. [39]
Budowa ciała i narządy zmysłów
Przypominają z wyglądu dżdżownice lub węże, ale są kręgowcami należącymi do płazów. Ważną cechą jest wyspecjalizowany narząd chemosensoryczny w postaci czułka w okolicy pomiędzy nozdrzem a okiem. Anatomia czaszki Dermophis mexicanus pokazuje, jak odmienna od żab i salamander może być budowa tej samej gromady. Chemiczne rozpoznawanie otoczenia ma tu duże znaczenie, jednak nie uzasadnia nazywania wszystkich beznogich całkowicie ślepymi. [40]
Badania porównawcze oczu wykazały funkcjonalne struktury fotoreceptorowe u niemal wszystkich zbadanych w danej pracy form, mimo małych rozmiarów oka i jego osłonięcia. Równie ostrożnie trzeba traktować szkolne zdanie, że płazy nie mają łusek. U wielu Gymnophiona występują drobne łuski ukryte w fałdach skóry; u innych zostały zredukowane lub utracone. Ta cecha nie upodabnia ich taksonomicznie do węży, lecz dokumentuje zróżnicowanie budowy skóry w obrębie płazów. [41] [8]
Rozród trudniejszy do obserwowania
Rozmnażanie beznogich obejmuje kilka strategii, których nie należy sprowadzać do jednego schematu. U badanych Ichthyophis samice składają jaja na lądzie i opiekują się złożem; po wykluciu larwy rozpoczynają życie związane z wodą. Obserwacje rozrodu Ichthyophis cf. kohtaoensis obejmowały również kopulację i zatrzymywanie jaj przed złożeniem. To dowód na to, że lądowe miejsce składania jaj samo w sobie nie oznacza rozwoju bezpośredniego. Kluczowe jest ustalenie, jaka postać opuszcza osłony jajowe i gdzie żyje później. [42]
U Siphonops annulatus opisano odżywianie młodych wydzieliną matki uwalnianą przez kloakę i powstającą w gruczołach nabłonka jajowodu. Autorzy nazwali tę bogatą w lipidy i węglowodany substancję mlekiem. Porównanie odnosi się do funkcji odżywczej: nie oznacza obecności gruczołów sutkowych ani identycznej budowy wydzieliny jak u ssaków. Przykład pokazuje, że nawet skryte i słabo poznane płazy mogą wykazywać złożone formy opieki rodzicielskiej. [43]
| Rząd | Rodzina | Przykładowy rodzaj |
|---|---|---|
| Anura | Ranidae | Rana, Pelophylax |
| Anura | Bufonidae | Bufo |
| Anura | Hylidae | Hyla |
| Anura | Pipidae | Pipa, Xenopus |
| Anura | Dendrobatidae | Phyllobates |
| Anura | Eleutherodactylidae | Eleutherodactylus |
| Caudata | Salamandridae | Salamandra, Triturus |
| Caudata | Ambystomatidae | Ambystoma |
| Caudata | Plethodontidae | Plethodon |
| Caudata | Proteidae | Proteus |
| Gymnophiona | Ichthyophiidae | Ichthyophis |
| Gymnophiona | Siphonopidae | Siphonops |
Tabela przedstawia wybór rodzin, nie pełną klasyfikację płazów. Nazwy rodzajów nie są nazwami gatunków. Źródła klasyfikacji: [26] [5] [6]; przykłady omawiane w tekście zweryfikowano również w publikacjach biologicznych.
Rozdział 8Wybrane rodziny płazów
Rozszerzony przegląd obejmuje dwadzieścia wybranych rodzin. Łączy grupy znane z polskiej fauny z przykładami pozwalającymi porównać odmienne sposoby rozrodu, zdobywania pokarmu i wykorzystywania siedlisk. Jest wyborem problemów biologicznych, a nie kompletnym katalogiem systematycznym. Przy każdym profilu trzeba rozdzielić cechy przydatne do ogólnego scharakteryzowania rodziny od wyników doświadczenia na konkretnym gatunku. Pojedynczy eksperyment może wyjaśniać mechanizm, lecz sam nie określa jego rozpowszechnienia w całej grupie.
Ranidae i plastyczność wodnego rozwoju
Ranidae, czyli żabowate, obejmują między innymi rodzaje Rana i Pelophylax. W ogólnym opisie rodziny zwracają uwagę silne kończyny tylne, błony między palcami oraz często wyraźna błona bębenkowa. Wiele gatunków łączy aktywność dorosłych na lądzie i w wodzie, a jaja składa w środowisku wodnym, gdzie rozwijają się swobodnie żyjące kijanki. Są to cechy pomocne w porównywaniu typowych przedstawicieli, lecz nie zastępują oznaczenia gatunku. Szeroki zasięg i różnorodność siedlisk tej rodziny sprawiają, że model żaby mieszkającej stale przy brzegu stawu jest zbyt wąski. AmphibiaWeb podkreśla również wielokrotne zmiany zakresu dawniej bardzo szeroko rozumianego rodzaju Rana. Przy zestawianiu prac trzeba więc sprawdzać, jak autorzy używają nazw rodzajowych. [44]
Wodny etap życia może reagować na zagrożenie zmianą przebiegu rozwoju. Vodrážková i współautorzy badali kijanki Rana temporaria w obecności oddzielonych fizycznie żółwi czerwonolicych, Trachemys scripta elegans. Kijanki otrzymywały sygnały chemiczne drapieżnika, lecz nie były przez niego zjadane. Przechodziły przeobrażenie wcześniej i przy mniejszych rozmiarach niż zwierzęta kontrolne; nie stwierdzono natomiast istotnej zmiany przebiegu tempa wzrostu. To rozróżnienie jest biologicznie ważne: przyspieszenie przejścia do kolejnego stadium nie musi oznaczać szybszego przyrostu ciała. Doświadczenie pokazuje plastyczność rozwojową znanej europejskiej żaby i pozwala oddzielić skutki samego zagrożenia od bezpośredniego ubytku osobników. Nie wyznacza jednej reakcji obowiązującej wobec każdego drapieżnika. Również krótszy czas do metamorfozy nie powinien być automatycznie interpretowany jako poprawa warunków życia, skoro towarzyszyły mu mniejsze rozmiary młodych. [45]
Bufonidae i różnorodność ropuch
Bufonidae obejmują ropuchowate. Dobrze znany plan budowy łączy krępe ciało, stosunkowo krótkie kończyny i brodawkowaną skórę; u wielu przedstawicieli widoczne są parotydy, czyli zgrupowania gruczołów za oczami. Typowa sylwetka ropuchy jest jednak tylko jednym aspektem tej rodziny. Zróżnicowanie obejmuje również rozwój potomstwa: obok gatunków z wodnymi kijankami występują formy składające jaja na lądzie i rodzące żywe młode. Nie można zatem przypisać całej rodzinie jednego miejsca rozrodu na podstawie samej budowy dorosłego zwierzęcia. [46]
Badania Rhinella marina pokazują, że wygląd gruczołu trzeba powiązać z jego działaniem. Mailho-Fontana i współautorzy opisali parotydy jako element obrony biernej: nacisk towarzyszący ugryzieniu pomaga uwolnić wydzielinę, narażając napastnika na jej działanie. Znaczenie mają zarówno nagromadzenie gruczołów, jak i budowa skóry oraz ujść przewodów. Widoczne zgrubienie za okiem nie jest więc jedynie plamą ostrzegawczą, lecz częścią mechanizmu obronnego. Praca porównawcza wykazała także różnice między badanymi gatunkami w sposobie uwalniania wydzieliny. Z jej wyników nie wynika, że wszystkie ropuchy aktywnie wyrzucają truciznę ani że jednakowo reagują na zagrożenie. [47]
Afrykańskie Bufonidae dostarczają odrębnego przykładu zróżnicowania. U Nimbaphrynoides occidentalis potomstwo rozwija się wewnątrz samicy, która zapewnia mu dodatkowe odżywianie; jest to żyworodność z matrotrofią. Analiza Liedtkego i współautorów wykazała, że lądowe strategie rozrodcze, w tym żyworodność, powstawały w badanej grupie niezależnie. Ich występowanie wiązało się ze stromym terenem i niewielką dostępnością miejsc gromadzenia wody. Autorzy interpretowali kolejność zmian jako przystosowanie rozrodu do takich siedlisk. Jest to wniosek z porównania filogenezy, środowiska i cykli życia, a nie obserwacja pojedynczej ropuchy zmieniającej strategię. Rodzina pozwala więc badać zarówno działanie konkretnego narządu, jak i ewolucję całego sposobu reprodukcji. [48]
Hylidae i życie na roślinności
Hylidae obejmują między innymi rodzaje Hyla, Dendropsophus i Trachycephalus. Dwa poniższe przykłady pokazują odmienne funkcje roślinności: podporę podczas przemieszczania się oraz miejsce składania jaj ponad wodą. [49] [50] [51]
Bijma i współautorzy analizowali lądowanie Trachycephalus resinifictrix na drewnianym pręcie imitującym niewielką gałąź. Żaby mogły kończyć skok kontaktem brzuchem albo przyczepić się palcami kończyny przedniej lub tylnej. W drugim wariancie ciało obracało się wokół podpory, podczas gdy kontakt utrzymywały przylgi palców. Nagrania pokazały zatem coś więcej niż zdolność siedzenia na pionowej powierzchni: przyczepność pomagała opanować dynamiczne lądowanie na wąskim podłożu. Autorzy nie rozstrzygnęli wszystkich szczegółów aktywnego korygowania pozycji w locie. Opis dotyczy udokumentowanego zachowania tego gatunku, a nie stałego repertuaru każdej rzekotki. [50]
Elastyczność rozrodu udokumentowano u Dendropsophus. Badanie z 2024 roku objęło eksperymenty terenowe na trzynastu gatunkach oraz porównanie ośmiu populacji Dendropsophus ebraccatus. U części badanych form jaja mogły rozwijać się zarówno w wodzie, jak i poza nią; zakres takiej elastyczności różnił się między gatunkami i populacjami. Populacje D. ebraccatus z bardziej deszczowego i stabilnego klimatu składały mniej jaj w wodzie niż populacje z suchszych obszarów. Wynik pokazuje, że miejsce złożenia jaj nie zawsze jest niezmienną cechą gatunku. Jednocześnie zdolność zarodka do rozwoju w obu środowiskach i zachowanie wybierającego miejsce rozrodu rodzica trzeba badać osobno: zmiana miejsca ma znaczenie tylko wtedy, gdy potomstwo jest zdolne tam przetrwać. [51]
Dendrobatidae i współpraca rodzicielska
Dendrobatidae są neotropikalną rodziną płazów bezogonowych, dobrze ilustrującą rozdzielenie miejsca składania jaj od miejsca dalszego rozwoju kijanek. U wielu przedstawicieli złoża powstają na lądzie, a rodzic przenosi wyklute potomstwo na grzbiecie do wody. Transport może wykonywać samiec lub samica, zależnie od gatunku. Wśród wykorzystywanych miejsc są małe zbiorniczki zatrzymywane przez rośliny lub zagłębienia pni. U niektórych gatunków opieka obejmuje późniejsze dostarczanie niezapłodnionych jaj jako pokarmu. To sekwencja czynności wymagająca powrotów do potomstwa, a nie jednorazowe złożenie jaj. Rodzinę warto więc poznawać przez zachowanie i organizację cyklu życia, obok opisanych wcześniej cech obrony chemicznej. [52]
Brown, Morales i Summers porównali peruwiańskie Ranitomeya imitator i Ranitomeya variabilis. Pierwszy gatunek wykorzystywał bardzo małe zbiorniczki dla kijanek, drugi większe. U R. imitator samica dostarczała jaja pokarmowe, a opieka obojga rodziców była w eksperymentach terenowych niezbędna do przeżycia kijanek w małych zbiorniczkach. Badania zachowania oraz analizy genetyczne wykazały również monogamię społeczną i genetyczną w badanej populacji. Pierwsze pojęcie odnosi się do utrzymywania pary, drugie do pochodzenia potomstwa. Zestawienie tych danych wiąże cechę siedliska z podziałem opieki i systemem kojarzeń. Nie oznacza jednak, że każdy drzewołaz tworzy trwałą parę. Wartością przykładu jest właśnie porównanie blisko spokrewnionych gatunków oraz sprawdzenie skutków opieki w doświadczeniu, zamiast wyprowadzania całej interpretacji z samej obserwacji rodziców przy kijance. [53]
Salamandridae i odmienne drogi rozrodu
Salamandridae łączą salamandry z rodzaju Salamandra z traszkami należącymi między innymi do Lissotriton i Triturus. Jest to rodzina w obrębie ogoniastych, a nie nazwa całego rzędu. Przy porównywaniu jej przedstawicieli szczególnie użyteczne są dwa pytania: jak dochodzi do przekazania plemników oraz w jakim stadium potomstwo opuszcza organizm matki. Pokrewieństwo nie wymaga identycznej odpowiedzi na oba pytania. [54]
U Lissotriton helveticus zaloty w wodzie obejmują ruchy ogona kierujące sygnały chemiczne ku samicy. Van Bocxlaer i współautorzy zidentyfikowali białkowe feromony z grupy SPF; w testach behawioralnych wystarczały one do wywołania podążania samic, charakterystycznego dla zalotów. Taka koordynacja ma znaczenie dla pobrania przez samicę spermatoforu pozostawianego przez samca na podłożu. Ruch ogona pełni zatem również funkcję transportowania substancji w otaczającej wodzie. Dzięki połączeniu obserwacji, izolowania białek i prób zachowania można wskazać mechanizm komunikacji, zamiast jedynie opisać godowy taniec. Wyniku dotyczącego określonych feromonów nie należy automatycznie przenosić na wszystkie salamandry i traszki. [55]
Z kolei Salamandra salamandra pokazuje zróżnicowanie rozrodu nawet wewnątrz jednego gatunku. W szeroko występującym wariancie samica rodzi larwy, które kontynuują rozwój w wodzie; ten sposób określa się jako larwiparię. W części populacji północnej Iberii opisano rodzenie młodych po przeobrażeniu, czyli pueriparię. Buckley i współautorzy porównali rozwój zarodków obu form. Wskazali przesunięcia terminów poszczególnych zdarzeń rozwojowych oraz wewnątrzmaciczne pobieranie jaj i innych larw jako elementy strategii prowadzącej do urodzenia przeobrażonych młodych. Nie jest to cecha, którą należy bez sprawdzenia przypisywać populacjom polskim. Przy opisie gatunku informacja o regionie i sposobie rozrodu ma więc znaczenie porównywalne z samą nazwą: te same słowa „salamandra plamista” mogą obejmować odmienne zależności potomstwa od otwartego zbiornika. [56]
Plethodontidae i specjalizacje lądowych salamander
Plethodontidae, znane jako salamandry bezpłucne, nie ograniczają się do jednego regionu Ameryki Północnej. Zasięg rodziny obejmuje znaczną część obu Ameryk, a przedstawiciele występują także w południowej Europie i Korei. Opisany wcześniej sposób oddychania jest ważną wspólną cechą, lecz do zrozumienia ich biologii potrzebne są również dane o opiece nad jajami i sposobie chwytania zdobyczy. [57]
U lądowego Plethodon cinereus wpływ opiekunki na potomstwo sprawdzono przez wymianę złożeń jaj między samicami różniącymi się wielkością. W doświadczeniu Crespi i Lessig utrzymywano porównywalne warunki oraz uwzględniono grupę kontrolną, której jaja zabrano i zwrócono. Wielkość młodych przy wykluciu była związana zarówno z wielkością jaja, jak i z rozmiarami opiekującej się nim samicy. Wynik wskazuje na znaczenie oddziaływań zachodzących już po złożeniu jaj, których nie można wyjaśnić wyłącznie pochodzeniem genetycznym potomstwa. Nie ustalono jednak dokładnego mechanizmu tego wpływu. Doświadczenie pozwala zatem wykryć efekt opieki i wskazać dalsze pytanie badawcze: które zachowania opiekunki lub cechy środowiska złoża wywołują obserwowaną różnicę? [58]
Inną specjalizację pokazuje aparat językowy. U części Plethodontidae, między innymi Hydromantes platycephalus, język może być wyrzucany z wykorzystaniem energii sprężystej zgromadzonej przed ruchem. Porównania Debana i współautorów odróżniały taki mechanizm od wysuwania języka napędzanego bezpośrednio skurczem mięśni. Układ wykorzystujący energię sprężystą pozwalał zachować wysoką prędkość i moc wyrzutu języka także przy niższej temperaturze ciała, a analiza filogenetyczna wskazywała na jego niezależne powstawanie w różnych liniach rodziny. Nie oznacza to braku wpływu temperatury na całe zwierzę. Pokazuje, że określona czynność może być mniej wrażliwa termicznie niż inne procesy fizjologiczne. Przykład uzupełnia obraz lądowej salamandry: sukces żerowania zależy nie tylko od obecności bezkręgowców, ale również od sposobu napędzania ruchu chwytnego. [59]
| Rodzina | Przykład | Najważniejsze rozróżnienie | Źródło |
|---|---|---|---|
| Ranidae | Rana temporaria | Tempo rozwoju i tempo wzrostu nie są tą samą wielkością. | [45] |
| Bufonidae | Nimbaphrynoides occidentalis | Żyworodność z matrotrofią występuje także wśród ropuchowatych. | [48] |
| Hylidae | Dendropsophus ebraccatus | Miejsce składania jaj może różnić się między populacjami i warunkami. | [51] |
| Dendrobatidae | Ranitomeya imitator | Transport kijanek i ich karmienie łączą kolejne etapy opieki. | [52] [53] |
| Salamandridae | Salamandra salamandra | Narodziny wodnej larwy i narodziny przeobrażonego młodego to różne strategie. | [56] |
| Plethodontidae | Hydromantes platycephalus | Ruch języka może wykorzystywać uprzednio zgromadzoną energię sprężystą. | [59] |
Tabela porównuje udokumentowane przykłady; wymienione właściwości nie są uniwersalnymi cechami diagnostycznymi wszystkich członków rodzin.
Alytidae i jaja przenoszone przez samca
Alytes obstetricans występuje w zachodniej Europie i należy do Alytidae. Dorosłe korzystają między innymi z kamienistych skarp, murków, rumowisk i innych kryjówek blisko miejsc odpowiednich dla larw. Rozród rozpoczyna się na lądzie: samiec nosi sznury jaj owinięte wokół tylnych kończyn. Według francuskiej karty gatunku opieka trwa zwykle od trzech do siedmiu tygodni, a jaja są nawilżane. Wyklucie prowadzi jednak do wodnego etapu kijanki. Gatunek dobrze pokazuje, dlaczego warto osobno opisywać środowisko dorosłego, rozwój zarodka i środowisko larwy: lądowa opieka nad jajami nie oznacza zakończenia rozwoju poza wodą. [60] [61]
Rhacophoridae i mikroklimat gniazda pianowego
Japoński Zhangixalus arboreus, w starszej pracy nazwany Rhacophorus arboreus, rozmnaża się przy zbiornikach otoczonych lasem. Gniazda pianowe umieszczane na gałęziach lub liściach oddzielają wczesny rozwój od wody, do której następnie trafiają larwy. Badania terenowe i laboratoryjne Kusano i współautorów wykazały, że piana wpływa na warunki termiczne i może być pokarmem wyklutych larw. Przy wysokiej temperaturze powietrza wnętrze badanych gniazd bywało chłodniejsze nawet o 6°C. Jest to maksymalna różnica odnotowana w określonych warunkach badania, nie stała właściwość każdego gniazda. Takie pomiary pozwalają badać funkcję konstrukcji, zamiast wnioskować o niej wyłącznie z wyglądu. [62] [63]
Nasikabatrachidae między glebą a strumieniem
Nasikabatrachus sahyadrensis z indyjskich Ghatów Zachodnich łączy podziemny tryb życia dorosłych z rozrodem związanym ze strumieniami. W opisanych obserwacjach jaja składano w zacienionych, skalnych zagłębieniach koryta, napełnianych przez wczesne deszcze monsunowe. Kijanki mają spłaszczone ciało i aparat gębowy przystosowany do przyczepiania się do podłoża w nurcie. Autorzy opisali rozwój do przeobrażenia trwający około 100 dni. Tę długość należy odnosić do badanych warunków. Najważniejsza różnica ekologiczna dotyczy jednak środowiska kolejnych stadiów: siedlisko pozwalające dorosłemu przebywać pod ziemią musi współistnieć z odpowiednim miejscem rozwoju larw. [64]
Centrolenidae i opieka na liściach
Hyalinobatrachium valerioi zasiedla lasy deszczowe od Kostaryki po pacyficzne wybrzeże Ekwadoru. Samice składają jaja na spodniej stronie liści nad wolno płynącymi strumieniami, a samce pozostają przy złożach. W badaniu naturalnej populacji analizowano równocześnie nawoływanie, obecność przy jajach i sukces godowy. Wyniki wykazały związki między opieką oraz parametrami głosu a uzyskanymi kojarzeniami. Pozwala to rozpatrywać opiekę rodzicielską również w kontekście wyboru partnera, choć samo stwierdzenie korelacji nie rozstrzyga o przyczynach. Dla porównania siedlisk kluczowe są tutaj zarówno rośliny dostarczające miejsca składania jaj, jak i znajdujący się pod nimi ciek. [65]
Leptodactylidae i karmienie kijanek jajami
Karaibski Leptodactylus fallax buduje lądowe gniazda pianowe w osłoniętych zagłębieniach lub norach. Szczegółowe badanie z 2004 roku dotyczyło zwierząt pochodzących z Montserratu, rozmnażanych w kontrolowanych warunkach. Samice pozostawały przy gniazdach i wielokrotnie dostarczały niezapłodnione jaja, zjadane przez rozwijające się kijanki; samce również broniły miejsca rozrodu. W obserwowanych gniazdach właśnie jaja pokarmowe stanowiły źródło odżywiania larw. Przykład ten pozwala odróżnić rozwój larwy w chronionym gnieździe od rozwoju bezpośredniego: obecność kijanki nie wymaga zawsze jej swobodnego pływania w otwartym zbiorniku. Szczegóły zachowania pochodzą z obserwacji hodowlanych, co wyznacza zakres tego opisu. [66]
Ambystomatidae i oczekiwanie na zalanie gniazda
Ambystoma opacum reprezentuje lądowy wariant życia dorosłych w rodzinie Ambystomatidae. W Illinois występuje w lasach i na terenach zalewowych; dorosłe często przebywają pod ziemią lub pod naturalnymi osłonami. Jesienny rozród odbywa się w suchych nieckach zbiorników lub przy ich obrzeżach. Samica składa jaja na lądzie i osłania je ciałem, natomiast wykluwanie następuje po przykryciu złoża wodą. Larwy rozwijają się już w środowisku wodnym. Powodzenie rozrodu zależy zatem od następstwa warunków: odpowiedniego miejsca złożenia jaj, późniejszego zalania i utrzymania wody przez okres rozwoju larw. Jesienna fenologia dotyczy przywołanego opisu regionalnego. [67] [68]
Cryptobranchidae i czynna opieka w wodzie
Andrias japonicus jest związany z ciekami Japonii przez cały cykl życia. Duże samce zajmują kryjówki przy brzegach, wykorzystywane jako miejsca rozrodu i gniazda. Okada i współautorzy nagrywali dwa opiekujące się jajami samce: jednego w gnieździe naturalnym, drugiego w sztucznym, umieszczonym w cieku. Obserwowali wachlowanie ogonem, poruszanie złożem oraz zjadanie wybranych białawych jaj, uznanych za martwe lub porażone organizmami pleśniowymi. Wachlowanie dostarczało natlenionej wody, a usuwanie takich jaj autorzy interpretowali jako zachowanie higieniczne. Mała liczba obserwowanych samców pozwala opisać mechanizmy opieki, lecz nie wyznacza ich częstości we wszystkich populacjach rodziny. [69]
Hynobiidae i zmienność przebiegu rozwoju
Hynobius retardatus z Hokkaido zwykle przechodzi od wodnej larwy do lądowego dorosłego. W latach 2020–2021 znaleziono jednak w leśnym stawie trzy samce zachowujące skrzela zewnętrzne i rozwiniętą płetwę ogonową. Eksperyment sztucznego zapłodnienia z wykorzystaniem samic po przeobrażeniu potwierdził zdolność tych samców do rozrodu. Badanie dokumentuje więc paedomorfozę również u tego przedstawiciela Hynobiidae. Nie określa jej częstości w całym zasięgu ani nie wykazuje, że jest zwykłą strategią wszystkich populacji. To istotne metodologicznie: do potwierdzenia dojrzałości wykorzystano funkcję rozrodczą, a nie samo podobieństwo wielkości do dorosłych zwierząt po metamorfozie. [70]
Typhlonectidae i wodny cykl żyworodnego płaza
Typhlonectes natans jest wodnym przedstawicielem beznogich z północno-zachodniej części Ameryki Południowej. Gatunek rodzi żywe młode; rozwój zarodków przebiega w organizmie samicy. Opisy anatomiczne wskazują na udział wydzielin ściany jajowodu w odżywianiu rozwijającego się potomstwa, a badania inwestycji matczynej analizują tę strategię na podstawie danych rozrodczych. Nie występuje tutaj zewnętrzne złoże jaj wymagające pilnowania przy brzegu. Porównanie z lądowymi beznogimi pokazuje, że sama żyworodność nie określa, czy dorosły jest związany z wodą, czy z glebą. [71] [72]
Dermophiidae i zróżnicowanie na jednej wyspie
W pracy z 2014 roku nazwą Schistometopum thomense obejmowano szeroko beznogie z São Tomé, opisywane jako płazy żyjące w glebie i rodzące żywe młode, niezależne rozrodczo od otwartych zbiorników. Analiza 138 osobników z 24 lokalizacji ujawniła silną strukturę geograficzną populacji. [73] W 2021 roku O’Connell i współautorzy połączyli dane mitochondrialne, markery genomowe i cechy fenotypowe. Ich wyniki wskazywały na odrębność dwóch linii oraz wtórny kontakt i mieszanie się w środkowej części wyspy; autorzy przywrócili Schistometopum ephele jako odrębny gatunek. Przykład ten pokazuje, dlaczego przy korzystaniu ze starszych publikacji trzeba sprawdzać zakres nazwy: dane odnoszone dawniej do jednego szeroko ujętego gatunku nie opisują automatycznie wyłącznie współcześnie rozumianego S. thomense. [74]
| Rząd i rodzina | Gatunek | Udokumentowany element cyklu |
|---|---|---|
| Anura · Alytidae | Alytes obstetricans | Jaja noszone na lądzie przez samca; kijanki wodne. [60] [61] |
| Anura · Rhacophoridae | Zhangixalus arboreus | Gniazdo pianowe na roślinności; dalszy rozwój larw w wodzie. [62] [63] |
| Anura · Nasikabatrachidae | Nasikabatrachus sahyadrensis | Jaja i przyczepiające się do podłoża kijanki w środowisku strumienia. [64] |
| Anura · Centrolenidae | Hyalinobatrachium valerioi | Jaja na spodniej stronie liści nad ciekiem; opieka samca. [65] |
| Anura · Leptodactylidae | Leptodactylus fallax | Kijanki w lądowym gnieździe; pokarmowe jaja dostarczane przez matkę. [66] |
| Caudata · Ambystomatidae | Ambystoma opacum | Lądowe jaja w miejscu później zalewanym; larwy wodne. [67] [68] |
| Caudata · Cryptobranchidae | Andrias japonicus | Wodne gniazdo; samiec porusza wodę i pielęgnuje złoże. [69] |
| Caudata · Hynobiidae | Hynobius retardatus | Zwykle wodna larwa i lądowy dorosły; potwierdzona także paedomorfoza. [70] |
| Gymnophiona · Typhlonectidae | Typhlonectes natans | Żyworodność; wodny tryb życia. [71] [72] |
| Gymnophiona · Dermophiidae | Schistometopum thomense (ujęcie z 2014 r.) | Żyworodność; rozród niezależny od otwartego zbiornika. Historyczny zakres nazwy poprzedza rewizję z 2021 r. [73] [74] |
Przykłady dotyczą wskazanych gatunków i opisanych badań. Nie są diagnozami wszystkich członków rodzin ani pełnym zestawieniem ich strategii rozrodczych.
Cztery kolejne profile rozszerzają ten przegląd do dwudziestu rodzin. Pokazują, jak wiele informacji kryje się za pozornie podobnym wyglądem płazów: o sposobie zdobywania pokarmu, współżyciu z innymi zwierzętami i kolejnych etapach rozwoju. Warto czytać je łącznie z wcześniejszymi przykładami, porównując zarówno zachowania zwierząt, jak i rodzaj dowodów, na których oparto opis.
Microhylidae i różnorodność rozwiązań życiowych
Microhylidae mają rozległy zasięg: występują w obu Amerykach, Afryce na południe od Sahary oraz w części Azji i Australii. Tak szeroki rozkład geograficzny pomaga umieścić w jednym kontekście odległe przykłady omówione poniżej. Przynależność do rodziny łączy je systematycznie, ale nie zastępuje opisu biologii poszczególnych gatunków. [75]
Zachodnioafrykański Phrynomantis microps korzysta z podziemnych gniazd mrówek Paltothyreus tarsatus. Mechanizm tolerowania płaza zbadano, nanosząc jego wydzielinę skórną na zwierzęta zazwyczaj atakowane przez mrówki, między innymi termity. Wydzielina ograniczała agresywne reakcje, a aktywność wykazywały także wyizolowane i następnie syntetyzowane peptydy. Jest to konkretny przykład chemicznej regulacji kontaktu między gatunkami. Ochrona nie była jednak bezwarunkowa: bezpośrednie nadepnięcie na mrówkę mogło wywołać atak. Autorzy rozważali działanie substancji uspokajających, dlatego określenie „kamuflaż chemiczny” nie powinno sugerować udowodnionego naśladowania zapachu członków kolonii. [76]
U brazylijskiego Dermatonotus muelleri wydzielina skóry uczestniczy w innym zadaniu: utrzymaniu kontaktu partnerów podczas rozrodu. Samiec przylega do grzbietu samicy; badania histologiczne wykazały wyspecjalizowane gruczoły adhezyjne w przedniej części jego brzusznej powierzchni ciała. Obserwacje zachowania połączono z analizą budowy skóry i składu wydzieliny. Autorzy zaproponowali, że taki mechanizm pomaga kompensować trudności objęcia partnerki wynikające z krótkich kończyn i zaokrąglonego tułowia. Związek z przystosowaniem do życia pod ziemią jest interpretacją ewolucyjną, natomiast obecność gruczołów i przyleganie samca udokumentowano bezpośrednio. [77]
Inną formę inwestycji w rozród przedstawiają obserwacje Sphenophryne cornuta z Papui-Nowej Gwinei: samce przenosiły na grzbiecie wyklute młode żaby. Bickford opisał transport młodych u dwóch gatunków Microhylidae, a potomstwo schodziło z rodzica w różnych miejscach. Rozproszenie mogłoby ograniczać konkurencję między rodzeństwem lub wspólne narażenie na drapieżniki, ale w tej publikacji były to proponowane wyjaśnienia korzyści zachowania. Samo stwierdzenie transportu nie rozstrzyga, która z tych korzyści miała największe znaczenie dla jego ewolucji. [78]
Pipidae i chwytanie pokarmu pod wodą
Naturalny zasięg Pipidae obejmuje Afrykę na południe od Sahary oraz Amerykę Południową na wschód od Andów i przylegającą część Panamy. Taki opis odnosi się do rozmieszczenia rodziny; nie oznacza, że każdy należący do niej gatunek występuje po obu stronach Atlantyku. [79]
Wodny sposób życia Pipidae wiąże się z utratą języka i zachowaniem narządów linii bocznej, które odbierają ruch wody. Zdobywanie pokarmu wymaga więc rozwiązań odmiennych od wyrzucania języka ku lądowej ofierze. [80] Kijanki Hymenochirus boettgeri pozwalają zobaczyć takie rozwiązanie już przed przeobrażeniem. Szybkie filmowanie pokazało wzrokowe śledzenie pojedynczych organizmów pokarmowych, pościg, a następnie ich zassanie do otworu gębowego. Wysuwanie okolicy ust uczestniczy w tym ataku. Larwa jest zatem aktywnym łowcą, a jej sposób odżywiania można analizować poprzez kolejność ruchów i przepływ wody. [81]
U Hymenochirus boettgeri i Pseudhymenochirus merlini po przeobrażeniu ssanie potwierdzono, zestawiając szybkie nagrania z bezpośrednimi pomiarami ciśnienia w jamie ustno-gardzielowej. Podczas otwierania pyska ciśnienie spadało poniżej wartości otaczającej wody, a ofiara przemieszczała się ku wnętrzu jamy gębowej. W analizowanych atakach oba gatunki chwytały pokarm wyłącznie przez ssanie, bez zagarniania przednimi kończynami. Połączenie pomiaru ciśnienia i obserwacji ruchu ofiary pozwoliło odróżnić rzeczywiste zasysanie od samego podpływania drapieżnika z otwartym pyskiem. [80]
Specjalizacja obejmuje również budowę larwalnej głowy. Lukas i współautorzy opisali kolejne etapy powstawania chrzęstnego szkieletu głowy Hymenochirus boettgeri, od skupień mezenchymy do stadium poprzedzającego przeobrażenie. Wskazali redukcje niektórych elementów oraz mozaikowy rozwój łuków żuchwowego i gnykowego. Zmiany interpretowali w związku z miniaturyzacją i ssącym sposobem odżywiania. Takie porównanie pokazuje, dlaczego podobieństwa między larwami należy oceniać na określonych etapach rozwoju: końcowy kształt narządu nie ujawnia całej drogi, która doprowadziła do jego powstania. [82]
Ceratophryidae i mechanika polowania
Ceratophryidae to południowoamerykańska rodzina obejmująca rodzaje Ceratophrys, Chacophrys i Lepidobatrachus. Ceratophrys cranwelli występuje między innymi w półsuchych nizinach regionu Chaco. Porównania rozwoju tej grupy wskazują na szybki rozwój larwalny, przy jednoczesnych różnicach między rodzajami w tempie wzrostu po przeobrażeniu i osiąganiu dojrzałości płciowej. To ważne rozróżnienie: krótki etap larwalny nie określa automatycznie długości całego cyklu życiowego. Charakterystyczne przekształcenia aparatu pokarmowego są tu przedmiotem zarówno badań rozwojowych, jak i doświadczeń biomechanicznych. [83]
U Ceratophrys cranwelli istotnym narzędziem chwytania i przytrzymywania ofiary są mocne szczęki. Lappin i współautorzy wielokrotnie mierzyli siłę ugryzienia ośmiu rosnących osobników po przeobrażeniu. Zarejestrowany zakres wynosił 2,7–32,9 N; dotyczył tej próby i zastosowanej procedury, a nie granic możliwości całego gatunku. Siła zwiększała się wraz z rozmiarami szybciej, niż przewidywał model wzrostu zachowującego stałe proporcje ciała. Szerokość głowy okazała się szczególnie użytecznym predyktorem wyniku. Pokazuje to, że zmiana rozmiaru w rozwoju może pociągać za sobą zmianę możliwości mechanicznych, a nie tylko powiększenie tego samego aparatu. [84]
Chwytanie językiem stanowi odrębny etap działania tego aparatu. Kleinteich i Gorb badali kontakt języka ze szkłem u dwóch młodych Ceratophrys cranwelli oraz dwóch dorosłych mieszańców Ceratophrys cranwelli × Ceratophrys cornuta. Mierzyli siłę adhezji i powierzchnię kontaktu; w części prób język wytrzymywał obciążenie przekraczające ciężar zwierzęcia. Większy udział powierzchni pokrytej pozostałościami śluzu nie oznaczał silniejszego przywierania. Wynik wskazuje na znaczenie także właściwości powierzchni i materiału języka. Szklana płytka pozwalała kontrolować pomiar, lecz nie odtwarzała budowy wszystkich naturalnych ofiar. Eksperyment wyjaśnia więc mechanizm kontaktu w określonych warunkach, bez ustanawiania uniwersalnej wartości siły chwytu w przyrodzie. [85]
Rhinatrematidae i słabo poznany rozwój płazów beznogich
Rhinatrematidae należą do południowoamerykańskich płazów beznogich. Charakterystycznym elementem ich budowy jest krótki ogon za otworem kloakalnym. Informacje o rodzinie wciąż opierają się na nierównomiernym rozpoznaniu poszczególnych gatunków: szczegółowy opis anatomii może znacznie wyprzedzać poznanie ich ekologii. [86]
Epicrionops bicolor ma wodne larwy. Müller przeanalizował materiał z Peru, opisując między innymi rozwój pierścieniowania ciała, ubarwienia, linii bocznej i skrzeli. Niewielkie skrzela zewnętrzne utrzymują się u tego gatunku przez okres larwalny aż do przeobrażenia. Porównanie osobników zebranych we wrześniu 1991 i czerwcu 1993 roku pozwoliło zaproponować około roczny czas rozwoju larwalnego. Autor dysponował jednak próbami z dwóch terminów, a nie pełnym szeregiem całorocznych obserwacji. Ten czas należy więc odczytywać jako wniosek z układu wielkości i stadiów rozwojowych w badanym materiale, nie jako bezpośredni pomiar czasu życia każdej larwy ani regułę dotyczącą wszystkich Rhinatrematidae. [87]
O skali luk w rozpoznaniu świadczy Amazops amazops, opisany w 2021 roku na podstawie pojedynczej samicy zebranej w Ekwadorze w 1990 roku. Tomografia komputerowa i porównania morfologiczne ujawniły między innymi udział kości łuskowej w kostnym obrzeżu oczodołu, odróżniający nowy rodzaj od pozostałych przedstawicieli rodziny. Okaz znaleziono pod kamieniami na mokrej, błotnistej drodze gruntowej. To użyteczny zapis miejsca znalezienia, lecz sam nie określa preferencji siedliskowych, pełnego zasięgu ani liczebności gatunku. [86]
| Rodzina | Przykład | Udokumentowane zjawisko | Źródło |
|---|---|---|---|
| Microhylidae | Dermatonotus muelleri | Przyleganie samca do samicy i brzuszne gruczoły adhezyjne. | [77] |
| Pipidae | Hymenochirus boettgeri | Wzrokowe śledzenie ofiary i ssący atak kijanki. | [81] |
| Ceratophryidae | Ceratophrys cranwelli | Pomiary siły ugryzienia w trakcie wzrostu ośmiu osobników. | [84] |
| Rhinatrematidae | Epicrionops bicolor | Opis wodnych larw i wnioskowanie o tempie ich rozwoju. | [87] |
Przykłady dotyczą wskazanych gatunków i badań. Tabela uzupełnia przegląd dwudziestu wybranych rodzin; nie jest pełnym katalogiem rodzin płazów.
Rozdział 9Rola skóry w oddychaniu i gospodarce wodnej
Skóra jako powierzchnia wymiany
Skóra płaza uczestniczy w wymianie gazów, wody i jonów. Jej gruczoły wytwarzają między innymi śluz, a stopień przepuszczalności zależy od gatunku i stadium życia. Związek z wilgocią nie sprowadza się więc do obecności stawu: liczą się także warunki w ściółce, glebie, kryjówce i na powierzchni roślin. Utrata osłony roślinnej może zmienić mikroklimat, nawet gdy zbiornik wodny nadal istnieje. [88]
U wielu lądowych płazów bezogonowych ważnym miejscem pobierania wody jest silnie ukrwiona okolica brzuszna w pobliżu miednicy. Zwierzę może zwiększać kontakt tej powierzchni z wilgotnym podłożem. Ten sam związek ze środowiskiem ma znaczenie dla narażenia na substancje rozpuszczone w wodzie i obecne w glebie. Nie oznacza to jednak identycznej wrażliwości każdego gatunku na wszystkie zanieczyszczenia; ocena wymaga uwzględnienia związku chemicznego, dawki i drogi kontaktu. [88]
Nie ma jednego sposobu oddychania
Znaczenie skóry, płuc, skrzeli i błon śluzowych zmienia się w trakcie życia oraz między grupami. Dobrym kontrprzykładem wobec szkolnego uproszczenia „dorosły płaz oddycha płucami” są Plethodontidae. Dorosłe salamandry tej rodziny nie mają płuc; wymieniają gazy głównie przez skórę i śluzówkę jamy gębowo-gardzielowej. Badania rozwojowe wykazały u zbadanych przedstawicieli powstawanie przejściowych zawiązków płuc, które następnie zanikają. [37]
Ektotermia i wybór mikroklimatu
Płazy są ektotermiczne: znaczną część ciepła uzyskują ze środowiska. Określenie „zimnokrwiste” jest mniej precyzyjne, ponieważ ich ciało nie musi być zawsze zimne. Zwierzęta mogą modyfikować temperaturę zachowaniem, na przykład wybierając osłonięte miejsca. Ektotermia nie oznacza całkowitego braku regulacji, lecz inny bilans źródeł ciepła niż u ptaków i ssaków. [89]
Dlatego pora obserwacji ma znaczenie. Chłodny, suchy dzień, rozgrzana odsłonięta gleba i wilgotny wieczór tworzą odmienne warunki aktywności. Wyjaśnianie nieobecności płazów wyłącznie „brakiem odpowiedniej temperatury” jest jednak niewystarczające: potrzebne są również kryjówki, pokarm i odpowiednie miejsca rozrodu. To zależności ekologiczne, które należy sprawdzać dla konkretnego gatunku i miejsca. [88]
Rozdział 10Rozród i rozwój płazów
Klasyczny schemat rozwoju żaby obejmuje jajo, kijankę, przeobrażenie i postać młodocianą podobną do dorosłej. Jest on dobrym punktem wyjścia, ale nie opisuje całej gromady. Płazy wielokrotnie wykształcały rozród z jajami na lądzie, rozwój bezpośredni, rodzenie żywych młodych oraz zachowywanie cech larwalnych po osiągnięciu dojrzałości. Nie są to kolejne stopnie „doskonałości”, lecz różne rozwiązania ewolucyjne. [90]
Zapłodnienie i miejsce rozwoju to osobne cechy
U większości płazów bezogonowych zapłodnienie jest zewnętrzne. Często towarzyszy mu ampleksus, czyli uchwyt godowy, w którym samiec obejmuje samicę. Nie jest on odpowiednikiem ciąży ani dowodem zapłodnienia wewnętrznego. U części gatunków rozród przebiega inaczej, dlatego opis wymaga oddzielenia sposobu połączenia gamet od miejsca, w którym rozwija się zarodek. [91]
U wielu ogoniastych samiec przekazuje plemniki w spermatoforze pobieranym przez samicę do kloaki; zapłodnienie jest wewnętrzne. Nie dotyczy to wszystkich rodzin: zewnętrzne zapłodnienie występuje między innymi u Cryptobranchidae i Hynobiidae. Badania Ambystoma pokazują ponadto, że czas zapłodnienia i początek rozwoju zarodka nie muszą pokrywać się z momentem złożenia jaj. [92]
| Strategia | Co się dzieje | Przykład i zastrzeżenie |
|---|---|---|
| Cykl dwufazowy | Larwa wodna przechodzi metamorfozę | Typowy dla wielu żab i traszek, lecz nie wszystkich płazów. [90] |
| Rozwój bezpośredni | Z jaja wykluwa się młody osobnik podobny do dorosłego | Eleutherodactylus coqui; brak wolno pływającej kijanki. [28] |
| Paedomorfoza | Dojrzałość przy zachowaniu części cech larwalnych | Ambystoma mexicanum; dorosły aksolotl zachowuje skrzela. [36] |
| Odżywianie skórą matki | Młode pobierają zmodyfikowaną zewnętrzną warstwę skóry | Boulengerula taitana; szczególny przykład opieki, nie reguła dla wszystkich beznogich. [93] |
Co naprawdę zmienia metamorfoza
Przeobrażenie obejmuje przebudowę wielu narządów, a nie tylko pojawienie się nóg i utratę ogona. Badania na Xenopus tropicalis pokazują znaczenie receptorów hormonów tarczycy dla koordynacji zmian w tkankach. Zakłócenie działania obu typów receptorów uniemożliwiało prawidłowe zakończenie metamorfozy. Wynik wskazuje, że osiągnięcie końcowego stadium zależy od skoordynowanej odpowiedzi różnych tkanek. [94]
Zakres przebudowy przewodu pokarmowego zależy także od diety larw. U badanych Lepidobatrachus wiele cech układu pokarmowego kojarzonych z dorosłymi rozwijało się już w stadium drapieżnej kijanki, bez typowej gwałtownej przebudowy jelita podczas przeobrażenia. Samo przeciwstawienie „larwa roślinożerna — dorosły drapieżnik” nie oddaje zatem różnorodności rozwoju. Przykład pokazuje, dlaczego wyniki trzeba wiązać z konkretną grupą i jej biologią. [95]
Stadium rozwojowe jest dokładniejsze niż sam wiek
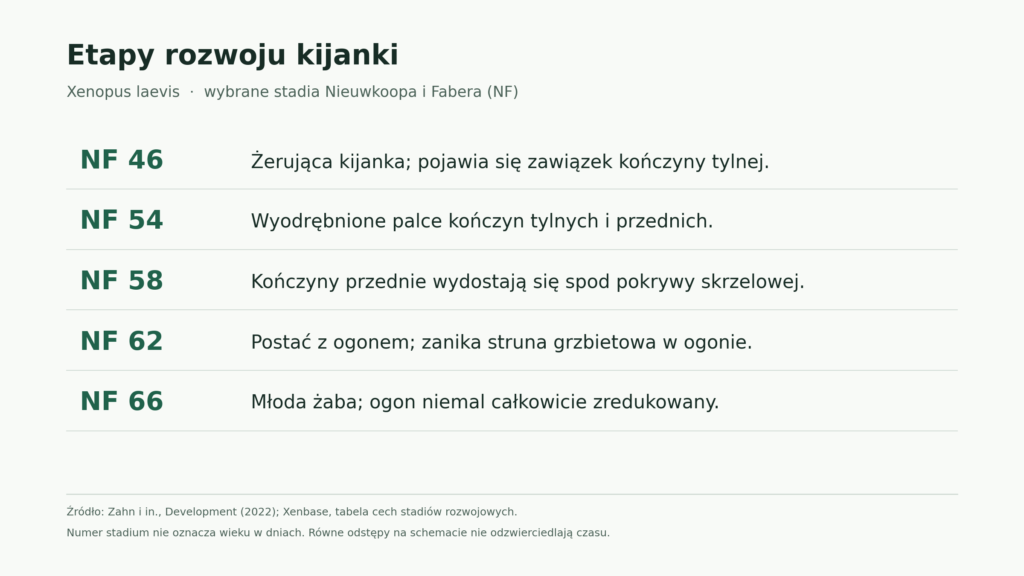
W badaniach Xenopus laevis rozwój opisuje się stadiami Nieuwkoopa i Fabera, oznaczanymi skrótem NF. Uporządkowano je według budowy organizmu. Dwa zwierzęta w tym samym wieku kalendarzowym nie muszą znajdować się w identycznym stadium. Takie rozróżnienie pozwala porównywać materiał badawczy według stopnia rozwoju, a nie wyłącznie liczby dni od zapłodnienia. [96]
Rodzice mogą inwestować na wiele sposobów
Liczba jaj nie mówi sama w sobie, jak duży jest wysiłek rodzicielski. Ochrona miejsca składania jaj, pilnowanie potomstwa, transport larw i karmienie młodych zmieniają bilans kosztów oraz przeżywalności. Zestawianie samych liczb jaj u gatunków o zupełnie odmiennych strategiach może więc wprowadzać w błąd. Rozwinięta opieka występuje w różnych liniach płazów, a nie wyłącznie w jednym rzędzie. [91]
Szczególnie niezwykły przykład opisano u afrykańskiego płaza beznogiego Boulengerula taitana, w pracy z 2006 r. nazwanego B. taitanus. Młode używały wyspecjalizowanych zębów do pobierania zewnętrznej warstwy zmienionej skóry matki. To udokumentowany mechanizm dostarczania składników pokarmowych, odmienny od zwykłego przypadkowego kontaktu z rodzicem. Nie należy mylić go z później opisanym pobieraniem wydzieliny odżywczej u Siphonops annulatus. [93] [97]
Rozdział 11Komunikacja i świat zmysłów płazów
Głos rozrodczy trzeba rozpatrywać razem z jego odbiorcą. W klasycznym doświadczeniu dotyczącym rzekotki Hyla versicolor, zgodnie z nazwą użytą w publikacji, samice badane w dwóch temperaturach wybierały syntetyczne głosy o rytmie podobnym do głosów samców mających zbliżoną do nich temperaturę. Zmianie podlegały więc zarówno parametry nadawanego sygnału, jak i preferencje słuchaczek. To przykład dopasowania komunikacji do zmiennocieplności: samica reaguje na określony wzorzec w konkretnych warunkach termicznych. Przy porównywaniu nagrań trzeba zatem odróżniać różnice między gatunkami od zmian związanych z warunkami wykonania głosu; temperatura jest częścią opisu biologicznego nagrania. [98]
Płuca jako część układu słuchowego
Słuchanie chóru wymaga wyodrębnienia istotnego sygnału z dźwięków otoczenia. U rzekotki Hyla cinerea, pod nazwą zastosowaną w badaniu, zespół Lee wykazał udział płuc w tym procesie. W pomiarach laserowych obejmujących 21 samic porównano drgania błony bębenkowej przy płucach wypełnionych powietrzem i po ich opróżnieniu. Wypełnione płuca ograniczały odpowiedź błony w paśmie 1400–2200 Hz, położonym między dwoma głównymi pasmami głosu własnego gatunku. W tym zakresie występowała także energia głosów innych żab współtworzących chóry. Mechanizm działał jak selektywny filtr: osłabiał część tła akustycznego, zachowując odpowiedź na ważne składowe własnego głosu. Model przetwarzania słuchowego wskazał, że może to zmniejszać maskowanie sygnału. Badanie łączy więc budowę ciała z warunkami komunikacji w wielogatunkowym zespole. Bezpośrednim wynikiem były jednak pomiary mechaniki błony bębenkowej; korzyści dla dalszego przetwarzania bodźców oceniano także za pomocą modelu fizjologicznego. [99]
Gesty widoczne dla rywala
U Staurois parvus sygnałem wzrokowym jest unoszenie i prostowanie tylnej kończyny z eksponowaniem stopy, nazywane foot flagging. Jego rolę badano w terenie za pomocą modelu żaby z ruchomą nogą oraz odtwarzanych głosów. Rozdzielenie bodźców na wzrokowe, dźwiękowe i łączone pozwalało sprawdzić odpowiedź zwierząt na każdy składnik. U badanego gatunku przeważającą reakcją na bodźce było właśnie pokazywanie stopy. Eksperyment wspiera interpretację tego gestu jako elementu konfliktu między samcami. Pokazuje również, dlaczego badanie komunikacji wymaga obserwacji odbiorcy: sam efektowny ruch nie wyjaśnia, jaką informację przekazuje i kiedy wywołuje reakcję. [100]
Drgania przenoszone przez rośliny
Samce Agalychnis callidryas podczas konfliktów wprawiają ciało w drgania, które przenoszą się przez roślinę. Ruch jest widoczny, lecz jego działanie nie kończy się na obrazie. Caldwell i współautorzy użyli modelu żaby oraz urządzenia wzbudzającego drgania, aby oddzielić składnik wizualny od mechanicznego. W warunkach doświadczenia drgania rośliny były konieczne i wystarczające do wywołania analogicznej odpowiedzi wibracyjnej rywala. To komunikacja poprzez wspólne podłoże: odbiorca otrzymuje mechaniczny bodziec przenoszony przez łodygę lub gałąź. Przy interpretacji takiego zachowania znaczenie ma więc połączenie zwierząt z tą samą rośliną, a nie tylko to, czy mogą się zobaczyć. [101]
Sygnały chemiczne samic
Komunikację chemiczną dobrze ilustruje imorin, feromon samic Cynops pyrrhogaster. Nakada i współautorzy zidentyfikowali go jako krótki peptyd zbudowany z trzech aminokwasów: alaniny, kwasu glutaminowego i fenyloalaniny. Substancję wydzielają komórki nabłonka początkowego odcinka jajowodu samic w stanie aktywności rozrodczej; wykryto jej działanie w wodzie, w której przebywały takie samice. W testach przyciągała samce przygotowane do rozrodu, natomiast odpowiedź zależała od płci i stanu rozrodczego odbiorcy. Wykazano też pobudzenie komórek nabłonka narządu lemieszowo-nosowego. Przykład ten ujawnia dwa poziomy specjalizacji: wytwarzanie konkretnej cząsteczki przez nadawcę oraz zależną od stanu organizmu reakcję odbiorcy. [102]

Widzenie barw przy bardzo słabym świetle
Możliwości wzrokowe płazów zależą również od zadania, które wykonuje zwierzę. Yovanovich i współautorzy sprawdzali rozróżnianie niebieskiego i zielonego światła w doświadczeniach dotyczących wyboru partnera, chwytania pokarmu oraz fototaksji, czyli kierowania ruchu względem źródła światła. Żaby trawne Rana temporaria skaczące ku oświetlonym okienkom odróżniały te barwy nawet przy natężeniach bliskich granicy zdolności widzenia, gdzie odbiór światła opiera się na pręcikach siatkówki. Pozwalały na to dwa typy pręcików różniące się czułością na długość fali. U ropuch badanych w zadaniach związanych z pokarmem i partnerem nie uzyskano analogicznego dowodu rozróżniania barw wyłącznie dzięki pręcikom. Wynik mówi zatem o określonej zdolności sensorycznej ujawnianej w konkretnym zachowaniu. Trzeba też oddzielić rozpoznawanie barwy od reagowania na jasność: w doświadczeniu dobór bodźców pozwalał kontrolować tę alternatywną wskazówkę. Nie oznacza to widzenia bez światła, ponieważ działanie receptorów nadal wymaga docierających do oka fotonów. [103]
Odbieranie zagrożenia jeszcze w jaju
Odbiór informacji zaczyna się przed opuszczeniem osłonek jajowych. Zarodki Agalychnis callidryas potrafią wcześniej się wykluć w odpowiedzi na drgania wywołane atakiem węża na złoże jaj. Warkentin odtwarzała zarejestrowane drgania ataków i deszczu, a następnie zmieniała ich strukturę czasową. Zgęszczenie drgań deszczu w dłuższe grupy zwiększało wykluwanie; podzielenie drgań ataku na krótsze, ciaśniej rozmieszczone fragmenty ograniczało tę reakcję. Same bodźce mechaniczne wystarczały, bez obrazu drapieżnika i jego substancji zapachowych. Zarodki korzystały więc z przebiegu zdarzenia w czasie, a nie jedynie z obecności silnego poruszenia jaj. Zachowanie drapieżnika dostarcza tu mechanicznej wskazówki o zagrożeniu. Odbieranie takiej informacji należy odróżnić od komunikacji między osobnikami: biologiczne znaczenie bodźca zależy od jego pochodzenia oraz sytuacji, w której działa. Doświadczenia nad zmysłami obejmują zatem także rozwijający się zarodek oraz bodźce pochodzące od innych gatunków i zjawisk pogodowych. [104]
Rozdział 12Odżywianie i mechanizmy obronne płazów
Dieta zmienia się wraz z rozwojem
Dorosłe płazy kojarzymy z chwytaniem owadów, lecz zakres wykorzystywanego pokarmu zależy od rozmiaru, środowiska i gatunku. Wśród larw bezogonowych spotyka się formy zjadające mieszaninę glonów, detrytusu i materiału zwierzęcego, a także wyspecjalizowane drapieżniki. Badania larw Ceratophryidae pokazują, jak różne mogą być aparat pokarmowy i przewód pokarmowy nawet w obrębie jednej rodziny. Określenie wszystkich kijanek jako „roślinożernych” byłoby nieprawidłowe. [95]
Obrona chemiczna zależy także od środowiska
U części drzewołazów obrona chemiczna jest związana z pokarmem. Badania Oophaga pumilio i współwystępujących stawonogów wskazują mechowce, czyli grupę roztoczy, jako istotne źródło alkaloidów magazynowanych następnie przez żaby. To przykład bezpośredniego związku między dietą a właściwościami wydzielin skórnych. Nie można jednak przenosić konkretnego profilu toksyn na wszystkie płazy ani nawet na wszystkie populacje jednego gatunku. [105]
Właśnie dlatego określenia „trujący” nie powinno się utożsamiać z „aktywnie jadowity”. W opisywanym przypadku znaczenie mają związki obecne w skórze i gruczołach, a nie aparat wstrzykujący jad. Barwa zwierzęcia również nie służy do oceny bezpieczeństwa dotykania: intensywne ubarwienie może pełnić funkcję ostrzegawczą, ale sam kolor nie jest testem toksyczności. Płazy obserwuje się bez brania do ręki. [105]
Przezroczystość jako element kamuflażu
U żaby szklanej Hyalinobatrachium fleischmanni zbadano niezwykły sposób ograniczania widoczności czerwonych krwinek. W czasie spoczynku duża część tych komórek była gromadzona w wątrobie, co zwiększało przezroczystość innych tkanek. Badanie łączy obserwacje zachowania z obrazowaniem fizjologicznym i pokazuje, że kamuflaż może zależeć od procesów wewnątrz ciała, a nie tylko od barwników skóry. [106]
Nie oznacza to, że całe zwierzę staje się niewidzialne ani że mechanizm występuje u wszystkich żab. Zewnętrzny wygląd płazów warto rozpatrywać jako wynik wielu funkcji: ukrywania się, sygnalizacji i ograniczeń fizjologicznych. Efektowna adaptacja jednego gatunku jest dobrym przykładem biologicznym, ale nie zastępuje opisu całej grupy. [106]
Rozdział 13Siedliska i życie w zmiennych warunkach
Płazy występują na wszystkich kontynentach poza Antarktydą. Zasiedlają nie tylko mokradła i tropikalne lasy, ale również góry, obszary sezonowo suche, gleby, jaskinie oraz cieki wodne. Warunki dostępne w niewielkiej kryjówce mogą być ważniejsze niż ogólny opis regionu jako „suchego” albo „chłodnego”. Rozmieszczenie płazów odzwierciedla więc zarówno klimat, jak i lokalną dostępność wilgoci i schronienia. [107]
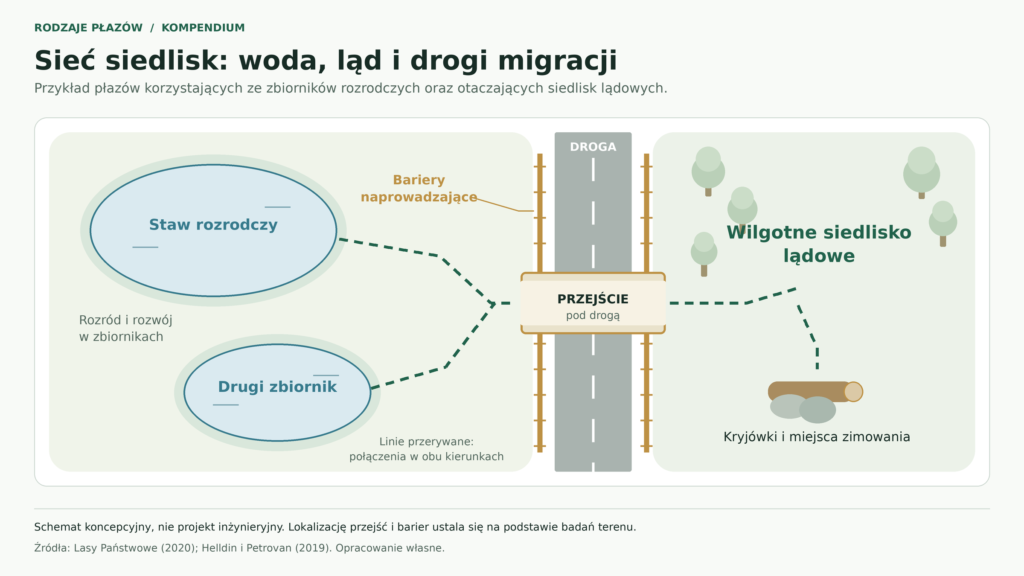
| Element środowiska | Znaczenie | Dlaczego sam wygląd może mylić |
|---|---|---|
| Woda rozrodcza | Jaja i larwy | Trwałość wody nie gwarantuje przydatności. |
| Ląd wokół zbiornika | Żerowanie i ukrycie | Zbiornik potrzebuje odpowiedniego otoczenia. |
| Wilgotne mikrosiedliska | Bilans wodny | Lokalna wilgotność ma znaczenie. |
| Połączenia stanowisk | Przemieszczanie | Jedno stanowisko jest częścią sieci. |
Wymagania należy określać dla lokalnych gatunków. [108]
Woda słonawa jest wyjątkiem wymagającym przystosowań
Większość płazów jest związana ze środowiskiem słodkowodnym lub lądowym, lecz tolerancja zasolenia nie jest u wszystkich taka sama. Fejervarya cancrivora żyje także w nadmorskich siedliskach słonawych. Badania fizjologiczne wykazały u tego gatunku mechanizmy regulacji gospodarki jonowej i osmotycznej. Przykład ten nie uzasadnia określania płazów jako typowych zwierząt morskich; pokazuje, że nawet silne ograniczenie środowiskowe może mieć wyspecjalizowane wyjątki. [111]
Przetrwanie chłodu i suszy
U północnoamerykańskiej Rana sylvatica opisano tolerancję zamarzania części wody ustrojowej. Rozpoczęciu zamarzania towarzyszy mobilizacja glukozy z zapasów glikogenu; glukoza pełni funkcję ochronną. Pomiary metabolizmu podczas zamarzania i odmarzania wskazują, że taki proces ma koszt energetyczny. Nie jest to „wskrzeszanie martwej żaby” ani uniwersalna właściwość płazów. Zdolność przetrwania mrozu zależy od gatunku, populacji i warunków. [112]
Inny zestaw problemów pojawia się podczas suszy. U australijskiej żaby opisanej w badaniu jako Cyclorana platycephala analizowano długotrwałą estywację, czyli okres ograniczonej aktywności. Tworzenie ochronnego kokonu oraz wykorzystanie wody zgromadzonej w pęcherzu uczestniczyły w utrzymywaniu bilansu wodnego. Nawet tak przystosowane zwierzęta traciły masę podczas doświadczenia. Estywacja nie daje nieograniczonej odporności na wysychanie i nie eliminuje znaczenia dostępności wody. [113]
Z tych przykładów wynika praktyczna zasada interpretacji: „płazy potrzebują wilgoci” jest trafnym początkiem, ale nie kompletnym opisem ekologii. Trzeba zapytać, kiedy i gdzie dany gatunek jej potrzebuje, czy korzysta z wód otwartych, jak przetrzymuje okres niesprzyjający oraz czy może przemieścić się między odpowiednimi miejscami. Dopiero takie pytania prowadzą do sensownej oceny siedliska.
Rozdział 14Sezonowy rytm życia i strategie zimowania
Zimowanie można zrozumieć dopiero po oddzieleniu warunków zewnętrznych od tych, które wybiera zwierzę. W badaniu żab trawnych Rana temporaria z położeń górskich Ludwig i współautorzy nie znaleźli dowodów fizjologicznej ochrony przed zamarzaniem przy ekspozycji na temperatury około 0°C. Zwierzęta przenosiły się do niezamarzniętej wody, unikając powstawania lodu w organizmie. Jednocześnie osobniki z większych wysokości pozostawały aktywne przez okres zbliżony do obserwowanego niżej, korzystając z cieplejszych mikrosiedlisk, między innymi skał i terenów trawiastych. Wyniki pokazują, że surowość klimatu nie przekłada się wprost na kalendarz aktywności. Istotna jest dostępność miejsc, w których żaba może zmienić swoją sytuację termiczną. Dotyczy to badanych populacji górskich; nie wyznacza wspólnego terminu rozpoczęcia zimowania ani jednej strategii dla wszystkich populacji żaby trawnej. [114]
Temperatura i tlen działają wspólnie
W zimowisku wodnym cieplejsze miejsce nie zawsze jest korzystniejszym wyborem. Tattersall i Boutilier umieścili żaby trawne w laboratoryjnym gradiencie temperatur 0,8–8°C. Przy dobrym natlenieniu mediana wybieranej temperatury wynosiła 6,8°C, natomiast po ograniczeniu dostępności tlenu spadła do 1,9°C. Był to wybór miejsca w komorze doświadczalnej; wartości te opisują reakcję na określone warunki badania. Dodatkowe pomiary metabolizmu wskazywały, że przejście do chłodniejszej wody przy niedotlenieniu pozwalało silniej ograniczyć wydatki energetyczne i opóźniało zaburzenia związane z gromadzeniem mleczanu. Zmiennocieplność obejmuje zatem aktywną regulację zachowania: zwierzę może wybrać środowisko, w którym jego zapotrzebowanie na tlen lepiej odpowiada podaży. Przy ocenie zimowiska znaczenie ma zestaw warunków termicznych i tlenowych, a pojedynczy pomiar temperatury nie opisuje całego obciążenia fizjologicznego. [115]
Odporność na zamarzanie zmienia się sezonowo
Nawet u płaza zdolnego tolerować zamarzanie granica tej zdolności zależy od stanu fizjologicznego. Costanzo i współautorzy porównali Rana sylvatica z Alaski po wyjściu z zimowania z grupą aklimatyzowaną do warunków zimowych. Osobniki przygotowane do zimy mogły przeżyć zamarznięcie do co najmniej −16°C, podczas gdy dla grupy wiosennej dolna granica leżała między −2,5 a −5°C. W grupie wiosennej stwierdzano mniejsze zasoby glikogenu w wątrobie i niższe stężenia mocznika, a po zamarzaniu więcej lodu oraz oznak uszkodzenia komórek. Porównanie wymaga dokładnego opisu: grupy pochodziły z dwóch odrębnych populacji Alaski, a dane zimowe uzyskano w poprzednim doświadczeniu. Nie śledzono tych samych osobników przez cały rok. Wynik ilustruje zależność tolerancji od przygotowania organizmu i wskazuje, dlaczego pojedynczej temperatury granicznej nie należy przypisywać gatunkowi bez informacji o sezonie i procedurze badania. [116]
| Badany przypadek | Główna odpowiedź | Znaczenie biologiczne |
|---|---|---|
| Górskie populacje Rana temporaria | Przejście do niezamarzniętej wody | Unikanie zamarzania organizmu. [114] |
| Rana temporaria w gradiencie laboratoryjnym | Wybór chłodniejszej wody po ograniczeniu tlenu | Dostosowanie wydatków metabolicznych do warunków. [115] |
| Grupy Rana sylvatica z Alaski | Większa tolerancja zamarzania w stanie zimowym | Znaczenie przygotowania fizjologicznego. [116] |
Zestawienie dotyczy zakresów doświadczeń opisanych w tekście.
Łagodna zima może mieć różne następstwa
Kontrolowane doświadczenie na młodych ropuchach szarych Bufo bufo pozwoliło osobno zmieniać długość i temperaturę zimowania. Üveges i współautorzy zastosowali cztery kombinacje: 1,5 lub 4,5°C oraz 91 lub 61 dni. Krótszy okres zimowania i wyższa temperatura zwiększały przeżywalność w warunkach tego eksperymentu. Oba czynniki oddziaływały też łącznie na zmianę masy ciała. Wartość takiego układu polega na rozdzieleniu dwóch zmian, które w przyrodzie często współwystępują: ocieplenia zimowiska i skrócenia pobytu w nim. Wynik dotyczy młodych osobników oraz warunków utrzymywanych w laboratorium. Nie obejmuje pełnego bilansu roku, w tym skutków pogody podczas wzrostu, rozrodu czy migracji. Pozwala natomiast odrzucić prostą regułę, według której każda cieplejsza zima musi automatycznie pogarszać przeżycie każdego płaza. Odpowiedź należy przypisywać określonemu etapowi życia i rzeczywistym warunkom doświadczenia. [117]
Badania terenowe pokazują inną część tego problemu. Reading analizował populację ropuchy szarej w Wielkiej Brytanii w latach 1983–2005. W cieplejszych niż przeciętnie latach obserwowano pogarszanie kondycji ciała dorosłych samic i spadek ich rocznej przeżywalności; łagodne zimy wiązały się także z mniejszymi rozmiarami samic oraz mniejszą liczbą składanych jaj. Były to zależności wykryte podczas wieloletnich obserwacji, w których temperatura zmieniała się wraz z innymi warunkami środowiska. Taki wynik nie jest bezpośrednim odpowiednikiem eksperymentu na młodych ropuchach: dotyczy dorosłych samic, całych sezonów i naturalnej populacji. Zestawienie obu podejść pomaga formułować lepsze pytania o wpływ klimatu. Trzeba wskazać, czy ocenia się przeżycie podczas zimowania, kondycję po zimie, późniejszą płodność czy całoroczną przeżywalność. Te miary opisują różne odcinki cyklu życiowego i mogą reagować odmiennie na ten sam kierunek zmian pogody. [118]
Mikroklimat schronienia zmienia ekspozycję na mróz
Znaczenie lokalnego schronienia pokazuje badanie czterech sztucznych zimowisk traszek w południowo-wschodniej Norwegii. Dervo i współautorzy rejestrowali temperaturę w ich wnętrzu oraz w powietrzu. W sezonie 2012/13 najniższa wartość na zewnątrz wyniosła −22,0°C, a minima wewnątrz poszczególnych schronień od +1,2 do −6,9°C. Są to minima odrębnych serii pomiarowych. Autorzy wskazali, że wewnątrz mogły istnieć cieplejsze mikrosiedliska niż miejsca zamontowania czujników. Wyniki ilustrują zróżnicowanie ekspozycji środowiskowej, bez wyznaczania temperatur ciała i granic tolerancji traszek. [119]
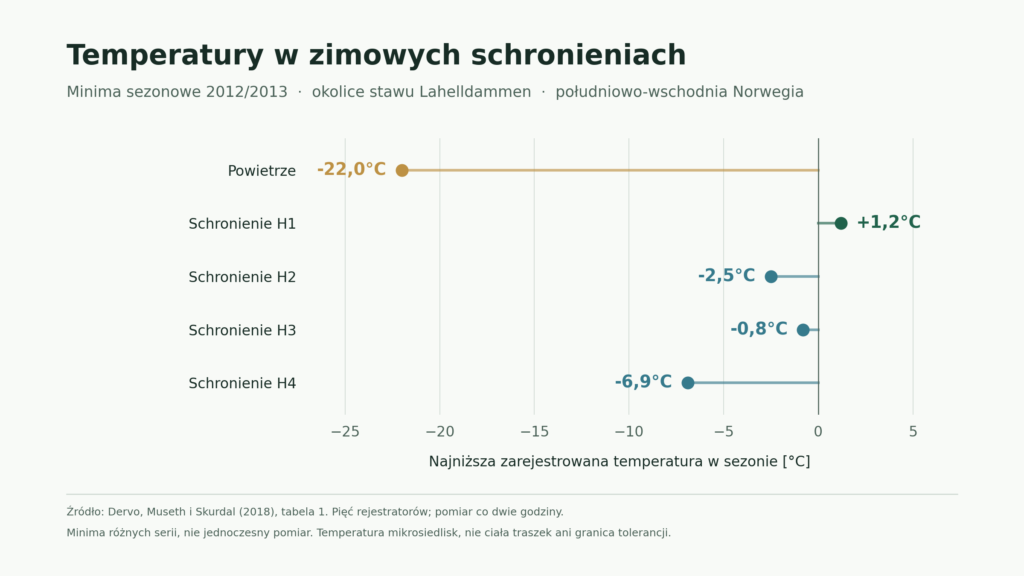
Krótki sezon może sprzyjać szybszemu rozwojowi
Sezonowość wpływa także na czas dostępny larwom na zakończenie rozwoju. Laugen i współautorzy porównali żaby trawne wzdłuż około 1600 km gradientu szerokości geograficznej w Skandynawii. W terenie tempo rozwoju silnie różniło się między zbiornikami i nie tworzyło prostego układu od południa ku północy. Gdy potomstwo badano we wspólnych warunkach laboratoryjnych, larwy z północnych populacji rozwijały się szybciej. Wynik wskazywał na genetyczne zróżnicowanie zdolności do szybkiego rozwoju, maskowane w przyrodzie przez wpływ środowiska. Eksperymenty wykazały, że temperatura i ilość pokarmu mogły przeważać nad tymi różnicami. Autorzy wiązali przyspieszenie rozwoju na północy z presją krótkiego sezonu, a nie z samym chłodem. Jest to przykład zmienności przeciwgradientowej: dziedziczne różnice i bezpośredni wpływ środowiska działają w przeciwnych kierunkach. Dlatego termin przeobrażenia w konkretnym stawie nie pozwala samodzielnie rozstrzygnąć, jak szybko larwy danej populacji mogłyby rozwijać się w innych warunkach. [120]
Rozdział 15Geografia różnorodności i endemizmu płazów
Klimat i historia kształtują rozmieszczenie
Bogactwo płazów zależy zarówno od współczesnych warunków środowiska, jak i od historii poszczególnych regionów. Globalna analiza Buckley i Jetza obejmowała mapy zasięgów 5634 gatunków znanych w wykorzystanym zestawieniu z 2006 roku. Nie jest to aktualna liczba opisanych płazów. Autorzy stwierdzili, że dostępność wody i temperatura wspólnie wyjaśniały znaczną część zróżnicowania bogactwa wewnątrz regionów, ale podobny klimat nie oznaczał wszędzie podobnej liczby gatunków. Znaczenie miały także odmienne historie ich powstawania i wymierania. Dlatego odczytując mapę, należy rozdzielać warunki umożliwiające współczesne występowanie od procesów, które przez długi czas budowały regionalną faunę. Pojedynczy parametr klimatyczny może ograniczać możliwą liczbę gatunków, nie wyznaczając jej dokładnie. Taki wynik pomaga zrozumieć, dlaczego proste porównanie temperatur dwóch miejsc nie wystarcza do przewidzenia ich różnorodności. Dotyczy to liczby gatunków w jednostce przestrzeni, a nie liczby żyjących tam osobników. [121]
Małe zasięgi i znaczenie granic regionu
Powierzchnia zasięgu opisuje inny wymiar różnorodności niż liczba gatunków w jednym miejscu. Steigerwald i współautorzy porównali zasięgi płazów, gadów, ptaków i ssaków; dane dotyczące płazów obejmowały 7094 gatunki. W tym zestawieniu mediana powierzchni zasięgu płazów była mniejsza niż u każdej z pozostałych analizowanych gromad. Nie oznacza to, że każdy płaz ma mały zasięg ani że wszystkie gatunki o małym zasięgu są równie zagrożone. Wynik pokazuje natomiast, dlaczego lokalne obszary mogą skupiać znaczną część światowego rozmieszczenia niektórych gatunków. Autorzy analizowali w tym kontekście możliwości ochrony przez bardzo małe rezerwaty. Sam obrys zasięgu nie stanowi jednak dowodu, że odpowiednie siedlisko zajmuje całą jego powierzchnię. Dla interpretacji map trzeba zachować rozróżnienie między rozległością geograficzną występowania a konkretnymi miejscami utrzymywania się populacji. Wniosek o małych zasięgach jest porównaniem statystycznym grup, nie diagnozą każdego gatunku. [122]
Melanezja jako przykład regionalnej wyjątkowości
W zestawieniu opublikowanym w 2022 roku fauna Melanezji obejmowała 534 gatunki żab, z których ponad 97% uznano za endemiczne dla tego regionu. W badaniu region rozciągał się od Nowej Gwinei i sąsiednich wysp po Fidżi. Endemizm oznacza tutaj naturalne ograniczenie występowania do tak wyznaczonego obszaru; nie należy utożsamiać go z występowaniem wyłącznie na jednej wyspie. O wyjątkowości regionu decydowała również duża wymiana składu gatunkowego między miejscami, czyli różnorodność beta. Niemal 60% opisanej fauny należało do jednej linii ewolucyjnej żab z rodziny Microhylidae, rozwijających się bez wolno żyjącej kijanki. Gatunki tej linii miały przeciętnie mniejsze zasięgi niż przedstawiciele pozostałych współwystępujących rodzin. Dla opisu takiej fauny lista kilku najbogatszych stanowisk nie zastępuje rozpoznania różnic między obszarami. Liczba 534 odnosi się do zestawienia autorów, a nie do aktualizowanej na bieżąco liczby gatunków w 2026 roku. [123]
Góry przechowują ślady dawnej różnorodności
Duża liczba gatunków w górach nie musi wynikać z jednolicie szybkiego tempa ich współczesnego powstawania. Badanie żab z Ghatów Zachodnich w Indiach połączyło informacje o rozmieszczeniu z drzewem pokrewieństwa uwzględniającym czas rozdzielania się linii. Autorzy nie stwierdzili istotnych różnic tempa różnicowania między trzema głównymi częściami regionu ani między analizowanymi zakresami wysokości. W niektórych kladach różnorodność narastała w przybliżeniu równomiernie, w innych tempo powstawania gatunków spadło około 3–2,5 miliona lat temu. Bogatsze były często linie, które miały więcej czasu na gromadzenie gatunków. Autorzy powiązali ten obraz z hipotezą długotrwałej stabilności klimatycznej regionu, sprzyjającej utrzymywaniu się dawnych linii. Jest to wyjaśnienie oparte na rekonstrukcji historii ewolucyjnej, nie bezpośredni zapis wszystkich zdarzeń z przeszłości. Wynik dotyczy badanych żab i skali przyjętej analizy; nie ustanawia jednej reguły dla wszystkich górskich faun. Pokazuje jednak, że pytanie o obecne bogactwo warto uzupełniać pytaniem o wiek regionalnych linii ewolucyjnych. [124]
Skala mapy zmienia obraz miejsc najcenniejszych
Badanie płazów Chin opublikowane w 2024 roku wykorzystało rozległe dane terenowe i molekularne, w tym materiał zbierany w latach 2001–2020. W analizie przestrzennej porównano 567 pól siatki o rozmiarze 1° × 1°. Dwadzieścia dziewięć pól z górnych 5% rozkładu bogactwa gatunkowego połączono w dziesięć obszarów szczególnej koncentracji różnorodności. Sześć z nich nie pokrywało się z wcześniej wskazywanymi globalnymi obszarami koncentracji. Nie oznacza to, że przyroda tych miejsc nagle stała się bogatsza: zmieniły się rozpoznanie fauny i dokładność analizy. Autorzy uwzględniali również potencjalne gatunki kryptyczne, wymagające odróżnienia od formalnie opisanych gatunków. Porównywali ponadto bogactwo, endemizm oraz miary pokrewieństwa ewolucyjnego. Różne wskaźniki odpowiadają na odmienne pytania i nie muszą wskazywać dokładnie tych samych miejsc. Granice wybranych obszarów zależą także od przyjętego progu wyróżniania najbogatszych pól. [125]
| Miara | Co opisuje | Granica interpretacji |
|---|---|---|
| Bogactwo gatunkowe | Liczbę gatunków w jednostce przestrzeni | Nie podaje liczby osobników. [121] |
| Endemizm regionalny | Ograniczenie naturalnego występowania do regionu | Wynik zależy od granic regionu. [123] |
| Powierzchnia zasięgu | Geograficzną rozległość występowania gatunku | Nie dowodzi zasiedlenia całej powierzchni. [122] |
| Różnorodność filogenetyczna | Zróżnicowanie reprezentowanych linii ewolucyjnych | Nie jest tożsama z liczbą gatunków. [125] |
Nowe odkrycia zmieniają mapę naszej wiedzy
Globalna analiza Luo i współautorów z 2026 roku pokazuje, że nawet kierunki interpretacji map zależą od kompletności wiedzy taksonomicznej. Autorzy odtworzyli, jak dodawanie gatunków opisanych w latach 1920–2020 zmieniało szacowany obraz rozmieszczenia kręgowców. Między zestawieniami dla 1920 i 2020 roku zmianie uległo przypisanie 31,7% powierzchni zaliczanej do centrów różnorodności płazów. Centra zdefiniowano jako górne 5% wartości wskaźnika rzadkości uwzględniającego zasięgi, a nie po prostu miejsca o największej liczbie gatunków. Ten odsetek nie opisuje migracji zwierząt, utraty siedlisk ani odsetka gatunków zagrożonych. Pokazuje zmianę obrazu fauny po uzupełnieniu wykazu gatunków. Wraz z odkryciami zmieniała się też względna rola temperatury i opadów w modelach wyjaśniających różnorodność. Profesjonalna mapa powinna zatem podawać datę zestawu danych, uwzględnioną taksonomię i definicję przedstawianej miary. W przeciwnym razie różnica między dwiema mapami może zostać błędnie odczytana jako zmiana przyrody, choć częściowo odzwierciedla postęp badań. [126]
Rozdział 16Płazy Polski
Polska fauna płazów jest znacznie skromniejsza od tropikalnej, ale pozwala poznać wiele ważnych strategii życia: okresowe wędrówki do wody, rozród w małych zbiornikach, korzystanie z leśnych kryjówek czy przebywanie wśród nadbrzeżnej roślinności. W aktualnym wykazie Atlasu Płazów i Gadów Polski IOP PAN można wyróżnić 19 nazwanych taksonów: pięć ogoniastych i czternaście bezogonowych. W tym zestawieniu nie występują płazy beznogie. Liczba 19 obejmuje żabę wodną, której szczególny status wymaga osobnego wyjaśnienia. [127]
Dlaczego można spotkać liczbę 18 albo 19
Jedną z przyczyn różnic jest wyodrębnienie rzekotki wschodniej, Hyla orientalis, od rzekotki drzewnej, H. arborea. Zmiana wiedzy taksonomicznej nie oznacza, że zwierzę nagle pojawiło się w kraju. Badania potwierdziły występowanie w Polsce dwóch bardzo podobnych linii gatunkowych oraz ich mieszańców. Różnice morfometryczne można wykrywać w analizach naukowych, lecz nie tworzą one prostego, niezawodnego testu opartego na samym kolorze czy jednym zdjęciu. [128]
Drugą trudność stanowi żaba wodna, zapisywana także jako Pelophylax kl. esculentus. Ma pochodzenie mieszańcowe związane z żabą jeziorkową i śmieszką. Jej systemy rozrodcze obejmują hybrydogenezę: w uproszczeniu podczas tworzenia gamet jeden z genomów rodzicielskich może zostać wyeliminowany, a drugi przekazany dalej. Nie jest więc poprawne automatyczne uznawanie jej za bezpłodnego mieszańca. Dlatego sformułowanie „19 taksonów w przyjętym wykazie” jest precyzyjniejsze niż traktowanie każdej pozycji jako jednakowo odrębnego gatunku biologicznego. [129]
Pięć płazów ogoniastych
| Gatunek | Typowe środowisko | Wskazówka rozpoznawcza | Źródło |
|---|---|---|---|
| Salamandra plamista — Salamandra salamandra | Wilgotne lasy gór i pogórza; larwy wodne. | Czarne ciało z kontrastowymi żółtymi plamami. | [130] |
| Traszka grzebieniasta — Triturus cristatus | Rozród zwykle w większych, zarośniętych zbiornikach bez ryb. | Ciemny grzbiet o ziarnistej powierzchni, jasny spód. | [131] |
| Traszka zwyczajna — Lissotriton vulgaris | Niewielkie zbiorniki i wilgotne kryjówki lądowe. | U samca godowego falisty grzebień; spód plamisty. | [132] |
| Traszka górska — Ichthyosaura alpestris | Chłodne, wilgotne tereny; różne wody rozrodcze. | Samiec godowy bywa niebieskawy; brzuch zwykle pomarańczowy, bez plam. | [133] |
| Traszka karpacka — Lissotriton montandoni | Karpaty i pogórze; często płytkie wody okresowe. | Gliniastobrązowy lub oliwkowy grzbiet, pomarańczowy spód. | [134] |
Nazwy przyjęto za Atlasem IOP PAN. Cechy opisują głównie dorosłe osobniki i mogą zależeć od płci oraz sezonu. [127]
Czternaście taksonów płazów bezogonowych
| Gatunek | Typowe środowisko | Wskazówka rozpoznawcza | Źródło |
|---|---|---|---|
| Kumak nizinny — Bombina bombina | Słoneczne, zarośnięte wody niżowe. | Spłaszczone ciało; czerwone lub pomarańczowe plamy na ciemnym spodzie. | [135] |
| Kumak górski — Bombina variegata | Głównie południe kraju; drobne, często okresowe wody. | Żółte lub pomarańczowe plamy na spodzie ciała. | [136] |
| Grzebiuszka ziemna — Pelobates fuscus | Lekkie gleby umożliwiające zakopywanie; do rozrodu zbiorniki wodne. | Pionowe źrenice, krępa budowa i gładka skóra. | [137] |
| Ropucha szara — Bufo bufo | Różne siedliska lądowe, w tym parki i ogrody. | Liczne brodawki i wyraźne gruczoły za oczami. | [138] [139] |
| Ropucha zielona — Bufotes viridis | Tereny otwarte, ciepłe, także pola i żwirownie. | Zielone plamy na jasnym tle. | [140] |
| Ropucha paskówka — Epidalea calamita | Otwarte tereny z lekką glebą; płytkie wody rozrodcze. | Jasna linia biegnąca wzdłuż grzbietu. | [141] |
| Rzekotka drzewna — Hyla arborea | Roślinność lądowa w krajobrazie ze zbiornikami rozrodczymi. | Zwykle zielona; bardzo podobna do rzekotki wschodniej. | [128] [142] |
| Rzekotka wschodnia — Hyla orientalis | Wschodnia część Polski, ze strefą kontaktu z H. arborea. | Pojedyncze ogólne zdjęcie często nie wystarcza do oznaczenia. | [128] |
| Żaba trawna — Rana temporaria | Różne krajobrazy od niżu po góry; rozród w wodzie. | Krępa budowa i stosunkowo tępy pysk; ubarwienie bardzo zmienne. | [143] |
| Żaba moczarowa — Rana arvalis | Głównie niż; płytkie, słoneczne wody z roślinnością. | Zwykle zaostrzony pysk; wymaga porównania kilku cech. | [144] |
| Żaba zwinka — Rana dalmatina | W Polsce głównie południe; niewielkie zbiorniki rozrodcze. | Zaostrzony pysk, jasny i przeważnie bezplamisty spód. | [145] |
| Żaba jeziorkowa — Pelophylax lessonae | Najczęściej płytkie, zarośnięte i słoneczne wody. | Przedstawicielka trudnego w oznaczaniu kompleksu żab zielonych. | [146] |
| Żaba śmieszka — Pelophylax ridibundus | Często większe, głębsze zbiorniki i starorzecza. | Żaba z grupy zielonych, choć grzbiet może być brązowy. | [147] |
| Żaba wodna — Pelophylax esculentus | Szerokie spektrum wód, także zbiorniki antropogeniczne. | Forma mieszańcowa; wygląd zmienny i niewystarczający do pewnego oznaczenia. | [129] [148] |
Tabela uwzględnia hybrydową żabę wodną. Jest przeglądem, a nie pełnym kluczem do oznaczania. Cechy spodniej strony ciała służą opisowi; nie uzasadniają chwytania ani odwracania zwierząt. [127] [129]
Ochrona ścisła i częściowa
Nie wszystkie płazy wymienione w polskich przepisach mają ten sam rodzaj ochrony. Tekst jednolity rozporządzenia o ochronie gatunkowej zwierząt, ogłoszony w Dz.U. z 2022 r. pod poz. 2380, umieszcza dziesięć nazw płazów w załączniku dotyczącym ochrony ścisłej i osiem w wykazie ochrony częściowej. Przykładowo kumak nizinny i traszka grzebieniasta figurują w pierwszym, a ropucha szara, salamandra plamista i żaba trawna — w drugim. Ochrona częściowa również obejmuje zakazy, w tym dotyczące umyślnego chwytania, niszczenia jaj oraz przemieszczania; przepisy przewidują określone odstępstwa. [149]
Rzekotka wschodnia nie widnieje w tych załącznikach jako osobny wpis. To rozbieżność pomiędzy nazwami w akcie prawnym a nowszą systematyką, której nie należy rozstrzygać przez samodzielne dopisywanie gatunku do tabeli ochrony. Przy rzeczywistych działaniach terenowych właściwym źródłem są obowiązujące przepisy i stanowisko odpowiedniego organu ochrony przyrody. [149]
Rozdział 17Rozpoznawanie płazów w terenie
Dobre oznaczenie powinno odpowiadać jakości dowodu. W trudnych grupach samo podobieństwo do fotografii wzorcowej nie rozstrzyga przynależności gatunkowej: badania żab zielonych pokazują, że podobne zewnętrznie osobniki mogą należeć do różnych taksonów i mieć różną ploidalność. W praktyce warto najpierw zapisać obserwowane cechy, a dopiero potem proponowaną nazwę. Pozwala to później poprawić oznaczenie bez utraty informacji o samym spotkaniu. [150]
Cechy pomocne w rozpoznawaniu żab brunatnych
U żaby trawnej barwa i proporcje ciała są zmienne. Metodyka GIOŚ zwraca uwagę na dużą zmienność względnej długości tylnych kończyn, dlatego nie należy czynić z niej pojedynczego testu rozstrzygającego. Również ciemna plama przypominająca literę V na grzbiecie nie występuje u każdego osobnika. Podczas obserwacji z brzegu więcej informacji daje spokojne porównanie profilu głowy, widocznej błony bębenkowej, fałdów grzbietowych i rysunku boków niż skupianie się na jednym kolorze. Fotografia powinna utrwalać naturalną pozycję zwierzęcia; nie wymaga rozciągania kończyn. [151]
| Takson | Na co zwrócić uwagę | Ograniczenie interpretacji |
|---|---|---|
| Żaba trawna — Rana temporaria | Zwykle tępszy profil pyska i słabiej zaznaczone fałdy grzbietowe. | Duża zmienność barwy i proporcji; pojedyncza cecha nie wystarcza. [151] |
| Żaba moczarowa — Rana arvalis | Wyraźniejsze fałdy; u wielu osobników ciemny, marmurkowy rysunek boków. | Jasny pas grzbietowy nie jest cechą wyłączną tego gatunku. [152] |
| Żaba zwinka — Rana dalmatina | Błona bębenkowa stosunkowo duża, o średnicy zbliżonej do oka; ostro zakończony pysk. | Potrzebne jest czytelne ujęcie; sam ogólny brązowy kolor nie rozstrzyga. [153] |
Zestawienie uzupełnia opisy gatunków; nie jest pełnym kluczem. Przy braku widocznych cech należy zachować oznaczenie grupy.
Słynny błękit samców żaby moczarowej jest cechą związaną z okresem rozrodu. Metodyka opisuje intensywne niebieskie lub liliowe ubarwienie podczas ciepłej, słonecznej pogody; samice nie przechodzą analogicznej zmiany. Z tego wynika ważna zasada terenowa: brak błękitu nie wyklucza żaby moczarowej. Fotografia brunatnej samicy lub osobnika spotkanego poza godami nie przeczy fotografiom niebieskich samców — przedstawia inny kontekst biologiczny. [152]
Podobieństwo żab zielonych i rzekotek
W kompleksie żab zielonych warto rozdzielić dwa pytania: do jakiego taksonu należy osobnik i jaki jest jego skład genomowy. Hauswaldt i współautorzy opracowali metodę molekularną rozróżniającą taksony oraz poziomy ploidalności, czyli liczbę zestawów chromosomów. Pokazuje to, dlaczego barwa grzbietu ani wrażenie „pośredniego wyglądu” nie zastępują potwierdzenia laboratoryjnego. Fotografia żaby nad stawem pozostaje wartościowym zapisem obecności kompleksu Pelophylax, nawet gdy nie pozwala uczciwie wybrać jednej z trzech nazw krajowych. [150]
Przy rzekotkach także położenie geograficzne wymaga rozsądnej interpretacji. Dufresnes, Majtyka i współautorzy pobrali materiał od 578 osobników z 60 stanowisk na polskim niżu. Wykazali mozaikową strefę kontaktu H. arborea i H. orientalis, w której występują również populacje mieszańcowe. Nie jest to sytuacja, którą można wiernie zastąpić prostą linią na mapie i automatycznym przypisaniem każdej fotografii według strony tej linii. Informacja o miejscu pomaga ekspertowi, ale nie stanowi sama w sobie dowodu przynależności konkretnej rzekotki. To wniosek z przestrzennej złożoności wyników genetycznych, nie nowa granica zasięgów wyznaczona na potrzeby tego opracowania. [154]
Cechy ropuch i traszek zależne od sezonu
U ropuchy paskówki pomocny jest układ wzoru, a nie sama obecność zielonkawych plam. Przewodnik GIOŚ opisuje jasny pas wzdłuż grzbietu, który może być nieregularny lub przerywany, oraz mniej wyraźne zielone plamy na brązowooliwkowym tle. Zatem zielonkawy rysunek nie powinien automatycznie prowadzić do oznaczenia ropuchy zielonej. Paskówka często kroczy lub szybko biegnie; zachowanie jest dodatkową wskazówką, którą warto zanotować obok wyglądu. Nie należy jednak prowokować zwierzęcia do ruchu, aby uzyskać efektowne potwierdzenie. [155]
U traszek porównanie z fotografią samca w pełnej szacie godowej łatwo wprowadza w błąd. Wysoki, powcinany grzebień traszki grzebieniastej rozwija się okresowo u samców, z przerwą u nasady ogona; po rozrodzie szata godowa zanika. Samica albo osobnik poza tym okresem nie będzie wyglądać tak samo jak samiec prezentowany w atlasie. Brak wysokiego grzebienia nie wyklucza więc gatunku. Opis obserwacji powinien uwzględniać, czy zwierzę przebywało w wodzie, czy na lądzie, oraz które cechy rzeczywiście były widoczne. [156]
Dobrym przykładem cechy użytecznej, lecz nieobowiązkowo zachowanej, jest nić na końcu ogona godowego samca traszki karpackiej. Wśród krajowych traszek przewodnik przypisuje ją właśnie temu gatunkowi. Jednocześnie zaznacza, że delikatna struktura może zostać uszkodzona, na przykład przez drapieżnika. Jej obecność wnosi zatem więcej informacji niż jej brak. To również powód, aby unikać mechanicznego traktowania klucza jako serii warunków, które każdy osobnik musi spełniać bez wyjątku. [157]
Skrzek i larwy wymagają własnych kryteriów
Oznaczenia dorosłego i jego domniemanego potomstwa nie należy łączyć wyłącznie dlatego, że występują w tym samym stawie. Żaba zwinka mocuje kłęby jaj do zanurzonych roślin lub gałązek, ale jej wyrośnięte kijanki trudno odróżnić w terenie od innych krajowych żab. Z kolei sznury skrzeku ropuchy paskówki i zielonej są bardzo podobne. Praktyczny zapis „kłęby skrzeku żab brunatnych” albo „skrzek ropuch” może więc być lepszy od nazwy gatunku dopisanej na podstawie zwierzęcia widzianego obok. [153] [155]
Fenologia zamiast sztywnego kalendarza
Terminy aktywności trzeba odnosić do lokalnych warunków. W badaniu żaby trawnej w południowej Szwecji początek rozrodu w różnych zbiornikach w obrębie tego samego roku różnił się nawet o trzy tygodnie. Rozród zaczynał się wcześniej w cieplejszych stawach i przy większych zgromadzeniach rozrodczych, choć pozostawała również zmienność niewyjaśniona tymi czynnikami. Wynik nie ustala dat dla Polski; pokazuje natomiast, dlaczego nawet regionalny kalendarz wymaga sprawdzenia przy konkretnym zbiorniku. W notatkach warto rozróżnić pierwszego zauważonego dorosłego, pierwsze głosy i pierwszy skrzek — to odmienne zdarzenia. Porównanie różnych lat będzie czytelniejsze, jeśli konsekwentnie zapisuje się ten sam rodzaj zdarzenia i temperaturę wody mierzoną w porównywalny sposób. [158]
Rozdział 18Dynamika populacji od larwy do kolejnych pokoleń
Warunki larwalne wpływają na życie po przeobrażeniu
Liczba kijanek nie jest prostą zapowiedzią liczby przyszłych osobników dorosłych. W eksperymencie z ropuchą paskówką Epidalea calamita zastosowano cztery zagęszczenia larw w zewnętrznych zbiornikach doświadczalnych, a następnie przez 30 dni obserwowano młode na lądzie. Przy dużym zagęszczeniu masa w chwili przeobrażenia była o połowę mniejsza niż przy małym, rozwój larwalny trwał dwukrotnie dłużej, a przeżywalność spadała. W grupach o większej średniej masie młodych przeżywalność na lądzie była wyższa, a przewaga rozmiarów utrzymywała się do końca obserwacji. Jest to przykład przenoszenia się skutków warunków jednego etapu życia na etap następny. Nie wystarcza więc ocena, ile osobników rozpoczęło rozwój w wodzie; znaczenie ma również ich kondycja przy opuszczaniu zbiornika. Wyniku nie należy jednak rozciągać na całe życie ani traktować jako wyznaczonej granicy dopuszczalnego zagęszczenia we wszystkich naturalnych stawach. Eksperyment mierzył konkretną reakcję badanego gatunku w określonych warunkach i czasie. [159]
Wczesna przewaga nie zawsze oznacza większy sukces życiowy
Długoterminowe badanie grzebiuszki ziemnej Pelobates fuscus pokazuje, dlaczego nie można kończyć oceny rozwoju na dniu przeobrażenia. W latach 1989–1997 obserwowano ponad 3000 osobników przy zbiorniku na wyspie Dunaju w pobliżu Wiednia. Samice przystępowały do pierwszego rozrodu w wieku od dwóch do czterech lat. Znaczenie terminu przeobrażenia i rozmiarów młodych różniło się między płciami, a efekty różnych cech mogły się wzajemnie równoważyć. W modelach dotyczących samic odmienne ścieżki rozwoju młodocianego prowadziły do podobnego przewidywanego tempa wzrostu populacji, przyjętego jako miara dostosowania. Nie unieważnia to krótkoterminowego znaczenia kondycji po przeobrażeniu. Pokazuje natomiast, że przeżycie pierwszych tygodni i dalsze konsekwencje demograficzne są różnymi wynikami. Ocena musi wskazywać, jak długo śledzono zwierzęta, które płcie uwzględniono i czy opisuje obserwacje, czy projekcję modelu. Tego lokalnego wyniku nie można automatycznie przenosić na wszystkie grzebiuszki. [160]
Utrzymanie populacji zależy od bilansu wielu procesów
Dwie niemieckie populacje salamandry plamistej Salamandra salamandra miały odmienne trajektorie mimo podobnego wyjściowego przedmiotu obserwacji. W Fredeburgu badano 376 osobników w latach 1965–1985, a w Littfeld 181 osobników w latach 1965–1982. Rozpoznawano zwierzęta po układzie plam podczas kontroli zimowisk w dawnych sztolniach. W populacji stabilnej szacowane lokalne przeżywanie utrzymywało się na poziomie około 0,87–0,89 rocznie. W populacji zanikającej spadło z około 0,78 do 0,57; dopływ nowych osobników nie kompensował tego pogorszenia. Liczby te dotyczą parametrów modelu, a nie prostego ilorazu odnalezionych zwierząt. Lokalne przeżywanie może obejmować wpływ trwałego opuszczenia badanego miejsca, dlatego nie należy bez dodatkowych danych utożsamiać go wyłącznie ze śmiertelnością. Przykład pokazuje, że sam rozród lub obecność młodych nie dowodzą trwałości populacji. Konieczne jest rozpatrywanie przybywania osobników wraz z ubywaniem tych już obecnych. [161]
Przerwa w rozrodzie jest częścią dynamiki populacji
Nieobecność samicy na rozrodzie może oznaczać opuszczenie sezonu, a nie jej śmierć. W Denny Creek w Kolorado analizowano dane ze 124 samic ropuch, nazwanych w publikacji Bufo boreas, zbierane w latach 1999–2009. Żadnej samicy nie odnotowano w kolejnych sezonach rozrodu. W najlepiej wspieranym modelu samice po sezonie rozrodczym przechodziły do stanu bez rozrodu, a prawdopodobieństwo pozostania w tym stanie w następnym roku oszacowano na 0,64, z szerokim przedziałem 0,38–0,84. Jest to wynik warunkowy dla określonego modelu i populacji, nie ogólna reguła corocznego zachowania wszystkich ropuch. Autorzy osobno modelowali przeżywanie i uczestnictwo w rozrodzie. Dzięki temu spadku liczby samic przy zbiorniku nie trzeba było automatycznie interpretować jako proporcjonalnej utraty populacji. W analizie wieloletniej znaczenie ma zatem także historia udziału poszczególnych osobników w kolejnych sezonach. [162]
| Przedmiot pomiaru | Co można ocenić | Czego sam pomiar nie rozstrzyga |
|---|---|---|
| Masa przy przeobrażeniu | Wielkość młodych na początku życia lądowego | Sukcesu rozrodczego całego życia. [159] |
| Wiek pierwszego rozrodu | Moment wejścia do rozrodu | Jednakowej ścieżki obu płci. [160] |
| Lokalne przeżywanie | Utrzymywanie się oznaczonych osobników | Oddzielnego udziału śmierci i emigracji. [161] |
| Udział w sezonie rozrodu | Aktywność rozrodczą obserwowanych samic | Liczby wszystkich żyjących samic. [162] |
Lokalne populacje nie muszą zmieniać się równocześnie
Badanie pięciu populacji traszki grzebieniastej Triturus cristatus w Europie Zachodniej wykazało niewielką zgodność czasową ich zmian demograficznych w skali lokalnej i regionalnej. Wpływ pogody na analizowane parametry był słaby i różnił się przestrzennie, natomiast zależność od zagęszczenia stwierdzano w niemal wszystkich populacjach lub subpopulacjach. Analiza dotyczyła osobników dorosłych, co ogranicza wnioski o wcześniejszych etapach życia. Wynik przestrzega przed traktowaniem jednego stanowiska jako wiernego wskaźnika przebiegu zmian w całym regionie. Dwa miejsca mogą reagować odmiennie, mimo że należą do tej samej strefy klimatycznej i zasiedla je ten sam gatunek. Nie jest to dowód braku znaczenia pogody dla płazów. Oznacza, że w badanym zestawie jej oddziaływanie nie tworzyło jednego prostego wzorca wspólnego wszystkim miejscom. Porównanie trajektorii lokalnych pomaga odróżnić zjawisko ograniczone do stanowiska od zmiany obejmującej szerszą sieć populacji. [163]
Wyniki z innego stanowiska wymagają ostrożnego przenoszenia
Model populacji wymaga danych o przeżywaniu, dojrzewaniu i rozrodzie, lecz komplet takich pomiarów rzadko jest dostępny dla każdego stanowiska. Rosa i współautorzy sprawdzili skutki uzupełniania braków parametrami pochodzącymi z innych populacji, wykorzystując dane z 18 populacji kumaka górskiego Bombina variegata w Europie Zachodniej. Takie zastępowanie wartości mogło silnie zniekształcać prognozę dla konkretnego miejsca. Błędy dodatnie i ujemne częściowo znosiły się po uśrednieniu, dlatego dobra przeciętna trafność nie gwarantowała wiarygodności poszczególnych prognoz. Dobór populacji podobnej demograficznie lub bliskiej przestrzennie ograniczał skrajne błędy, ale podobny typ siedliska nie zapewniał takiej ochrony we wszystkich przypadkach. Przewidywanie trwałości powinno zatem ujawniać pochodzenie podstawionych parametrów i wrażliwość wyniku na ich zmianę. Nie chodzi o odrzucenie modeli, lecz o rozróżnienie prognozy opartej na lokalnych pomiarach od prognozy zależnej od zapożyczonych założeń. [164]
Struktura wieku ujawnia ograniczenia trwałości
Heard i współautorzy porównali strukturę wieku dwóch australijskich gatunków w próbach sprzed pierwszego odnotowania Bd i po nim. Przeżywanie dorosłych oszacowali z wieku określanego na podstawie kości, zestawiając materiał muzealny ze współczesnymi próbami. Oszacowania były niższe w późniejszych próbach. W modelach skrócenie życia zwiększało wymagania dotyczące uzupełniania populacji młodymi i łączności między stanowiskami. Było to połączenie obserwacyjnego porównania różnych prób z analizą modelową, a nie eksperyment zakażenia ani bezpośrednie śledzenie tych samych osobników przez dziesięciolecia. Wykres podaje 95-procentowe przedziały raportowane w publikacji. [165]
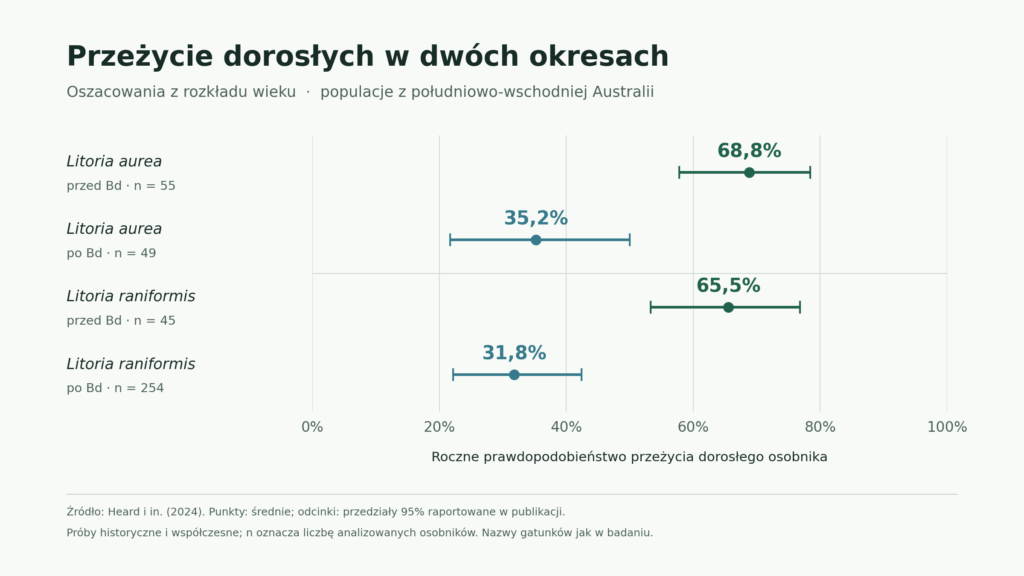
Nazwy Litoria aurea i Litoria raniformis zachowano zgodnie z badaniem. ASW przyjmuje obecnie kombinacje Ranoidea aurea i Ranoidea raniformis. [166]
Rozdział 19Płazy w funkcjonowaniu ekosystemów i badaniach naukowych
Przenoszenie materii między wodą i lądem
Wędrówki płazów łączą obiegi materii w sąsiadujących środowiskach. Regester, Lips i Whiles mierzyli przepływy związane z trzema gatunkami Ambystoma w pięciu leśnych stawach południowego Illinois. Samice wnosiły materię organiczną do wody w postaci jaj, a przeobrażone młode wynosiły ją na ląd. Część produkcji larwalnej pozostawała jednak w stawie wskutek śmiertelności. W trzech zbiornikach, w których larwy osiągały przeobrażenie, bilans netto kierował się do środowiska wodnego. Przykład pokazuje, dlaczego samo obserwowanie masowego wychodzenia młodych nie wystarcza do określenia rocznego bilansu. Badacze porównywali przepływy w jednostkach suchej masy organicznej, a nie wyłącznie liczbę zwierząt. Taki sposób pomiaru uwzględnia, że jajo, larwa i osobnik po przeobrażeniu reprezentują różne ilości materii. [167]
Wpływ drapieżnictwa na rozkład ściółki
Oddziaływania płazów mogą sięgać procesów, których nie widać podczas pojedynczej obserwacji zwierzęcia. Best i Welsh umieścili Ensatina eschscholtzii w terenowych zagrodach w lesie północnej Kalifornii, porównując je z zagrodami bez salamander. Drapieżnictwo zmieniało skład zespołu bezkręgowców uczestniczących w rozdrabnianiu i przetwarzaniu ściółki. W pierwszym roku zatrzymywanie ściółki było większe o 13,3% ± 3,6%; w drugim różnica wyniosła 5,6% ± 4,6% i nie była statystycznie istotna. Podane wartości po znaku ± to błędy standardowe, a nie zakres między najmniejszym a największym pomiarem. Różnice między latami wiązały się z warunkami wilgotnościowymi i zasobami bezkręgowców. Wynik opisuje działanie konkretnego układu pokarmowego; nie dostarcza stałego przelicznika ilości węgla zatrzymywanego przez dowolną salamandrę w każdym lesie. [168]
Płazy są także pokarmem, dlatego ich ubytek może oddziaływać na kolejny poziom sieci troficznej. Zipkin i współautorzy analizowali dane o wężach z lasu w Panamie przed masowym zanikiem płazów i po nim. Zespół węży stał się uboższy gatunkowo, a jego skład bardziej jednorodny między siedmioma transektami w jednym badanym lesie; część gatunków wykazywała gorszą kondycję ciała. Jest to przykład obserwacyjny zgodny z konsekwencjami ograniczenia zasobów pokarmowych. Nie był eksperymentem, w którym badacze losowo usunęli płazy z niezależnych powierzchni. Rozróżnienie ma znaczenie przy ocenie siły wnioskowania przyczynowego. Dane wskazują na skutki szersze niż utrata samych płazów, lecz nie uzasadniają twierdzenia, że każdy drapieżnik zareaguje tak samo w innym środowisku. [169]
| Przypadek | Rodzaj dowodu | Co można z niego wnioskować |
|---|---|---|
| Ambystoma i leśne stawy | Pomiar przepływów materii między środowiskami | Kierunek bilansu wynika z zestawienia dopływu i odpływu. [167] |
| Ensatina i ściółka leśna | Eksperyment z obecnością drapieżnika i kontrolą | Wpływ na procesy rozkładu zależał od roku i warunków. [168] |
| Płazy i węże w Panamie | Wieloletnie porównanie przed zanikiem płazów i po nim | Zależności troficzne mogą przenosić skutki utraty gatunków. [169] |
Te badania różnią się układem i mierzoną zmienną; nie tworzą wspólnego rankingu wielkości efektów.
Komórkowe mechanizmy regeneracji
Badania regeneracji pokazują, jak odbudowa narządu zależy od pochodzenia jego komórek. Kragl i współautorzy zastosowali znakowanie fluorescencyjne do śledzenia tkanek podczas odrastania kończyny aksolotla. Powstająca blastema, czyli strefa komórek uczestniczących w odbudowie, nie okazała się jednolitą pulą komórek zdolnych do wytworzenia dowolnej tkanki. Poszczególne populacje zachowywały ograniczenia związane z pochodzeniem. Odbudowa złożonej struktury była możliwa dzięki współdziałaniu różnych komórek progenitorowych. To zmienia sposób formułowania pytania badawczego: znaczenie ma nie tylko uruchomienie namnażania, lecz także tożsamość, potencjał i pozycja komórek. Wynik dotyczy regeneracji kończyny Ambystoma mexicanum. Nie opisuje odtwarzania całego zwierzęcia z niewielkiego fragmentu ani jednakowej zdolności regeneracyjnej wszystkich płazów. [170]
Drugi element układanki stanowi odpowiedź odpornościowa. Godwin, Pinto i Rosenthal wykazali, że makrofagi są potrzebne we wczesnej fazie regeneracji kończyny aksolotla. Po eksperymentalnym zmniejszeniu ich liczby rana zamykała się, ale powstawało nasilone włóknienie i kończyna nie odrastała. Kiedy populacja makrofagów się odtworzyła, ponowne zranienie przez reamputację umożliwiało przywrócenie regeneracji. Badanie rozdzieliło zatem zamknięcie powierzchni rany od odbudowy utraconej struktury. Pokazało również, że komórki odpornościowe współtworzą środowisko umożliwiające regenerację. Dla badań biomedycznych jest to wskazówka dotycząca mechanizmu i czasu działania sygnałów. Sam rezultat eksperymentu na aksolotlu nie rozstrzyga, czy podobną odpowiedź można bezpiecznie i skutecznie wywołać w tkankach człowieka. [171]
Nawet podobny efekt końcowy może powstawać różnymi drogami. Sandoval-Guzmán i współautorzy porównali regenerację mięśni kończyny u Notophthalmus viridescens i Ambystoma mexicanum. U pierwszego gatunku dojrzałe włókna mięśniowe mogły ulegać odróżnicowaniu i dostarczać komórek uczestniczących w odbudowie. U aksolotla badane włókna nie dawały takiego wkładu; nowe mięśnie powstawały dzięki miejscowym komórkom satelitowym wykazującym obecność PAX7. Wniosek nie polega na wskazaniu jednego „genu odrastania”. Dotyczy różnic między źródłami komórek wykorzystywanymi przez dwa konkretne modele. Dlatego informację o regeneracji warto zawsze uzupełniać nazwą gatunku, rodzajem tkanki i zastosowaną metodą śledzenia komórek. Dopiero taki opis pozwala ocenić, które elementy mechanizmu można rzeczywiście porównywać. [172]
Wpływ mikrobioty skóry na odporność
Skórę płaza zamieszkują mikroorganizmy, a ich interakcje z gospodarzem mogą wpływać na przebieg zakażenia. Harris i współautorzy przeprowadzili randomizowany eksperyment, w którym wprowadzali bakterię Janthinobacterium lividum na skórę Rana muscosa przed ekspozycją na Bd. Zabieg zapobiegał objawom chorobowym i śmierci w badanych warunkach. Bakteria wytwarzała przeciwgrzybiczą wiolaceinę, stwierdzaną w większych stężeniach na skórze żab poddanych zabiegowi. Znaczenie pracy polega na sprawdzeniu wyniku u żywych gospodarzy: autorzy badali chorobę i przeżycie, a nie wyłącznie hamowanie wzrostu grzyba w naczyniu laboratoryjnym. Był to dowód możliwości biologicznej ochrony w określonym układzie gospodarza, bakterii i patogenu, który wymaga dalszego sprawdzania w innych warunkach. [173]
Granice uogólnienia pokazał eksperyment Beckera i współautorów na Atelopus zeteki. Zastosowanie J. lividum nie zapobiegło śmierci po zakażeniu Bd ani jej nie opóźniło. Bakteria początkowo kolonizowała skórę, lecz jej liczebność następnie malała, podczas gdy nasilenie infekcji rosło. Wprowadzony mikroorganizm nie zapewnił więc trwałej ochrony tego gospodarza. Ten wynik uzasadnia rozdzielanie kilku pytań: czy bakteria hamuje patogen, czy utrzymuje się na skórze określonego płaza oraz czy poprawia jego przeżywalność. Odpowiedź dodatnia na pierwsze z nich nie przesądza o pozostałych. Różnica między wynikami wskazuje na zależność działania zabiegu od badanego gospodarza i warunków doświadczenia. [174]
Rozdział 20Skala zagrożenia i interpretacja statystyk
Liczba opisanych gatunków mówi o rozpoznanej różnorodności, natomiast Czerwona lista IUCN ocenia ryzyko wymarcia. W zestawieniu IUCN 2026-1 szacowany udział zagrożonych płazów wynosi 41%. Wydanie to opublikowano 9 lipca 2026 r.; jest punktem odniesienia dla aktualnych danych w tym opracowaniu. [175] [176]
DD oznacza niedostateczne dane, a nie bezpieczeństwo. Najlepsze oszacowanie zakłada podobny udział zagrożonych w grupie DD i wśród lepiej poznanych gatunków. Wzór: (EW + CR + EN + VU) / (wszystkie ocenione − EX − DD). Dolne i górne oszacowania IUCN wynoszą 37–48%. Wynikają z odmiennych założeń o gatunkach DD; nie stanowią klasycznego 95-procentowego przedziału ufności. [175]
W tym wskaźniku sprawozdawczym IUCN uwzględnia także EW, czyli gatunki wymarłe na wolności. Nie zmienia to formalnej definicji trzech kategorii zagrożenia: VU, EN i CR. [177]
| Kod | Znaczenie | Interpretacja |
|---|---|---|
| VU / EN / CR | Narażony / zagrożony / krytycznie zagrożony | Trzy kategorie zagrożenia wymarciem |
| DD | Niedostateczne dane | Brak podstaw do wiarygodnej oceny ryzyka |
| LC / NT | Najmniejszej troski / bliski zagrożenia | Poza trzema kategoriami zagrożenia; wymagają monitorowania |
| EW / EX | Wymarły na wolności / wymarły | Odmienne sytuacje; EW nie jest równoznaczne z całkowitym wymarciem |
Skróty i sposób ujmowania kategorii: IUCN. [175]
Wcześniejsza globalna ocena GAA2 objęła 8011 gatunków i zakończyła zbieranie ocen w czerwcu 2022 r. Publikacja z 2023 r. wykazała 2873 gatunki w kategoriach CR, EN i VU oraz oszacowanie zagrożenia 40,7%. Nie jest to iloraz 2873/8011. [178]
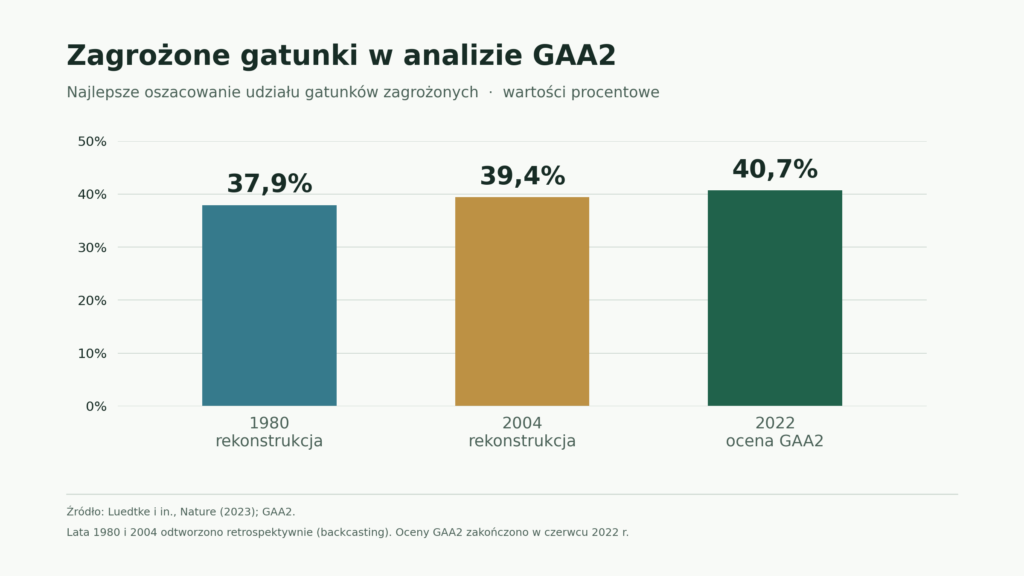
Oceny są aktualizowane, a zmiana kategorii nie zawsze oznacza nowy spadek liczebności. Może wynikać z lepszych badań, dokładniejszych granic zasięgu lub rozpoznania odrębnego gatunku. Trzecia globalna ocena, GAA3, obejmuje lata 2024–2028. Aktualizacja z lipca 2026 r. przyniosła 225 ocen płazów, w tym 45 pierwszych ocen gatunków niedawno opisanych. Rozróżnianie rzeczywistej zmiany stanu przyrody od zmiany naszej wiedzy jest konieczne przy interpretowaniu trendów. [179]
Rozdział 21Główne przyczyny zanikania płazów
Najważniejszym punktem wyjścia jest ochrona miejsc, w których płazy mogą realizować cały cykl życia. Według podsumowania GAA2 rolnictwo jest najczęstszą przyczyną utraty i degradacji ich siedlisk. Samo pozostawienie zbiornika nie rozwiązuje problemu, jeżeli jego otoczenie przestaje zapewniać warunki potrzebne lokalnym gatunkom. Znaczenie poszczególnych zagrożeń zależy od regionu i biologii zwierzęcia; ogólny ranking światowy nie zastępuje diagnozy konkretnego stanowiska. [180] [108]
Zmiana klimatu oddziałuje przez warunki termiczne i dostępność wody, a jej skutki nakładają się na przekształcenia krajobrazu. Dla ochrony istotne jest zarówno utrzymywanie odpowiednich siedlisk, jak i możliwość przemieszczania się między nimi. Plan ACAP podkreśla konieczność łączenia wiedzy o klimacie, chorobach, zanieczyszczeniach i siedliskach. Nie istnieje jedna interwencja, która rozwiąże każdy z tych problemów u wszystkich gatunków. [108]
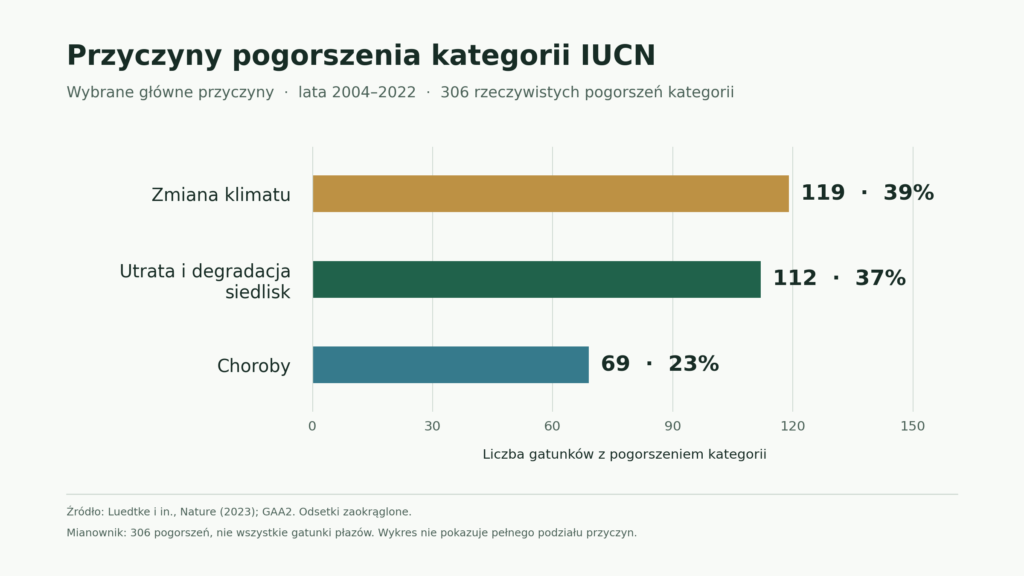
Choroby skóry mogą mieć skutki ogólnoustrojowe
Grzyb Batrachochytrium dendrobatidis, w skrócie Bd, wywołuje chytridiomikozę. Skóra płazów jest ważna dla utrzymania równowagi wodnej i jonowej, dlatego infekcja nie ogranicza się do powierzchownej zmiany wyglądu. Voyles i współautorzy wykazali u badanej rzekotki Litoria caerulea zaburzenia transportu elektrolitów, zmiany ich stężenia we krwi i zatrzymanie pracy serca. Wynik ten wyjaśnia mechanizm ciężkiego przebiegu choroby; nie oznacza identycznej wrażliwości każdego gatunku płaza. [181]
Drugi istotny patogen, Batrachochytrium salamandrivorans — Bsal — został opisany w 2013 r. po gwałtownych spadkach populacji salamandry plamistej w Niderlandach. Badacze wyizolowali grzyba ze zwierząt, a eksperymentalne zakażenia salamander potwierdziły jego zdolność do powodowania nadżerkowej choroby skóry i śmierci. Bd i Bsal to odrębne patogeny. Ich podobne nazwy nie uprawniają do traktowania ich jako jednej choroby o identycznym przebiegu, preferencjach środowiskowych i znaczeniu dla poszczególnych gospodarzy. [182]
Droga jest jednocześnie zagrożeniem i barierą
Drogi przecinające trasy między miejscami rozrodu a siedliskami lądowymi zwiększają ryzyko śmierci podczas migracji. Skuteczne zabezpieczenie powinno ograniczać wejście na jezdnię i zachowywać możliwość przejścia na drugą stronę. W portugalskim badaniu porównującym odcinki przed instalacją ogrodzeń i po niej wykazano ograniczenie liczby płazów docierających na zabezpieczoną drogę. Autorzy zaznaczyli jednak potrzebę badania także przejść tunelami i otoczenia końców ogrodzeń. Sama obecność płotka nie dowodzi jeszcze, że zachowano łączność populacji. [183]
Rozdział 22Choroby zakaźne płazów i mechanizmy podatności
Zakażenie i choroba mają różne znaczenie
Podatność płaza można rozpatrywać na kilku poziomach: wystąpienia zakażenia, rozwoju uszkodzeń oraz przeżycia zwierzęcia. Rozróżnienie dobrze pokazuje praca Graya i współautorów nad Batrachochytrium salamandrivorans, czyli Bsal. Porównano w niej 35 północnoamerykańskich gatunków z 10 rodzin. Reakcje gospodarzy tworzyły szerokie spektrum, od braku wykrytego zakażenia po ciężką chorobę. Zakażenia stwierdzono również u przedstawicieli płazów bezogonowych, dlatego przypisanie Bsal wyłącznie salamandrom byłoby nadmiernym uproszczeniem. Samo wykrycie patogenu nie przesądzało o śmierci gospodarza. Z punktu widzenia ochrony znaczenie mają więc także gatunki, które mogą pozostawać zakażone bez równie poważnych następstw. Badanie laboratoryjne dokumentuje biologiczną podatność konkretnych zwierząt; nie określa częstości zakażeń w ich dzikich populacjach ani prawdopodobieństwa zaniku każdego gatunku w całym jego zasięgu. [184]
| Patogen | Udokumentowane zjawisko | Zakres wniosku |
|---|---|---|
| Bd | Zakażenie zrogowaciałego naskórka | Lokalizacja zmieniała się podczas rozwoju Mixophyes fasciolatus. [185] |
| Bsal | Zróżnicowanie reakcji gospodarzy | Zakażenie i ciężka choroba nie były równoważnymi wynikami. [184] |
| FV3 | Uszkodzenia wielu narządów | Martwicę tkanek wykazano u dorosłych Rana sylvatica. [186] |
Tabela zestawia wyniki odrębnych badań; nie stanowi rankingu zjadliwości ani klucza diagnostycznego.
Rozwój zmienia podatne tkanki i odpowiedź odpornościową
Batrachochytrium dendrobatidis, w skrócie Bd, korzysta z tkanek, których rozmieszczenie zmienia się w rozwoju płaza. Marantelli i współautorzy prześledzili ten związek u Mixophyes fasciolatus, porównując obraz tkanek z lokalizacją grzyba. Przez większą część życia kijanki keratyna występowała w aparacie gębowym; krótko przed przeobrażeniem pojawiała się również na stopach. Zrogowaciałe elementy aparatu gębowego zanikały, zanim keratyna pojawiała się na skórze tułowia. Grzyb występował w zrogowaciałym, wielowarstwowym naskórku i podążał za zmianą jego rozmieszczenia. U tego gospodarza przeobrażenie wiązało się z szybkim rozszerzeniem zajętych obszarów i ciężkimi następstwami zakażenia. Wyjaśnia to, dlaczego ta sama infekcja może mieć odmienny przebieg u larwy i po przeobrażeniu. Wynik dotyczy badanego gatunku, a nie jednakowej wrażliwości wszystkich kijanek. [185]
Odporność nie zależy wyłącznie od obecności komórek obronnych. Fites i współautorzy wykazali, że Bd może zakłócać ich działanie. W badaniach komórek odpornościowych, między innymi Xenopus laevis, kontakt z komórkami grzyba lub uwalnianymi przez nie substancjami ograniczał namnażanie limfocytów i nasilał apoptozę, czyli regulowaną śmierć komórek. Jednocześnie nie stwierdzono podobnego zahamowania rozpoznawania i pochłaniania grzyba przez badane makrofagi oraz neutrofile. Nie oznacza to zatem całkowitego wyłączenia wszystkich elementów odporności. Wyniki wskazują na bardziej wybiórcze oddziaływanie, utrudniające rozwinięcie skutecznej odpowiedzi limfocytarnej. Są dowodem mechanizmu na poziomie komórkowym. Same nie pozwalają obliczyć śmiertelności dzikiej populacji ani uznać, że każdy gatunek reaguje identycznie. Pomagają jednak wyjaśnić, dlaczego rozpoznanie obcego organizmu przez część komórek obronnych może nie wystarczyć do opanowania zakażenia. [187]
Zdolność patogenu do osłabiania odporności nie wyklucza nabywania pewnej ochrony przez gospodarza. McMahon i współautorzy badali odpowiedź na Bd u trzech gatunków płazów, rozpatrując mechanizmy behawioralne lub immunologiczne. U Osteopilus septentrionalis wcześniejsze kontakty z patogenem wiązały się z mniejszym nasileniem kolejnego zakażenia, większą liczbą i aktywnością limfocytów oraz lepszym przeżyciem. Podobny kierunek odpowiedzi obserwowano również w badaniach z materiałem pochodzącym z nieżywych komórek grzyba. Wyniki pokazują, że odporność na Bd nie musi być niezmienną właściwością osobnika. Nie dowodzą jednak pełnej ochrony przed ponownym zakażeniem, jednakowej skuteczności u wszystkich płazów ani trwałego zabezpieczenia populacji w terenie. Wartość tego doświadczenia polega na wykazaniu biologicznej możliwości nabywania odporności, a nie na ustanowieniu gotowej metody leczenia czy ochrony gatunkowej. [188]
Środowisko podtrzymuje zakażenia i zmienia ich przebieg
W przypadku Bsal znaczenie ma również to, co dzieje się poza szczególnie podatnym gospodarzem. Stegen i współautorzy połączyli badania ekologii patogenu z dwuletnią obserwacją belgijskiej populacji Salamandra salamandra po pojawieniu się zakażeń. Wykazali, że grzyb wytwarza zarówno ruchliwe zarodniki, jak i nieruchliwe formy odporniejsze na warunki środowiska. Patogen mógł utrzymywać się w wodzie i glebie oraz u mniej podatnych płazów, zachowując zdolność zakażania wrażliwych gospodarzy. Takie rezerwuary mogą podtrzymywać zagrożenie również wtedy, gdy najbardziej wrażliwych gospodarzy jest już niewiele. W obserwowanej populacji nastąpiło gwałtowne załamanie bez oznak odbudowy w okresie badania. Przykład pokazuje, dlaczego ocena sytuacji epidemiologicznej wymaga uwzględnienia całego układu gospodarzy i środowiska. Sam spadek liczby znajdowanych chorych salamander nie musi oznaczać ustąpienia patogenu. [189]
Temperatura zmienia przebieg zakażenia, lecz zależność nie sprowadza się do zasady, że im chłodniej, tym gorzej. Carter i współautorzy porównali reakcje Notophthalmus viridescens na Bsal w trzech temperaturach: 6, 14 i 22°C. Choroba prowadziła do śmierci szybciej przy 14°C niż przy pozostałych temperaturach. U dorosłych utrzymywanych w 22°C nie wykryto zakażeń, podczas gdy młodociane osobniki mogły pozostawać zakażone także w tych warunkach. Autorzy rozpatrywali zarówno właściwości patogenu, jak i zmieniające się mechanizmy ochronne gospodarza; nie wyizolowali jednego uniwersalnego czynnika odpowiedzialnego za wszystkie różnice. Wynik nie wyznacza bezpiecznej temperatury dla dowolnego gatunku. Pokazuje natomiast, że informację o podatności trzeba czytać wraz z wiekiem zwierząt i warunkami badania, a pojedynczej wartości temperatury nie należy traktować jako samodzielnej prognozy zagrożenia. [190]
Ranawirusy mogą uszkadzać wiele narządów
Frog virus 3, czyli FV3, należy do ranawirusów z rodziny Iridoviridae. Badania Forzán i współautorów nad 40 dorosłymi Rana sylvatica pokazały, że przebieg choroby może obejmować rozległe uszkodzenia narządów wewnętrznych. We wczesnej fazie zmiany były niewielkie i występowały sporadycznie. Później stwierdzano martwicę tkanek krwiotwórczych, tkanek limfatycznych oraz nabłonków, między innymi skóry, błon śluzowych i kanalików nerkowych. Obserwacje mikroskopowe zestawiono z wykrywaniem materiału genetycznego i antygenów wirusa. Pozwoliło to powiązać obecność patogenu ze zmianami chorobowymi w konkretnych tkankach. Zewnętrzny wygląd zwierzęcia nie oddawał zatem całego zakresu procesów zachodzących wewnątrz organizmu. Praca opisuje przebieg zakażenia u określonego gospodarza w warunkach badania; nie ustala wspólnego harmonogramu choroby dla wszystkich płazów ani wszystkich ranawirusów. [186]
Istotne różnice występują także pomiędzy wariantami wirusa oraz gatunkami gospodarzy. Hoverman i współautorzy porównali reakcje larw trzech gatunków płazów bezogonowych na FV3 i pokrewny izolat. Uzyskali wyraźne różnice w częstości zakażeń, śmiertelności oraz czasie przeżycia. Znaczenie miała zarówno tożsamość gospodarza, jak i wariant patogenu oraz warunki kontaktu z nim. Dlatego określenie „ranawirus” jest zbyt szerokie, aby samo w sobie określało oczekiwany skutek dla danej populacji. Również wysoka śmiertelność w jednym doświadczeniu nie stanowi oszacowania odsetka osobników, które zginą w naturalnym zbiorniku. Do przeniesienia wniosku potrzebna jest zgodność biologiczna porównywanych układów. Z badania wynika przy tym ważna przesłanka dla interpretacji dowodów: stwierdzenie różnic między gatunkami nie uprawnia do przypisania im raz na zawsze niezmiennego miejsca w rankingu podatności. [191]
Etap życia i inni gospodarze zmieniają obraz choroby
Nie należy też automatycznie zakładać, że największe zagrożenie ranawirusami przypada zawsze na przeobrażenie. Haislip i współautorzy porównali siedem gatunków płazów bezogonowych w czterech stadiach rozwoju: zarodka, świeżo wyklutej larwy, starszej larwy i okresu przeobrażenia. U czterech gatunków największą podatność stwierdzono we wcześniejszych stadiach larwalnych, a nie podczas przeobrażenia. Zarodki wykazywały najmniejszą podatność; autorzy wskazywali ochronne osłony jaja jako możliwe wyjaśnienie, nie jako osobno dowiedziony jedyny mechanizm. Wynik podważa prostą hierarchię wrażliwości wspólną dla wszystkich płazów. Ma również znaczenie dla oceny strat: małe, wcześnie ginące larwy są trudniejsze do zauważenia niż większe osobniki. Widoczne przypadki choroby mogą więc nie oddawać rozkładu jej następstw pomiędzy etapami życia, a brak licznych martwych przeobrażających się płazów nie rozstrzyga o stanie wcześniejszych stadiów. [192]
Brenes i współautorzy wykazali również związki między różnymi gospodarzami ranawirusa. W 28-dniowym doświadczeniu zakażenie wykryto u 60%, 50% i 10% wcześniej nieeksponowanych kijanek Hyla chrysoscelis, odpowiednio w grupach współdzielących wodę z uprzednio eksponowanymi kijankami tego samego gatunku, żółwiami Trachemys scripta elegans i rybami Gambusia affinis. Każda grupa obejmowała 20 kijanek. Wyniki dotyczą całego doświadczenia, także zwierząt, które nie dożyły jego końca. Nie są terenowym porównaniem ryzyka stwarzanego przez wszystkie płazy, gady i ryby. [193]

Rozdział 23Wpływ zanieczyszczeń na fizjologię i zachowanie płazów
Pytanie o wpływ zanieczyszczeń wymaga wskazania, co dokładnie mierzymy: ruch zwierzęcia, nawoływanie, stężenie hormonu, tempo rozwoju, przeżycie czy liczebność populacji. Te miary odpowiadają na różne pytania. Zmiana zachowania może ujawnić oddziaływanie środowiska, ale sama nie określa jeszcze bilansu rozrodu i śmiertelności. W poniższych przykładach warto zatem śledzić trzy elementy doświadczenia: badany organizm, rodzaj ekspozycji oraz wynik pomiaru. Pozwala to zestawić odmienne badania bez sprowadzania ich do jednego nieuzasadnionego wskaźnika szkodliwości.
Hałas i środowisko komunikacji
Tennessen i współautorzy badali samice żaby leśnej, nazwanej w publikacji Lithobates sylvaticus. Hałas ruchu drogowego zwiększał stężenie kortykosteronu, hormonu związanego z reakcją stresową, oraz utrudniał przemieszczanie się ku chórowi samców w doświadczeniu terenowym. Praca połączyła więc pomiar fizjologiczny z zachowaniem istotnym podczas rozrodu. Wynik nie oznacza wyłącznie, że żaby gorzej słyszą: oddziaływanie obejmowało również ich reakcję hormonalną. Badanie pokazuje, dlaczego do opisu siedliska rozrodczego potrzebne są informacje o otoczeniu akustycznym. Samo istnienie wody i roślinności nie opisuje warunków, w których zwierzę dociera do miejsca rozrodu i odbiera sygnały innych osobników. [194]
W badaniach Halfwerka i współautorów miejskie samce żab túngara wytwarzały bardziej wyraziste sygnały godowe, które przyciągały więcej samic niż sygnały samców leśnych. W miastach rzadsze były przy tym nietoperze i drobne muchówki wykorzystujące nawoływania do odnajdywania żab. Przeniesienie zwierząt między środowiskami ujawniło asymetrię: samce miejskie potrafiły ograniczać ryzyko po przeniesieniu do lasu, natomiast leśne nie zwiększały atrakcyjności sygnałów po przeniesieniu do miasta. Ten przypadek wiąże zmiany komunikacji z odbiorcami sygnału, w tym partnerkami, drapieżnikami i pasożytami. Nie pozwala ocenić wszystkich skutków urbanizacji jako korzystnych ani przypisać całej różnicy wyłącznie dziedzicznym zmianom. [195]
Nocne światło i różne etapy życia
Touzot i współautorzy porównali dorosłe samce ropuchy szarej przy trzech poziomach nocnego oświetlenia. W dziesiątym dniu średni czas ruchu podczas wspólnych 22 godzin zapisu był mniejszy przy nominalnych 5 i 20 luksach niż w kontroli 0,1 luksa. Porównania z kontrolą dały odpowiednio p = 0,059 i p = 0,013. Nie są to jednakowo mocne dowody statystyczne. Rycina przedstawia wyniki jako indeks względem kontroli. [196]
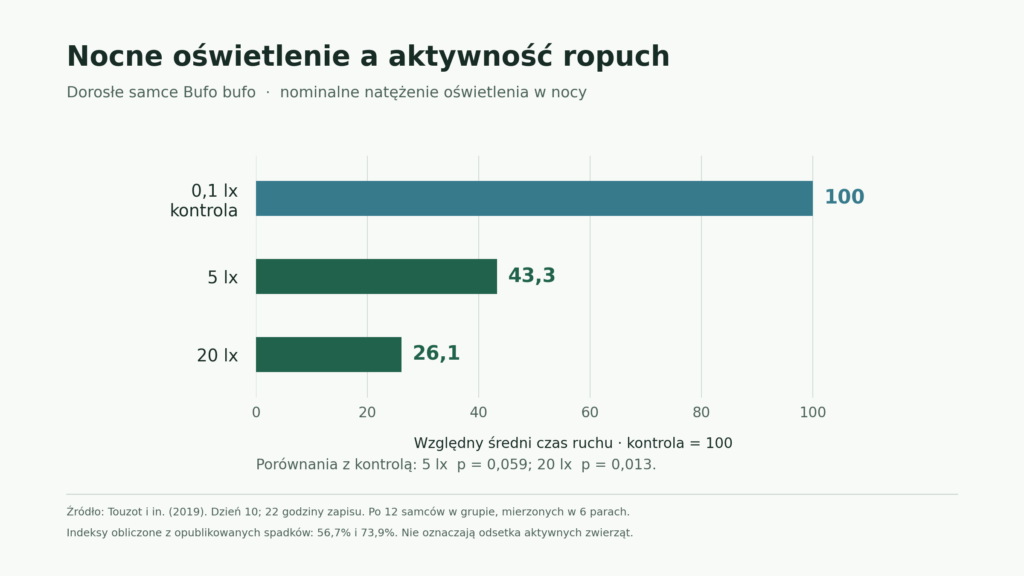
Dananay i Benard obserwowali rozwój Anaxyrus americanus w doświadczeniu obejmującym wodne mesokosmosy oraz terraria. Sztuczne światło w nocy skracało czas samej metamorfozy, natomiast po przeobrażeniu ograniczało wzrost młodych. Wykazano również zmiany aktywności. W pierwszym etapie nie uzyskano dowodów, że wpływ światła na rozwój wynikał z badanych zmian interakcji ekologicznych lub kolonizacji zbiorników. Rozróżnienie czasu metamorfozy i całego okresu larwalnego jest tutaj zasadnicze: nie są to zamienne wielkości. Przykład uzasadnia także śledzenie skutków po przejściu do kolejnego etapu życia, zamiast kończenia oceny w chwili opuszczenia wody. [197]
Cronin, Smit i Halfwerk sprawdzili łączne oddziaływanie światła i hałasu na Engystomops pustulosus, udostępniając sztuczne miejsca rozrodu w lesie tropikalnym. Hałas opóźniał nocne pojawianie się samców, a sztuczne światło zwiększało prawdopodobieństwo serii nawoływań. Nie wykazano przyciągania ani odstraszania żab od tych miejsc przez badane bodźce. Zmiana dotyczyła więc przede wszystkim czasu i przebiegu aktywności, a nie przestrzennego wyboru stanowiska. To ważny przykład dla interpretacji kontroli terenowych: obecność zwierząt w zbiorniku nie wyklucza zmiany ich zachowania. Jednocześnie kierunki reakcji na różne bodźce nie muszą być takie same. [198]
Sól drogowa i rozród w niewielkich zbiornikach
Karraker, Gibbs i Vonesh połączyli inwentaryzację, doświadczenia i modelowanie populacji Ambystoma maculatum oraz Rana sylvatica w regionie Adirondack w stanie Nowy Jork. W doświadczeniach zwiększone zasolenie ograniczało przeżycie zarodków i larw, a reakcje obu gatunków różniły się. Zagęszczenie pakietów jaj w terenie lepiej wyjaśniała bliskość drogi niż samo zasolenie. Wynik przestrzenny nie pozwala więc przypisać całego wpływu drogi jednemu czynnikowi chemicznemu. W modelach konsekwencje dla populacji zależały również od zależności przeżywania larw od ich zagęszczenia. Wnioski z konkretnego układu zbiorników nie wyznaczają uniwersalnej odległości ochronnej przy wszystkich drogach. [199]
Czy populacja może częściowo przystosować się do takich warunków? Brady wykorzystał wzajemne przenoszenie wczesnych stadiów Ambystoma maculatum między zbiornikami leśnymi i przydrożnymi. Środowisko przydrożne pogarszało wyniki rozwoju, a jednocześnie populacje pochodzące z takich miejsc wykazywały lokalne przystosowanie. Oba stwierdzenia są zgodne: względna przewaga organizmów miejscowych nie oznacza, że szkodliwe oddziaływanie zniknęło. Badanie porównywało całe środowiska przydrożne, dlatego jego wniosku o przystosowaniu nie należy automatycznie utożsamiać z eksperymentalnym wyizolowaniem wpływu jednego rodzaju soli. [200]
Hopkins, French i Brodie badali z kolei jaja Taricha granulosa pochodzące od różnych samic jednej populacji. Zarówno chlorek sodu, jak i chlorek magnezu pogarszały przeżycie i rozwój zarodków, ale siła wpływu zależała od rodziny. Zmienność ta wskazuje na możliwość działania doboru, nie stanowi jednak sama w sobie dowodu, że przystosowanie już zaszło w naturalnych populacjach. Warto zachować tę różnicę: doświadczenie wykazujące odmienne reakcje rodzin odpowiada na inne pytanie niż wielopokoleniowa obserwacja zmiany ich częstości albo porównanie lokalnego dostosowania populacji. [201]
Pestycydy i współwystępowanie czynników
Relyea i Mills testowali karbaryl na kijankach Hyla versicolor. Wydłużenie ekspozycji w stosunku do krótkich testów ostrej toksyczności oraz obecność sygnałów drapieżnika zwiększały śmiertelność w badanych warunkach. Drapieżnik nie musiał zjadać kijanek, aby zmienić rezultat doświadczenia z substancją chemiczną. Praca pokazuje znaczenie tła biologicznego, czasu działania i interakcji między czynnikami. Jej wyniku nie można przenieść wprost na każdy pestycyd, wszystkie stężenia ani każdy gatunek płaza. Nie podaje również bieżącego poziomu skażenia dowolnego zbiornika; do takiej oceny potrzebny byłby osobny pomiar ekspozycji w terenie. [202]
Cothran, Brown i Relyea porównali wrażliwość populacji Lithobates sylvaticus na dwa środki. Populacje położone bliżej obszarów rolniczych były bardziej tolerancyjne wobec chloropiryfosu, lecz podobnego związku nie stwierdzono dla badanego preparatu Roundup. W sprawdzonych warunkach konkurencji i zagrożenia ze strony drapieżnika nie wykazano kosztu tej odporności. Jest to wynik o określonym zakresie, a nie potwierdzenie braku wszelkich kosztów. Zależność od odległości od rolnictwa miała charakter korelacyjny. Artykuł wspiera hipotezę odpowiedzi ewolucyjnej, ale sam wzorzec przestrzenny nie odtwarza historii selekcji każdej badanej populacji. [203]
| Przykład | Wynik pomiaru | Zakres wniosku |
|---|---|---|
| Żaba leśna i hałas | Kortykosteron oraz ruch ku chórowi samców. [194] | Reakcja fizjologiczna i zachowanie podczas rozrodu. |
| Ropucha szara i światło | Czas ruchu par dorosłych samców. [196] | Aktywność w konkretnym doświadczeniu. |
| Anaxyrus americanus i światło | Przebieg metamorfozy oraz wzrost młodych. [197] | Różne etapy życia i różne miary rozwoju. |
| Taricha granulosa i sól | Przeżycie oraz rozwój jaj różnych rodzin. [201] | Zróżnicowanie wrażliwości w jednej populacji. |
| Hyla versicolor i karbaryl | Przeżycie przy różnej ekspozycji i sygnałach drapieżnika. [202] | Interakcja badanych czynników. |
| Żaba leśna i agrochemikalia | Tolerancja wobec dwóch środków. [203] | Zależność przestrzenna różna dla obu środków. |
Zestawienie nie służy do porównywania wielkości efektów między pracami: zastosowano odmienne organizmy, ekspozycje i miary odpowiedzi.
Jak łączyć wyniki w ocenę siedliska
Praktyczny sens tych przykładów polega na doborze pytania do metody. Aby sprawdzić zmianę zachowania, potrzebna jest obserwacja aktywności w odpowiedniej porze; aby ocenić rozród, sam zapis nawoływania nie wystarczy. Z kolei wynik krótkiego doświadczenia chemicznego trzeba zestawić z czasem i poziomem ekspozycji w rzeczywistym zbiorniku. To zasady interpretacji przedstawionych prac, nie nowy zbiorczy wynik liczbowy. Przy porównywaniu badań najlepiej zapisywać osobno gatunek, stadium rozwoju, warunki kontrolne, jednostkę obserwacji oraz czas trwania doświadczenia. Tak uporządkowane informacje pozwalają rozpoznać, które różnice wynikają z biologii organizmów, a które mogą wynikać z konstrukcji pomiaru.
Rozdział 24Co działa w ochronie i jak mierzyć efekty
Sieć miejsc rozrodu może odwracać lokalne trendy
Ochrona płazów ma udokumentowane sukcesy. Moor i współautorzy ocenili dwadzieścia lat monitoringu programu tworzenia stawów w szwajcarskim kantonie Argowia. W latach 1999–2019 liczba zajętych zbiorników wzrosła dla 10 z 12 badanych gatunków, pozostała stabilna dla jednego i spadła dla jednego. Wynik pokazuje znaczenie długotrwałych działań prowadzonych w skali krajobrazu. Miernikiem była tu liczba zajętych stanowisk, a nie bezpośrednia liczba wszystkich osobników. Nie należy więc przedstawiać tego rezultatu jako jednakowego wzrostu liczebności każdego gatunku. [204]

Warunki w zbiorniku również mają znaczenie. W trzech badanych jeziorach Sierra Nevada usunięcie wprowadzonych drapieżnych ryb umożliwiło wzrost zagęszczenia Rana muscosa i zasiedlanie sąsiednich siedlisk. Wniosek dotyczy odbudowy ekosystemów pierwotnie bezrybnych. Nie uzasadnia usuwania rodzimych ryb z dowolnego jeziora. Działanie ochronne musi odpowiadać historii siedliska, rozpoznanej presji i wymaganiom gatunków, dla których jest prowadzone. [205]
| Działanie | Co sprawdzać po wdrożeniu |
|---|---|
| Odtwarzanie sieci zbiorników | Czy gatunki zasiedlają nowe miejsca i utrzymują się w kolejnych latach? [204] |
| Ogrodzenia i przejścia pod drogami | Czy maleje śmiertelność oraz czy zwierzęta skutecznie przechodzą między siedliskami? [183] |
| Usuwanie presji obcych ryb | Czy zabieg dotyczy naturalnie bezrybnego siedliska i czy populacja płazów odpowiada na zmianę? [205] |
| Higiena sprzętu terenowego | Czy stosuje się aktualny protokół odpowiedni dla możliwych patogenów? [206] |
| Regularny monitoring | Czy uwzględniono gatunek, porę kontroli, warunki i prawdopodobieństwo wykrycia? [207] |
Tabela syntetyzuje cele i sposób oceny działań. Nie jest instrukcją samodzielnego przenoszenia zwierząt ani przebudowy siedlisk.
W profilaktyce chorób ważna jest higiena obuwia, siatek i innego sprzętu przenoszonego między stanowiskami. Odpowiedni protokół zależy od patogenu, materiału i warunków użycia. Bletz i współautorzy zwracają uwagę, że parametry skuteczne wobec Bsal mogą różnić się od starszych zaleceń. Dlatego warto korzystać z aktualnych instrukcji instytucji prowadzącej prace terenowe, zamiast przyjmować jedną domową recepturę dezynfekcji za uniwersalną. [206]
Od pojedynczej obserwacji do monitoringu
Brak płaza podczas pojedynczej kontroli nie dowodzi zaniku populacji. USGS ARMI wskazuje, że surowe liczenia mogą prowadzić do błędnych wniosków, jeżeli pomija się prawdopodobieństwo wykrycia. Zależy ono między innymi od terminu, miejsca, obserwatora i warunków. Rzetelny monitoring planuje powtarzane badania, określa, co mierzy, i odróżnia zmianę wykrywalności od zmiany stanu populacji. Takie podejście pozwala oceniać zarówno zagrożenia, jak i skuteczność ochrony. [207]
Ostrożności wymaga również określenie „bioindykator”. W badaniu traszki grzebieniastej jej obecność wiązała się z większą różnorodnością roślin wodnych, lecz nie z różnorodnością makrobezkręgowców. Obserwacja płazów jest cenna, ale sama nie stanowi certyfikatu czystości wody ani pełnej oceny ekosystemu. Najbardziej użyteczne są wskaźniki o sprawdzonym znaczeniu, interpretowane wraz z innymi danymi biologicznymi i środowiskowymi. [208]
Znaczenie płazów wykracza poza ich własne przetrwanie. W badaniu tropikalnego potoku zanikowi większości biomasy kijanek towarzyszyły zmiany ilości glonów, drobnej materii organicznej i obiegu azotu. Wyniki Whilesa i współautorów pokazują, że utrata płazów może zmieniać działanie całego ekosystemu. Jest to dowód z konkretnego miejsca, a nie uniwersalny przelicznik dla wszystkich rzek; dobrze jednak wyjaśnia, dlaczego ochronę gatunków warto łączyć z ochroną procesów ekologicznych. [209]
Rozdział 25Jak oceniać siedlisko płazów w krajobrazie
Znaczenie przestrzeni pomiędzy zbiornikami
Krajobraz wokół stawu jest częścią warunków życia populacji. Joly i współautorzy, badając trzy europejskie gatunki traszek, stwierdzili związek ich liczebności z udziałem gruntów uprawnych i szerokością nieuprawianego terenu łączącego zbiornik z lasem. Znaczenie miała również liczba zbiorników w otoczeniu. Wynik pomaga uporządkować ocenę terenową: warto oglądać jednocześnie wodę, dostępne siedliska lądowe i możliwość przemieszczania się między nimi. Nie wystarczy uznać, że dowolny wąski pas zieleni zapewnia skuteczne połączenie. Badanie wspiera uwzględnianie rzeczywistej struktury terenu, ale nie wyznacza uniwersalnej szerokości korytarza właściwej dla każdego gatunku i miejsca w Polsce. [210]
Podobnie odległość w linii prostej nie opisuje całej dostępności sąsiedniego siedliska. Zanini i współautorzy porównali modele występowania dwóch gatunków płazów oparte na kołowych obszarach wokół stawów z modelami uwzględniającymi bariery. Włączenie barier poprawiało objaśnienie rozmieszczenia. Praktyczny wniosek jest konkretny: szkic otoczenia powinien pokazywać przebieg dróg i inne potencjalne przeszkody, a nie tylko promień od zbiornika. Dwa stawy położone blisko siebie na mapie mogą mieć różną dostępność dla zwierząt. Sama narysowana strzałka między nimi nie jest dowodem funkcjonowania połączenia; stanowi hipotezę wymagającą oceny w terenie. [211]
Stawy rybne nie są jednakowe
Obecność ryb należy rozpatrywać wraz z gatunkiem płaza i sposobem użytkowania wody. Badanie stawów karpiowych we wschodniej Polsce wykazało, że skład zespołu płazów, oceniany na podstawie larw, wiązał się szczególnie z wiekiem obsady ryb oraz hydroperiodem. Stawy z karpiami z bieżącego rocznika skupiały więcej taksonów płazów niż stawy ze starszymi rybami. To ważne uzupełnienie prostego podziału na wodę „z rybami” i „bez ryb”: pod jedną nazwą stawu hodowlanego kryją się różne warunki. Wynik nie uzasadnia zarybiania miejsc rozrodu płazów; wskazuje, jakie cechy istniejącej gospodarki stawowej trzeba rozpoznać przed sformułowaniem wniosków ochronnych. [212]
Hydroperiod oznacza czas utrzymywania się wody, ale znaczenie ma także moment, w którym woda staje się dostępna. Kloskowski i Nieoczym porównali stawy we wschodniej Polsce napełniane wczesną wiosną z napełnianymi później. W zbiornikach zalewanych na początku maja nie odnotowali gatunków przystępujących wcześnie do rozrodu, obecnych przy wcześniejszym napełnianiu. W stawach z karpiami w pierwszym roku życia nie stwierdzono jednak istotnej różnicy w ogólnej różnorodności płazów między terminami napełniania. To dobry przykład, dlaczego jedna liczba może ukrywać zmianę składu zespołu. Ocena miejsca powinna odpowiadać na pytanie, dla których gatunków i stadiów jest ono dostępne. Sama obecność wody podczas letniej wizyty nie mówi, czy mogły skorzystać z niej płazy rozmnażające się wcześniej. [213]
Ocena przydatności nie potwierdza zasiedlenia
Wskaźnik przydatności siedliska, HSI, porządkuje cechy zbiornika, ale nie daje pewnego rozstrzygnięcia o jego zasiedleniu. Buxton, Tracey i Downs przeanalizowali dane z 489 zbiorników w północno-zachodniej Anglii badanych pod kątem traszki grzebieniastej. Nie znaleźli podstaw do wykluczania obecności gatunku wyłącznie z powodu niskiej wartości HSI. W praktyce określenie „nieoptymalny staw” nie jest równoznaczne z „traszki tu nie występują”. Podobnie korzystny wygląd siedliska nie stanowi potwierdzenia obecności. Rozdzielenie tych dwóch ocen jest szczególnie ważne przy porównywaniu stanowisk: jedna opisuje warunki środowiska, druga dowody dotyczące zwierząt. Model zbudowany dla traszki grzebieniastej nie powinien też automatycznie stawać się rankingiem wartości miejsca dla wszystkich płazów. [214]
Notatka terenowa możliwa do zweryfikowania
Użyteczna karta obserwacji oddziela zapis zdarzenia od późniejszej identyfikacji. Taką logikę wspiera standard danych przyrodniczych Darwin Core, przewidujący osobne informacje o miejscu, niepewności lokalizacji, osobie oznaczającej, wątpliwościach i weryfikacji oznaczenia. Poniższy układ jest propozycją redakcyjną do własnych notatek. Ułatwia przekazanie ekspertowi materiału, w którym wiadomo, co zaobserwowano, a co dopiero wymaga rozstrzygnięcia. [215]
| Pole notatki | Co zapisać i po co |
|---|---|
| Miejsce i czas | Identyfikator zbiornika, współrzędne z oszacowaniem niepewności, data i godzina. Pozwalają wrócić do właściwego zdarzenia. [215] |
| Dowód i oznaczenie | Zdjęcie lub nagranie, proponowana nazwa, widoczne cechy, autor oznaczenia i ewentualna późniejsza weryfikacja. [215] |
| Zdarzenie sezonowe | Dorosły osobnik, głosy albo skrzek; przy pomiarze temperatury także sposób pomiaru. Zachować porównywalność między wizytami. [158] |
| Dostępność siedliska | Obecność wody, znane terminy napełniania i przesychania. Pozwala ocenić zgodność z okresem rozrodu interesujących gatunków. [213] |
| Otoczenie | Zaznaczone na szkicu siedliska lądowe, inne zbiorniki i bariery. Pomaga ocenić dostępność, nie tylko geometryczną bliskość. [211] |
Układ autorski; nie zastępuje metodyk państwowego monitoringu ani dokumentacji wymaganej w konkretnym badaniu.
Rozdział 26Jak bada się płazy i interpretuje wyniki
Różne miary stanu populacji
Zajętość stanowisk, określana jako occupancy, opisuje udział miejsc zasiedlonych przez gatunek. Liczebność dotyczy osobników. Model MacKenziego i współautorów rozdziela prawdopodobieństwo zasiedlenia od prawdopodobieństwa wykrycia zwierzęcia, które jest obecne. Powtarzane kontrole dostarczają informacji o tym drugim procesie. Dlatego wzrost odsetka stanowisk z obserwacją może wynikać zarówno ze zmiany rozmieszczenia, jak i z łatwiejszego wykrywania. Sam zapis „nie stwierdzono” nie rozstrzyga, który mechanizm wystąpił. [216]
Do oszacowania liczby osobników można wykorzystywać historie odłowów i ponownych spotkań rozpoznawalnych zwierząt. Takie badania pozwalają analizować również przeżywalność, lecz wymagają odpowiednich modeli i większego nakładu pracy. Bower i współautorzy przez pięć lat porównywali sześć sposobów monitorowania Litoria aurea w Sydney Olympic Park. Tylko kontrole obejmujące odłów napotkanych żab wykryły jednocześnie spadek zajętości, względnej liczebności i dopływu młodych do populacji. Uzyskany wskaźnik liczebności korelował z oszacowaniami z metody znakowania i ponownego odłowu. Wynik uzasadnia dobieranie pomiaru do pytania: samo zarejestrowanie dorosłych, stwierdzenie kijanek i udokumentowanie nowych młodocianych osobników dostarczają różnych informacji. Skuteczność konkretnego wskaźnika trzeba sprawdzić dla badanej populacji, zamiast przenosić ją automatycznie między gatunkami. [217]
| Podejście | Najbardziej bezpośrednia informacja | Granica interpretacji |
|---|---|---|
| Powtarzane kontrole stanowisk | Występowanie z uwzględnieniem wykrywalności | Nie daje automatycznie liczby osobników. [216] |
| Znakowanie i ponowny odłów | Historie spotkań rozpoznawanych osobników | Oszacowanie wymaga modelu oraz wystarczających danych. [217] |
| eDNA w wodzie | Wykrycie materiału genetycznego gatunku | Wysoka wykrywalność nie oznacza dokładnego liczenia zwierząt. [218] |
| Rejestracja głosów | Aktywność odzywających się samców | Głośność lub liczba głosów mogą rozmijać się z liczebnością. [219] |
| Obserwacja rozrodu i potomstwa | Aktywność rozrodcza oraz wynik kolejnych etapów rozwoju | Więcej złożeń jaj nie musi oznaczać więcej młodych. [220] |
Metody odpowiadają na różne pytania; tabela nie stanowi uniwersalnego rankingu ich jakości.
Przykład rachunkowy porządkuje znaczenie powtórzeń. Przy założonym prawdopodobieństwie wykrycia p = 0,5 w pojedynczej kontroli szansa co najmniej jednego wykrycia po trzech niezależnych kontrolach wynosi 1 − (1 − 0,5)³ = 0,875, czyli 87,5%. Wzór ten zakłada obecność gatunku przez cały okres obserwacji i niezmienne p. W rzeczywistym monitoringu warunki te wymagają sprawdzenia; wykres ilustruje rachunek prawdopodobieństwa, a nie zalecaną liczbę wizyt dla dowolnego płaza.
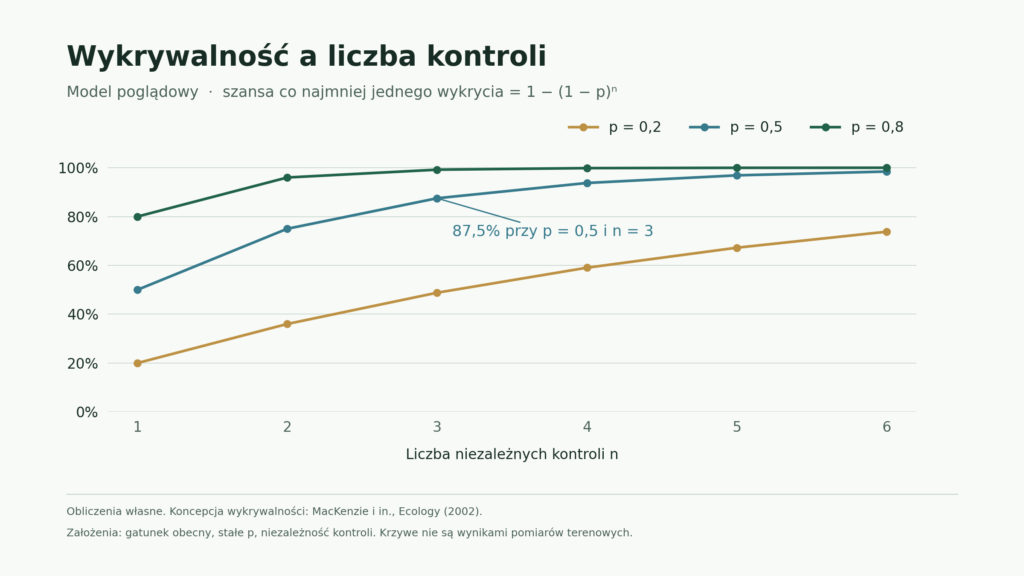
Interpretacja środowiskowego DNA
Środowiskowe DNA, czyli eDNA, to materiał genetyczny pozostawiony w otoczeniu. Biggs i współautorzy porównali jego wykrywanie z metodami terenowymi w 35 brytyjskich stawach zasiedlonych przez traszkę grzebieniastą. Cztery kontrole każdego stawu dały 140 wizyt; eDNA wykazało obecność podczas 139, czyli 99,3%. Wynik dotyczy znanych stanowisk w sezonie rozrodczym i określonego protokołu. Sygnał eDNA nie okazał się natomiast wiarygodnym, stałym przelicznikiem liczby traszek. [218]
Odczyt zależy od tego, jak szybko zwierzę uwalnia DNA, jak materiał rozprasza się w środowisku i jak długo pozostaje wykrywalny. Pilliod i współautorzy badali te procesy u Dicamptodon aterrimus. W eksperymencie z próbkami przechowywanymi na słońcu i w cieniu stężenie spadło po trzech dniach poniżej 1% wartości początkowej, ale dalsza wykrywalność różniła się między warunkami. W osobnym eksperymencie w potokach sygnał po usunięciu zwierząt przestawał być wykrywalny w ciągu godziny. Nie wyznacza to uniwersalnej „daty ważności” eDNA: autorzy pokazali zależność od środowiska, zagęszczenia i czasu przebywania zwierząt. Dodatni wynik dokumentuje sygnał genetyczny w próbce, a jego czasową i przestrzenną interpretację trzeba powiązać z miejscem poboru oraz charakterem badanego zbiornika lub cieku. [221]
Kontrola wiarygodności obejmuje również etap laboratoryjny. W pracy metodycznej Ficetoli i współautorów, łączącej symulacje z danymi empirycznymi dotyczącymi metabarkodingu, powtarzanie analiz ograniczało wyniki fałszywie ujemne. Autorzy uwzględnili także wyniki fałszywie dodatnie związane z błędami analizy DNA. Wymagana liczba powtórzeń zależała od wykrywalności; nie była jedną stałą wartością właściwą dla każdego projektu. Metabarkoding wykorzystuje analizę sekwencji do rozpoznawania wielu taksonów i nie jest tożsamy z testem ukierunkowanym na jeden gatunek. W raporcie trzeba zatem zdefiniować próbkę, powtórzenie i wynik dodatni. Wielokrotne analizowanie jednej porcji wody nie zastępuje automatycznie pobrania materiału z innych miejsc. Są to różne poziomy informacji o badanym środowisku. [222]
Rejestracja aktywności głosowej
Automatyczne rejestratory pozwalają śledzić porę odzywania się samców i zmiany aktywności w sezonie. W badaniu ropuchy zielonej w Poznaniu Kaczmarski i współautorzy porównali nagrania z liczeniami terenowymi. Algorytm wykrywał 36% rzeczywistych głosów, a 96% jego wskazań było poprawnych. Pierwsza miara opisuje kompletność wykrywania, druga trafność wskazań; nie wolno ich zamieniać. Wskaźniki akustyczne odzwierciedlały przebieg aktywności rozrodczej, lecz nie wykazywały istotnej korelacji z liczbą samców obserwowanych w terenie. Nagrania stanowiły więc użyteczne źródło danych o obecności i fenologii, a ograniczone źródło danych o liczebności. Ciche samce i pozostałe części populacji nie są reprezentowane w taki sam sposób jak aktywni uczestnicy chóru. [219]
Ocena skuteczności działań ochronnych
Schemat BACI łączy porównanie okresów przed interwencją i po niej z obserwacją miejsc objętych działaniem oraz miejsc kontrolnych. Tak zaplanowano badanie odtwarzania leśnych torfowisk w Estonii, prowadzone w latach 2014–2020. Soomets i współautorzy śledzili reakcję żaby moczarowej i trawnej na zmiany odwodnienia oraz zwarcia drzew. Po początkowym osłabieniu aktywności rozrodczej nastąpiło jej zwiększenie, lecz liczba potomstwa nie wykazała równie wyraźnej odpowiedzi i silnie zmieniała się między latami. To istotna różnica między atrakcyjnością miejsca do składania jaj a jego wkładem w odnawianie populacji. Ocena interwencji wymaga zatem odpowiednio długiej obserwacji efektów biologicznych. Sam wzrost poziomu wody albo pojawienie się skrzeku nie opisuje jeszcze całego rezultatu odtwarzania siedliska. [220]
Rozdział 27Odpowiedzialna obserwacja i dokumentowanie płazów
Najbardziej użyteczna obserwacja nie musi kończyć się pewną nazwą gatunku. Zdjęcie wykonane bez chwytania, data, lokalizacja i krótki opis siedliska tworzą wartościową dokumentację. Atlas IOP PAN przyjmuje również zgłoszenia od osób niepewnych oznaczenia; eksperci mogą zweryfikować dostarczony materiał. Przy rzekotkach lub żabach zielonych pozostawienie ostrożnego oznaczenia grupy jest lepsze niż dodanie pozornej precyzji. [223] [128] [129]
Liczba zgłoszeń w bazie obserwacji nie jest automatycznie miarą liczebności zwierząt. Zależy także od liczby obserwatorów, dostępności terenu, aktywności gatunku i możliwości jego rozpoznania. Podobnie brak wpisu na mapie nie dowodzi nieobecności płaza. To podstawowa zasada interpretacji takich danych: mapa dokumentuje zgromadzone stwierdzenia, a nie kompletny spis wszystkich osobników. Nie należy więc na jej podstawie budować rankingu „najrzadszych płazów Polski”.
Pomoc wymaga znajomości biologii gatunku. RDOŚ w Łodzi zwraca uwagę, że nie każdy wysychający zbiornik uzasadnia przenoszenie skrzeku: rozród w wodach okresowych jest naturalną strategią części płazów. Nieodpowiednio dobrane miejsce docelowe, uszkodzenie jaj lub przeniesienie patogenów mogą pogorszyć sytuację. Zamiast samodzielnie przesiedlać zwierzęta i ich formy rozwojowe, należy uzgodnić planowaną interwencję z właściwym RDOŚ lub organizatorem uprawnionej akcji ochronnej. [224]
Równie istotne jest ograniczanie przenoszenia chorób między stanowiskami. GDOŚ zaleca odpowiednie środki ostrożności podczas badań i monitoringu, obserwowanie stanu zdrowia populacji oraz informowanie regionalnych dyrekcji o niepokojących zdarzeniach. Wypuszczanie zwierząt hodowlanych do środowiska nie jest sposobem wspierania lokalnych płazów: może wprowadzać obce organizmy i patogeny. Dobrym wkładem obserwatora jest rzetelna dokumentacja i udział w działaniach prowadzonych przez przygotowany zespół. [225]
Rozdział 28Najczęstsze pytania o płazy
Czy ropucha jest płazem bezogonowym?
Tak. Ropuchy należą do bezogonowych, podobnie jak żaby i rzekotki. Nazwa zwyczajowa nie jest odpowiednikiem rzędu. [26]
Czy każdy płaz zaczyna życie jako kijanka?
Nie. Kijanka jest larwą płaza bezogonowego, a część bezogonowych ma rozwój bezpośredni. Larw traszek nie określa się precyzyjnie tym samym terminem. [90] [28]
Czy płazy beznogie są wężami?
Nie. Gymnophiona należą do płazów. Podobna wydłużona sylwetka nie oznacza przynależności do węży, które są gadami. [8]
Czy dorosły aksolotl jest larwą?
Aksolotl może być dojrzały rozrodczo mimo zachowania cech larwalnych. Prawidłowym określeniem tego zjawiska jest paedomorfoza. [36]
Czy wszystkie płazy żyją w wodzie?
Nie. Istnieją płazy silnie związane z lądem, a gatunki o rozwoju bezpośrednim mogą rozmnażać się bez wolno żyjącej larwy wodnej. Nadal potrzebują właściwych warunków wilgotnościowych. [28]
Czy wzrost liczby opisanych gatunków oznacza poprawę ich sytuacji?
Nie. Odkrycia i zmiany klasyfikacji opisują stan wiedzy. Trend populacji oraz ryzyko wyginięcia wymagają odrębnych danych. [2]
Dalej w atlasieGatunki i tematy z tego opracowania
Hasła gatunków omawianych w kompendium, z wymiarami, występowaniem i mapą.
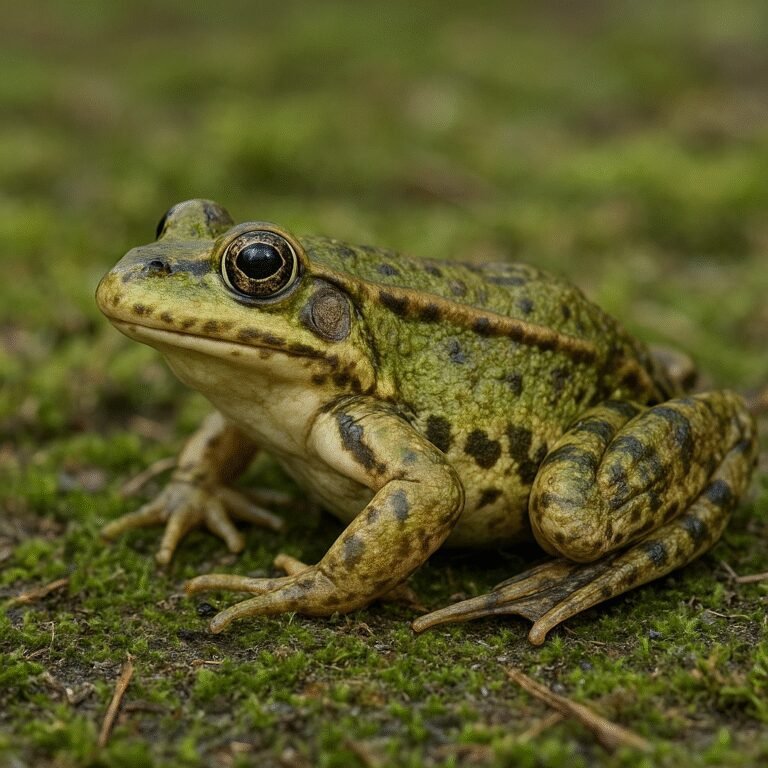
Żaba trawna
Rana temporaria
Aksolotl meksykański
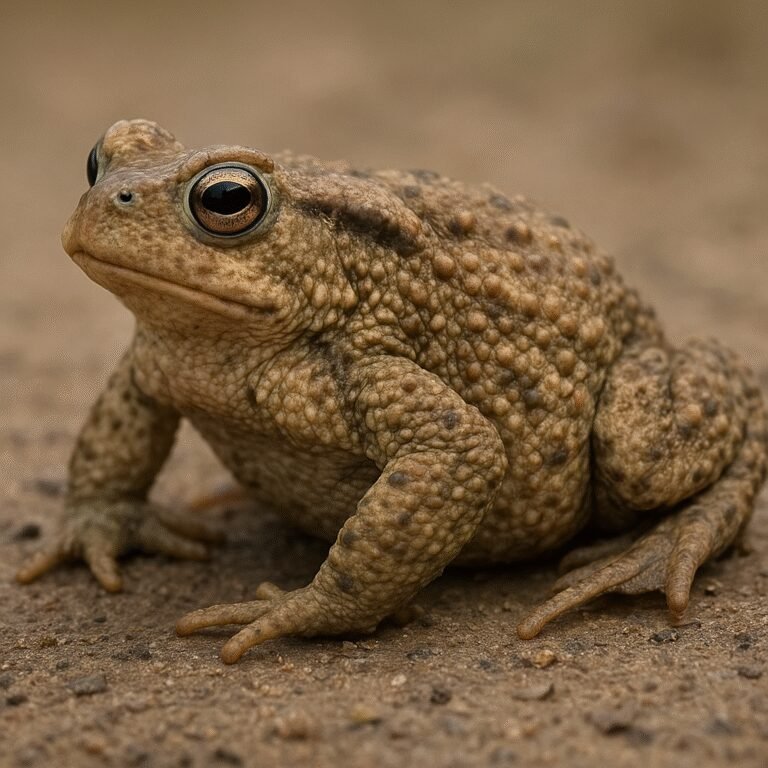
Pipa zwyczajna
Pipa pipa
Żaba goliat
Conraua goliath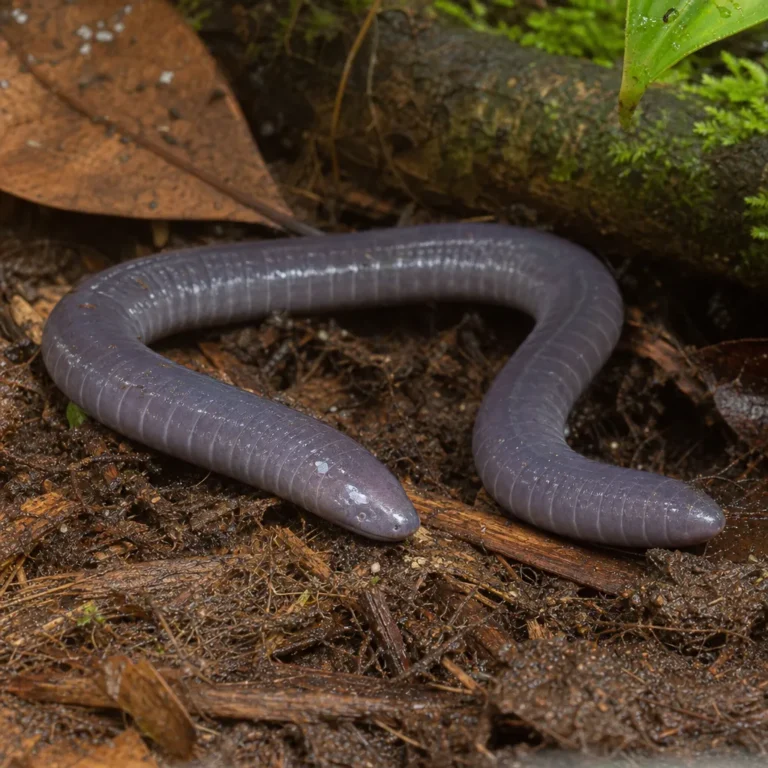
Cecylia brazylijska
Siphonops annulatus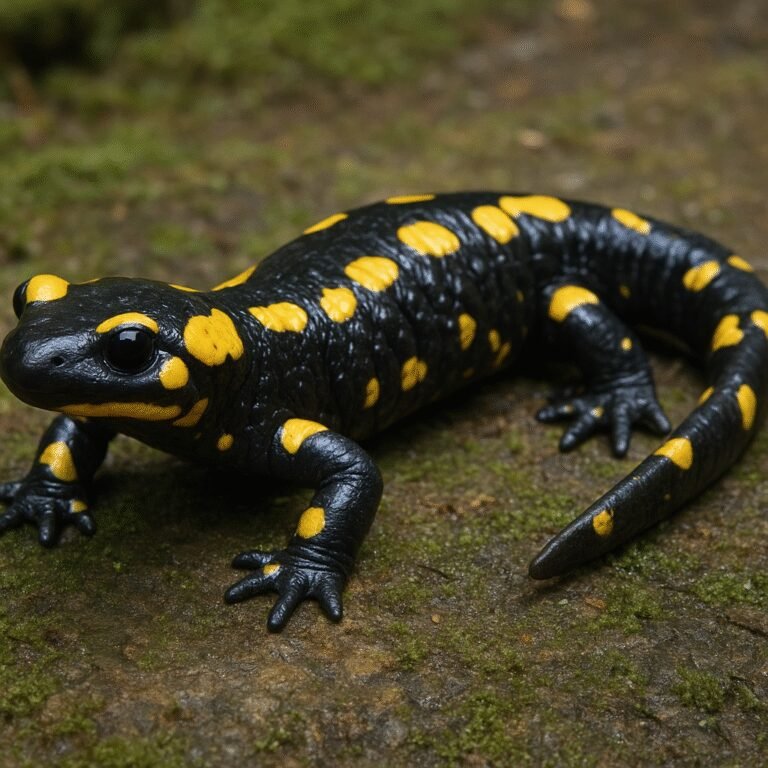
Salamandra czarna
Salamandra salamandra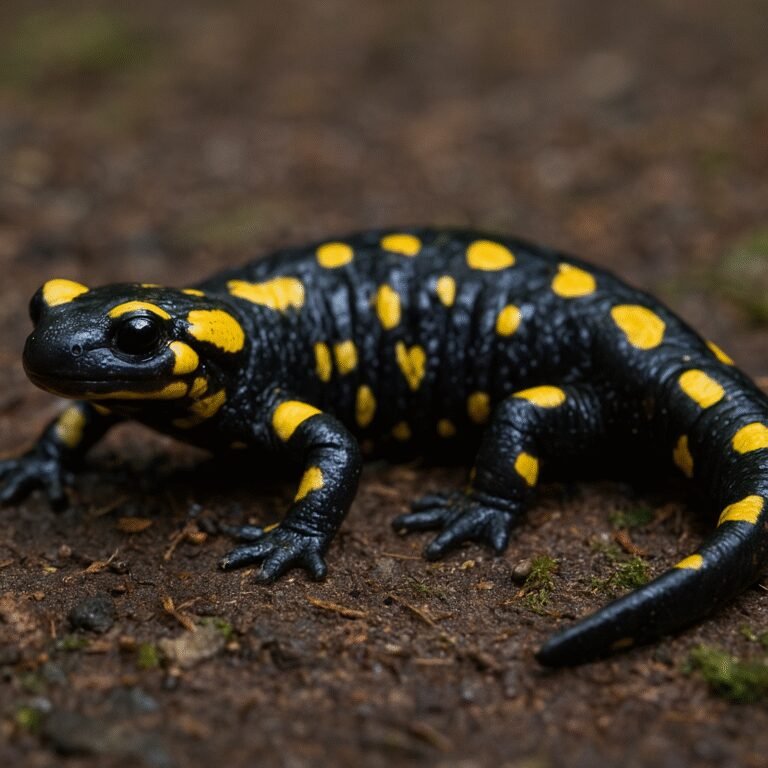
Salamandra plamista
Żaba indyjska purpurowa
Nasikabatrachus sahyadrensisRodziny w atlasie
Przeglądaj dalej
- Wszystkie hasła: płazy
- Płazy występujące w Polsce
- Quiz: płazy
- Oś czasu: dinozaury i zwierzęta wymarłe
- Porównaj dwa gatunki
Inne kompendia
Rozdział 29Słownik najważniejszych pojęć
| Pojęcie | Znaczenie |
|---|---|
| Takson | Jednostka klasyfikacji, na przykład gatunek, rodzaj lub rodzina. [226] |
| Rząd | Ranga klasyfikacji wyższa od rodziny; Anura to rząd. [226] |
| Rodzaj | Ranga obejmująca jeden lub więcej gatunków; Rana to rodzaj. [226] |
| Gatunek kryptyczny | Gatunek trudny do odróżnienia od podobnych form samym wyglądem. [128] |
| Metamorfoza | Przeobrażenie związane z przebudową organizmu. [94] |
| Rozwój bezpośredni | Rozwój bez wolno żyjącego stadium larwalnego; młody osobnik wykluwa się w postaci podobnej do dorosłej. [28] |
| Paedomorfoza | Zachowanie części cech młodocianych u osobnika dojrzałego rozrodczo. [36] |
| Ektotermia | Przewaga środowiskowych źródeł ciepła w bilansie cieplnym zwierzęcia. [89] |
| Estywacja | Ograniczenie aktywności w okresie niekorzystnym, zwykle gorącym lub suchym. [113] |
| Endemit | Gatunek naturalnie ograniczony do określonego obszaru. |
| Klepton | Termin używany dla niektórych jednostek o pochodzeniu mieszańcowym i szczególnym sposobie rozrodu. [129] |
| Stanowisko | Miejsce stwierdzenia lub monitorowania zwierząt; liczba stanowisk nie jest liczbą osobników. [207] |
| Filogeneza | Historia pokrewieństwa linii ewolucyjnych. |
| Gatunek siostrzany | Gatunek dzielący z drugim najbliższego wspólnego przodka w danym drzewie. |
| Delimitacja gatunków | Ustalanie granic między gatunkami na podstawie określonych kryteriów i danych. |
| Fenologia | Sezonowy przebieg zdarzeń biologicznych, na przykład migracji lub rozrodu. |
| Hydroperiod | Czas utrzymywania się wody w danym siedlisku. |
| eDNA | Materiał genetyczny obecny w próbce środowiskowej, na przykład wody. |
| Wykrywalność | Prawdopodobieństwo wykrycia gatunku pod warunkiem jego obecności. |
| Zajętość stanowisk | Udział lub prawdopodobieństwo zasiedlenia określonych jednostek przestrzennych. |
| Rekrutacja | Dopływ nowych osobników do zdefiniowanej części populacji. |
| Blastema | Zespół komórek uczestniczących w odtwarzaniu utraconej struktury podczas regeneracji. |
| Mikrobiom | Zespół mikroorganizmów i ich materiału genetycznego związanych z określonym środowiskiem lub gospodarzem. |
| BACI | Porównanie zmian przed działaniem i po nim z równoległymi zmianami na obszarze kontrolnym. |
| Plastyczność rozwojowa | Zdolność zmiany przebiegu rozwoju w odpowiedzi na warunki środowiska. [45] |
| Feromon | Sygnał chemiczny oddziałujący na zachowanie lub fizjologię innych osobników tego samego gatunku. [102] |
| Larwiparia | Rodzenie larw, które kontynuują rozwój poza organizmem matki. [56] |
| Pueriparia | Rodzenie młodych, które zakończyły przeobrażenie przed opuszczeniem organizmu matki. [56] |
| Matrotrofia | Dostarczanie rozwijającemu się potomstwu składników odżywczych przez organizm matki, poza zapasem żółtka. [48] |
| Przeżywanie lokalne | Utrzymywanie się osobników w badanej populacji; oszacowanie może łączyć przeżycie z pozostawaniem na danym obszarze. [161] |
| Różnorodność beta | Zróżnicowanie składu gatunkowego między miejscami lub zespołami organizmów. [123] |
| Zmienność przeciwgradientowa | Dziedziczne różnice między populacjami przeciwdziałające bezpośredniemu wpływowi środowiska na badaną cechę. [120] |
| Genom | Całość materiału genetycznego organizmu; jego wielkość i długość komputerowego złożenia są odrębnymi miarami. [16] |
| Kontig | Ciągły fragment sekwencji uzyskany przez połączenie nakładających się odczytów podczas składania genomu. [17] |
| Scaffold | Struktura łącząca fragmenty złożenia genomu w większą całość; może zawierać luki. [16] |
| Allopoliploidia | Zwielokrotnienie zestawów chromosomów związane z połączeniem materiału różnych gatunków przodków. [19] |
| Homeologi | Odpowiadające sobie geny pochodzące z różnych subgenomów organizmu allopoliploidalnego. [19] |
| Heterogametyczność | Obecność dwóch różnych typów chromosomów płci u danej płci, na przykład XY albo ZW. [20] |
| ALAN | Sztuczne światło w nocy; skrót angielskiego określenia artificial light at night. [197] |
| Interakcja czynników | Sytuacja, w której wpływ jednego czynnika zależy od obecności lub poziomu drugiego. [202] |
Definicje skrócono do znaczenia potrzebnego w artykule. Kategorie IUCN omówiono w części o ochronie.
Rozdział 30Zakres danych i zasady interpretacji
Stan weryfikacji źródeł: 11 listopada 2026 r. Liczebność gatunków w trzech rzędach pochodzi z jednego zestawienia AmphibiaWeb datowanego na 10 listopada 2026 r. Dane o zagrożeniu mają własne daty i populacje odniesienia, wskazane w podpisach. Zestawienia atlasowe Polski i wykazy prawne pełnią inne funkcje niż światowa baza taksonomiczna i nie powinny być traktowane jako wymienne.
Przy udziale procentowym należy zawsze sprawdzić mianownik: wszystkie gatunki w danej bazie, gatunki ocenione, gatunki o dostatecznych danych czy przypadki pogorszenia kategorii. Wykres przyczyn pogorszenia nie przedstawia udziału danej presji wśród wszystkich płazów. Przedział związany z kategorią DD nie jest tym samym co statystyczny przedział ufności. Te różnice decydują o znaczeniu liczb.
Długości zwierząt wymagają zdefiniowania miary. SVL oznacza odległość od końca pyska do kloaki; nie obejmuje wyprostowanych kończyn. Wiek z modelu demograficznego nie jest wiekiem najstarszego zaobserwowanego osobnika. Wynik z jednej populacji lub eksperymentu nie jest automatycznie parametrem całego gatunku, a tym bardziej całej gromady.
Wykresy i schematy wykonano na potrzeby opracowania. Wykresy wykorzystują liczby z podanych źródeł; schematy są uproszczonymi objaśnieniami i nie przedstawiają wyników pomiarów. Sylwetki nie służą do oznaczania gatunków. W podpisach rozróżniono dane, obliczenia własne i ilustracje pojęć.
Odnośniki prowadzą do baz taksonomicznych, instytucji naukowych, publikacji badawczych i dokumentów urzędowych. Starszych publikacji użyto do udokumentowanych mechanizmów biologicznych, nie do odtwarzania aktualnej liczby gatunków. Bazy internetowe mogą zostać zaktualizowane po dacie opracowania. Przed kolejną publikacją tekstu należy odświeżyć przede wszystkim liczebności, oceny IUCN i przywołane przepisy.
Nowe przykłady empiryczne opisano wraz z jednostką pomiaru, badanym gatunkiem oraz zakresem przestrzennym i czasowym. Wykres wykrywalności jest jawnie oznaczonym przykładem rachunkowym. Przy metodzie eDNA rozdzielono wykrycie obecności od szacowania liczebności. W części ewolucyjnej wiek skamieniałości jest odróżniony od wieku rozdzielenia linii szacowanego w analizie filogenetycznej.
W wydaniu czwartym rozszerzono przegląd do dwudziestu wybranych rodzin. Dodano rozdziały o genomach i determinacji płci, chorobach zakaźnych oraz wpływie światła, hałasu i substancji chemicznych. Przy wynikach doświadczeń wskazano badane gatunki, miary odpowiedzi i ograniczenia wnioskowania. Zapis chromosomów na schemacie dotyczy układu opisanego w cytowanej pracy. Indeks nazw naukowych obejmuje organizmy omawiane w tekście, także nazwy z publikacji historycznych; nie jest pełnym wykazem gatunków płazów.
Indeks nazw naukowych
Indeks obejmuje nazwy organizmów występujące w tekście. Numery wskazują rozdziały. Zachowano także nazwy używane w starszych publikacjach; osobne wpisy nie oznaczają automatycznie odrębnych współcześnie uznawanych gatunków.
Agalychnis callidryas — 11
Alytes obstetricans — 8
Amazops amazops — 8
Ambystoma maculatum — 23
Ambystoma mexicanum — 4, 6, 10, 19
Ambystoma opacum — 8
Anaxyrus americanus — 23
Andrias japonicus — 8
Atelopus zeteki — 19
Batrachochytrium dendrobatidis — 21, 22
Batrachochytrium salamandrivorans — 21, 22
Bombina bombina — 16
Boulengerula taitana — 10
Boulengerula taitanus — 10
Bufo boreas — 18
Bufotes viridis — 16
Ceratophrys cornuta — 8
Ceratophrys cranwelli — 8
Conraua goliath — 5
Cyclorana platycephala — 13
Cynops pyrrhogaster — 11
Dendropsophus ebraccatus — 8
Dermatonotus muelleri — 8
Dermophis mexicanus — 7
Dicamptodon aterrimus — 26
Eleutherodactylus coqui — 5, 10
Engystomops pustulosus — 23
Ensatina eschscholtzii — 19
Epicrionops bicolor — 8
Fejervarya cancrivora — 13
Funcusvermis gilmorei — 3
Gambusia affinis — 22
Hyalinobatrachium fleischmanni — 12
Hyalinobatrachium valerioi — 8
Hydromantes platycephalus — 8
Hyla chrysoscelis — 22
Hyla cinerea — 11
Hymenochirus boettgeri — 8
Hynobius retardatus — 8
Ichthyophis cf. kohtaoensis — 7
Ichthyosaura alpestris — 16
Janthinobacterium lividum — 19
Leptodactylus fallax — 8
Lissotriton helveticus — 8
Lissotriton montandoni — 16
Lissotriton vulgaris — 16
Lithobates sylvaticus — 23
Litoria caerulea — 21
Litoria raniformis — 18
Mixophyes fasciolatus — 22
Nasikabatrachus sahyadrensis — 8
Nimbaphrynoides occidentalis — 8
Notophthalmus viridescens — 19, 22
Oophaga pumilio — 12
Osteopilus septentrionalis — 22
Paedophryne amauensis — 5
Paltothyreus tarsatus — 8
Pelophylax esculentus — 16
Pelophylax kl. esculentus — 16
Pelophylax lessonae — 16
Pelophylax ridibundus — 16
Phrynomantis microps — 8
Phyllobates terribilis — 5
Pipa pipa — 5
Plethodon cinereus — 8
Pleurodeles waltl — 4
Proteus anguinus — 6
Pseudhymenochirus merlini — 8
Rana sylvatica — 13, 14, 22, 23
Rana temporaria — 2, 8, 11, 14, 16, 17
Ranitomeya imitator — 8
Ranitomeya variabilis — 8
Ranoidea aurea — 18
Ranoidea raniformis — 18
Rhacophorus arboreus — 8
Rhinella marina — 8
Rhinoderma darwinii — 5
Salamandra salamandra — 8, 16, 18, 22
Schistometopum ephele — 8
Schistometopum thomense — 8
Siren lacertina — 6
Sphenophryne cornuta — 8
Staurois parvus — 11
Taricha granulosa — 23
Trachemys scripta elegans — 8, 22
Trachycephalus resinifictrix — 8
Triadobatrachus massinoti — 3
Triassurus sixtelae — 3
Typhlonectes natans — 8
Zhangixalus arboreus — 8
Rozdział 31Źródła i bibliografia
[1] Frost D.R., American Museum of Natural History (2026). Amphibia.
[2] AmphibiaWeb (2021). Phylogeny, Taxonomy, and Nomenclature — a Primer.
[3] AmphibiaWeb, University of California, Berkeley (2026). Current number of amphibian species in our database.
[4] International Commission on Zoological Nomenclature (b.d.). Frequently Asked Questions.
[5] Frost D.R.; American Museum of Natural History (2026). Amphibian Species of the World 6.2: Caudata.
[6] Frost D.R.; American Museum of Natural History (2026). Amphibian Species of the World 6.2: Gymnophiona.
[7] OpenStax, Rice University (2018). Biology 2e, 29.3 Amphibians.
[8] Torres-Sánchez M. i in. (2019). What lies beneath? Molecular evolution during the radiation of caecilian amphibians. DOI: 10.1186/s12864-019-5694-1.
[9] Hime P.M. i in. (2021). Phylogenomics Reveals Ancient Gene Tree Discordance in the Amphibian Tree of Life. DOI: 10.1093/sysbio/syaa034.
[10] Kligman B.T., Gee B.M., Marsh A.D., Nesbitt S.J., Smith M.E., Parker W.G., Stocker M.R. (2023). Triassic stem caecilian supports dissorophoid origin of living amphibians. DOI: 10.1038/s41586-022-05646-5.
[11] Ascarrunz E., Rage J.-C., Legreneur P., Laurin M. (2016). Triadobatrachus massinoti, the earliest known lissamphibian (Vertebrata: Tetrapoda) re-examined by μCT scan, and the evolution of trunk length in batrachians.
[12] Schoch R.R., Werneburg R., Voigt S. (2020). A Triassic stem-salamander from Kyrgyzstan and the origin of salamanders. DOI: 10.1073/pnas.2001424117.
[13] de Queiroz K. (2007). Species Concepts and Species Delimitation. DOI: 10.1080/10635150701701083.
[14] Padial J.M., Miralles A., De la Riva I., Vences M. (2010). The integrative future of taxonomy. DOI: 10.1186/1742-9994-7-16.
[15] Vences M., Thomas M., van der Meijden A., Chiari Y., Vieites D.R. (2005). Comparative performance of the 16S rRNA gene in DNA barcoding of amphibians. DOI: 10.1186/1742-9994-2-5.
[16] Hellsten U.; Harland R.M.; Gilchrist M.J. i in. (2010). The Genome of the Western Clawed Frog Xenopus tropicalis. DOI: 10.1126/science.1183670.
[17] Nowoshilow S.; Schloissnig S.; Fei J.-F. i in. (2018). The axolotl genome and the evolution of key tissue formation regulators. DOI: 10.1038/nature25458.
[18] Elewa A.; Wang H.; Talavera-López C. i in. (2017). Reading and editing the Pleurodeles waltl genome reveals novel features of tetrapod regeneration. DOI: 10.1038/s41467-017-01964-9.
[19] Session A.M.; Uno Y.; Kwon T. i in. (2016). Genome evolution in the allotetraploid frog Xenopus laevis. DOI: 10.1038/nature19840.
[20] Jeffries D.L.; Lavanchy G.; Sermier R. i in. (2018). A rapid rate of sex-chromosome turnover and non-random transitions in true frogs. DOI: 10.1038/s41467-018-06517-2.
[21] Yoshimoto S.; Ikeda N.; Izutsu Y.; Shiba T.; Takamatsu N.; Ito M. (2010). Opposite roles of DMRT1 and its W-linked paralogue, DM-W, in sexual dimorphism of Xenopus laevis: implications of a ZZ/ZW-type sex-determining system. DOI: 10.1242/dev.048751.
[22] Roco Á.S.; Olmstead A.W.; Degitz S.J.; Amano T.; Zimmerman L.B.; Bullejos M. (2015). Coexistence of Y, W, and Z sex chromosomes in Xenopus tropicalis. DOI: 10.1073/pnas.1505291112.
[23] Furman B.L.S.; Cauret C.M.S.; Knytl M. i in. (2020). A frog with three sex chromosomes that co-mingle together in nature: Xenopus tropicalis has a degenerate W and a Y that evolved from a Z chromosome. DOI: 10.1371/journal.pgen.1009121.
[24] Nemesházi E.; Gál Z.; Ujhegyi N. i in. (2020). Novel genetic sex markers reveal high frequency of sex reversal in wild populations of the agile frog (Rana dalmatina) associated with anthropogenic land use. DOI: 10.1111/mec.15596.
[25] Mikó Z.; Nemesházi E.; Ujhegyi N. i in. (2021). Sex reversal and ontogeny under climate change and chemical pollution: are there interactions between the effects of elevated temperature and a xenoestrogen on early development in agile frogs? DOI: 10.1016/j.envpol.2021.117464.
[26] Frost D.R.; American Museum of Natural History (2026). Amphibian Species of the World 6.2: Anura.
[27] Přikryl T., Aerts P., Havelková P., Herrel A., Roček Z. (2009). Pelvic and thigh musculature in frogs (Anura) and origin of anuran jumping locomotion. DOI: 10.1111/j.1469-7580.2008.01006.x.
[28] Westrick S.E., Laslo M., Fischer E.K. (2022). The big potential of the small frog Eleutherodactylus coqui. DOI: 10.7554/eLife.73401.
[29] U.S. Geological Survey, Nonindigenous Aquatic Species (b.d.). Suriname toad (Pipa pipa) — Species Profile.
[30] Cabeza-Alfaro O., Valenzuela-Sánchez A., Alvarado-Rybak M., Serrano J.M., Azat C. (2021). First case of male alloparental care in amphibians: tadpole stealing in Darwin’s frogs.
[31] Schäfer M. i in. (2019). Goliath frogs build nests for spawning – the reason for their gigantism? DOI: 10.1080/00222933.2019.1642528.
[32] Rittmeyer E.N., Allison A., Gründler M.C., Thompson D.K., Austin C.C. (2012). Ecological Guild Evolution and the Discovery of the World’s Smallest Vertebrate.
[33] Smithsonian’s National Zoo and Conservation Biology Institute (b.d.). Poison frogs.
[34] Illinois Natural History Survey, Prairie Research Institute, University of Illinois (b.d.). Salamanders.
[35] Florida Museum of Natural History (b.d.). Siren lacertina.
[36] De Groef B., Grommen S.V.H., Darras V.M. (2018). Forever young: Endocrinology of paedomorphosis in the Mexican axolotl.
[37] Lewis Z.R., Kerney R., Hanken J. (2022). Developmental basis of evolutionary lung loss in plethodontid salamanders. DOI: 10.1126/sciadv.abo6108.
[38] Voituron Y., de Fraipont M., Issartel J., Guillaume O., Clobert J. (2011). Extreme lifespan of the human fish (Proteus anguinus): a challenge for ageing mechanisms. DOI: 10.1098/rsbl.2010.0539.
[39] Santos R.O., Wilkinson M., Zaher H. (2026). An overview of the postcranial osteology of caecilians (Gymnophiona, Lissamphibia). DOI: 10.1002/ar.70000.
[40] Gosselin-Ildari A.; DigiMorph, University of Texas at Austin (2004). Dermophis mexicanus — expert annotation.
[41] Wake M.H. (1985). The comparative morphology and evolution of the eyes of caecilians (Amphibia, Gymnophiona).
[42] Kupfer A., Kramer A., Himstedt W., Greven H. (2006). Copulation and egg retention in an oviparous Caecilian (Amphibia: Gymnophiona).
[43] Mailho-Fontana P.L. i in. (2024). Milk provisioning in oviparous caecilian amphibians. DOI: 10.1126/science.adi5379.
[44] AmphibiaWeb, University of California, Berkeley (b.d.). Ranidae — family account.
[45] Vodrážková M., Šetlíková I., Berec M. (2020). Chemical cues of an invasive turtle reduce development time and size at metamorphosis in the common frog. DOI: 10.1038/s41598-020-64899-0.
[46] AmphibiaWeb, University of California, Berkeley (b.d.). Bufonidae — family account.
[47] Mailho-Fontana P.L. i in. (2014). Passive and active defense in toads: the parotoid macroglands in Rhinella marina and Rhaebo guttatus. DOI: 10.1002/jez.1838.
[48] Liedtke H.C. i in. (2017). Terrestrial reproduction as an adaptation to steep terrain in African toads. DOI: 10.1098/rspb.2016.2598.
[49] Frost D.R.; American Museum of Natural History (2026). Hylidae Rafinesque, 1815.
[50] Bijma N.N., Gorb S.N., Kleinteich T. (2016). Landing on branches in the frog Trachycephalus resinifictrix (Anura: Hylidae). DOI: 10.1007/s00359-016-1069-0.
[51] Touchon J.C., McMillan W.O., Ibáñez R., Lessios H.A. (2024). Flexible oviposition behavior enabled the evolution of terrestrial reproduction. DOI: 10.1073/pnas.2312371121.
[52] AmphibiaWeb, University of California, Berkeley (b.d.). Dendrobatidae — family account.
[53] Brown J.L., Morales V., Summers K. (2010). A key ecological trait drove the evolution of biparental care and monogamy in an amphibian. DOI: 10.1086/650727.
[54] Frost D.R.; American Museum of Natural History (2026). Salamandridae Goldfuss, 1820.
[55] Van Bocxlaer I. i in. (2015). Side-by-side secretion of Late Palaeozoic diverged courtship pheromones in an aquatic salamander. DOI: 10.1098/rspb.2014.2960.
[56] Buckley D., Alcobendas M., García-París M., Wake M.H. (2007). Heterochrony, cannibalism, and the evolution of viviparity in Salamandra salamandra. DOI: 10.1111/j.1525-142X.2006.00141.x.
[57] Frost D.R.; American Museum of Natural History (2026). Plethodontidae Gray, 1850.
[58] Crespi E.J., Lessig H. (2004). Mothers influence offspring body size through post-oviposition maternal effects in the redbacked salamander, Plethodon cinereus. DOI: 10.1007/s00442-003-1410-5.
[59] Deban S.M., Scales J.A., Bloom S.V., Easterling C.M., O’Donnell M.K., Olberding J.P. (2020). Evolution of a high-performance and functionally robust musculoskeletal system in salamanders. DOI: 10.1073/pnas.1921807117.
[60] Patrinat; Office français de la biodiversité (2020). Alyte accoucheur, Crapaud accoucheur (Alytes obstetricans).
[61] Frost D.R.; American Museum of Natural History (2026). Alytes obstetricans (Laurenti, 1768).
[62] Kusano T., Sakai A., Hatanaka S. (2006). Ecological functions of the foam nests of the Japanese treefrog, Rhacophorus arboreus (Amphibia, Rhacophoridae).
[63] Frost D.R.; American Museum of Natural History (2026). Zhangixalus arboreus (Okada and Kawano, 1924).
[64] Zachariah A., Abraham R.K., Das S., Jayan K.C., Altig R. (2012). A detailed account of the reproductive strategy and developmental stages of Nasikabatrachus sahyadrensis (Anura: Nasikabatrachidae), the only extant member of an archaic frog lineage. DOI: 10.11646/zootaxa.3510.1.3.
[65] Garrido-Priego M. i in. (2024). Clutch attendance and call parameters are linked to mating success in a glassfrog with paternal care. DOI: 10.1093/beheco/arae078.
[66] Gibson R.C., Buley K.R. (2004). Maternal Care and Obligatory Oophagy in Leptodactylus fallax: A New Reproductive Mode in Frogs. DOI: 10.1643/CE-02-091R2.
[67] Illinois Natural History Survey, Prairie Research Institute, University of Illinois (b.d.). Marbled Salamander — Ambystoma opacum.
[68] Frost D.R.; American Museum of Natural History (2026). Ambystoma opacum (Gravenhorst, 1807).
[69] Okada S., Fukuda Y., Takahashi M.K. (2015). Paternal care behaviors of Japanese giant salamander Andrias japonicus in natural populations. DOI: 10.1007/s10164-014-0413-5.
[70] Okamiya H., Sugime R., Furusawa C., Inoue Y., Kishida O. (2021). Paedomorphosis in the Ezo salamander (Hynobius retardatus) rediscovered after almost 90 years. DOI: 10.1186/s40851-021-00183-x.
[71] Gosselin-Ildari A.; DigiMorph, University of Texas at Austin (2004). Typhlonectes natans — expert annotation.
[72] Reinhard S., Kupfer A. (2022). Maternal investment in the viviparous caecilian amphibian Typhlonectes natans (Gymnophiona: Typhlonectidae).
[73] Stoelting R.E., Measey G.J., Drewes R.C. (2014). Population Genetics of the São Tomé Caecilian (Gymnophiona: Dermophiidae: Schistometopum thomense) Reveals Strong Geographic Structuring. DOI: 10.1371/journal.pone.0104628.
[74] O’Connell K.A., Prates I., Scheinberg L.A., Mulder K.P., Bell R.C. (2021). Speciation and secondary contact in a fossorial island endemic, the São Tomé caecilian. DOI: 10.1111/mec.15928.
[75] Frost, D. R.; American Museum of Natural History (b.d.). Microhylidae — Amphibian Species of the World.
[76] Rödel, M.-O.; Brede, C.; Hirschfeld, M.; Schmitt, T.; Favreau, P.; Stöcklin, R.; Wunder, C.; Mebs, D. (2013). Chemical Camouflage– A Frog’s Strategy to Co-Exist with Aggressive Ants. DOI: 10.1371/journal.pone.0081950.
[77] Antoniazzi, M. M. i in. (2022). Reproductive behaviour, cutaneous morphology, and skin secretion analysis in the anuran Dermatonotus muelleri. DOI: 10.1016/j.isci.2022.104073.
[78] Bickford, D. (2002). Male parenting of New Guinea froglets. DOI: 10.1038/418601b.
[79] Frost, D. R.; American Museum of Natural History (b.d.). Pipidae — Amphibian Species of the World.
[80] Carreño, C. A.; Nishikawa, K. C. (2010). Aquatic feeding in pipid frogs: the use of suction for prey capture. DOI: 10.1242/jeb.043380.
[81] Deban, S. M.; Olson, W. M. (2002). Suction feeding by a tiny predatory tadpole. DOI: 10.1038/420041a.
[82] Lukas, P.; Araújo, O. G. S.; Hernández-Nieto, S. (2024). The chondrocranium of the tadpole of Hymenochirus boettgeri (Anura: Pipidae) and the sequence and timing of its development. DOI: 10.1016/j.jcz.2024.04.002.
[83] Fabrezi, M.; Quinzio, S. I.; Goldberg, J.; Cruz, J. C.; Chuliver Pereyra, M.; Wassersug, R. J. (2016). Developmental changes and novelties in ceratophryid frogs. DOI: 10.1186/s13227-016-0043-9.
[84] Lappin, A. K.; Wilcox, S. C.; Moriarty, D. J.; Stoeppler, S. A. R.; Evans, S. E.; Jones, M. E. H. (2017). Bite force in the horned frog (Ceratophrys cranwelli) with implications for extinct giant frogs. DOI: 10.1038/s41598-017-11968-6.
[85] Kleinteich, T.; Gorb, S. N. (2014). Tongue adhesion in the horned frog Ceratophrys sp. DOI: 10.1038/srep05225.
[86] Wilkinson, M.; Reynolds, R. P.; Jacobs, J. F. (2021). A new genus and species of rhinatrematid caecilian (Amphibia: Gymnophiona: Rhinatrematidae) from Ecuador. DOI: 10.33256/31.1.2734.
[87] Müller, H. (2020). Development and demography of larval Epicrionops bicolor (Amphibia: Gymnophiona: Rhinatrematidae). DOI: 10.1080/23766808.2020.1756131.
[88] EFSA Panel on Plant Protection Products and their Residues (2018). Scientific Opinion on the state of the science on pesticide risk assessment for amphibians and reptiles. DOI: 10.2903/j.efsa.2018.5125.
[89] USDA National Agricultural Library, NALT (b.d.). Ectothermy.
[90] Liedtke H.C., Wiens J.J., Gomez-Mestre I. (2022). The evolution of reproductive modes and life cycles in amphibians. DOI: 10.1038/s41467-022-34474-4.
[91] Méndez-Tepepa M. i in. (2023). A review of the reproductive system in anuran amphibians. DOI: 10.1186/s40851-023-00201-0.
[92] Charney N.D. i in. (2014). Embryo Development inside Female Salamander (Ambystoma jeffersonianum-laterale) Prior to Egg Laying. DOI: 10.1371/journal.pone.0091919.
[93] Kupfer A. i in. (2006). Parental investment by skin feeding in a caecilian amphibian. DOI: 10.1038/nature04403.
[94] Shibata Y. i in. (2020). Organ-Specific Requirements for Thyroid Hormone Receptor Ensure Temporal Coordination of Tissue-Specific Transformations and Completion of Xenopus Metamorphosis. DOI: 10.1089/thy.2019.0366.
[95] Fabrezi M., Cruz J.C. (2020). Evolutionary and developmental considerations of the diet and gut morphology in ceratophryid tadpoles. DOI: 10.1186/s12861-020-00221-5.
[96] Zahn N. i in. (2022). Normal Table of Xenopus development: a new graphical resource. DOI: 10.1242/dev.200356.
[97] Frost D.R., American Museum of Natural History (2026). Boulengerula taitana Loveridge, 1935.
[98] Gerhardt H.C. (1978). Temperature Coupling in the Vocal Communication System of the Gray Tree Frog, Hyla versicolor. DOI: 10.1126/science.199.4332.992.
[99] Lee N.; Christensen-Dalsgaard J.; White L.A.; Schrode K.M.; Bee M.A. (2021). Lung mediated auditory contrast enhancement improves the Signal-to-noise ratio for communication in frogs. DOI: 10.1016/j.cub.2021.01.048.
[100] Preininger D.; Boeckle M.; Sztatecsny M.; Hödl W. (2013). Divergent Receiver Responses to Components of Multimodal Signals in Two Foot-Flagging Frog Species. DOI: 10.1371/journal.pone.0055367.
[101] Caldwell M.S.; Johnston G.R.; McDaniel J.G.; Warkentin K.M. (2010). Vibrational signaling in the agonistic interactions of red-eyed treefrogs. DOI: 10.1016/j.cub.2010.03.069.
[102] Nakada T.; Toyoda F.; Matsuda K.; Nakakura T.; Hasunuma I.; Yamamoto K.; Onoue S.; Yokosuka M.; Kikuyama S. (2017). Imorin: a sexual attractiveness pheromone in female red-bellied newts (Cynops pyrrhogaster). DOI: 10.1038/srep41334.
[103] Yovanovich C.A.M.; Koskela S.M.; Nevala N.; Kondrashev S.L.; Kelber A.; Donner K. (2017). The dual rod system of amphibians supports colour discrimination at the absolute visual threshold. DOI: 10.1098/rstb.2016.0066.
[104] Warkentin K.M. (2005). How do embryos assess risk? Vibrational cues in predator-induced hatching of red-eyed treefrogs. DOI: 10.1016/j.anbehav.2004.09.019.
[105] Saporito R.A. i in. (2007). Oribatid mites as a major dietary source for alkaloids in poison frogs.
[106] Taboada C. i in. (2022). Glassfrogs conceal blood in their liver to maintain transparency. DOI: 10.1126/science.abl6620.
[107] U.S. Geological Survey, Wetland and Aquatic Research Center (b.d.). Amphibians.
[108] IUCN SSC Amphibian Specialist Group; Wren, S., Borzée, A., Marcec-Greaves, R. i Angulo, A. (red.) (2024). Amphibian conservation action plan: A status review and roadmap for global amphibian conservation. DOI: 10.2305/QWVH2717.
[109] Helldin J.-O., Petrovan S.O. (2019). Effectiveness of small road tunnels and fences in reducing amphibian roadkill and barrier effects at retrofitted roads in Sweden. DOI: 10.7717/peerj.7518.
[110] Krasoń A., Centrum Koordynacji Projektów Środowiskowych, Lasy Państwowe (2020). Żaby polubiły specjalnie przygotowane przejścia.
[111] Li J. i in. (2022). CDK5/NFAT5-Regulated Transporters Involved in Osmoregulation in Fejervarya cancrivora. DOI: 10.3390/biology11060858.
[112] Sinclair B.J. i in. (2013). Real-time measurement of metabolic rate during freezing and thawing of the wood frog, Rana sylvatica: implications for overwinter energy use. DOI: 10.1242/jeb.076331.
[113] Cartledge V., Withers P., Bradshaw D. (2008). Water Balance and Arginine Vasotocin in the Cocooning Frog Cyclorana platycephala. DOI: 10.1086/523856.
[114] Ludwig G.; Sinsch U.; Pelster B. (2015). Behavioural adaptations of Rana temporaria to cold climates. DOI: 10.1016/j.jtherbio.2015.02.006.
[115] Tattersall G.J.; Boutilier R.G. (1997). Balancing hypoxia and hypothermia in cold-submerged frogs. DOI: 10.1242/jeb.200.6.1031.
[116] Costanzo J.P.; do Amaral M.C.F.; Rosendale A.J.; Lee R.E. (2014). Seasonality of Freeze Tolerance in a Subarctic Population of the Wood Frog, Rana sylvatica. DOI: 10.1155/2014/750153.
[117] Üveges B.; Mahr K.; Szederkényi M.; Bókony V.; Hoi H.; Hettyey A. (2016). Experimental evidence for beneficial effects of projected climate change on hibernating amphibians. DOI: 10.1038/srep26754.
[118] Reading C.J. (2007). Linking global warming to amphibian declines through its effects on female body condition and survivorship. DOI: 10.1007/s00442-006-0558-1.
[119] Dervo B.K.; Museth J.; Skurdal J. (2018). Assessing the Use of Artificial Hibernacula by the Great Crested Newt (Triturus cristatus) and Smooth Newt (Lissotriton vulgaris) in Cold Climate in Southeast Norway. DOI: 10.3390/d10030056.
[120] Laugen A.T.; Laurila A.; Räsänen K.; Merilä J. (2003). Latitudinal countergradient variation in the common frog (Rana temporaria) development rates – evidence for local adaptation. DOI: 10.1046/j.1420-9101.2003.00560.x.
[121] Buckley, L. B.; Jetz, W. (2007). Environmental and historical constraints on global patterns of amphibian richness. DOI: 10.1098/rspb.2006.0436.
[122] Steigerwald, E. i in. (2024). Microreserves are an important tool for amphibian conservation. DOI: 10.1038/s42003-024-06510-0.
[123] Oliver, P. M. i in. (2022). Melanesia holds the world’s most diverse and intact insular amphibian fauna. DOI: 10.1038/s42003-022-04105-1.
[124] Cyriac, V. P. i in. (2024). Diversifying in the mountains: spatiotemporal diversification of frogs in the Western Ghats biodiversity hotspot. DOI: 10.1093/evolut/qpae006.
[125] Xu, W. i in. (2024). Hidden hotspots of amphibian biodiversity in China. DOI: 10.1073/pnas.2320674121.
[126] Luo, Y. i in. (2026). New Species Discoveries Refine Global Biodiversity Patterns. DOI: 10.1111/ele.70448.
[127] Instytut Ochrony Przyrody PAN (b.d.). Atlas Płazów i Gadów Polski — wykaz gatunków.
[128] Majtyka T., Borczyk B., Ogielska M., Stöck M. (2022). Morphometry of two cryptic tree frog species at their hybrid zone reveals neither intermediate nor transgressive morphotypes. DOI: 10.1002/ece3.8527.
[129] Frątczak M. i współautorzy (2026). Unexpected variability of gametogenic pathways and interspecific chromosomal leakage in Pelophylax esculentus hybrids. DOI: 10.1093/biolre/ioag171.
[130] Lasy Państwowe (2020). Salamandra plamista.
[131] Główny Inspektorat Ochrony Środowiska (b.d.). Traszka grzebieniasta — Triturus cristatus.
[132] Naturalis Biodiversity Center (b.d.). Lissotriton vulgaris — Common Newt.
[133] Naturalis Biodiversity Center (b.d.). Mesotriton alpestris — Alpine Newt.
[134] Główny Inspektorat Ochrony Środowiska (b.d.). Traszka karpacka — Lissotriton montandoni.
[135] Główny Inspektorat Ochrony Środowiska (b.d.). Kumak nizinny — Bombina bombina.
[136] Główny Inspektorat Ochrony Środowiska (b.d.). Kumak górski — Bombina variegata.
[137] Główny Inspektorat Ochrony Środowiska (b.d.). Grzebiuszka ziemna — Pelobates fuscus.
[138] Lasy Państwowe (2020). Ropucha szara.
[139] Naturalis Biodiversity Center (b.d.). Bufo bufo — Common Toad.
[140] Główny Inspektorat Ochrony Środowiska (b.d.). Ropucha zielona — Bufotes viridis.
[141] Główny Inspektorat Ochrony Środowiska (b.d.). Ropucha paskówka — Epidalea calamita.
[142] Główny Inspektorat Ochrony Środowiska (b.d.). Rzekotka drzewna — Hyla arborea.
[143] Główny Inspektorat Ochrony Środowiska (b.d.). Żaba trawna — Rana temporaria.
[144] Główny Inspektorat Ochrony Środowiska (b.d.). Żaba moczarowa — Rana arvalis.
[145] Główny Inspektorat Ochrony Środowiska (b.d.). Żaba zwinka — Rana dalmatina.
[146] Główny Inspektorat Ochrony Środowiska (b.d.). Żaba jeziorkowa — Pelophylax lessonae.
[147] Główny Inspektorat Ochrony Środowiska (b.d.). Żaba śmieszka — Pelophylax ridibundus.
[148] Główny Inspektorat Ochrony Środowiska (b.d.). Żaba wodna — Pelophylax esculentus.
[149] Minister Klimatu i Środowiska (2022). Tekst jednolity rozporządzenia w sprawie ochrony gatunkowej zwierząt — Dz.U.2022 poz.2380.
[150] Hauswaldt J.S. i in. (2012). A simplified molecular method for distinguishing among species and ploidy levels in European water frogs (Pelophylax). DOI: 10.1111/j.1755-0998.2012.03160.x.
[151] Majtyka T., Ogielska M.; GIOŚ (2012). Żaba trawna Rana temporaria — metodyka monitoringu.
[152] Majtyka T., Ogielska M.; GIOŚ (2012). Żaba moczarowa Rana arvalis — metodyka monitoringu.
[153] Bonk M.; GIOŚ (2012/2024). Żaba zwinka Rana dalmatina — metodyka monitoringu z modyfikacją z 5 marca 2024 r.
[154] Dufresnes C., Majtyka T. i in. (2016). Empirical evidence for large X-effects in animals with undifferentiated sex chromosomes. DOI: 10.1038/srep21029.
[155] Ogielska M., Klimaszewski K.; GIOŚ (2012). Ropucha paskówka Epidalea calamita — metodyka monitoringu.
[156] Pabijan M.; GIOŚ (2010). Traszka grzebieniasta Triturus cristatus — metodyka monitoringu.
[157] Bonk M., Sochacki J.; GIOŚ (2012). Traszka karpacka Lissotriton montandoni — metodyka monitoringu.
[158] Loman J. (2016). Breeding phenology in Rana temporaria. Local variation is due to pond temperature and population size. DOI: 10.1002/ece3.2356.
[159] Weber, T.; Ozgul, A.; Schmidt, B. R. (2024). Density-dependent performance of larval and juvenile toads: Implications for amphibian conservation. DOI: 10.1016/j.baae.2024.02.001.
[160] Schmidt, B. R.; Hödl, W.; Schaub, M. (2012). From metamorphosis to maturity in complex life cycles: equal performance of different juvenile life history pathways. DOI: 10.1890/11-0892.1.
[161] Schmidt, B. R.; Feldmann, R.; Schaub, M. (2005). Demographic Processes Underlying Population Growth and Decline in Salamandra salamandra. DOI: 10.1111/j.1523-1739.2005.00164.x.
[162] Muths, E.; Scherer, R. D.; Lambert, B. A. (2010). Unbiased survival estimates and evidence for skipped breeding opportunities in females. DOI: 10.1111/j.2041-210X.2010.00019.x.
[163] Cayuela, H. i in. (2020). Drivers of amphibian population dynamics and asynchrony at local and regional scales. DOI: 10.1111/1365-2656.13208.
[164] Rosa, G. i in. (2025). Frankenstein matrices: Among-population life history variation affects the reliability and predictions of demographic models. DOI: 10.1111/1365-2656.14243.
[165] Heard, G. W.; Scroggie, M. P.; Hollanders, M.; Scheele, B. C. (2024). Age truncation due to disease shrinks metapopulation viability for amphibians. DOI: 10.1111/1365-2656.14177.
[166] Frost, D. R.; American Museum of Natural History (2026). Amphibian Species of the World — Ranoidea.
[167] Regester K. J., Lips K. R., Whiles M. R. (2006). Energy flow and subsidies associated with the complex life cycle of ambystomatid salamanders in ponds and adjacent forest in southern Illinois. DOI: 10.1007/s00442-005-0266-2.
[168] Best M. L., Welsh H. H. Jr. (2014). The trophic role of a forest salamander: impacts on invertebrates, leaf litter retention, and the humification process. DOI: 10.1890/ES13-00302.1.
[169] Zipkin E. F. i in. (2020). Tropical snake diversity collapses after widespread amphibian loss. DOI: 10.1126/science.aay5733.
[170] Kragl M. i in. (2009). Cells keep a memory of their tissue origin during axolotl limb regeneration. DOI: 10.1038/nature08152.
[171] Godwin J. W., Pinto A. R., Rosenthal N. A. (2013). Macrophages are required for adult salamander limb regeneration. DOI: 10.1073/pnas.1300290110.
[172] Sandoval-Guzmán T. i in. (2014). Fundamental differences in dedifferentiation and stem cell recruitment during skeletal muscle regeneration in two salamander species. DOI: 10.1016/j.stem.2013.11.007.
[173] Harris R. N. i in. (2009). Skin microbes on frogs prevent morbidity and mortality caused by a lethal skin fungus. DOI: 10.1038/ismej.2009.27.
[174] Becker M. H. i in. (2011). Towards a better understanding of the use of probiotics for preventing chytridiomycosis in Panamanian golden frogs. DOI: 10.1007/s10393-012-0743-0.
[175] IUCN (2026). Summary Statistics — IUCN Red List, version 2026-1.
[176] IUCN (2026). IUCN Red List updates — What’s new?
[177] IUCN (wersja 4). Guidelines for Appropriate Uses of IUCN Red List Data.
[178] Luedtke, J. A. i in. (2023). Ongoing declines for the world’s amphibians in the face of emerging threats. DOI: 10.1038/s41586-023-06578-4.
[179] IUCN SSC Amphibian Specialist Group (2026). Updated IUCN Red List assessments improve amphibian conservation knowledge across key regions.
[180] IUCN SSC Amphibian Specialist Group (2023). Global Amphibian Assessment 2.
[181] Voyles, J. i in. (2009). Pathogenesis of chytridiomycosis, a cause of catastrophic amphibian declines. DOI: 10.1126/science.1176765.
[182] Martel, A. i in. (2013). Batrachochytrium salamandrivorans sp. nov. causes lethal chytridiomycosis in amphibians. DOI: 10.1073/pnas.1307356110.
[183] Pinto, T. i in. (2024). Effectiveness of permanent drift fences in reducing roadkill risk of amphibians. DOI: 10.1016/j.jenvman.2024.122049.
[184] Gray, M. J. i in. (2023). Broad host susceptibility of North American amphibian species to Batrachochytrium salamandrivorans suggests high invasion potential and biodiversity risk. DOI: 10.1038/s41467-023-38979-4.
[185] Marantelli, G., Berger, L., Speare, R. i Keegan, L. (2004). Distribution of the amphibian chytrid Batrachochytrium dendrobatidis and keratin during tadpole development. DOI: 10.1071/PC040173.
[186] Forzán, M. J. i in. (2017). Pathogenesis of Frog Virus 3 (Ranavirus, Iridoviridae) Infection in Wood Frogs (Rana sylvatica). DOI: 10.1177/0300985816684929.
[187] Fites, J. S. i in. (2013). The invasive chytrid fungus of amphibians paralyzes lymphocyte responses. DOI: 10.1126/science.1243316.
[188] McMahon, T. A. i in. (2014). Amphibians acquire resistance to live and dead fungus overcoming fungal immunosuppression. DOI: 10.1038/nature13491.
[189] Stegen, G. i in. (2017). Drivers of salamander extirpation mediated by Batrachochytrium salamandrivorans. DOI: 10.1038/nature22059.
[190] Carter, E. D. i in. (2021). Winter is coming–Temperature affects immune defenses and susceptibility to Batrachochytrium salamandrivorans. DOI: 10.1371/journal.ppat.1009234.
[191] Hoverman, J. T., Gray, M. J. i Miller, D. L. (2010). Anuran susceptibilities to ranaviruses: role of species identity, exposure route, and a novel virus isolate. DOI: 10.3354/dao02200.
[192] Haislip, N. A. i in. (2011). Development and Disease: How Susceptibility to an Emerging Pathogen Changes through Anuran Development. DOI: 10.1371/journal.pone.0022307.
[193] Brenes, R. i in. (2014). Transmission of Ranavirus between Ectothermic Vertebrate Hosts. DOI: 10.1371/journal.pone.0092476.
[194] Tennessen J.B., Parks S.E., Langkilde T. (2014). Traffic noise causes physiological stress and impairs breeding migration behaviour in frogs. DOI: 10.1093/conphys/cou032.
[195] Halfwerk W. i in. (2019). Adaptive changes in sexual signalling in response to urbanization. DOI: 10.1038/s41559-018-0751-8.
[196] Touzot M. i in. (2019). Artificial light at night disturbs the activity and energy allocation of the common toad during the breeding period. DOI: 10.1093/conphys/coz002.
[197] Dananay K.L., Benard M.F. (2018). Artificial light at night decreases metamorphic duration and juvenile growth in a widespread amphibian. DOI: 10.1098/rspb.2018.0367.
[198] Cronin A.D., Smit J.A.H., Halfwerk W. (2022). Anthropogenic noise and light alter temporal but not spatial breeding behavior in a wild frog. DOI: 10.1093/beheco/arac077.
[199] Karraker N.E., Gibbs J.P., Vonesh J.R. (2008). Impacts of road deicing salt on the demography of vernal pool-breeding amphibians. DOI: 10.1890/07-1644.1.
[200] Brady S.P. (2012). Road to evolution? Local adaptation to road adjacency in an amphibian (Ambystoma maculatum). DOI: 10.1038/srep00235.
[201] Hopkins G.R., French S.S., Brodie E.D. Jr (2013). Potential for local adaptation in response to an anthropogenic agent of selection: effects of road deicing salts on amphibian embryonic survival and development. DOI: 10.1111/eva.12016.
[202] Relyea R.A., Mills N. (2001). Predator-induced stress makes the pesticide carbaryl more deadly to gray treefrog tadpoles (Hyla versicolor). DOI: 10.1073/pnas.031076198.
[203] Cothran R.D., Brown J.M., Relyea R.A. (2013). Proximity to agriculture is correlated with pesticide tolerance: evidence for the evolution of amphibian resistance to modern pesticides. DOI: 10.1111/eva.12069.
[204] Moor, H. i in. (2022). Bending the curve: Simple but massive conservation action leads to landscape-scale recovery of amphibians. DOI: 10.1073/pnas.2123070119.
[205] Knapp, R. A., Boiano, D. M. i Vredenburg, V. T. (2007). Removal of nonnative fish results in population expansion of a declining amphibian (mountain yellow-legged frog, Rana muscosa). DOI: 10.1016/j.biocon.2006.09.013.
[206] Bletz, M. C. i in. (2023). Disinfection protocols for herpetofaunal pathogens.
[207] USGS Amphibian Research and Monitoring Initiative (b.d.). Designing and Implementing a Monitoring Program.
[208] Sewell, D. i Griffiths, R. A. (2009). Can a Single Amphibian Species Be a Good Biodiversity Indicator? DOI: 10.3390/d1020102.
[209] Whiles, M. R. i in. (2013). Disease-Driven Amphibian Declines Alter Ecosystem Processes in a Tropical Stream. DOI: 10.1007/s10021-012-9602-7.
[210] Joly P., Miaud C., Lehmann A., Grolet O. (2001). Habitat matrix effects on pond occupancy in newts. DOI: 10.1046/j.1523-1739.2001.99200.x.
[211] Zanini F., Klingemann A., Schlaepfer R., Schmidt B.R. (2008). Landscape effects on anuran pond occupancy in an agricultural countryside: barrier-based buffers predict distributions better than circular buffers. DOI: 10.1139/Z08-048.
[212] Kloskowski J. (2010). Fish farms as amphibian habitats: factors affecting amphibian species richness and community structure at carp ponds in Poland. DOI: 10.1017/S0376892910000494.
[213] Kloskowski J., Nieoczym M. (2015). Management practices to enhance wildlife diversity of man-made fish ponds: the importance of the hydroperiod. DOI: 10.1051/kmae/2015032.
[214] Buxton A.S., Tracey H., Downs N.C. (2021). How reliable is the habitat suitability index as a predictor of great crested newt presence or absence? DOI: 10.33256/31.2.111117.
[215] Biodiversity Information Standards (TDWG) (2026). Core terms defined by Darwin Core.
[216] MacKenzie D. I. i in. (2002). Estimating site occupancy rates when detection probabilities are less than one. DOI: 10.1890/0012-9658(2002)083[2248:ESORWD]2.0.CO;2.
[217] Bower D. S. i in. (2014). Evaluating monitoring methods to guide adaptive management of a threatened amphibian (Litoria aurea). DOI: 10.1002/ece3.980.
[218] Biggs J. i in. (2015). Using eDNA to develop a national citizen science-based monitoring programme for the great crested newt (Triturus cristatus). DOI: 10.1016/j.biocon.2014.11.029.
[219] Kaczmarski M., Kaczmarek J. M., Radzińska A., Budka M. (2025). Passive acoustic monitoring reveals seasonal patterns in European green toad calling activity but fails to accurately reflect population abundance. DOI: 10.1038/s41598-025-11706-3.
[220] Soomets E., Lõhmus A., Rannap R. (2023). Restoring functional forested peatlands by combining ditch-blocking and partial cutting: An amphibian perspective. DOI: 10.1016/j.ecoleng.2023.106968.
[221] Pilliod D. S., Goldberg C. S., Arkle R. S., Waits L. P. (2014). Factors influencing detection of eDNA from a stream-dwelling amphibian. DOI: 10.1111/1755-0998.12159.
[222] Ficetola G. F. i in. (2015). Replication levels, false presences and the estimation of the presence/absence from eDNA metabarcoding data. DOI: 10.1111/1755-0998.12338.
[223] Instytut Ochrony Przyrody PAN (b.d.). Atlas Płazów i Gadów Polski — zasady gromadzenia obserwacji.
[224] Regionalna Dyrekcja Ochrony Środowiska w Łodzi (2026). Ochrona płazów.
[225] Generalna Dyrekcja Ochrony Środowiska (2018). Rekomendacje w zakresie zapobiegania i rozprzestrzeniania się chorób rodzimych gatunków płazów i gadów.
[226] International Code of Zoological Nomenclature (b.d.). Glossary.