Opracowanie prowadzi od klasyfikacji i liczby gatunków przez ewolucję, anatomię, fizjologię i zachowanie do ekologii oraz ochrony. Obejmuje atlas osiemnastu gatunków, faunę Polski, życie w skrajnych warunkach, sezonowość, zmianę klimatu i choroby dzikich populacji. Tabele i infografiki porządkują dane, a bibliografia oraz indeks nazw ułatwiają powrót do konkretnych zagadnień.
Liczby należy czytać razem z zakresem. Stany katalogów, obserwacje terenowe, wyniki doświadczeń i obliczenia modelowe odpowiadają na różne pytania. Przy przykładach zachowano daty, jednostki, wielkości prób oraz ograniczenia istotne dla interpretacji. Metryka danych na końcu części merytorycznej ułatwia ich ponowne sprawdzenie.
Stan weryfikacji źródeł: 11 listopada 2026 roku. Wydanie poszerzone. Główne zestawienie różnorodności: Reptile Database, październik 2026. Globalne porównanie zagrożenia: publikacja z 2022 roku. Późniejsze oceny oraz dane krajowe mają własne oznaczenia dat.
Rozdział 1Zakres kompendium i zasady korzystania z danych
Co obejmuje opracowanie
Przedmiotem kompendium są gady nieptasie: jaszczurki, węże, amfisbeny, żółwie, krokodyle i hatteria. Jest to podział ułatwiający opis zwierząt, a jego części nie mają jednakowej rangi systematycznej. Relacje między nimi przedstawiono w rozdziale o klasyfikacji. Ptaki uwzględniono w objaśnieniu pokrewieństwa ewolucyjnego, lecz pominięto w podawanych liczbach gatunków gadów nieptasich. Zakres odpowiada tu katalogowi Reptile Database. [1, 2]
Tekst łączy przegląd grup z opisem budowy, fizjologii, zachowania, ekologii i ochrony. Nazwy naukowe pomagają wskazać dokładny przedmiot opisu, zwłaszcza gdy nazwa potoczna obejmuje różne gatunki. Przykłady z Polski oddzielono od danych światowych. Wyniki dotyczące jednej populacji pozostawiono przy jej nazwie i miejscu badania, aby czytelnik mógł ocenić zakres wniosku.
Liczby mają jednostkę i datę
W artykule zestawiono dane pochodzące z różnych okresów. Liczba gatunków w katalogu jest stanem określonej wersji bazy. Ocena zagrożenia pochodzi z konkretnego procesu oceny i może wykorzystywać obserwacje z wielu wcześniejszych lat. Data opublikowania artykułu również nie musi być datą wykonania doświadczenia. Te informacje należy zachować razem z cytowaną liczbą. [3, 4]
Tabela 1. Trzy daty potrzebne do interpretacji danych
Rodzaj daty | Jaką informację przekazuje | Przykład w kompendium |
|---|---|---|
Okres danych albo wersja zestawienia | Kiedy zbierano obserwacje lub jaki stan katalogu opisano | Reptile Database, październik 2026 |
Rok publikacji lub oceny | Kiedy ogłoszono wyniki albo wykonano wskazaną ocenę | Globalna analiza ryzyka wymarcia opublikowana w 2022 roku |
Data sprawdzenia źródła | Kiedy odczytano przywołany dokument lub stronę | Weryfikacja niniejszego wydania: 11 listopada 2026 roku |
Źródła przykładów: [3, 4]. Data dostępu nie zmienia okresu, którego dotyczą dane.
Przy zestawieniach szczególne znaczenie mają mianowniki. Udział zagrożonych gatunków, udział stanowisk ze złą oceną i odsetek poprawnych dopasowań fotoidentyfikacyjnych opisują inne zjawiska. Wartość procentową należy czytać razem z informacją, co znalazło się w liczniku i w próbie odniesienia. Z tego powodu w tabelach zachowano nazwy jednostek, a wyniki z odmiennych projektów nie zostały połączone w jedną średnią.
Wynik badania i zakres wniosku
W kompendium rozróżniono cztery rodzaje treści: dane odczytane ze źródła, wyniki obliczeń, interpretacje autorów badań i schematy objaśniające. Przykładem obliczenia jest udział stanowisk GIOŚ w poszczególnych kategoriach. Przykładem modelowym jest narastanie szansy wykrycia przy kolejnych niezależnych kontrolach. Schematy budowy i procesów służą wyjaśnieniu zależności; ich proporcje graficzne nie oznaczają wartości pomiarów, jeśli podpis nie stwierdza inaczej.
Tabela 2. Jak rozpoznawać charakter przedstawionej informacji
Rodzaj informacji | Co podano w opracowaniu | Jak ją odczytywać |
|---|---|---|
Dane źródłowe | Wartość, jednostkę, datę i odsyłacz | Jako wynik określonego katalogu, pomiaru lub badania |
Obliczenie własne | Dane wejściowe i sposób obliczenia | Jako przeliczenie wskazanych wartości |
Interpretacja badaczy | Autorów wniosku oraz badaną grupę | Z zachowaniem zakresu próby i zastosowanej metody |
Schemat pojęciowy | Podpis wyjaśniający znaczenie elementów | Jako objaśnienie relacji, bez domyślnej skali ilościowej |
Tabela przedstawia sposób redakcyjnego oznaczania treści w tym kompendium.
Rozbieżności między klasyfikacjami lub ocenami nie są uzupełniane domyślną „właściwą” wartością. Jeżeli źródła stosują inne zakresy taksonomiczne, pokazano tę różnicę. Jeżeli pochodzenie lokalnej populacji pozostaje nierozstrzygnięte, zachowano ten status. Szczegółowe zastrzeżenia znajdują się przy danym przykładzie, gdzie wpływają na jego interpretację.
Rozdział 2Czym są gady i jak rozumieć ich rodzaje
Klasyfikacja popularna i naukowa
W języku potocznym „rodzaje gadów” oznaczają zwykle jaszczurki, węże, żółwie i krokodyle. Pełniejsze zestawienie uwzględnia amfisbeny oraz hatterię. W systematyce biologicznej słowo rodzaj ma jednak ścisłe znaczenie: jest rangą obejmującą jeden lub więcej blisko spokrewnionych gatunków. Przykładowo Lacerta to rodzaj, a Lacerta agilis to gatunek, czyli jaszczurka zwinka. [2] [5]
Sześć grup omawianych w tym artykule ma zatem charakter opisowy. Nie są to sześć równorzędnych jednostek systematycznych. W popularnym zakresie gadów bez ptaków wyróżnia się cztery główne współczesne rzędy: łuskonośne, żółwie, krokodyle i sfenodonty, reprezentowane dziś przez hatterię. Jaszczurki, węże i amfisbeny mieszczą się w łuskonośnych. [1, 2]
Tabela 3. Główne rzędy współczesnych gadów w zakresie artykułu
Rząd | Przedstawiciele | Najważniejsze wyróżniki |
|---|---|---|
Łuskonośne — Squamata | Jaszczurki, węże, amfisbeny | Bardzo różne plany budowy; formy z kończynami i bez kończyn |
Żółwie — Testudines | Żółwie lądowe, słodkowodne i morskie | Pancerz związany ze szkieletem; rogowy dziób |
Krokodyle — Crocodylia | Krokodyle właściwe, aligatory, kajmany, gawiale | Półwodny tryb życia; opancerzenie skóry; silny ogon |
Sfenodonty — Rhynchocephalia | Hatteria | Odrębna linia lepidozaurów zachowana w Nowej Zelandii |
Źródło klasyfikacji: Reptile Database oraz badania filogenetyczne. Cechy w tabeli służą porównaniu i nie stanowią kompletnego klucza do oznaczania gatunków. [6, 7, 2]
Dlaczego na drzewie gadów pojawiają się ptaki
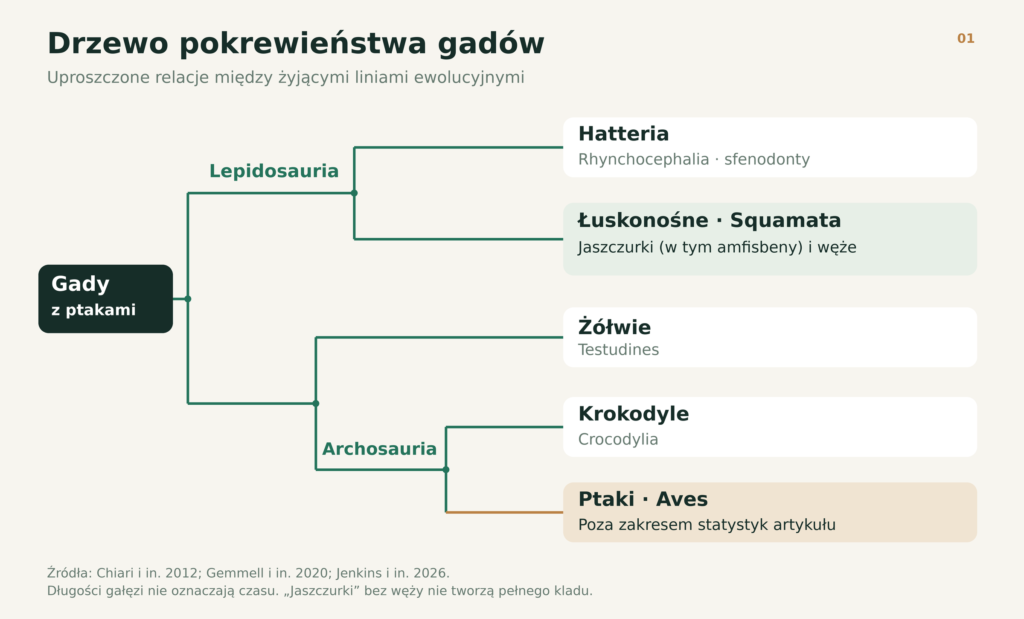
W klasyfikacji filogenetycznej klad obejmuje wspólnego przodka i wszystkich jego potomków. Przy takim podejściu ptaki należą do gadziej linii ewolucyjnej: są współczesnymi dinozaurami, a wraz z krokodylami są współczesnymi przedstawicielami archozaurów. Krokodyl jest więc bliżej spokrewniony z ptakiem niż z jaszczurką. Tradycyjne „gady bez ptaków” są grupą parafiletyczną, ponieważ pomijają część potomków wspólnego przodka. [1, 6]
W artykule zachowano popularny zakres tematu, wyłączając ptaki ze statystyk i opisów grup. Na schemacie pokrewieństwa są jednak widoczne. Współczesne badania genomowe umieszczają żółwie jako grupę siostrzaną archozaurów. Drugą dużą linię tworzą lepidozaury, obejmujące łuskonośne i hatterię. Długość gałęzi na uproszczonym schemacie nie odpowiada czasowi ewolucji. [6, 7]
Rozdział 3Ile gatunków gadów znamy
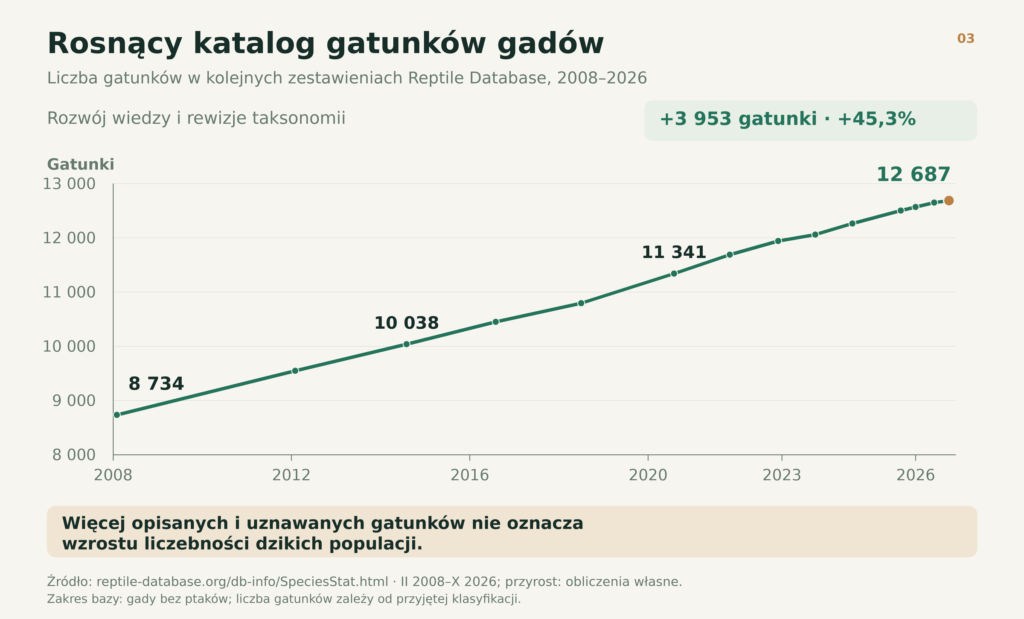
Reptile Database ujmuje w zestawieniu z października 2026 roku 12 687 gatunków. Jest to liczba taksonów przyjętych w konkretnej wersji katalogu, który obejmuje również niektóre gatunki wymarłe stosunkowo niedawno. Nie należy przedstawiać jej jako niezmiennego spisu wyłącznie dzisiaj żyjących zwierząt. [3, 1]
Tabela 4. Różnorodność sześciu grup opisowych gadów
Grupa | Liczba gatunków | Udział w zestawieniu |
|---|---|---|
Jaszczurki bez amfisben | 7 838 | 61,78% |
Węże | 4 252 | 33,51% |
Żółwie | 365 | 2,88% |
Amfisbeny | 204 | 1,61% |
Krokodyle | 27 | 0,21% |
Hatteria | 1 | 0,01% |
Razem | 12 687 | 100,00% |
Źródło: Reptile Database, październik 2026. Udziały i wartość dla jaszczurek bez amfisben obliczono na podstawie danych źródłowych. Baza podaje 8 042 jaszczurki łącznie z 204 amfisbenami; 7 838 = 8 042 − 204. Ten sposób prezentacji zapobiega podwójnemu liczeniu. Łuskonośne łącznie obejmują 12 294 gatunki, czyli około 96,9% zestawienia. [3]

Dlaczego liczby zmieniają się z czasem
Taksonomia rozwija się dzięki badaniom terenowym, analizie cech budowy i porównaniom genetycznym. Populacje dotąd ujmowane pod jedną nazwą mogą po rewizji zostać rozdzielone na kilka gatunków; inne rewizje mogą prowadzić do połączenia wcześniej wyróżnianych taksonów. Odkrywanie różnorodności obejmuje zatem także ponowne badanie zwierząt już znanych nauce. [9, 10]
Od lutego 2008 do października 2026 roku liczba gatunków ujętych w zestawieniu wzrosła z 8 734 do 12 687. Różnica wynosi 3 953, czyli około 45,3%. To obliczenie opisuje zmianę stanu katalogu. Wzrost liczby nazw uznawanych za gatunki może zachodzić równocześnie ze spadkiem liczebności dzikich populacji. [3]
Rozdział 4Jak powstaje katalog gatunków gadów
Różnica między nazwą a gatunkiem i wpisem w bazie
Nazwa naukowa umożliwia powiązanie informacji z literatury, kolekcji muzealnych i obserwacji terenowych. Nie jest jednak samodzielnym dowodem, że opisane pod nią zwierzęta stanowią odrębny gatunek. Międzynarodowy Kodeks Nomenklatury Zoologicznej reguluje zasady nadawania i stosowania nazw. Nie rozstrzyga natomiast, gdzie biolog powinien wyznaczyć granicę między gatunkami. Można więc przestrzegać reguł nazewnictwa, a jednocześnie różnić się w ocenie pokrewieństwa i odrębności badanych populacji. [11]
To rozróżnienie wyjaśnia, dlaczego opublikowanie nowej nazwy i jej przyjęcie w katalogu nie są tym samym etapem pracy. Pierwsze pytanie brzmi: czy nazwę ustanowiono zgodnie z regułami? Drugie: czy dostępne dowody uzasadniają wyróżnienie taksonu? Trzecie: jakie stanowisko przyjęli redaktorzy konkretnego zestawienia? [11]
Autorzy przeglądu Reptile Database i AmphibiaWeb z 2021 roku opisali ocenianie jakości dowodów oraz konsultowanie spornych propozycji. Podkreślili również, że baza nie zastępuje publikacji źródłowych w rozstrzyganiu kontrowersji. [12]
Granice gatunków wyznacza się na podstawie dowodów
W syntezie opublikowanej w 2007 roku Kevin de Queiroz zaproponował ujmowanie gatunku jako odrębnie ewoluującej linii populacji. W tym podejściu izolacja rozrodcza, możliwość rozpoznania po cechach czy pozycja na drzewie rodowym dostarczają dowodów odrębności. Nie muszą pojawiać się jednocześnie. Jest to określone podejście do problemu, a nie obowiązkowa definicja narzucona wszystkim badaczom. [13]
Tabela 5. Pytania zadawane podczas wyznaczania granic gatunków
Rodzaj informacji | Pytanie badawcze | Jak interpretować wynik |
|---|---|---|
Cechy budowy | Czy badane populacje można wiarygodnie rozróżnić? | Rozpoznawalność jest jedną z linii dowodowych |
Kontakty między populacjami | Jak silna jest wymiana genów tam, gdzie populacje się spotykają? | Ograniczenie wymiany może wspierać odrębność |
Dane genetyczne i drzewo rodowe | Czy ujawniają odrębne linie i zgodny wzorzec różnic? | Strukturę genetyczną trzeba powiązać z pytaniem o gatunki |
Zgodność różnych danych | Czy niezależne informacje prowadzą do podobnego wniosku? | Zbieżne dowody wzmacniają uzasadnienie decyzji |
Tabela porządkuje pytania, nie ustanawia uniwersalnej listy warunków, które każdy gatunek musi spełnić. Opracowanie na podstawie de Queiroza oraz Sukumarana i Knowles. [13, 14]
Dlaczego samo DNA nie daje automatycznej odpowiedzi
Analiza sekwencji pozwala wykrywać zróżnicowanie niewidoczne na pierwszy rzut oka. Znaczenie wykrytej różnicy zależy jednak od zastosowanego modelu i postawionego pytania. Sukumaran i Knowles w pracy z 2017 roku badali symulacje procesu powstawania gatunków oraz wyznaczanie ich granic za pomocą modelu wielogatunkowej koalescencji. Wykazali, że analizowane podejście rozpoznawało strukturę genetyczną, ale samo nie odróżniało struktury między populacjami od granic między gatunkami. [14]
Wynik ten uzasadnia sprawdzanie hipotez genetycznych za pomocą innych danych, między innymi cech budowy i ekologii. Dotyczy konkretnego problemu metodologicznego: nie unieważnia badań DNA ani nie dowodzi, że wszystkie metody stosowane później mają identyczne ograniczenia. Dla czytelnika rewizji taksonomicznej ważne jest zatem ustalenie, czy autorzy wykryli różnice, czy dodatkowo wyjaśnili, dlaczego interpretują je jako granicę gatunkową. [14]
Dwie strefy kontaktu zaskrońców i odmienne wnioski
Dobrym studium przypadku jest praca Kindler i współautorów z 2017 roku. Badacze porównali dwie strefy kontaktu europejskich zaskrońców, wykorzystując dwa markery mitochondrialne i 13 loci mikrosatelitarnych. W rejonie Renu strefa była wąska, a przepływ genów ograniczony i w znacznej mierze jednokierunkowy. W drugiej, położonej dalej na wschód strefie stwierdzono szerokie nakładanie się linii mitochondrialnych oraz silne mieszanie materiału jądrowego. [9]
Po uwzględnieniu także morfologii, pokrewieństwa i oszacowań czasu rozdzielenia linii autorzy uznali zachodnią formę, wcześniej traktowaną jako Natrix natrix helvetica, za odrębny gatunek: Natrix helvetica. Nie potraktowali każdej wykrytej linii mitochondrialnej jako osobnego gatunku. Porównanie dwóch stref pokazało bowiem odmienne stopnie rozdzielenia populacji. W tym przypadku zmiana katalogu wynikała z ponownego zbadania od dawna znanych zwierząt, a uzasadnienie opierało się na zestawieniu kilku rodzajów dowodów. [9]
Opis gatunku musi umożliwiać sprawdzenie nazwy
Kodeks wymaga dla nazw objętych artykułem 13 między innymi opisu lub definicji słownej wskazującej cechy mające odróżniać takson, ewentualnie odpowiedniego odwołania do wcześniejszej publikacji. Przewiduje również odrębny przypadek nazwy zastępczej. Samo umieszczenie nowej nazwy na fotografii nie jest więc równoważne pełnemu opisowi spełniającemu wymagania nomenklatury. [15]
W przypadku nowych nazw gatunkowych i podgatunkowych publikowanych po 1999 roku, z wyjątkiem nazw zastępczych objętych wskazanym w Kodeksie wyjątkiem, należy wyraźnie ustalić holotyp albo syntypy. Jeżeli te okazy istnieją, publikacja musi podawać zamiar ich zdeponowania lub informację o zdeponowaniu oraz nazwę i lokalizację kolekcji. Holotyp jest pojedynczym okazem, do którego przypisana jest nazwa. Syntypy stanowią serię takich okazów, gdy nie ustalono jednego holotypu. [16, 5]
Typ nazewniczy jest punktem odniesienia dla stosowania nazwy. Nie musi być „najbardziej przeciętnym” przedstawicielem gatunku i nie zastępuje badania zmienności populacji. Jego funkcja jest inna: pomaga ustalić, do czego odnosiła się nazwa, także po późniejszej zmianie poglądów systematycznych. [11]
Rangi taksonomiczne i zmiany nazw
Nazwa gatunkowa ma postać dwuczłonową, na przykład Natrix helvetica. Nazwa podgatunku jest trójczłonowa. Podgatunek to ranga poniżej gatunku; jej wyróżnienie nie jest automatycznie opisem kolejnego gatunku. Przeniesienie gatunku do innego rodzaju zmienia natomiast kombinację nazwy rodzajowej i gatunkowej. Są to operacje o odmiennym znaczeniu dla katalogu. [5]
Tabela 6. Jak zmiana taksonomiczna wpływa na odczytywanie zestawienia
Zmiana | Co należy sprawdzić |
|---|---|
Podział dotychczasowego gatunku | Które populacje przypisano poszczególnym gatunkom i na jakich dowodach oparto podział |
Podniesienie podgatunku do rangi gatunku | Czy użyto istniejącej nazwy oraz jak uzasadniono zmianę rangi |
Przeniesienie do innego rodzaju | Czy zmieniła się tylko kombinacja nazwy, czy również granice gatunku |
Uznanie nazw za synonimy | Który takson uznano za wspólny i którą nazwę zastosowano jako właściwą |
To wskazówki interpretacyjne wynikające z rozdzielenia nomenklatury i taksonomii; sama zmiana zapisu nazwy nie przesądza o zmianie liczby gatunków. Zestawiono na podstawie zasad nomenklatury oraz opisanych rewizji zaskrońców i hatterii. [9, 5, 10]
Rewizja może także połączyć wcześniej rozdzielane gatunki
Hay i współautorzy w pracy opublikowanej online w 2009 roku, a w tomie czasopisma z 2010 roku, ponownie ocenili systematykę hatterii. Porównali 26 populacji, korzystając z danych mikrosatelitarnych, rozszerzonego materiału mitochondrialnego i ponownej analizy danych allozymowych. Zalecili uznanie jednego gatunku Sphenodon, zachowując znaczenie jego zróżnicowania geograficznego. Autorzy zaznaczyli możliwość innych interpretacji, a nie przedstawili wyniku jako automatycznego odczytu jednego testu. [10]
Ten przykład wyjaśnia, dlaczego spadku liczby gatunków w katalogu nie można utożsamiać z wymarciem zwierząt. Zmienić może się ocena granic taksonów. Jednocześnie połączenie nazw nie usuwa różnic między populacjami ani nie rozstrzyga samo w sobie, jak należy je chronić. Własne pochodzenie i zróżnicowanie geograficzne pozostają informacjami wymagającymi uwagi. [10]
Jak czytać rekord gatunku
Przy wyszukiwaniu starszych badań warto sprawdzić nie tylko nazwę przyjętą obecnie, ale też synonimy, komentarz taksonomiczny i publikację uzasadniającą zmianę. Autorzy przeglądu baz z 2021 roku opisali korzystanie z literatury, komunikacji z ekspertami i oceny propozycji przez redaktorów. Z tego wynika praktyczna zasada: do szczegółowego twierdzenia o granicach gatunku należy odwołać się również do pracy, w której przedstawiono dowody. Katalog ułatwia dotarcie do tej historii, a data jego wersji pozwala ustalić, jakie rozstrzygnięcia uwzględniono w danym zestawieniu. [12]
Rozdział 5Dawne gady i rekonstrukcja ich historii
Grupa koronna i grupa pniowa
Historia gadów jest szersza niż historia gatunków żyjących obecnie. Współczesna fauna pozwala porównywać genomy, zachowania i fizjologię, natomiast skamieniałości ujawniają linie, które nie pozostawiły żyjących potomków. Dopiero połączenie obu rodzajów informacji pokazuje, jak wiele dawnych rozwiązań budowy zniknęło i jak niepełny obraz przeszłości otrzymalibyśmy, badając wyłącznie dzisiejsze zwierzęta.
W paleontologii przydaje się rozróżnienie grupy koronnej i grupy pniowej. Grupa koronna obejmuje ostatniego wspólnego przodka wszystkich żyjących przedstawicieli rozpatrywanej grupy oraz wszystkich jego potomków. Należą do niej także gatunki wymarłe, jeżeli mieszczą się wewnątrz tak zdefiniowanego drzewa. Grupa pniowa obejmuje wymarłe linie bliższe tej koronie niż jakiejkolwiek innej żyjącej grupie, lecz znajdujące się poza samą koroną. Obie razem tworzą grupę całkowitą. [17, 18]
To rozróżnienie zapobiega utożsamianiu dawnego „krewnego krokodyli” ze współczesnym krokodylem o podobnej ekologii. Dwa opracowania mogą podawać różne początki historii tej samej potocznie nazwanej grupy, ponieważ jedno opisuje jej szerszą linię pniową, a drugie początek grupy koronnej. Przed porównaniem dat trzeba więc ustalić, co dokładnie zostało datowane. Określenie „przodek” również wymaga ostrożności: pozycja blisko podstawy drzewa nie dowodzi, że znaleziony gatunek był bezpośrednim przodkiem wszystkich późniejszych form. [17, 19]

Dinozaury i pozostałe gady kopalne
Nazwa „dinozaur” oznacza konkretną gałąź rodową. Nie obejmuje automatycznie wszystkich dużych zwierząt mezozoiku. Pterozaury należały do archozaurów, lecz znajdowały się poza dinozaurami. Ichtiozaury, plezjozaury i mozazaury reprezentowały odrębne grupy przystosowane do życia w morzu. Wspólne środowisko, podobny wiek geologiczny lub duże rozmiary nie wystarczają do uznania ich za jedną linię ewolucyjną. [20]
Tabela 7. Najważniejsze rozróżnienia wśród znanych zwierząt kopalnych
Grupa lub przykład | Miejsce w klasyfikacji | Co wynika z tego dla opisu |
|---|---|---|
Dinozaury nieptasie | Dinozaury bez linii ptaków | Wymarła część większej grupy, która ma żyjących przedstawicieli |
Ptaki | Dinozaury i archozaury | Historia dinozaurów nie kończy się wraz z wymarciem form nieptasich |
Pterozaury | Archozaury poza dinozaurami | Latające gady należące do innej gałęzi niż ptaki |
Ichtiozaury i plezjozaury | Odrębne linie gadów morskich | Opływowy kształt i płetwy są związane z życiem w wodzie |
Mozazaury | Wymarła linia łuskonośnych | Nazwa „gad morski” nie oznacza odrębnego wspólnego rzędu |
Dimetrodon | Synapsyd poza linią gadów i ptaków | Dawne określenie „gad ssakokształtny” nie odpowiada współczesnemu podziałowi rodowemu |
Źródło rozróżnień między dinozaurami a innymi grupami: Natural History Museum; pozycja mozazaurów w łuskonośnych: przegląd gadów morskich. Tabela nie jest kompletnym drzewem wszystkich owodniowców. [20, 21]
Nie należy również przenosić fizjologii dzisiejszych jaszczurek na każdego kopalnego przedstawiciela gadziej linii. Pokrewieństwo nie oznacza identycznego metabolizmu, tempa wzrostu ani sposobu poruszania się. Rzetelny opis wymarłego zwierzęcia oddziela cechy widoczne w materiale kostnym od interpretacji opartych na porównaniach i modelach. Rekonstrukcja barwy, miękkich tkanek czy zachowania może mieć różny poziom pewności, nawet jeśli sama przynależność taksonomiczna została dobrze ustalona.
Dlaczego najstarsza skamieniałość nie wyznacza początku grupy
Najstarszy prawidłowo oznaczony i datowany okaz dowodzi, że dana linia już wtedy istniała. Nie dowodzi, że powstała dokładnie w tym momencie. Jej wcześniejsi przedstawiciele mogli nie ulec fosylizacji, nie zachować się w dostępnych skałach albo nadal czekać na odkrycie. Z tego powodu skamieniałości często wyznaczają minimalny wiek rozdzielenia linii. Okaz należący do grupy pniowej nie wyznacza jednak sam w sobie minimalnego wieku korony. O tym, który węzeł drzewa można nim datować, decyduje jego położenie filogenetyczne. Ustalenie górnej granicy wieku jest trudniejsze, ponieważ brak znaleziska może oznaczać zarówno rzeczywistą nieobecność, jak i lukę w zapisie. [19]
Datowanie ewolucyjne wymaga zatem trzech osobnych ocen: wieku skały, wiarygodności oznaczenia okazu i miejsca tego okazu na drzewie pokrewieństwa. Zmiana któregokolwiek z tych elementów może przesunąć oszacowanie początku grupy. W komunikacji popularnonaukowej lepiej podać przybliżony przedział wraz z nazwą analizowanej linii niż pozornie precyzyjny rok, którego źródło nie uzasadnia. [19]
Nowe spojrzenie na początki węży
Badanie opublikowane w 2026 roku opisuje kredowego węża Tametara mirim z Brazylii. Mikrotomografia pozwoliła odtworzyć wnętrze mózgoczaszki oraz ucha wewnętrznego. Cyfrowe odlewy jamy mózgowej wykorzystano jako przybliżenie budowy mózgu. Zestawienie cech części odpowiadającej kresomózgowiu z mikrostrukturą kości wskazało na podziemny tryb życia tego zwierzęcia. Dla innego wczesnego węża, Dinilysia, uzyskano przesłanki przemawiające przeciw takiej interpretacji. [22]
Wniosek dotyczy różnorodności ekologicznej wczesnych węży. Nie ustanawia jednego schematu życia wspólnego dla wszystkich ich przodków. Materiał kopalny pokazuje, że już dawne linie mogły wykorzystywać różne środowiska, a cechy pojedynczego przedstawiciela grupy pniowej nie muszą odpowiadać stanowi przodka całej grupy koronnej. To dobry przykład sytuacji, w której nowe odkrycie wzbogaca obraz ewolucji, zamiast zamykać go w jednej prostej historii. [22]
Rozdział 6Jaszczurki
Budowa i różnorodność
Jaszczurki kojarzą się z wydłużonym tułowiem, czterema kończynami i długim ogonem. Taki plan budowy jest częsty, lecz nie uniwersalny. U części linii kończyny uległy skróceniu lub zanikowi. Polskie padalce należą właśnie do beznogich jaszczurek. O przynależności zwierzęcia rozstrzyga jego pochodzenie ewolucyjne i zespół cech, a nie sam kształt ciała.
Określenie „jaszczurki” jest wygodne przy opisywaniu wyglądu i ekologii, ale po wyłączeniu węży nie obejmuje pełnej gałęzi drzewa rodowego. Węże wyewoluowały wewnątrz zróżnicowania łuskonośnych. Ta zależność tłumaczy, dlaczego nowoczesne opracowania nie zawsze stosują dawny szkolny podział na równorzędne „podrzędy jaszczurek i węży”. [1]
Tabela 8. Przykładowe grupy jaszczurek i ich przystosowania
Grupa | Przykład | Cechy i sposób życia |
|---|---|---|
Jaszczurkowate | Jaszczurka zwinka, Lacerta agilis | Zwykle sprawnie poruszające się formy naziemne; ważna rola wygrzewania |
Gekony | Gekon toke, Gekko gecko | U wielu gatunków przylgowe powierzchnie palców; częste życie na pionowych powierzchniach |
Scynki | Scynk ognisty, Mochlus fernandi | Duża różnorodność; w licznych liniach wydłużony tułów i gładkie łuski |
Agamowate | Często dobrze rozwinięta sygnalizacja postawą ciała i ubarwieniem | |
Kameleony | Kameleon lamparci, Furcifer pardalis | Wyspecjalizowany chwyt kończyn; wyrzucany język; zmiany ubarwienia |
Legwanowate | Legwan zielony, Iguana iguana | Wiele dużych form korzystających w znacznym stopniu z pokarmu roślinnego |
Waranowate | Waran z Komodo, Varanus komodoensis | Aktywne poszukiwanie pokarmu; silna rola zmysłów chemicznych |
Padalcowate | Padalec zwyczajny, Anguis fragilis | W rodzinie występują formy z kończynami i beznogie |
Tabela jest wyborem przykładów, a nie pełną listą rodzin. Charakterystyki odnoszą się do wskazanych przykładów lub częstych przystosowań w grupie; nie do wszystkich jej gatunków. Nazewnictwo: Reptile Database; opisy wybranych mechanizmów: [2, 23, 24, 25].
Jak gekon utrzymuje się na ścianie
Przylgi wielu gekonów zawierają mikroskopijne struktury, które zwiększają kontakt stopy z podłożem. Badania doświadczalne wykazały znaczenie sił van der Waalsa. Mechanizm nie wymaga przyssawki ani wydzielania warstwy kleju. Skuteczność zależy jednak od budowy stopy, rodzaju powierzchni i warunków kontaktu. Nie wszystkie gekony mają identyczne przystosowania do wspinaczki. [23]
Co oznacza zmiana barwy kameleona
Barwa może uczestniczyć w komunikacji, regulacji bilansu cieplnego i kamuflażu. U kameleona lamparciego wykazano mechanizm oparty na zmianie odstępów między nanokryształami guaniny w komórkach skóry. Zmiana struktury wpływa na odbijane światło. Popularna opowieść o kameleonie, który odtwarza dowolny kolor podłoża, nie oddaje tej biologii; znaczenie mają również stan zwierzęcia i kontekst społeczny. [24]
Ogon jako narząd obronny
U części jaszczurek występuje autotomia, czyli odrzucenie części ogona w reakcji na zagrożenie. Utrata ogona może zmieniać mechanikę ruchu. W doświadczeniu na gekonach lamparcich wykazano zmiany ustawienia kończyn tylnych i sił oddziaływania z podłożem, bez zmiany prędkości poruszania się. Wynik opisuje konkretny gatunek i warunki badania. [26]
Odrost może różnić się anatomią od pierwotnego ogona, co pokazano między innymi u anolisa zielonego. Regeneracja nie oznacza dokładnego przywrócenia wszystkich wcześniejszych struktur. [27]
Wielokrotna redukcja kończyn
Wydłużenie ciała i skrócenie kończyn powtarzały się w różnych liniach łuskonośnych. Nie jest to jeden etap prowadzący wszystkie jaszczurki ku wężom. W badanej próbie wyróżniono między innymi formy ryjące z krótkim ogonem oraz formy poruszające się głównie na powierzchni, z dłuższym ogonem. Obydwa typy mogą przypominać węże, lecz różnią się proporcjami i sposobem wykorzystywania środowiska. [28]
Rozdział 7Węże
Specjalizacja całego organizmu
Węże mają wydłużone ciało, brak funkcjonalnych kończyn krocznych i narządy dostosowane do takiego planu budowy. Ich ruch opiera się na współpracy mięśni tułowia, kręgosłupa, żeber i kontaktu ciała z podłożem. Sposób przemieszczania zależy od środowiska: inne rozwiązania sprawdzają się na piasku, inne na gałęziach, w wodzie lub w wąskiej kryjówce.
Różnorodność węży obejmuje drobne gatunki związane z glebą, formy nadrzewne, wodne i naziemne. Pokarm jest pochodzenia zwierzęcego, ale może być bardzo różny: od bezkręgowców i jaj po ryby, ptaki oraz ssaki. Budowa głowy i sposób unieruchamiania ofiary są związane z tą specjalizacją. [29]
Połykanie dużej ofiary
Wąż nie musi „wywichnąć szczęki”, aby połknąć pokarm. Dużą ruchomość zapewniają połączenia kości czaszki oraz elastyczne tkanki, w tym więzadło między prawą i lewą częścią żuchwy. Granice możliwej wielkości ofiary zależą od budowy konkretnego gatunku. Nie każdy wąż potrafi połknąć zwierzę o obwodzie wielokrotnie większym od własnego. [29]
Jad i duszenie
Jad jest biologicznym narzędziem oddziaływania na ofiarę lub napastnika. Jego skład, sposób podawania i znaczenie ekologiczne różnią się między liniami węży. Część gatunków unieruchamia pokarm splotami ciała, inne chwyta i połyka niewielkie ofiary bez duszenia. Podział na „jadowite” i „dusiciele” jest zbyt prosty, aby opisać całe zróżnicowanie tej grupy.
Tabela 9. Wybrane linie węży
Rodzina lub podrodzina | Przykład | Charakterystyka orientacyjna |
|---|---|---|
Pythonidae | Pyton królewski, Python regius | Duszenie ofiary; jajorodność |
Boidae | Boa dusiciel, Boa constrictor | Duszenie ofiary; u tego gatunku rodzenie żywych młodych |
Viperidae | Żmija zygzakowata, Vipera berus | Wyspecjalizowany aparat jadowy; składane przednie zęby jadowe |
Elapidae | Kobra indyjska, Naja naja | Przednie zęby jadowe; rodzina obejmuje także liczne formy morskie |
Colubridae, Colubrinae | Wąż Eskulapa, Zamenis longissimus | Duże zróżnicowanie sposobów życia i zdobywania pokarmu |
Colubridae, Natricinae | Zaskroniec zwyczajny, Natrix natrix | Wiele gatunków związanych z wodą; różne proporcje płazów i ryb w diecie |
Tabela nie jest kluczem do rozpoznawania zagrożenia dla człowieka. Nie wolno wnioskować o bezpieczeństwie kontaktu wyłącznie z kształtu głowy, źrenicy albo rysunku na grzbiecie. W części opracowań Natricinae ma rangę rodziny Natricidae; tutaj zachowano klasyfikację Reptile Database. Systematyka: [2, 30]; przykłady rodzime i ich biologia: źródła w rozdziale 22.
Jak węże odbierają otoczenie
Rozwidlony język zbiera substancje chemiczne, które uczestniczą w analizie otoczenia przez układ lemieszowo-nosowy. U niektórych linii występują narządy reagujące na promieniowanie podczerwone. Ich obecność nie jest cechą wszystkich węży. Brak małżowiny usznej i błony bębenkowej również nie oznacza całkowitej głuchoty. Badania wykazały reakcje węży na dźwięki przenoszone przez podłoże i powietrze, z istotnymi różnicami między badanymi rodzajami. [29, 31]
Różnorodność strategii drapieżnych
Porównanie węży z pozostałymi łuskonośnymi ujawnia znaczenie całych zestawów cech, a nie tylko utraty nóg. Badanie Title'a i współautorów z 2024 roku połączyło dane filogenetyczne z informacjami o budowie i pokarmie. Autorzy wykazali odmienne tempo zmian oraz wyjątkowe zróżnicowanie specjalizacji drapieżnych w linii węży. Z ich perspektywy ważne były zarówno wczesne przekształcenia, jak i późniejsze powstawanie kolejnych sposobów wykorzystywania ofiar. [32]
Praktyczna konsekwencja dla opisu grupy jest prosta: dietę, wielkość ofiary i sposób jej chwytania trzeba podawać dla konkretnej linii lub gatunku. Pojedyncza obserwacja dużego pytona nie reprezentuje biologii węży żywiących się niewielkimi bezkręgowcami. Podobnie określenie „drapieżnik” nie mówi, czy zwierzę aktywnie szuka pokarmu, czeka w ukryciu czy łączy te strategie.
Rozdział 8Amfisbeny
Amfisbeny należą do łuskonośnych i są silnie przystosowane do życia pod ziemią. Wydłużone ciało, pierścieniowaty wygląd powierzchni, ograniczone oczy i wyspecjalizowana czaszka ułatwiają funkcjonowanie w glebie. Zewnętrzne podobieństwo do dżdżownicy lub węża bywa mylące. Są kręgowcami o własnej historii ewolucyjnej i nie należy utożsamiać ich z padalcami.
Większość amfisben nie ma kończyn, lecz przedstawiciele rodzaju Bipes zachowali parę kończyn przednich. To dobry przykład, jak niebezpieczne bywają definicje oparte na jednej widocznej cesze. W podziemnym środowisku znaczenie mają właściwości gleby, wilgotność oraz możliwość odbierania drgań. Badania anatomiczne ich ucha wewnętrznego pokazują wyspecjalizowanie związane z takim sposobem życia. [33]
Liczba spotkań ze skrycie żyjącym zwierzęciem nie jest prostą miarą liczby osobników. Dane o gadach mogą być zniekształcone przez różnice wykrywalności i dostępności terenu. W badaniach rozmieszczenia trzeba więc odróżniać stwierdzenia obecności od oszacowań liczebności populacji. [34]
Specjalizacja głowy i ograniczenia jej przebudowy
U amfisben głowa jest częścią aparatu drążącego korytarz. Kazi i Hipsley w analizie z 2018 roku porównali trójwymiarową budowę czaszek karaibskich gatunków. Stwierdzili stosunkowo ograniczony zakres różnic i silne powiązanie kształtu czaszki z żuchwą. Ich interpretacja wskazuje, że wymagania kopania mogą sprzyjać zachowaniu sprawdzonych proporcji, nawet gdy zwierzęta zasiedlają różne wyspy. [35]
To istotny kontrast wobec szerokiego zróżnicowania anolisów w tym samym regionie geograficznym. Dostęp do nowego obszaru nie wywołuje automatycznie równie silnej radiacji w każdej grupie. Znaczenie mają także dotychczasowa specjalizacja i możliwości zmiany sposobu korzystania ze środowiska. Nie należy przy tym przenosić wyników karaibskiej próby na wszystkie amfisbeny świata. [35]
Rozdział 9Żółwie
Pancerz związany ze szkieletem
Żółwie wyróżnia pancerz, którego część grzbietową nazywa się karapaksem, a brzuszną plastronem. Jest on związany z układem kostnym, między innymi z żebrami i kręgami. Żółw nie może wyjść ze skorupy tak, jak krab pustelnik opuszcza muszlę. Pancerz jest częścią jego ciała, a jego uszkodzenie stanowi uraz żywej tkanki. [36]
Powierzchnia pancerza nie zawsze wygląda tak samo. U wielu żółwi występują rogowe tarczki, ale żółw skórzasty ma odmienną konstrukcję, pokrytą skórą. Również możliwość chowania głowy zależy od linii i specjalizacji. Żółwie morskie nie chowają jej w sposób typowy dla licznych gatunków lądowych. [37, 36]
Podział ekologiczny
Tabela 10. Żółwie według środowiska życia
Grupa ekologiczna | Przystosowania | Przykład | Ważne ograniczenie |
|---|---|---|---|
Lądowe | Zwykle mocne kończyny do podpierania ciała; często wypukły pancerz | Testudo hermanni | Nie są przystosowane do długotrwałego życia w wodzie |
Słodkowodne i ziemnowodne | U wielu gatunków sprawne pływanie; zróżnicowane kształty kończyn i pancerza | U żółwia błotnego samice składają jaja na lądzie; inne zachowania zależą od gatunku | |
Morskie | Opływowa sylwetka; kończyny przekształcone w płetwy | Oddychają powietrzem; samice składają jaja na lądzie |
Ten podział opisuje ekologię, a nie trzy równorzędne jednostki taksonomiczne. Źródła: NOAA, materiały o anatomii żółwi oraz atlas krajowy. [37, 36, 38]
W systematyce współczesnych żółwi istotny jest podział na Cryptodira i Pleurodira, tradycyjnie nazywane odpowiednio skrytoszyjnymi i bokoszyjnymi. Sposób zginania szyi odzwierciedla ich odmienną budowę, choć nie u każdego wyspecjalizowanego przedstawiciela można zobaczyć pełne schowanie głowy. W obrębie każdej linii występują dalsze podziały rodzinne. [2] [39]
Życie między wodą a lądem
Żółwie morskie spędzają większość życia w oceanie, ale ich samice wychodzą na plaże lęgowe. Wymaga to ochrony zarówno żerowisk i tras przemieszczania, jak i miejsc składania jaj. Uszkodzenie plaży może wpływać na populację, której osobniki przez resztę roku przebywają daleko od niej. Na świecie wyróżnia się siedem współczesnych gatunków żółwi morskich. [37, 40]
Długowieczność wielu żółwi nie oznacza szybkiej odbudowy populacji. Jeżeli zwierzę późno osiąga dojrzałość i tylko część potomstwa dożywa rozrodu, śmierć dorosłych osobników może mieć szczególnie dotkliwe skutki. W ochronie trzeba analizować cały cykl życia, a nie tylko liczbę jaj w gnieździe. Współczesne analizy wiążą podwyższone ryzyko wymarcia żółwi między innymi z małym zasięgiem i silną presją człowieka. [41]
Gatunki i podgatunki w specjalistycznych katalogach
W opracowaniach o żółwiach można spotkać liczbę gatunków oraz większą liczbę „taksonów”. Nie są to zamienne jednostki. Dziesiąte wydanie Turtles of the World z 2025 roku przyjęło 364 gatunki znane w czasach nowożytnych, od 1500 roku, a po uwzględnieniu 129 dodatkowych jednostek podgatunkowych wykazało 493 taksony. Zakres obejmował także część form wymarłych. Reptile Database z października 2026 roku przyjmuje 365 gatunków. Różnicę należy rozpatrywać w kontekście daty i decyzji taksonomicznych, a nie jako błąd rachunkowy. [42, 3]
Tabela 11. Jednostki i zakresy dwóch zestawień żółwi
Zestawienie | Wartość | Co jest liczone |
|---|---|---|
TTWG 2025 | 364 gatunki | Gatunki przyjęte dla fauny czasów nowożytnych |
TTWG 2025 | 493 taksony | Gatunki i wyróżnione podgatunki w sposobie liczenia katalogu |
Reptile Database październik 2026 | 365 gatunków | Gatunki zaakceptowane w tej wersji bazy |
Źródła: TTWG 2025 i Reptile Database 2026. Wartości nie mierzą liczby osobników, a wiersze nie są składnikami jednej sumy. [42, 3]
Rozdział 10Krokodyle
Cztery znane nazwy i trzy główne rodziny
Rząd Crocodylia obejmuje krokodyle właściwe, aligatory, kajmany i gawiale. W aktualnych ujęciach rodzinnych aligatory oraz kajmany należą do Alligatoridae, krokodyle właściwe do Crocodylidae, a gawiale do Gavialidae. W literaturze starszej można znaleźć inne umiejscowienie niektórych gatunków, dlatego przy szczegółowej systematyce warto podawać źródło klasyfikacji. [2]
Przedstawiciele tej grupy mają masywną głowę, silny ogon i oczy oraz nozdrza położone tak, aby obserwować otoczenie i oddychać przy częściowym zanurzeniu. Skóra zawiera kostne elementy nazywane osteodermami. Związki z wodą nie wykluczają sprawnego poruszania się na lądzie, choć możliwości poszczególnych gatunków różnią się.
Tabela 12. Porównanie głównych rodzin krokodyli
Rodzina | Znane przykłady | Typowe skojarzenie | Zastrzeżenie |
|---|---|---|---|
Crocodylidae | Krokodyle właściwe; różnorodne wody stref ciepłych | Część gatunków żyje również w wodach słonych | |
Alligatoridae | Aligatory i kajmany | Kształt pyska i rozmiary nie są jednakowe w całej rodzinie | |
Gavialidae | Gatunki o wydłużonym pysku | Specjalizacja pokarmowa gawiala nie opisuje całej diety tomistomy |
Źródła: aktualna klasyfikacja Reptile Database i opisy Smithsonian. [2, 43, 44]
Specjalizacja nie oznacza identycznego trybu życia
Gawial gangesowy ma bardzo wąski, wydłużony pysk, który pomaga chwytać ryby. Krokodyl różańcowy jest największym współczesnym gadem pod względem masy ciała i korzysta z różnych środowisk wodnych, w tym słodkich i słonych. Te przykłady pokazują, że nazwa rzędu obejmuje wyraźnie odmienne rozwiązania ekologiczne. [45, 43, 46]
U aligatorów missisipskich samice strzegą gniazda, reagują na głosy młodych i odsłaniają kopiec gniazdowy, pomagając potomstwu się wydostać. Pozostają także z młodymi po wykluciu i chronią je przed drapieżnikami. To udokumentowany przykład opieki nad potomstwem u krokodyli. Nie należy na jego podstawie przypisywać identycznego zestawu zachowań każdemu gatunkowi rzędu. [47]
Współczesne krokodyle a dawna różnorodność ich krewnych
Dzisiejsze półwodne krokodyle reprezentują ograniczoną część dawnej różnorodności krokodylomorfów. Analiza czaszek i żuchw przeprowadzona przez Stubbsa i współautorów obejmowała linie o bardzo różnych sposobach życia, w tym dawne formy lądowe i morskie. Zapis kopalny wskazuje także na występowanie wyspecjalizowanych roślinożerców, wszystkożerców oraz drapieżników. [48]
Autorzy opisali zróżnicowane tempo ewolucji i nie znaleźli podstaw do traktowania długiej historii grupy jako całkowitego zatrzymania zmian. Popularne określenie „żywa skamieniałość” może zatem sugerować zbyt wiele. Podobieństwo współczesnej sylwetki do części dawnych form nie oznacza niezmiennego genomu, braku doboru ani zachowania całego bogactwa ekologicznego, które istniało w przeszłości. [48]
Rozdział 11Hatteria
Hatteria, Sphenodon punctatus, jest jedynym współczesnym gatunkiem zaliczanym do Rhynchocephalia. Występuje naturalnie w Nowej Zelandii. Zewnętrznie przypomina jaszczurkę, ale reprezentuje odrębną linię ewolucyjną. Analiza genomu opublikowana w 2020 roku wskazała rozdzielenie jej linii i łuskonośnych około 250 milionów lat temu. To oszacowanie dotyczy rozgałęzienia drzewa rodowego, a nie wieku dzisiejszego gatunku. [7]
Określenie „żywa skamieniałość” może sygnalizować szczególną wartość ewolucyjną, lecz bywa mylące. Hatteria także podlegała zmianom. Współczesne zwierzę nie jest niezmienionym osobnikiem ani prostą kopią przodka z mezozoiku.
Biologia hatterii obejmuje powolny wzrost, długie życie i stosunkowo wolne tempo rozrodu. Może być aktywna przy chłodniejszej pogodzie niż wiele innych gadów. Ważnym zagrożeniem są introdukowane ssaki, zwłaszcza gryzonie oddziałujące na jaja i młode. Ochrona obejmuje utrzymywanie bezpiecznych ostoi oraz kontrolę obcych drapieżników. Przypadek hatterii pokazuje znaczenie ochrony całej unikatowej gałęzi ewolucyjnej, nawet jeśli reprezentuje ją tylko jeden współczesny gatunek. [49]
Rozdział 12Atlas przystosowań na przykładzie osiemnastu gatunków
Ogólna charakterystyka rzędu lub rodziny nie pokazuje wszystkich możliwości jego przedstawicieli. Poniższe przykłady łączą konkretny gatunek z określonym problemem biologicznym: poruszaniem się, zdobywaniem pokarmu, życiem w słonej wodzie albo modyfikowaniem siedliska. Zestawienie pokazuje, jak różne rozwiązania mogą powstawać w obrębie gadów i dlaczego szczegółowy opis gatunku jest potrzebnym uzupełnieniem klasyfikacji.
Gekon lamparci i granice uogólnień o gekonach
Eublepharis macularius ma ruchome powieki i palce zakończone pazurkami, bez przylg charakterystycznych dla wielu wspinających się gekonów. Jest przykładem naziemnej specjalizacji w grupie często kojarzonej wyłącznie z chodzeniem po szybach i sufitach. W dzień korzysta z kryjówek; aktywność przypada przede wszystkim na ciemną część doby. Odżywia się drobnymi zwierzętami, w tym owadami. [50]
Przykład ten pomaga rozdzielić cechę całej linii ewolucyjnej od cechy części jej przedstawicieli. Informacja „to gekon” nie pozwala jeszcze określić budowy powierzchni palców, pory aktywności ani sposobu korzystania z przestrzeni. Dotyczy to także interpretacji badań nad adhezją: wynik uzyskany dla wyspecjalizowanych szczecinek przylgowych opisuje konkretny mechanizm, którego nie należy przypisywać stopie pozbawionej tych struktur. [23, 50]
Legwan morski i połączenie żerowiska z miejscem ogrzewania
Amblyrhynchus cristatus jest endemitem Galapagos i żeruje na glonach związanych z wybrzeżem. Większe osobniki mogą żerować dalej od brzegu i pod wodą, podczas gdy mniejsze częściej korzystają z zasobów odsłanianych w strefie pływów. Silne pazury pomagają utrzymywać kontakt ze skałami. Nadmiar soli jest usuwany z udziałem wyspecjalizowanych gruczołów nosowych. [51]
Jego dobowa aktywność łączy pobieranie pokarmu w wodzie z wygrzewaniem na lądzie. Ochrona tego zwierzęcia wymaga więc spojrzenia na wybrzeże jako na powiązany układ miejsc żerowania, odpoczynku i rozrodu. Etykieta „gad morski” nie oznacza pełnej niezależności od lądu. Przypadek legwana morskiego pokazuje też, że roślinożerność jaszczurek może obejmować zasoby zupełnie inne niż liście i owoce. [51]
Draco sumatranus i lot ślizgowy
U Draco sumatranus, jaszczurki z rodziny agamowatych, boczny fałd skóry jest podtrzymywany przez wydłużone żebra. Rozłożona błona pozwala przemieszczać się lotem ślizgowym między drzewami. Zwierzę prowadzi dzienny, nadrzewny tryb życia i zjada między innymi mrówki oraz termity. Materiały singapurskiego National Parks Board dokumentują je również w parkach, ogrodach i części terenów miejskich. [52]
Lot ślizgowy różni się od aktywnego lotu napędzanego uderzeniami skrzydeł. Przekształcone żebra jaszczurki nie są też odpowiednikiem skrzydła ptaka jako tej samej struktury anatomicznej. Podobny skutek funkcjonalny, czyli pokonywanie odległości w powietrzu, może wynikać z odmiennej budowy. Gatunek ten jest dobrym przykładem, dlaczego określenia takie jak „latający” trzeba wyjaśniać, zamiast traktować je jako dokładny opis mechaniki ruchu. [52]
Wąż morski i rozród niezależny od plaży
Hydrophis platurus występuje w ciepłych wodach oceanów Indyjskiego i Spokojnego. Australian Museum opisuje jego pelagiczny tryb życia, bocznie spłaszczone ciało i wiosłowaty ogon. Poluje na ryby, również przy powierzchni wody. Rodzi żywe młode, dlatego jego rozród nie wymaga wyjścia samicy na plażę. To wyraźna różnica w porównaniu z żółwiami morskimi, których jaja rozwijają się na lądzie. [53]
W źródłach można spotkać dawną nazwę rodzajową Pelamis. Reptile Database ujmuje ten gatunek jako Hydrophis platurus. Synonimy warto zachowywać przy wyszukiwaniu starszej literatury, lecz w jednym artykule należy konsekwentnie stosować wybrane aktualne nazewnictwo. Obserwacja osobnika wyrzuconego przez prądy poza główny zasięg nie wystarcza, aby uznać, że w danym miejscu istnieje populacja rozrodcza. [54, 53]
Grzechotnik rogaty i przyczepność na piasku
Crotalus cerastes jest znany z ruchu bocznego określanego angielskim terminem sidewinding. Część ciała kontaktuje się z podłożem, a inne odcinki są przemieszczane nad nim. W doświadczeniach opisanych przez Marviego i współpracowników w 2014 roku węże zwiększały długość odcinka ciała pozostającego w kontakcie z piaskiem wraz ze wzrostem nachylenia podłoża. [55]
Znaczenie wyniku wykracza poza samo nazwanie sposobu poruszania się. Pokazuje on, że lokomocja jest regulowana w odpowiedzi na właściwości powierzchni. Autorzy wykorzystali porównanie ze zbudowanym do badań robotem, aby analizować mechanikę ruchu na sypkim podłożu. Nie oznacza to, że każdy wąż porusza się tak samo ani że jeden typ ruchu jest najlepszy we wszystkich warunkach. [55]
Bipes i kończyny w podziemnym świecie
Bipes biporus jest amfisbeną zachowującą parę silnych kończyn przednich. Z tego powodu dobrze ilustruje zmienność budowy w grupie, której większość przedstawicieli jest beznoga. Kończyny uczestniczą w pracy w glebie, a wydłużone ciało umożliwia poruszanie się w wąskich tunelach. Charakterystyczny pierścieniowaty wygląd powierzchni ciała nie powinien prowadzić do mylenia zwierzęcia z bezkręgowcem. [56]
Karta gatunku University of Michigan opisuje rozgałęzione korytarze przebiegające płytko pod powierzchnią luźnej gleby. Podziemny tryb życia utrudnia zbieranie obserwacji: rzadkie spotkania na powierzchni nie przesądzają o małej liczebności populacji. [56]
Żółw skórzasty i zdobywanie miękkiego pokarmu
Dermochelys coriacea wyróżnia się wśród współczesnych żółwi morskich powierzchnią pancerza pokrytą skórą. Jego budowy nie należy opisywać jako całkowitego braku elementów kostnych: pod skórą występuje mozaika drobnych kości. Dieta obejmuje przede wszystkim miękkie zwierzęta pelagiczne, między innymi meduzy i salpy. Budowa jamy gębowej oraz przełyku pomaga zatrzymywać śliski pokarm. [57, 58]
Ten przykład łączy trzy poziomy opisu: przynależność do żółwi, oceaniczny tryb życia i wyspecjalizowaną dietę. Sama nazwa „żółw morski” nie pozwala odtworzyć jego sposobu żerowania. W tej grupie występują zwierzęta korzystające z odmiennych zasobów pokarmowych, dlatego wpływ zmian ekosystemu trzeba oceniać w odniesieniu do konkretnego gatunku i jego żerowisk. [57]
Żółw norowy i schronienia innych zwierząt
Gopherus polyphemus zamieszkuje południowo-wschodnią część Stanów Zjednoczonych. Kopie nory w dobrze przepuszczalnym podłożu i jest przykładem gada, który fizycznie zmienia środowisko dostępne innym organizmom. Florida Fish and Wildlife Conservation Commission wskazuje, że z nor tego żółwia korzysta ponad 350 gatunków. Zakres zależności jest różny: niektóre wykorzystują je okazjonalnie, inne są z nimi silnie związane. [59] [60]
Podana liczba oznacza zbiorczy wykaz gatunków korzystających z tego rodzaju schronień. Nie opisuje liczby zwierząt obecnych jednocześnie w jednej norze. Stabilniejszy mikroklimat i osłona przed niekorzystną pogodą lub ogniem mogą mieć znaczenie dla całych zespołów organizmów. Ochrona żółwia obejmuje w takim przypadku także zachowanie funkcji siedliskowej, którą tworzy jego aktywność. [60]
Aligator i refugia podczas suszy
Alligator mississippiensis w Everglades uczestniczy w tworzeniu i utrzymywaniu zagłębień, w których podczas suchej pory pozostaje woda. U.S. Geological Survey opisuje znaczenie tych miejsc dla ryb i innych organizmów wodnych, a także dla żerujących ptaków. Działalność dużego drapieżnika ma więc skutki związane zarówno ze zjadaniem ofiar, jak i z przekształcaniem fizycznej struktury siedliska. [61]
USGS opisuje te zagłębienia zarówno jako refugia organizmów wodnych, jak i miejsca żerowania ptaków brodzących, żółwi oraz węży. Wynika z tego, że schronienie przed wysychaniem nie musi być schronieniem przed drapieżnikami. Ekologiczny efekt zależy od sezonu i organizmu, którego sytuację oceniamy. [61]
Hatteria i specjalizacja uzębienia
U Sphenodon punctatus po każdej stronie czaszki jeden rząd zębów żuchwy mieści się przy zamykaniu pyska między dwoma górnymi rzędami. Ruch żuchwy ku przodowi pomaga przecinać pokarm. W badaniu Jonesa i współautorów zastosowano model trójwymiarowy, aby wyjaśnić znaczenie podatnego połączenia obu połówek żuchwy dla mechaniki żerowania. Odrębność hatterii od jaszczurek dotyczy więc również szczegółów anatomii niewidocznych na zdjęciu całej sylwetki. [62]
Przypadek ten łączy zachowanie dawnej linii z wyspecjalizowaną funkcją aparatu pokarmowego. Określenie cechy jako odziedziczonej lub nowej wymaga porównania budowy i pokrewieństwa, a nie oceny, czy zwierzę wygląda „archaicznie”. Hatteria jest jedynym współczesnym gatunkiem rzędu Rhynchocephalia, dlatego jej utrata oznaczałaby zanik całej tej zachowanej gałęzi ewolucyjnej. [7, 62]
Chrysopelea paradisi i stabilizacja lotu ślizgowego
Chrysopelea paradisi jest nadrzewnym, aktywnym w dzień wężem z rodziny połozowatych. W Singapurze występuje między innymi w lasach, namorzynach oraz parkach; jego rozmieszczenie obejmuje także inne części Azji Południowo-Wschodniej. Poluje na jaszczurki i niewielkie ptaki. Ciemny grzbiet pokrywają zielone lub żółte plamki, a u części osobników dodatkowo czerwone elementy wzoru. Podczas przemieszczania się między drzewami może spłaszczać ciało i wykonywać lot ślizgowy. Ten zestaw cech pokazuje, dlaczego o biologii gatunku więcej mówi połączenie trybu życia, sposobu zdobywania pokarmu i ruchu niż samo określenie „latający wąż”. Korony drzew są zarówno miejscem jego aktywności, jak i przestrzenią, w której wykorzystuje niezwykłą lokomocję. [63]
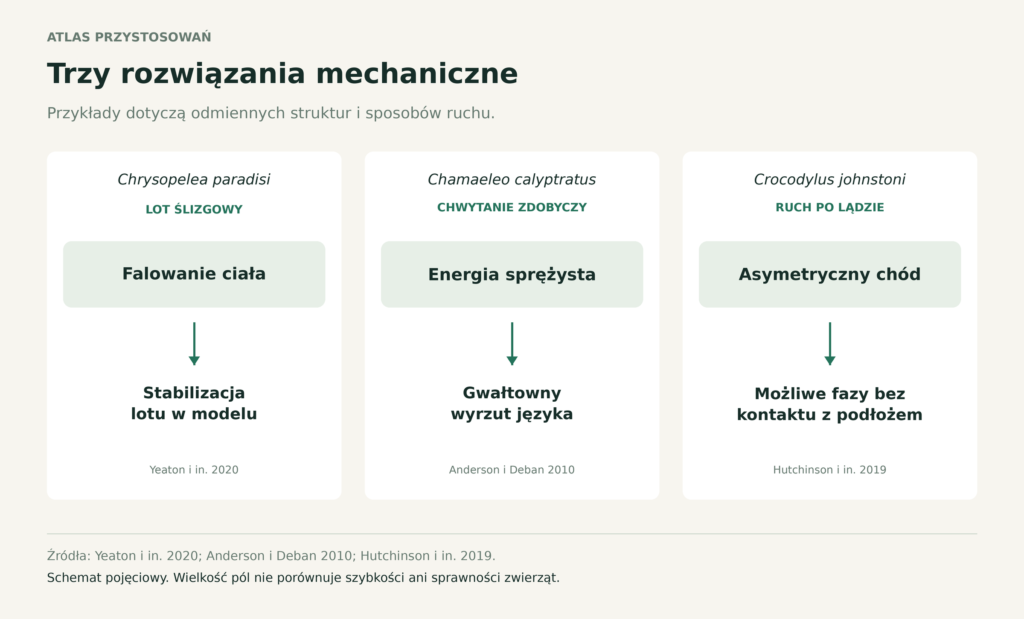
Badanie opublikowane w 2020 r. połączyło szybkie rejestrowanie ruchu z trójwymiarowym modelem uwzględniającym aerodynamikę i bezwładność. Falowanie ciała podczas szybowania zawierało składowe poziomą i pionową, różniące się rytmem oraz wzajemnym przesunięciem. Ich fazy różniły się o 90°, a częstotliwości dwukrotnie, co opisuje skoordynowany ruch przestrzenny, trudniejszy do uchwycenia w nagraniu z jednej strony. W modelu wąż pozbawiony falowania nadal przemieszczał się w poziomie, lecz tracił stabilność obrotową: przechylał się i obracał w sposób uniemożliwiający realistyczny lot. Dodanie zarejestrowanych ruchów stabilizowało trajektorię i poprawiało osiągi. Falowanie nie jest więc tylko przypadkowym powtórzeniem ruchów wykonywanych na podłożu. Pełni funkcję sterującą w powietrzu. Wniosek wynika z połączenia obserwacji zwierząt i porównania symulacji; nie oznacza, że w eksperymencie fizycznie unieruchomiono lecące węże ani że określono jeden uniwersalny zasięg ich lotu. [64]
Anolis aquaticus i ponowne wykorzystanie powietrza pod wodą
U półwodnych anolisów zanurzenie uruchamia zachowanie nazywane ponownym oddychaniem powietrzem z pęcherzyka, czyli rebreathing. Zwierzę wydycha powietrze przez nozdrza, po czym ponownie je wdycha; pęcherzyk pozostaje związany z powierzchnią głowy. Hydrofobowa skóra pomaga zatrzymywać cienką warstwę powietrza podczas nurkowania. W badaniu porównawczym z 2021 r. ciśnienie parcjalne tlenu w pęcherzykach malało u żywych jaszczurek, a nie w kontrolach mechanicznych. Był to dowód wykorzystania zawartego w nich tlenu. Zachowanie występowało także u niektórych anolisów niezwiązanych ściśle z wodą, lecz u gatunków półwodnych było bardziej regularne. Porównanie wskazało zatem stopniowanie specjalizacji, a nie prosty podział na jaszczurki posiadające lub całkowicie pozbawione tej zdolności. [65]
Funkcję pęcherzyka sprawdzono następnie eksperymentalnie u Anolis aquaticus. Gatunek żyje przy strumieniach wilgotnych lasów południowo-zachodniej Kostaryki i zachodniej Panamy; nurkowanie umożliwia mu ukrycie się przed drapieżnikiem w wodzie. Na okolice głowy nanoszono preparat utrudniający utrzymanie normalnego pęcherzyka, pozostawiając drożne nozdrza; grupa kontrolna otrzymywała wodę. Próby odbywały się w zbiorniku ze świeżą wodą strumieniową, a zwierzęta mogły samodzielnie się wynurzyć. Osobniki z prawidłowymi pęcherzykami pozostawały pod wodą dłużej. Nie stwierdzono podobnej zmiany częstości ruchów pompujących okolicy gardłowej, co pozwoliło rozdzielić dwa obserwowane zachowania. Wynik wspiera znaczenie powietrza przenoszonego przy ciele jako dodatkowego zasobu oddechowego. Udział tlenu przechodzącego bezpośrednio z wody do pęcherzyka pozostaje natomiast odrębnym zagadnieniem wymagającym potwierdzenia. Opis tej jaszczurki nie powinien więc sugerować, że posiada skrzela lub może pozostawać pod wodą bez ograniczeń. [66]
Phrynosoma cornutum i transport wody po powierzchni skóry
U Phrynosoma cornutum powierzchnia ciała uczestniczy w zbieraniu wody, która następnie dociera do pyska. Łuski mają drobną ornamentację, a przestrzenie między nimi tworzą układ kapilarny. Mikrostruktura przypominająca plaster miodu sprzyja zwilżaniu powierzchni; autorzy powiązali ten efekt z utrzymywaniem cienkiej warstwy wody w drobnych zagłębieniach. Woda rozchodzi się po powierzchni i wnika do tych kanałów, skąd jest kierowana do miejsca, w którym może zostać połknięta. Opis dotyczy zatem transportu po skórze, a nie pobierania całego zapotrzebowania wodnego bezpośrednio przez jej powłokę. Badacze porównali ten gatunek z australijskim molochem oraz agamą Phrynocephalus arabicus. We wszystkich przypadkach stwierdzili specjalizację mikrostruktury, lecz u P. cornutum przepływ wykazywał wyraźną preferencję kierunku prowadzącego do pyska. Analiza pojedynczych łusek i ich polimerowych replik pomogła oddzielić znaczenie geometrii powierzchni od samego wyglądu zwierzęcia. [67]
Kolejne badanie wyjaśniło, w jaki sposób sieć kanałów może nadawać wodzie preferowany kierunek ruchu. Kanały są częściowo otwarte i połączone, a ich szerokość okresowo się zmniejsza i zwiększa. Zależność między geometrią, zwilżaniem i krzywizną powierzchni cieczy pozwala uzyskać przepływ napędzany siłami kapilarnymi. W tym mechanizmie zwierzę nie pompuje wody skurczami mięśni. Na podstawie obserwacji opracowano model fizyczny i sztuczne powierzchnie transportujące ciecz kierunkowo. Jest to konkretny przykład biomimetyki: do konstrukcji technicznej przeniesiono zasadę działania mikrostruktury. Nie oznacza to jednak, że naturalna skóra jest szczelnym zaworem ani że każdy fragment powierzchni zawsze transportuje wodę identycznie. Znaczenie mają jej kształt i właściwości zwilżania, a kierunkowość dotyczy preferencji przepływu w opisanym układzie. [68]
Waran z Komodo i specjalizacja zębów oraz żerowania
U warana z Komodo, Varanus komodoensis, sposób korzystania z zasobów zmienia się wraz z rozmiarami ciała. Badanie ekologiczne obejmujące wybór wielkości ofiar, przemieszczanie się i areały wykazało przejście od bardziej aktywnego poszukiwania drobniejszego pokarmu ku częstszemu polowaniu z zasadzki na duże zwierzęta kopytne. Zależność między masą a ruchem nie była prostą linią: większe osobniki nie zwiększały bez końca aktywności żerowej. Zmieniały sposób zdobywania pożywienia. Pozwala to ujmować młode i dorosłe warany jako drapieżniki częściowo różniące się rolą ekologiczną. Opis diety gatunku powinien uwzględniać taką zmienność wewnątrz populacji. Lista największych odnotowanych ofiar nie wyjaśnia bowiem, z czego utrzymują się wszystkie klasy wielkości ani jak szukają pokarmu. [69]
Drugą specjalizację wykazało obrazowanie chemiczne i strukturalne zębów. Ich korony są zakrzywione i spłaszczone, z ząbkowanymi krawędziami. W pracy z 2024 r. opisano warstwę wzbogaconą w żelazo, szczególnie wyraźną na wierzchołkach oraz ząbkach krawędzi tnących. Żelazo koncentrowało się w zewnętrznej warstwie grubości 1–2 µm, podczas gdy całe szkliwo miało około 15–20 µm, czyli 0,015–0,020 mm. Pomarańczowa pigmentacja występowała również w zębach jeszcze niewyrżniętych, co przemawia przeciw wyjaśnianiu jej zabrudzeniem pokarmem. Autorzy powiązali tę warstwę z utrzymywaniem ostrych krawędzi mimo cienkiego szkliwa. Odkrycie dotyczy rozmieszczenia składników mineralnych i budowy zęba; nie wymaga sensacyjnych porównań z metalową bronią. Badanie objęło także materiał kopalny, lecz procesy fosylizacji utrudniły jednoznaczne rozpoznanie podobnych powłok u dinozaurów. Waran jest użytecznym modelem porównawczym, ale jego cech nie można automatycznie przypisywać wszystkim wymarłym drapieżnym gadom. [70]
Chelodina rugosa i jaja oczekujące na opadnięcie wody
Australijska Chelodina rugosa dostarcza dobrze udokumentowanego przykładu związku rozrodu żółwia z sezonowym zalewaniem siedliska. Badacze odnajdywali jej gniazda dzięki nadajnikom radiowym umieszczanym w jajowodach samic i następnie składanym razem z jajami. Gniazda znajdowały się w miękkim podłożu pod płytką wodą, w przybrzeżnej strefie okresowo zalewanych zbiorników. Powstawały podczas pory deszczowej i na początku pory suchej. Rozwój zarodków pozostawał zatrzymany do czasu opadnięcia wody i wysychania gruntu. W tym przypadku podwodne położenie gniazda było elementem obserwowanej biologii rozrodu, a nie jedynie domysłem opartym na laboratoryjnej odporności jaj. Kluczowe znaczenie miało powiązanie położenia gniazd z warunkami panującymi w kolejnych częściach sezonu. [71]
Eksperymenty wyjaśniły ograniczenia tego przystosowania. Świeżo złożone jaja C. rugosa przeżywały zanurzenie trwające do 12 tygodni, a następnie po kontakcie z powietrzem rozwój był wznawiany i wykluwały się prawidłowe młode. Zatrzymanie rozwoju utrzymywało się również w atmosferze azotu, co wskazuje na znaczenie dostępności tlenu. Autorzy zinterpretowali warunki niedotlenienia jako przedłużające zatrzymanie rozwoju występujące wcześniej, gdy jaja pozostają jeszcze w jajowodach samicy przed złożeniem. Odporność zależała jednak od etapu rozwoju. Jaja zanurzone po rozpoczęciu rozwoju po złożeniu ginęły. Porównanie z Chelodina longicollis wykazało ponadto, że jej świeżo złożone jaja nie przeżywały zanurzenia dłuższego niż tydzień. Nie jest to zatem ogólna właściwość wszystkich żółwi długoszyich. U C. rugosa bezpieczne oczekiwanie w wodzie wiąże się z utrzymaniem bardzo wczesnego zahamowania rozwoju, a nie z pełną odpornością każdego zarodka na zalanie w dowolnym momencie inkubacji. [72]
Pelodiscus sinensis i wydalanie mocznika przez jamę gębową
Fizjologia żółwia Pelodiscus sinensis pokazuje, że jama gębowa może pełnić dodatkowe funkcje związane z kontaktem organizmu z wodą. W doświadczeniach podczas zanurzenia większa część mocznika opuszczała ciało tą drogą, a nie przez nerki. Gdy zwierzęta przebywały na lądzie z możliwością zanurzenia głowy, takie zanurzenia wiązały się równocześnie z wydalaniem mocznika i pobieraniem tlenu. Udział w tym procesie przypisano kosmkowatym wyrostkom jamy gębowo-gardzielowej oraz rytmicznym ruchom gardła, łącząc obserwację zachowania z analizą wyspecjalizowanej powierzchni nabłonka. Działanie inhibitora transportu mocznika oraz identyfikacja transportera w nabłonku jamy gębowo-gardzielowej wspierały mechanistyczne wyjaśnienie zjawiska. Określenie „oddawanie moczu przez usta” byłoby jednak nieprecyzyjne: mierzono wydalanie konkretnego związku azotowego. Wynik nie oznacza zaniku nerek ani przejęcia wszystkich ich funkcji przez jamę gębową. Dotyczy określonej drogi usuwania mocznika w badanych warunkach i powinien być przedstawiany właśnie na tym poziomie. [73]
Uzupełniające doświadczenie z sześciodniowym pobytem poza wodą wykazało, że żółwie zmieniają zarówno wydalanie, jak i wytwarzanie związków azotowych. Ograniczały oddawanie moczu, co pomagało zmniejszać utratę wody. Jednocześnie silnie spadało wydalanie mocznika, którego usuwanie przez nabłonek jamy gębowej wymaga kontaktu z wodą. Bilans nagromadzonych związków i pomiary aktywności enzymów wskazywały także na ograniczenie syntezy mocznika oraz produkcji amoniaku z aminokwasów. Organizm reagował zatem na zmianę środowiska kilkoma procesami naraz: oszczędzał wodę, modyfikował transport produktów przemiany materii i zmniejszał ich wytwarzanie. Sześciodniowy eksperyment opisuje reakcję na konkretną ekspozycję. Nie ustala maksymalnej długości przeżycia na lądzie ani warunków odpowiednich do długotrwałego przetrzymywania tego wodnego gatunku. [74]
Krokodyl australijski i różnorodność chodu na lądzie
Krokodyl australijski, Crocodylus johnstoni, zamieszkuje rzeki, strumienie i inne zbiorniki słodkowodne północnej Australii. Sezonowe zalewanie otwiera mu dostęp do rozlewisk, natomiast opadanie wody sprzyja skupianiu się zwierząt w większych, głębszych zbiornikach. Wąski pysk i dieta obejmująca między innymi bezkręgowce oraz ryby wyróżniają go na tle popularnego wyobrażenia krokodyla jako łowcy wyłącznie dużych ssaków. Niewielką zdobycz może chwytać bocznym ruchem głowy, oczekując nieruchomo w płytkiej wodzie; większe ofiary zdobywa również przez skradanie się i atak z zasadzki. Ruch na lądzie również jest bardziej zróżnicowany niż powolne pełzanie. Gatunek wykonuje chód z uniesionym tułowiem, podczas którego brzuch i znaczna część ogona nie dotykają ziemi. Spłoszony na lądzie może przejść do gwałtownego galopu w kierunku wody. Zachowanie to należy rozpatrywać w kontekście krótkiego przemieszczenia między bezpiecznymi miejscami, nie jako opis codziennego tempa aktywności. [75]
Porównawcza analiza lokomocji krokodyli pozwoliła oddzielić wzorzec ruchu od osiąganej prędkości. W galopie i skokach typu bounding występuje asymetryczna sekwencja pracy kończyn, a przy bounding ruchy par kończyn rozdziela faza bez kontaktu z podłożem. Zdolności te nie są wyjątkowe dla C. johnstoni: w badaniu zarejestrowano asymetryczne chody u siedmiu gatunków linii krokodyli właściwych. Sposób stawiania kończyn wpływał na częstość kroków i udział czasu kontaktu z ziemią. Alligatoroidea i Crocodyloidea osiągały podobne maksymalne prędkości, chociaż w tej próbie tylko druga linia wykorzystywała chody asymetryczne. W obrębie Crocodyloidea takie chody były natomiast zwykle szybsze od symetrycznych. Porównanie linii ewolucyjnych i porównanie różnych chodów w jednej linii odpowiadają więc na odmienne pytania. [76]
Kameleon jemeński i sprężysty wyrzut języka
Kameleon jemeński, Chamaeleo calyptratus, chwyta zdobycz językiem, którego wyrzut wykorzystuje energię wcześniej zgromadzoną w tkankach sprężystych. Następujące później wciąganie języka wymaga bezpośredniej pracy mięśni i inaczej reaguje na ochłodzenie. W doświadczeniu z pięcioma osobnikami porównano chwytanie świerszczy przy temperaturach ciała 15, 25 i 35°C. Ruch rejestrowano kamerą o dużej szybkości, a jego parametry obliczano z kolejnych położeń języka. Kamera rejestrowała 3000 klatek na sekundę; przed próbami zwierzęta aklimatyzowano w zadanej temperaturze, a temperaturę ciała sprawdzano także po schwytaniu pokarmu. Wyrzut zachowywał relatywnie wysoką sprawność przy niższej temperaturze, podczas gdy powrót języka spowalniał wyraźniej. Oznacza to ograniczenie wrażliwości konkretnej fazy polowania na temperaturę. Nie oznacza niezależności całego zwierzęcia od warunków termicznych ani jednakowej wydolności wszystkich jego mięśni. Rozdzielenie faz ruchu pozwala zrozumieć, dlaczego zdobywanie pokarmu może pozostawać skuteczne mimo ochłodzenia. [77]
Osobnym zagadnieniem jest zmiana aparatu pokarmowego podczas wzrostu. Badanie dwunastu kameleonów jemeńskich, obejmujące małe i duże osobniki, analizowało ruchy szczęk, języka i aparatu gnykowego oraz rozmiary zaangażowanych mięśni. Dorosłe osobniki wykonywały generalnie szybsze ruchy języka i szczęk niż młode. Jednocześnie skala zmian anatomicznych zależała od przyjętej miary odniesienia: długości żuchwy albo długości ciała bez ogona. Jest to powód, dla którego porównania osiągów powinny wyraźnie oddzielać prędkość bezwzględną od wielkości względnych. Wynik dotyczący wzrostu jednego gatunku nie rozstrzyga automatycznie, które gatunki kameleonów mają najsprawniejsze języki. Zamiast tworzyć ranking na podstawie pojedynczego nagrania, można opisać, jak sprawność aparatu chwytnego zmienia się w trakcie życia i jak odnoszono pomiary do rozmiarów zwierzęcia. [78]
Tabela 13. Mechanizmy przystosowań i struktury odpowiedzialne za ich działanie
Gatunek | Kluczowa struktura lub zachowanie | Bezpośrednio badana funkcja |
|---|---|---|
Chrysopelea paradisi | Falowanie podczas lotu | Stabilizacja obrotów ciała w modelu lotu ślizgowego. [64] |
Anolis aquaticus | Pęcherzyk powietrza przy nozdrzach | Wydłużenie nurkowania w kontrolowanym doświadczeniu. [66] |
Phrynosoma cornutum | Kanały między łuskami | Bierne kierowanie wody ku pyskowi dzięki geometrii powierzchni. [68] |
Varanus komodoensis | Powłoka wzbogacona w żelazo | Specjalizacja mineralna wierzchołków i ząbkowanych krawędzi zębów. [70] |
Chelodina rugosa | Wczesne zahamowanie rozwoju | Przetrwanie zanurzenia przez świeżo złożone jaja. [72] |
Pelodiscus sinensis | Nabłonek jamy gębowo-gardzielowej | Usuwanie mocznika do otaczającej wody. [73] |
Crocodylus johnstoni | Uniesienie tułowia i zmiana chodu | Przemieszczanie się po lądzie, w tym szybki odwrót do wody. [75] |
Chamaeleo calyptratus | Sprężyste tkanki aparatu językowego | Wyrzut mniej wrażliwy na ochłodzenie niż mięśniowe wciąganie. [77] |
Tabela 14. Co oznacza liczebność próby i warunki w wybranych badaniach atlasu
Badanie | Próba lub ekspozycja | Zakres prawidłowej interpretacji |
|---|---|---|
Nurkowanie A. aquaticus, 2024 | 28 ukończonych prób; po wyłączeniu jednej obserwacji odstającej analizowano 27 | Porównanie działania pęcherzyka w zbiorniku; nie pomiar maksymalnego czasu nurkowania gatunku. [66] |
Zanurzenie jaj C. rugosa, 1993 | Do 12 tygodni zanurzenia świeżo złożonych jaj | Czas dotyczy badanego etapu rozwoju; nie wszystkich jaj podczas całej inkubacji. [72] |
Lokomocja Crocodylia, 2019 | Łącznie 42 osobniki reprezentujące 15 gatunków | Wielkość całego porównania; nie próba złożona wyłącznie z C. johnstoni. [76] |
Wzrost aparatu chwytnego C. calyptratus, 2014 | 12 osobników o długości od pyska do kloaki około 3–18 cm | Porównanie rozmiarów w obrębie gatunku; nie ranking zdolności wszystkich kameleonów. [78] |
Rozdział 13Jak działa organizm gada
Budowa gadów łączy wspólne dziedzictwo ewolucyjne z przystosowaniami do bardzo różnych warunków życia. Ten sam ogólny plan organizmu pozwala funkcjonować zwince na nasłonecznionej skarpie, wężowi w ściółce i żółwiowi w wodzie. Różnice między tymi zwierzętami dotyczą nie tylko kształtu ciała. Obejmują sposób zdobywania energii, wymiany gazowej, odbierania bodźców i przemieszczania się. Dlatego opis „typowego gada” zawsze wymaga uwzględnienia wyjątków.
Termoregulacja i znaczenie temperatury
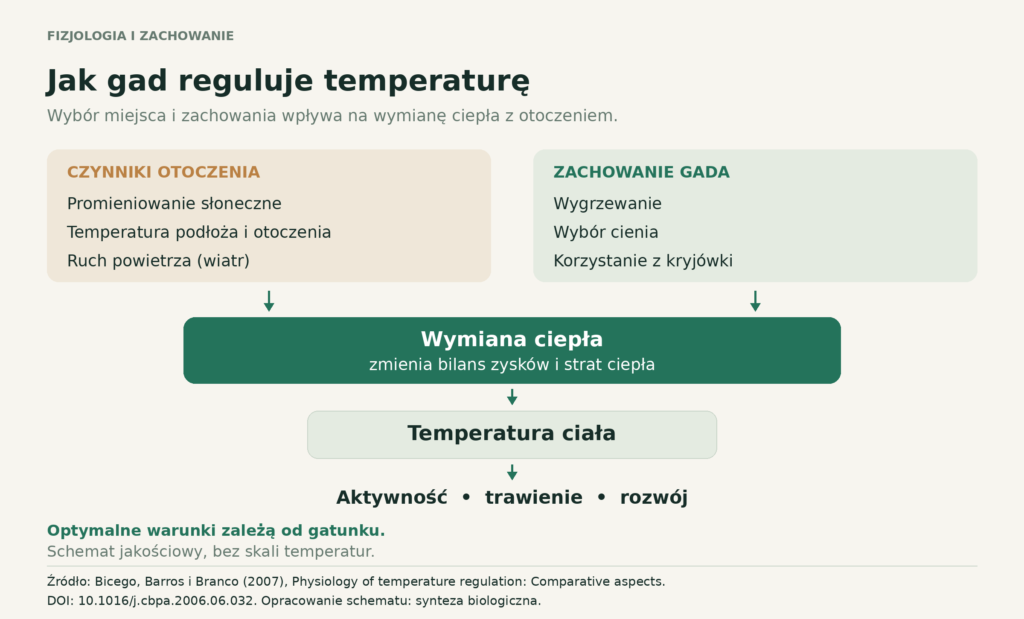
Współczesne gady nieptasie są zasadniczo zwierzętami ektotermicznymi: ciepło pobierane z otoczenia odgrywa główną rolę w ich bilansie cieplnym. Nie oznacza to całkowitego braku ciepła metabolicznego. Każdy żywy organizm wytwarza je podczas przemian chemicznych; różnica dotyczy jego udziału w utrzymywaniu temperatury ciała. Z kolei zmiennocieplność opisuje zmienność tej temperatury, a nie źródło ciepła. Oba pojęcia dotyczą zatem innych właściwości organizmu. [79]
Gad może regulować temperaturę zachowaniem: przemieszcza się między słońcem a cieniem, zmienia ułożenie ciała, korzysta z nor i szczelin. Wygrzewanie jest tylko jedną częścią tego procesu. W gorący dzień równie ważne bywa ograniczanie dopływu ciepła. Temperatura powietrza mierzona w cieniu nie opisuje przy tym wszystkich warunków, których doświadcza zwierzę: nagrzany kamień, wilgotna gleba i osłonięta kryjówka mogą oferować odmienne możliwości. Fizjologia ektotermów zależy więc zarówno od klimatu, jak i od dostępnych miejsc schronienia. [79]
Temperatura wpływa na sprawność ruchową, trawienie i tempo rozwoju. Warunki korzystne dla jednego gatunku mogą ograniczać aktywność innego. Ektotermia nie oznacza więc, że zwierzę zawsze jest chłodne albo że każda podwyżka temperatury będzie dla niego korzystna.
Energia i aktywność sezonowa
Ochłodzenie ogranicza tempo wielu procesów fizjologicznych, ale sezonowość metabolizmu nie wynika wyłącznie z bieżącej temperatury ciała. W badaniu opublikowanym w 2023 roku porównano standardowe tempo metabolizmu 156 osobników należących do 59 gatunków izraelskich łuskonośnych. Dla 32 gatunków wykonano pomiary tych samych osobników latem i zimą. U osobników mierzonych w obu sezonach zużycie tlenu w spoczynku było zimą średnio niższe o 47% przy 20°C i o 70% przy 12°C niż latem przy odpowiadających im temperaturach pomiaru. [80]
Wynik wskazuje na sezonową regulację fizjologiczną wykraczającą poza samo ochłodzenie organizmu. Podane różnice dotyczą warunków doświadczenia i badanych gatunków. Nie są uniwersalnym współczynnikiem dla każdego gada. W przyrodzie zimowanie łączy ograniczenie aktywności z wyborem odpowiedniej kryjówki i korzystaniem z zasobów zgromadzonych wcześniej. Dlatego ochrona stanowiska wymaga uwzględnienia także miejsc przetrwania niekorzystnej pory roku.
Skóra i pancerz
Białka rogowe i lipidy naskórka współtworzą barierę ograniczającą utratę wody. Linienie odnawia powierzchniowe warstwy naskórka; nie oznacza wymiany całej skóry. Mechanizmy jej budowy i odnowy rozwinięto w rozdziale „Skóra i procesy odnowy tkanek”. [81] [82]
Rogowe łuski należy odróżniać od osteoderm, czyli elementów szkieletowych rozwijających się wewnątrz skóry. Badania ontogenezy aligatora pokazały, że osteodermy mają odrębny przebieg powstawania i nie są histologicznie jednorodne. [83]
Oddychanie i krążenie
Gady oddychają płucami, również wtedy, gdy znaczną część życia spędzają w wodzie. Nurkujące gatunki muszą gospodarować zapasem tlenu, a u niektórych żółwi wymianę gazową uzupełniają drogi pozapłucne. Sposób wentylowania płuc zależy od budowy ciała. Sztywny pancerz żółwia wymaga innych rozwiązań mechanicznych niż ruchliwy tułów jaszczurki. [84]
Nie należy też przypisywać wszystkim gadom identycznego serca. U jaszczurek i węży występują dwa przedsionki i komora podzielona wewnętrznie w sposób niepełny. [85] Krokodyle mają dwa przedsionki i dwie całkowicie oddzielone komory. Ich dwa łuki aorty oraz połączenia między naczyniami umożliwiają szczególne kierowanie przepływem krwi, w tym przepływ omijający krążenie płucne. To pokazuje, dlaczego sama liczba jam serca nie opisuje w pełni jego działania. Określanie układu krążenia krokodyli jako „prymitywnego” zaciera rzeczywiste przystosowania fizjologiczne. [86]
Wentylacja płuc dopasowana do budowy ciała
W opisie oddychania trzeba rozdzielić wentylację, czyli przemieszczanie powietrza, od wymiany tlenu i dwutlenku węgla między powietrzem a krwią. Sprawny ruch powietrza zależy od mięśni oraz od możliwości zmiany objętości tułowia. Pancerz, wydłużenie ciała albo chwilowe unieruchomienie części żeber zmieniają warunki mechaniczne, w których pracują płuca. Dzięki temu porównanie układów oddechowych pozwala zrozumieć również ograniczenia wynikające z całego planu budowy zwierzęcia.
U żółwi żebra włączone w pancerz nie mogą rozszerzać klatki piersiowej tak jak ruchome żebra jaszczurki. Wentylację umożliwia wyspecjalizowany układ mięśni tułowia, który przemieszcza trzewia i zmienia przestrzeń dostępną dla płuc. Ruchy kończyn i głowy mogą zmieniać objętość wnętrza pancerza, lecz nie zastępują całego aparatu oddechowego. Ten opis dotyczy anatomii i funkcji współczesnych żółwi. [87]
Inny problem rozwiązuje boa dusiciel. Owinięcie ciała wokół ofiary ogranicza ruch niektórych żeber, a duży połykany pokarm dodatkowo odkształca tułów. Capano i współpracownicy wykazali, że Boa constrictor może przenosić ruchy wentylacyjne między odcinkami ciała: gdy ruch jednej części jest utrudniony, w oddychaniu uczestniczy inna. W doświadczeniu kontrolowane ograniczenie ruchu ściany ciała połączono z obrazowaniem i pomiarami ruchów żeber. Wynik wyjaśnia mechanizm konkretnego gatunku; nie oznacza, że wszystkie węże mają identyczny układ płuc lub jednakowo sterują każdą częścią tułowia. [88]
Tabela 15. Różne rozwiązania mechaniczne przy wspólnej funkcji płuc
Przykład | Ograniczenie budowy | Rozwiązanie opisane w badaniach |
|---|---|---|
Żółwie | Żebra związane ze sztywnym pancerzem | Zmiana objętości jamy ciała przez wyspecjalizowane mięśnie tułowia |
Boa dusiciel | Miejscowe ograniczenie ruchów tułowia | Przełączanie aktywnych odcinków żeber podczas wentylacji |
Złożony układ dróg oddechowych wewnątrz płuc | Jednokierunkowy przepływ w części dróg płucnych podczas obu faz oddechu |
Źródła: [87, 88, 89]. Tabela zestawia mechanizmy na różnych poziomach organizacji; nie stanowi rankingu wydajności oddechowej.
Jednokierunkowy przepływ wewnątrz części płuc stwierdzono między innymi u warana stepowego (Varanus exanthematicus). „Jednokierunkowy” nie znaczy tutaj, że powietrze stale wchodzi jedną dziurką nosa, a wychodzi drugą. Określenie dotyczy kierunku przepływu w określonych obszarach płuca podczas wdechu i wydechu. Zjawisko to nie jest zastrzeżone dla ptaków. Zarazem obecność takiego przepływu sama w sobie nie dowodzi ptasiego tempa metabolizmu ani identycznej wydajności wymiany gazowej. [89]
Woda i sól jako odrębne wyzwania fizjologiczne
Ograniczanie utraty wody przez skórę nie zwalnia gada z konieczności utrzymywania bilansu wodnego. Zwierzę musi równoważyć dopływ wody z jej stratami, a jednocześnie regulować ilość rozpuszczonych soli. Są to powiązane, lecz odrębne zadania. Samo życie w wodzie nie gwarantuje, że organizm ma dostęp do wody o odpowiednim zasoleniu. Z tego powodu siedliska morskiego nie można traktować po prostu jako środowiska, w którym problem odwodnienia znika.
Dobrym przykładem jest pelagiczny wąż morski Hydrophis platurus. W badaniu terenowym u wybrzeży Kostaryki osobniki pozyskane po długich okresach bez opadów miały niższą zawartość wody w organizmie i częściej piły wodę słodką niż zwierzęta z okresów deszczowych. Wyniki wskazywały, że mogą uzupełniać wodę dzięki warstwom mniej słonej wody tworzącym się przy powierzchni morza po obfitym deszczu. Autorzy wykazali więc istotny związek między dostępnością opadów a fizjologią całkowicie morskiego gada. Nie należy przenosić tego wyniku na wszystkie węże morskie ani na żółwie morskie. [90]
Z ekologicznego punktu widzenia rozróżnienie temperatury i dostępności wody ma duże znaczenie. Dwa miejsca o podobnej temperaturze mogą zapewniać odmienne warunki nawodnienia. Zmiany opadów, długości pory suchej i zasolenia mogą zatem działać na zwierzę niezależnie od średniego ocieplenia. Ocena jakości siedliska wymaga sprawdzenia, jaki zasób faktycznie ogranicza aktywność lub przeżywanie danego gatunku.
Lokomocja i obrona
W obrębie łuskonośnych występują formy z czterema kończynami, z kończynami zredukowanymi oraz całkowicie beznogie. Ogon może pomagać w poruszaniu się, chwytaniu podpory albo magazynowaniu energii. U części jaszczurek jego odrzucenie stanowi mechanizm obronny, lecz zdolności do autotomii i regeneracji nie wolno przypisywać wszystkim gadom. [25]
Sam kształt ciała nie rozstrzyga o pokrewieństwie. Padalec i wąż mogą wyglądać podobnie, ponieważ wydłużona, beznoga sylwetka sprawdza się w określonych warunkach przemieszczania. Podobieństwo zewnętrzne trzeba zestawiać z anatomią i historią ewolucyjną. Jest to jedna z głównych przyczyn, dla których współczesna systematyka nie opiera się wyłącznie na łatwo dostrzegalnych cechach.
Czym gady różnią się od płazów
Podobny rozmiar, życie przy stawie lub pełzający sposób ruchu nie oznaczają tej samej przynależności. Salamandra i traszka są płazami. Żółw błotny oraz zaskroniec są gadami. Najważniejsze różnice dotyczą rozwoju zarodka, skóry i sposobów wymiany gazowej.
Tabela 16. Podstawowe porównanie gadów i płazów
Cecha | Gady nieptasie | Płazy |
|---|---|---|
Skóra | Zrogowaciałe struktury naskórka ograniczające utratę wody | Zwykle cienka, wilgotna i silnie przepuszczalna |
Owodnia | Występuje w rozwoju zarodkowym | Nie występuje |
Zapłodnienie | Wewnętrzne | Zewnętrzne lub wewnętrzne, zależnie od grupy |
Oddychanie | Płuca; u części gatunków dodatkowa wymiana pozapłucna | Udział skóry, płuc i skrzeli zależy od gatunku oraz stadium życia |
Zestawienie opisuje najważniejsze różnice, z zachowaniem zmienności biologicznej. Nie wszystkie płazy mają wolno żyjącą larwę wodną i nie wszystkie dorosłe płazy oddychają płucami. [84, 91]
Rozdział 14Skóra i procesy odnowy tkanek
Warstwy o różnych zadaniach
Skóra gada jest żywym narządem, którego najbardziej zewnętrzna część może być silnie zrogowaciała. Nie należy utożsamiać całej skóry z samą łuską ani traktować jej jako biernego opakowania. W naskórku powstają komórki budujące warstwę rogową; leżąca głębiej skóra właściwa stanowi odrębny przedział tkankowy. Wzajemne oddziaływania obu warstw mają znaczenie już podczas rozwoju łusek. Dlatego podobny wygląd powierzchni nie oznacza identycznej budowy lub tego samego przebiegu powstawania struktur. [92]
Materiał rogowy gadów zawiera zarówno keratyny tworzące filamenty pośrednie, jak i rogowe białka beta, określane w starszej literaturze jako beta-keratyny. Badania mikroskopowe z użyciem znakowania immunologicznego wykazały odkładanie tych drugich na wcześniej powstałym rusztowaniu białkowym w rozwijającym się naskórku przedstawicieli kilku linii gadów. Współczesna terminologia rozróżnia te rodziny białek. Zdanie, że łuska „jest z keratyny”, pomija zatem złożoność jej materiału i procesu rogowacenia. [81]
Znaczenie lipidów dla bariery wodnej skóry
Odporność na utratę wody zależy również od składników tłuszczowych. Burken, Wertz i Downing zbadali wylinki ośmiu gatunków węży. Po chemicznym usunięciu lipidów przepuszczalność dla wody wyraźnie wzrastała. Był to eksperyment na oddzielonym materiale, stanowiącym granicę między wodą a suchym powietrzem. Pokazuje udział lipidów w działaniu bariery, ale nie mierzy bezpośrednio tempa odwodnienia żywego węża w jego siedlisku. [82]
Rozróżnienie to pozwala zrozumieć, dlaczego sama grubość lub twardość łuski nie wystarcza do oceny ochrony przed wysychaniem. Znaczenie ma także skład i organizacja warstwy rogowej. Wyniku laboratoryjnego nie należy przeliczać na jedną „odporność gadów na suszę”: badanie materiału skórnego odpowiada na węższe pytanie niż pomiar bilansu wodnego całego zwierzęcia. Zakres doświadczenia określa mechanizm, który został w nim sprawdzony. [82]
Jak powstaje wzór łusek
W pracy Di-Poïa i Milinkovitcha porównano rozwój skóry krokodyla nilowego, agamy brodatej i węża zbożowego. Wykryto przemijające plakody, czyli miejscowe zgrubienia naskórka poprzedzające powstawanie łusek, wraz z charakterystyczną aktywnością szlaków sygnałowych. U analizowanych agam z zaburzeniem funkcji genu EDA brak prawidłowych plakod towarzyszył brakowi łusek. Wyniki wspierają pokrewieństwo mechanizmów rozwoju wytworów skóry owodniowców. Nie oznaczają jednak, że łuska, pióro i włos są identyczne pod względem późniejszego wzrostu i budowy. [92]
Szczególny przypadek stanowią wielokątne pola na pysku i szczękach krokodyli. Badanie opublikowane elektronicznie w grudniu 2024 roku, w tomie „Nature” z 2025 roku, połączyło doświadczenia na zarodkach krokodyla nilowego z obrazowaniem i modelem mechanicznym. Autorzy wykazali, że granice tych pól powstają przez fałdowanie skóry pod wpływem ściskania, związanego z jej wzrostem względem głębiej położonych tkanek oraz odmienną sztywnością warstw. Nie należy opisywać tego jako zwykłego pękania wysychającej skóry. Mechanizm dotyczy określonej okolicy głowy i nie zastępuje wyjaśnienia rozwoju łusek tułowia. [93]
Linienie i regeneracja oznaczają różne procesy
Linienie odnawia zewnętrzne warstwy naskórka. W cyklu odnowy łuskonośnych nowa generacja warstw powstaje pod starszą, a wyspecjalizowana warstwa powierzchniowa uczestniczy w ich rozdzielaniu. Zrzucana osłona nie jest więc całą skórą wraz z głębszymi tkankami. Mechanizmu tego nie należy utożsamiać z odtwarzaniem utraconej części ciała. [81]
Regeneracja ogona wymaga odbudowy wielu tkanek. U anolisa zielonego (Anolis carolinensis) Lozito i Tuan badali źródła komórek tworzących odrastający szkielet. Zamiast odtworzenia pierwotnego szeregu kręgów powstaje przede wszystkim rurka chrząstkowa otaczająca odrastającą część rdzenia kręgowego. Jej część bliższa miejscu utraty i część dalsza różnią się pochodzeniem komórek oraz przebiegiem rozwoju; odcinek bliższy może następnie kostnieć. „Ogon odrósł” oznacza więc odzyskanie części ciała o zmodyfikowanej anatomii. Nie jest równoznaczne z przywróceniem każdego elementu pierwotnego szkieletu. [27]
Także skutki funkcjonalne wymagają pomiaru. Jagnandan i współpracownicy obserwowali siedem dorosłych samic gekona lamparciego przed utratą ogona, po niej i podczas regeneracji. Wykryli zmiany ustawienia kończyn tylnych oraz sił działających na podłoże, bez odpowiadającej im zmiany prędkości ruchu w badanych warunkach. Część parametrów powracała do wcześniejszych wartości w trakcie odrastania. Przykład pokazuje, że zwierzę może zmienić sposób poruszania się, zachowując podobną prędkość; sam pomiar szybkości nie opisuje całej sprawności mechanicznej. Mała próba jednego gatunku nie określa skutków autotomii u wszystkich jaszczurek. [26]
Tabela 17. Odnowa powierzchni a odbudowa ogona
Proces | Co jest odnawiane lub odtwarzane | Co wynika z opisanych badań |
|---|---|---|
Rogowacenie | Materiał zewnętrznych warstw naskórka | Uczestniczą różne rodziny białek |
Linienie | Generacje powierzchniowych warstw naskórka | Nie oznacza zrzucenia całej skóry |
Regeneracja ogona anolisa | Wiele tkanek utraconego odcinka | Szkielet odrostu ma zmienioną organizację |
Powrót funkcji po autotomii | Współdziałanie odrostu i reszty ciała | Prędkość i mechanika chodu to różne miary |
Źródła: [81] [27] [26]. Dwa ostatnie wiersze odnoszą się do wskazanych gatunków i doświadczeń.
Rozdział 15Dieta i przemiany pokarmu w energię
Posiłek uruchamia ciąg różnych procesów
Zdobycie i połknięcie pokarmu rozpoczyna dalszą pracę układu trawiennego. Trzeba rozdzielić fizyczne przetwarzanie posiłku, chemiczny rozkład jego składników, wchłanianie i późniejsze wykorzystanie substancji przez tkanki. Jedna miara, na przykład czas pozostawania zdobyczy w żołądku, nie opisuje wszystkich tych etapów. Badania pytonów dobrze pokazują, że po posiłku zmieniają się zarówno czynności wydzielnicze, jak i organizacja oraz aktywność narządów. Są jednak przykładem wyspecjalizowanej strategii, a nie uniwersalnym wzorcem trawienia każdego gada. [94]
Praca żołądka i jej koszt energetyczny
W doświadczeniach Secora na pytonach birmańskich mierzono zakwaszanie zawartości żołądka, tempo przetwarzania posiłku oraz poposiłkowy wzrost zużycia tlenu. Porównywano również pokarm podany w różnej postaci, zmieniającej zakres pracy żołądka. Wyniki wiązały odpowiedź metaboliczną z zadaniem, jakie musi wykonać przewód pokarmowy: całe zwierzę stanowi inne wyzwanie niż rozdrobniony materiał. Dlatego informacji „pyton zjadł gryzonia” nie wystarczy do odtworzenia wszystkich warunków doświadczenia. [94]
Z badania nie wynika jeden stały udział kosztów żołądka w bilansie energetycznym wszystkich węży. Porównanie wymaga określenia gatunku, wielkości i postaci posiłku oraz warunków pomiaru. Nie należy też utożsamiać całkowitego zużycia tlenu po jedzeniu z wydatkiem na samo wydzielanie kwasu: wynik obejmuje nakładające się czynności organizmu. [94] [95]
Jelito dostosowuje budowę do obciążenia
Starck i Beese połączyli obrazowanie z analizą mikroskopową jelita cienkiego pytona birmańskiego. Zaobserwowali odwracalne i powtarzalne zwiększanie jego rozmiarów po posiłku. Istotna była kolejność zmian: szybkie powiększenie nie wymagało równoczesnego nasilenia podziałów komórkowych, a najwyższa aktywność proliferacyjna następowała później. Oznacza to, że wzrost rozmiarów narządu nie musi być prostym odpowiednikiem natychmiastowego zwiększenia liczby jego komórek. [96]
Autorzy wiązali wczesną odpowiedź między innymi ze zmianą organizacji nabłonka i uwodnienia struktur kosmków. To interpretacja wyników dla badanego narządu i gatunku, a nie twierdzenie, że każdy gad przebudowuje jelito w identycznym zakresie. Pokazuje jednak, dlaczego w fizjologii warto pytać nie tylko, „jak duży jest narząd”, lecz również kiedy go zmierzono i na jakim etapie trawienia znajdowało się zwierzę. [96]
Skąd pochodzi energia na trawienie
Poposiłkowy wzrost przemian metabolicznych nazywa się swoistym działaniem dynamicznym pokarmu, często oznaczanym skrótem SDA. Aby ustalić źródło energii napędzającej tę odpowiedź, Starck i współpracownicy podawali pytonom królewskim (Python regius) zdobycz wzbogaconą w stabilny izotop węgla, a następnie analizowali wydychany dwutlenek węgla. Sygnał izotopowy potwierdził wykorzystywanie składników właśnie zjedzonej zdobyczy. [97]
Wniosek dotyczy źródła paliwa metabolicznego, a nie „darmowego” trawienia. Organizm ponosi koszt przetworzenia posiłku, lecz część energii do jego pokrycia może czerpać z tego samego posiłku. Zwiększone zużycie tlenu nie oznacza zatem, że cała dodatkowa energia musi pochodzić z zapasów zgromadzonych przed żerowaniem. To osobne pytanie od tego, ile energii po zakończeniu wszystkich procesów pozostanie na inne funkcje. [97]
Regulacja obejmuje wiele narządów
W badaniu Duana i współpracowników porównano aktywność genów w sercu, wątrobie, żołądku, trzustce i jelicie pytona birmańskiego. Analiza transkryptomów obejmowała sześć zwierząt, po dwa w stanie na czczo oraz po 24 i 48 godzinach od posiłku. Wykryto zmiany związane z odpowiedzią metaboliczną w różnych narządach. Badano również skład białkowy płynu żołądkowego, w odrębnej części doświadczenia. [95]
Liczba przeanalizowanych genów nie zastępuje liczby niezależnych osobników. Taki projekt pomaga wskazywać mechanizmy regulacji, ale nie wyznacza zakresu zmienności całego gatunku. Ponadto wzrost ilości RNA danego genu nie jest tym samym pomiarem co aktywność gotowego enzymu. Wspólna interpretacja danych o budowie, białkach i metabolizmie jest zatem pełniejsza niż wybór jednej efektownej liczby. [95]
Roślinożerność i udział mikroorganizmów
U roślinożernych gadów część przetwarzania pokarmu wiąże się z mikroorganizmami przewodu pokarmowego. Mackie i współpracownicy badali żyjące na Galapagos legwany morskie oraz legwany lądowe Conolophus pallidus. Połączyli oznaczenia produktów fermentacji z obserwacjami mikroskopowymi i badaniami bakterii. Wyniki dostarczyły bezpośrednich dowodów aktywności fermentacyjnej oraz obecności licznych mikroorganizmów beztlenowych. [98]
Fermentacja umożliwia wykorzystanie części złożonych składników roślinnych, których sam zestaw enzymów gospodarza nie rozkłada skutecznie. Jej produkty obejmują krótkołańcuchowe kwasy tłuszczowe. Nie jest to jednak dowód, że wszystkie jaszczurki dysponują jednakową zdolnością do przetwarzania pokarmu roślinnego albo że każda część rośliny ma podobną wartość. Mechanizm trzeba odnosić do konkretnego gospodarza, jego diety i mikroorganizmów. [98]
Późniejsze porównanie sekwencji bakteryjnego genu 16S rRNA w próbkach kału legwanów wykazało różnice składu mikrobioty między grupami o odmiennej diecie. Hong i współautorzy interpretowali je jako zgodne z udziałem żywienia w kształtowaniu zespołów drobnoustrojów. Było to porównanie obserwacyjne: różnice gospodarzy, miejsc występowania i diety nie zostały rozdzielone kontrolowaną zamianą pokarmu. Sama sekwencja użyta do identyfikacji bakterii nie mierzy też szybkości rozkładu konkretnego wielocukru. [99]
Tabela 18. Różne pomiary odpowiadają na różne pytania o trawienie
Pomiar | Co pomaga ustalić | Czego sam nie rozstrzyga |
|---|---|---|
Zużycie tlenu | Rozmiar odpowiedzi metabolicznej | Kosztu pojedynczego narządu |
Obrazowanie i histologia jelita | Zmianę wielkości oraz organizacji tkanek | Ilości energii uzyskanej z posiłku |
Izotopy w wydychanym CO₂ | Pochodzenie utlenianych składników | Całego bilansu energetycznego |
Produkty fermentacji i bakterie | Udział procesów mikrobiologicznych | Jednakowej zdolności wszystkich gadów |
Sekwencje markerów mikrobioty | Różnice składu badanych zespołów | Bezpośredniego tempa trawienia |
Źródła: [94] [96] [97] [98] [99]. Każda metoda ujmuje inny etap przetwarzania pokarmu.
Rozdział 16Gady w skrajnych warunkach środowiska
Przetrwanie zimy lub suszy zależy od konkretnego problemu fizjologicznego. Temperatura poniżej zera może zagrażać powstawaniem lodu, zanurzenie bez dostępu do tlenu wymaga poradzenia sobie z przemianami beztlenowymi, a brak opadów ogranicza uzupełnianie wody. Poszczególne mechanizmy warto rozpatrywać oddzielnie, nawet jeżeli występują u tego samego gatunku. Szczególnie dobrze pokazują to doświadczenia z żółwiem malowanym oraz badania pustynnych jaszczurek i żółwi.
Przechłodzenie i tolerancja zamarzania
Przechłodzenie oznacza utrzymanie płynnej wody w temperaturze, przy której mogłaby już zamarznąć. Tolerancja zamarzania dotyczy natomiast przeżycia rzeczywistego powstania lodu w organizmie. Klasyczne doświadczenie z młodymi żółwiami malowanymi, opisanymi jako Chrysemys picta marginata, potwierdziło tę drugą zdolność. Osobniki pobrane z gniazd wiosną przetrwały 24 godziny zamrożenia przy −4°C; po odtajaniu odzyskiwały sprawność. Silniejsze zamrożenie zastosowane w tej samej pracy okazało się śmiertelne. Biologiczny opis tolerancji obejmuje więc stan wody w tkankach, przebieg ekspozycji oraz późniejszy powrót funkcji organizmu. Wynik dotyczył młodych, określonej pory roku i konkretnego doświadczenia. Nie wyznacza temperatury bezpiecznej dla wszystkich żółwi. [100]
Odporność młodych Chrysemys picta zmienia się podczas przygotowania do zimy. W doświadczeniu obejmującym stopniową aklimację z 22 do 4°C przez 5,5 miesiąca poprawiała się zdolność przechłodzenia oraz opierania się zamarzaniu inicjowanemu przez kontakt z lodem w podłożu. Zmiany wiązały się między innymi z usuwaniem lub unieczynnianiem substancji zapoczątkowujących krystalizację i ze wzrostem osmolalności krwi, do którego przyczyniało się zatrzymywanie mocznika. Autorzy nie stwierdzili towarzyszącego temu nagromadzenia typowych małocząsteczkowych krioprotektantów, takich jak cukry czy wieloalkoholowe związki ochronne. Obraz sezonowej aklimacji był zatem inny niż proste napełnianie organizmu płynem przeciw zamarzaniu. Zdolność przeżycia zimna rozwijała się wraz ze zmianą stanu fizjologicznego, dlatego wynik uzyskany u świeżo wyklutego żółwia nie opisuje automatycznie osobnika przygotowanego do zimowania. [101]
Podłoże gniazda współtworzy warunki zimowania
Znaczenie mają także właściwości otoczenia bezpośrednio stykającego się z ciałem. W badaniu młodych żółwi malowanych porównano osobniki utrzymywane na papierze, wermikulicie i glebie pochodzącej z miejsc gniazdowania. Substancje obecne w glebie mogły skutecznie inicjować tworzenie lodu, ograniczając przechłodzenie zwierząt. Niektóre organiczne czynniki rozpuszczalne w wodzie zachowywały taką aktywność przez co najmniej miesiąc. Badacze sprawdzili również popularne wyjaśnienie, zgodnie z którym jesienna poprawa odporności wynika przede wszystkim z opróżnienia przewodu pokarmowego. Zdolność przechłodzenia zwiększała się jednak także u żółwi przebywających na papierze, które wcześniej nie pobrały cząstek podłoża. Wskazywało to na dodatkową rolę zmian zachodzących wewnątrz organizmu. Zimujące zwierzę nie jest więc odizolowaną próbówką z płynem: gleba może dostarczać zarodków krystalizacji, a fizjologia zmienia podatność na ich działanie. To pomaga zrozumieć, dlaczego wyniki laboratoryjne uzyskane na różnych podłożach mogą się różnić, mimo zastosowania podobnej temperatury powietrza. [102]
Pancerz uczestniczący w gospodarce kwasowej
Inne wyzwanie stanowi anoksja, czyli brak tlenu. W doświadczeniach porównujących żółwia malowanego i żółwiaka kolczastego Apalone spinifera badano udział kości oraz pancerza w gromadzeniu mleczanu i buforowaniu kwasów. Oba gatunki wykazywały te procesy, lecz słabiej zmineralizowany pancerz Apalone miał znacznie mniejszą pojemność buforową w przeliczeniu na gram świeżej tkanki. Autorzy wskazali, że ta różnica może częściowo wyjaśniać mniejszą tolerancję anoksji tego gatunku. Pancerz jest zatem również chemicznie czynną częścią organizmu, uczestniczącą w łagodzeniu następstw przemian beztlenowych. Porównanie prowadzono w wodzie o temperaturze 10°C, stosując różne czasy ekspozycji u obu gatunków. Mimo słabszej mineralizacji pancerz Apalone podobnie wychwytywał mleczan. Samo jego gromadzenie i zdolność buforowania nie były więc u tych żółwi równoważnymi właściwościami. [103]
Zróżnicowanie występuje także między populacjami. W badaniu geograficznym żółwi malowanych porównano między innymi osobniki podgatunku Chrysemys picta picta z Connecticut i Georgii. Podczas zimowania laboratoryjnego w wodzie o temperaturze 3°C żółwie z północnej populacji dłużej przeżywały anoksję. W tym porównaniu różnicę wiązano z lepszą zdolnością buforowania, a nie z odmiennym tempem gromadzenia mleczanu. Nie wystarczy zatem znać nazwy gatunku, aby dokładnie przewidzieć jego fizjologiczną reakcję na zimowanie. Istotne mogą być właściwości populacji związane z odmiennymi warunkami środowiska. Badanie pozwala mówić o różnicy między zbadanymi grupami, lecz nie ustala samodzielnie, jaka część tej różnicy jest dziedziczna, a jaka wynika z wcześniejszego życia zwierząt. Biologicznie ważny jest sam kierunek wyniku: podobne tempo powstawania produktów metabolizmu może mieć inne następstwa, jeżeli organizmy różnią się zdolnością neutralizowania zaburzeń, które te produkty wywołują. [104]
Tabela 19. Trzy odrębne odpowiedzi na trudne warunki zimowania
Proces | Co pozostaje kluczowe | Potwierdzony przykład |
|---|---|---|
Przechłodzenie | Woda pozostaje płynna poniżej temperatury zamarzania | Aklimacja młodych Chrysemys picta zwiększała odporność na inicjację lodu. [101] |
Tolerancja zamarzania | Organizm przeżywa częściowe powstanie lodu | Młode C. picta przetrwały określony epizod zamrożenia laboratoryjnego. [100] |
Tolerancja anoksji | Organizm radzi sobie bez tlenu | Kości i pancerz żółwia malowanego uczestniczą w gospodarce mleczanowej i buforowaniu. [103] |
Zapas wody nie musi znajdować się w tkankach
U helodermy arizońskiej Heloderma suspectum pęcherz moczowy pełni funkcję dodatkowego zbiornika wody. Eksperymenty na dorosłych osobnikach potwierdziły przepływ wody z pęcherza do krążenia. Gdy zwierzęta pozbawiono pokarmu i wody, osmolalność osocza wzrastała 2,5 razy szybciej przy opróżnionym pęcherzu niż przy pęcherzu wypełnionym. Wskaźnik ten opisuje stężenie cząstek osmotycznie czynnych; wynik dotyczy więc tempa narastania zaburzenia wodnego, a nie czasu przeżycia. Wchłanianie wody z pęcherza działało wolniej niż bezpośrednie picie, ale w ciągu 24 godzin oba sposoby dostarczenia wody dawały podobną korzyść osmoregulacyjną. Taki układ pozwala oddzielić moment pozyskania wody od momentu jej wykorzystania przez krążenie. Znaczenie biologiczne ma zarówno samo napicie się po udostępnieniu wody, jak i późniejsze korzystanie z wcześniej zgromadzonego zapasu. Badanie potwierdza funkcję konkretnego narządu, zamiast sprowadzać pustynną odporność do ogólnego określenia oszczędnego metabolizmu. [105]
Nie każdy wodnisty posiłek zastępuje jednak napicie się. W innym doświadczeniu helodermy otrzymywały pokarm zawierający około 70% wody. Samo karmienie nie pozwalało utrzymać ich bilansu wodnego przez dłuższy czas. Przy braku swobodnego dostępu do wody osobniki po pojedynczym posiłku nie odwadniały się wolniej niż zwierzęta kontrolne. Co więcej, po karmieniu osmolalność osocza przejściowo rosła; typowo wykrywano ten efekt po sześciu godzinach. Nie obniżała się poniżej wartości sprzed posiłku, mimo wysokiej zawartości wody w pożywieniu. Dla badanego gatunku zdobycie energii i uzupełnienie wody nie były zatem równoważnymi zdarzeniami. Posiłek uruchamiał procesy wymagające gospodarowania płynami, a jego wilgotność nie przewidywała prostego efektu nawodnienia. Wniosek odnosi się do zastosowanych pokarmów i warunków doświadczenia na zwierzętach w niewoli. Nie oznacza, że woda pokarmowa jest bezwartościowa dla wszystkich gadów pustynnych; pokazuje konkretną zależność helodermy od dostępności wody do picia. [106]
Deszcz zmienia budżet aktywnego zwierzęcia
U żółwi pustynnych Gopherus agassizii z trzech obszarów pustyni Mojave przez 3,5 roku badano metabolizm terenowy i przepływ wody przez organizm. Metoda podwójnie znakowanej wody pozwoliła zestawić koszty energetyczne swobodnie żyjących osobników z ich gospodarką wodną. Oba parametry silnie zmieniały się między porami roku, stanowiskami i latami. Wiosenne wzrosty były wyraźniejsze w okresach obfitych opadów, kiedy dostępne stawały się zasoby umożliwiające intensywniejsze funkcjonowanie. W części pomiarów ilość pozyskiwanej wody była zbyt duża, aby wyjaśnić ją wyłącznie jedzeniem soczystych roślin; wskazywała na picie wody po opadach. Zależność od deszczu dotyczyła zatem jednocześnie zasobów pokarmowych i bezpośredniego nawodnienia. Pustynnego żółwia nie opisuje jedna stała wartość zapotrzebowania na wodę lub energię. Wyniki terenowe pokazują organizm zdolny do bardzo różnych poziomów wymiany z otoczeniem, zależnie od aktualnej dostępności zasobów. Zdolność ograniczania wydatków w okresie niedoboru współistnieje tutaj z wykorzystywaniem okresowych możliwości ich uzupełnienia. [107]
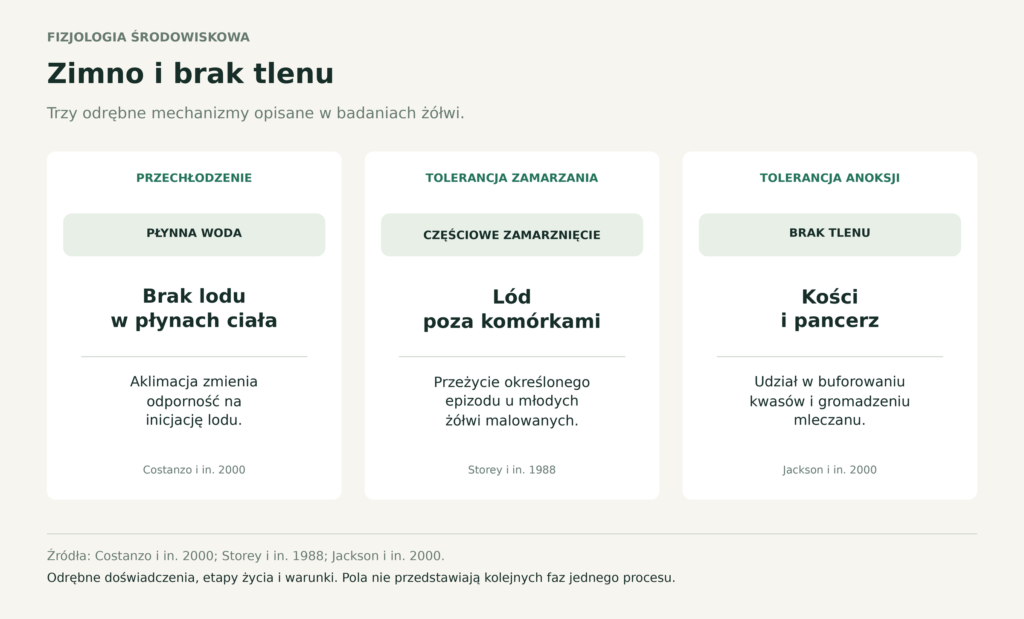
Rozdział 17Czas i sezonowość w życiu gadów
Dobowa zmienność aktywności, przejście między zimowaniem a rozrodem, sezonowa wędrówka i starzenie dotyczą różnych skal czasu. Każda z nich wymaga innych obserwacji: rytm może ujawnić się w stałych warunkach laboratoryjnych, powtarzalność migracji po ponownym oznakowaniu osobnika, a zmiana przeżywalności dopiero w wieloletnim badaniu populacji.
Zegar dobowy i niezależne rytmy organizmu
U jaszczurek badanych pod nazwą Podarcis sicula wykazano dobowy rytm wybierania temperatury również w stałej ciemności. Zwierzęta korzystały z gradientu cieplnego, lecz nie otrzymywały cyklicznego sygnału świetlnego. Utrzymanie rytmu w takich warunkach wskazywało na działanie wewnętrznej organizacji czasowej. Doświadczenia z usunięciem szyszynki lub narządu ciemieniowego pokazały ponadto, że wybór temperatury i przemieszczanie się nie są regulowane w identyczny sposób. Usunięcie narządu ciemieniowego przejściowo znosiło rytm preferencji cieplnej, nie zakłócając rytmu ruchowego. Usunięcie szyszynki wydłużało okres swobodnie biegnącego rytmu aktywności. Żaden zabieg nie usuwał trwale obu rytmów, co wskazywało na udział dodatkowych elementów układu zegarowego. Zachowanie gada zależy więc nie tylko od chwilowych warunków otoczenia. Jego własny układ regulacyjny zmienia w czasie skłonność do ruchu oraz wybierania określonej temperatury. Te dwa zachowania mogą wyglądać podobnie podczas obserwacji terenowej, ale eksperymentalnie da się rozdzielić mechanizmy ich kontroli. [108]
Rytm dobowy może dotyczyć także wyglądu zwierzęcia. U agamy brodatej Pogona vitticeps badano zmiany odbijania promieniowania przez różne okolice ciała w zależności od temperatury, pory doby i kontaktów społecznych. W próbie 12 dorosłych samców porównywanych w dwóch warunkach termicznych wykazano większą reflektancję grzbietu przy wyższej temperaturze. Gardło i przednia część klatki piersiowej nie wykazywały analogicznej odpowiedzi, chociaż ich barwa silnie zmieniała się w innych sytuacjach, w tym w cyklu dobowym i podczas oddziaływań społecznych. Rozmieszczenie zmian było zatem funkcjonalnie zróżnicowane. Część grzbietowa miała znaczenie dla bilansu promieniowania, a okolica brody uczestniczyła w sygnalizacji. Model biofizyczny wykorzystujący pomiary wskazywał możliwą oszczędność czasu potrzebnego na ogrzewanie. Była to przewidywana korzyść energetyczno-czasowa, nie bezpośredni pomiar skrócenia każdego wygrzewania w naturze. Ta sama jaszczurka może więc równocześnie dostosowywać różne fragmenty powierzchni ciała do odmiennych zadań. [109]
Temperatura zimowania współtworzy wiosenne zachowanie
U pończosznika prążkowanego Thamnophis sirtalis parietalis porównano następstwa zimowania w temperaturze 5 i 10°C. Cieplejsze warunki zmieniały stężenia melatoniny i hormonów steroidowych, a u samców wiązały się z opóźnieniem zachowań godowych po wyjściu ze spoczynku. Część różnic hormonalnych utrzymywała się również po doprowadzeniu obu grup do takiej samej temperatury. Ważna była więc wcześniejsza historia termiczna, a nie wyłącznie bieżący odczyt temperatury. Zmiany masy ciała nie różniły się istotnie między wariantami, dlatego obserwowanych efektów nie można było prosto sprowadzić do większego zużycia rezerw przez jedną grupę. Reakcje samców i samic obejmowały odmienne elementy regulacji hormonalnej. Badanie pokazuje, że zimowanie uczestniczy w przygotowaniu kolejnego etapu cyklu życiowego. Przejście do zachowań rozrodczych jest wynikiem skoordynowanych zmian, a samo ogrzanie zwierzęcia nie musi natychmiast odtwarzać stanu typowego dla osobnika, który przeszedł odmienny przebieg zimy. [110]
Sezonowość może zmieniać nawet udział ciepła wytwarzanego przez organizm. U teju Salvator merianae w okresie rozrodczym odnotowano nocne temperatury ciała przewyższające temperaturę otoczenia, w badaniu nawet o około 10°C. Przez większą część roku nocna temperatura zwierząt zbliżała się natomiast do temperatury ich nor. W eksperymencie utrzymano różnicę temperatur również przez osiem dni pobytu w stałych warunkach, bez dostępu do źródła ciepła umożliwiającego wygrzewanie. Wyniku nie wyjaśniało więc samo powolne oddawanie energii wcześniej zgromadzonej na słońcu. Analiza wskazywała na połączenie zwiększonej produkcji ciepła metabolicznego i ograniczonej utraty ciepła z organizmu. U tego gatunku właściwości cieplne zmieniały się wraz z fazą cyklu rocznego. Obserwacja nie ustanawia jednak stałej, całorocznej temperatury ciała teju ani uniwersalnej cechy dużych jaszczurek; dokumentuje sezonową zdolność wytwarzania i zatrzymywania ciepła. [111]
Tabela 20. Różne przejawy biologicznej organizacji czasu
Skala i proces | Co badano | Znaczenie wyniku |
|---|---|---|
Rytm dobowy | Preferencję cieplną i ruch Podarcis w ciemności | Odrębne elementy regulacji obu rytmów. [108] |
Przygotowanie sezonowe | Hormony i zachowania pończoszników po zimowaniu | Historia termiczna wpływała na późniejszy stan rozrodczy. [110] |
Sezonowa termogeneza | Temperaturę teju podczas rozrodu | Własna produkcja ciepła i jego zatrzymywanie miały znaczenie sezonowe. [111] |
Wędrówka zależna od wielkości ciała
Na Galapagos połączono dane z nadajników GPS u 17 żółwi olbrzymich z regularnymi obserwacjami terenowymi i zmian roślinności. Wędrówki między różnymi wysokościami nad poziomem morza były związane z sezonową dynamiką pokarmu. W tej samej populacji współwystępowały zwierzęta wędrujące i pozostające na ograniczonym obszarze, czyli migracja częściowa. Rozmiar ciała pomagał wyjaśniać ten podział: wszystkie największe oznakowane osobniki wędrowały, natomiast najmniejsze pozostawały na nizinach. Osobniki pośredniej wielkości wykazywały bardziej zróżnicowane zachowanie. Przemieszczenia wiązały się z dynamiką roślinności, a nie z prostym podążaniem za temperaturą. Znaczenie miało więc to, kiedy i gdzie pojawiają się zasoby dostępne dla zwierząt o różnej wielkości. Autorzy porównywali sposoby klasyfikowania migracji, które nie zawsze identycznie przypisywały poszczególne żółwie do kategorii. Najpewniejszy wniosek dotyczy obecności różnych strategii w badanej populacji i ich związku z wielkością ciała. Nie wynika z niego obowiązek corocznej dalekiej wędrówki każdego żółwia olbrzymiego. [112]
Powrót do żerowiska i miejsca zimowania
U żółwi morskich istotna jest nie tylko podróż po zakończeniu składania jaj, lecz także powtarzalność jej celu. W badaniu samic odpływających z Cypru oznakowano po dziesięć żółwi zielonych Chelonia mydas i karett Caretta caretta. Pięć kompletnych powtórnych zapisów migracji, uzyskanych po przerwach wynoszących od dwóch do pięciu lat, wykazało bardzo podobne trasy oraz powroty do tych samych żerowisk i obszarów zimowania. Dłuższe zapisy ujawniły również sezonowe przesunięcia ku głębszej wodzie zimą. Wierność dotyczyła zatem więcej niż plaży lęgowej: obejmowała także miejsca wykorzystywane pomiędzy sezonami rozrodczymi. Dla pojedynczej samicy rozproszone obszary morskie tworzyły powtarzalny układ użytkowania przestrzeni. Takie dane pozwalają biologicznie odróżnić dowolne przemieszczanie się od ponownego korzystania z konkretnych zasobów. Wniosek opiera się jednak na zarejestrowanych wędrówkach badanych dorosłych samic; nie opisuje automatycznie zachowania samców, młodocianych żółwi ani wszystkich populacji tych gatunków. [113]
Długowieczność i tempo starzenia
Długie życie pojedynczego osobnika i powolny wzrost ryzyka śmierci z wiekiem to odrębne właściwości. Porównawcze badanie 107 dzikich populacji, reprezentujących 77 gatunków gadów nieptasich i płazów, wykazało dużą różnorodność tempa starzenia. Po uwzględnieniu wielkości ciała i pokrewieństwa badana grupa miała bardziej zróżnicowane wyniki niż uwzględnione ptaki i ssaki; nie potwierdzono po prostu jednej niższej średniej szybkości starzenia wszystkich zmiennocieplnych czworonogów. U części gatunków stwierdzano starzenie pomijalnie małe. W języku demografii oznacza to niewielką zmianę ryzyka zgonu wraz z wiekiem w badanym zakresie, a nie nieśmiertelność. Zwierzę nadal może ginąć wskutek drapieżnictwa lub innych przyczyn zewnętrznych. Autorzy wykazali również związki wzorców starzenia z cechami ochronnymi i historią życiową. Różnorodność wyników wskazuje, że sam sposób regulowania temperatury nie wystarcza do przewidywania przebiegu całego życia. [114]
Osobną podstawę porównania stanowią zwierzęta pozostające pod opieką człowieka. Analiza 52 gatunków żółwi w ogrodach zoologicznych i akwariach wykazała, że około 75% badanych gatunków charakteryzowało się powolnym albo pomijalnie małym starzeniem. Są to dwie połączone kategorie, dlatego nie należy odczytywać wyniku jako informacji, że trzy czwarte gatunków w ogóle się nie starzeje. Dane pochodziły z warunków zarządzanych, obejmujących odmienny dostęp do pokarmu, ochronę przed zagrożeniami i opiekę niż w populacjach wolno żyjących. Autorzy wskazywali, że poprawa warunków środowiskowych może zmniejszać tempo starzenia żółwi. Biologicznie ciekawe jest właśnie współdziałanie budowy organizmu, historii życiowej i środowiska. Wyniki pokazują potencjał długiego utrzymania niskiej śmiertelności w określonych warunkach. Nie określają jednak, ile lat przeżyje losowy osobnik w naturze, ani nie zastępują badań terenowych nad rozrodem, przeżyciem młodych i przyczynami śmierci. [115]
Długi monitoring żółwia malowanego daje konkretny przykład starzenia w naturze. W badanej populacji z Illinois analizę przeżywalności oparto na 1031 samicach, a część dotyczącą rozrodu na 2234 gniazdach 600 samic. Ryzyko śmierci wzrastało wraz z wiekiem dorosłych zwierząt. Starsze samice składały jaja o większej masie, ale malał sukces wykluwania potomstwa. Nie wszystkie składowe rozrodu zmieniały się zatem w tym samym kierunku. Sama masa jaj nie wystarczała do opisania jakości funkcjonowania starszej samicy. Ten wynik uzupełnia porównania międzygatunkowe: populacja może obejmować długo żyjące osobniki, a jednocześnie wykazywać mierzalne starzenie demograficzne i rozrodcze. Dla biologa istotne jest więc śledzenie kilku procesów równocześnie. Wiek dożyty przez rekordowego osobnika, masa jaj i prawdopodobieństwo uzyskania żywego potomstwa odpowiadają na różne pytania o przebieg życia. [116]
Tabela 21. Co rzeczywiście porównują trzy badania starzenia
Materiał badawczy | Warunki życia | Najważniejszy zakres wniosku |
|---|---|---|
107 populacji, 77 gatunków gadów i płazów | Populacje dzikie | Duże zróżnicowanie tempa starzenia zmiennocieplnych czworonogów. [114] |
52 gatunki żółwi | Ogrody zoologiczne i akwaria | Około 75% gatunków wykazywało starzenie powolne albo pomijalnie małe. [115] |
Populacja Chrysemys picta | Populacja dzika w Illinois | Z wiekiem rosła śmiertelność samic, a sukces wykluwania malał. [116] |
Rozdział 18Rozmnażanie i rozwój
Co oznacza przynależność do owodniowców
Gady należą do owodniowców. Zarodek rozwija się z udziałem błon pozazarodkowych: owodni, kosmówki, omoczni i pęcherzyka żółtkowego. Tworzą one środowisko rozwoju, uczestniczą w wymianie gazowej, odżywianiu i gospodarowaniu produktami przemiany materii. U form jajorodnych osłonki jaja chronią zarodek, zachowując przepuszczalność potrzebną do wymiany gazów. Rozwój nie wymaga swobodnie żyjącej larwy wodnej. [84]
Przystosowanie do rozrodu na lądzie nie oznacza, że jajo może rozwijać się w dowolnie suchym miejscu. Wybór stanowiska lęgowego pozostaje częścią biologii gatunku. Warunki odpowiednie dla dorosłego osobnika i dla zarodka mogą się różnić, dlatego ochrona miejsca obserwacji dorosłych nie zawsze wystarcza do zachowania całego cyklu życiowego.
Jajorodność i żyworodność
Składanie jaj jest szeroko rozpowszechnione, ale nie opisuje całej różnorodności rozrodczej gadów. U części jaszczurek i węży młode rodzą się żywe. W obrębie łuskonośnych występują różne sposoby zatrzymywania zarodków w organizmie samicy i różne zakresy zaopatrywania ich przez matkę. Żyworodność pojawiała się ewolucyjnie wielokrotnie. [25]
W popularnych opisach spotyka się termin „jajożyworodność”, zwykle odnoszony do rozwoju opartego w dużej mierze na zapasach żółtka przy zatrzymaniu jaj wewnątrz ciała samicy. W profesjonalnym opisie należy wyjaśnić, co dokładnie oznacza przyjęta nazwa. Sam fakt urodzenia żywych młodych nie informuje jeszcze o sposobie przekazywania im składników odżywczych. Podział na „jaja” i „łożysko” jest zbyt uproszczony, aby opisać wszystkie rozwiązania biologiczne.
Nie ma też jednej uniwersalnej miary „wydajności” rozrodu. Liczba potomstwa w pojedynczym lęgu, częstość rozrodu, wiek dojrzałości i przeżywalność młodych opisują różne aspekty strategii życiowej. Duża liczba jaj nie jest automatycznie dowodem szybkiego wzrostu populacji. Dla oceny jej perspektyw znaczenie mają również losy dorosłych samic i to, ile młodych dożywa kolejnych etapów życia.
Miejsce rozwoju zarodka i sposób jego odżywiania
Pełny opis rozrodu powinien odpowiadać osobno na dwa pytania: gdzie zarodek kończy rozwój oraz skąd czerpie substancje potrzebne do wzrostu. Pierwsze dotyczy jajorodności i żyworodności. Drugie obejmuje udział żółtka oraz zaopatrywanie przez organizm matki w trakcie rozwoju. Informacje te nie są zamienne. U gatunku rodzącego żywe młode żółtko nadal może pozostawać głównym źródłem składników energetycznych. Obecność kontaktu łożyskowego nie oznacza automatycznie takiego samego zakresu przekazywania substancji jak u ssaków łożyskowych. [117]
Tabela 22. Pytania potrzebne do pełnego opisu strategii rozrodczej
Wymiar opisu | Co należy ustalić | Dlaczego ma to znaczenie |
|---|---|---|
Miejsce rozwoju | Czy końcowe stadia zachodzą w złożonym jaju czy w ciele samicy | Wskazuje bezpośrednie środowisko rozwoju zarodka |
Źródła substancji | Udział żółtka i dostaw przez organizm matki | Rozróżnia zapas początkowy od zaopatrywania w czasie ciąży |
Wymiana gazowa | Droga dopływu tlenu i usuwania dwutlenku węgla | Dotyczy także zarodków silnie zależnych od żółtka |
Osłonki i wapń | Obecność osłonek jaja oraz źródła wapnia | Pozwala wykryć rozwiązania pośrednie i różnice między populacjami |
Źródła: [118, 117]. Są to osie opisu biologicznego, a nie cztery wzajemnie wykluczające się typy rozrodu.

Badanie Saiphos equalis, australijskiego scynka, pokazało znaczenie tego rozróżnienia. Porównano dwie populacje różniące się czasem zatrzymywania rozwijających się jaj. W obu wykazano udział transferu łożyskowego w dostarczaniu wapnia; w populacji składającej jaja z mniej zaawansowanymi zarodkami dodatkowym źródłem były zwapniałe osłonki. Autorzy podkreślili, że obecność takich osłonek i przekazywanie wapnia przez organizm matki mogą współwystępować. Prosty podział „jajorodny bez wymiany z matką” oraz „żyworodny z pełnym odżywianiem przez łożysko” nie opisuje tego przypadku. [118]
Rozdzielenie kopulacji i zapłodnienia w czasie
U części gadów samice mogą przechowywać plemniki w drogach rozrodczych. Dzięki temu obecność partnera i późniejszy rozwój potomstwa nie muszą następować bezpośrednio po sobie. Jest to również ważna uwaga metodologiczna: pojawienie się młodych po długim odosobnieniu samicy samo w sobie nie dowodzi partenogenezy, czyli rozrodu bez zapłodnienia komórki jajowej przez plemnik.
W publikacji z 2021 roku opisano samicę grzechotnika Crotalus atrox, która wydała potomstwo po około 71 miesiącach od odłowienia i izolacji od samców. Analiza genetyczna samicy oraz ośmiu z dziewięciu młodych z tego miotu wykazała udział ojcowski u zbadanych młodych, co pozwoliło odróżnić przechowanie plemników od rozwoju partenogenetycznego. To udokumentowany przypadek jednego osobnika, a nie średni czas przechowywania plemników przez grzechotniki. Jego znaczenie polega przede wszystkim na połączeniu historii rozrodu z weryfikacją genetyczną. [119]
Temperatura a płeć potomstwa
U części gadów o rozwoju płci decydują mechanizmy genetyczne, u innych kluczową rolę odgrywa temperatura podczas rozwoju zarodkowego. Istnieją również bardziej złożone relacje między tymi mechanizmami. Nie należy więc zakładać, że wszystkie gady działają według jednego schematu. [25]
Temperaturowa determinacja płci jest dobrze znana między innymi u żółwi morskich. Cieplejsze warunki inkubacji mogą zwiększać udział samic, a nadmierne ogrzanie gniazda może również ograniczać przeżywalność zarodków. Nie wolno jednak przenosić pojedynczych wartości temperatury z opisu żółwia morskiego na wszystkie żółwie, krokodyle czy jaszczurki. Warunki gniazda należy odnosić do konkretnego gatunku i badanej populacji. [120]
Gdy wpływ temperatury współdziała z chromosomami
Agama brodata (Pogona vitticeps) dostarcza przykładu, w którym rozdzielenie determinacji genetycznej i środowiskowej na dwie szczelne kategorie byłoby mylące. W badaniu Holleley i współpracowników wśród 131 osobników odłowionych w naturze wykryto 11 samic o układzie chromosomów ZZ, typowym dla samców w genetycznym systemie tego gatunku. Doświadczenia rozrodcze wykazały płodność takich samic oraz możliwość zmiany sposobu determinacji płci w następnym pokoleniu. [121]
W tym kontekście „odwrócenie płci” oznacza, że rozwój płciowy zarodka przebiegł inaczej, niż wynikałoby z samego układu chromosomów. Nie jest opisem zmiany dorosłego samca w samicę. Udział 11 osobników w konkretnej próbie nie stanowi też odsetka dla całego gatunku. Zjawisko pokazuje, dlaczego w badaniach trzeba zestawiać dane genetyczne, cechy płciowe i warunki rozwoju. Sama temperatura powietrza w miejscu występowania zwierzęcia nie odtwarza pełnej historii warunków w gnieździe. [121]
Opieka rodzicielska
Wiele młodych gadów wcześnie rozpoczyna samodzielne życie. Istnieją jednak gatunki sprawujące opiekę nad potomstwem; szczególnie dobrze znana jest ona u krokodyli, a różne zachowania opiekuńcze występują także u łuskonośnych. Nie jest zatem poprawne twierdzenie, że gady zawsze porzucają jaja i młode. [84, 25]
Rozdział 19Zmysły i zachowanie
Gady odbierają informacje przez wiele układów zmysłowych, a znaczenie poszczególnych bodźców zależy od sposobu życia. Wąż śledzący ślad chemiczny, krokodyl reagujący na ruch wody i żółw wykorzystujący pole magnetyczne rozwiązują odmienne problemy orientacji. Zestawienie tych mechanizmów pokazuje, dlaczego ocena zachowania wyłącznie na podstawie wzroku człowieka bywa zawodna. Brak reakcji widocznej dla obserwatora nie musi oznaczać braku odbioru sygnału.
Informacja chemiczna i kierunek śladu
U wielu łuskonośnych język zbiera próbki substancji z otoczenia, które trafiają do narządu lemieszowo-nosowego. Rozwidlenie języka węża pozwala pobierać materiał z dwóch rozdzielonych przestrzennie punktów. Porównanie informacji z obu stron pomaga orientować się względem śladu chemicznego. Praca Kurta Schwenka łączyła analizę zachowania, budowy i rozmieszczenia tej cechy na drzewie rodowym łuskonośnych. Nie każdy gad ma taki sam język ani równie rozwinięty udział tego układu w poszukiwaniu pokarmu. [122]
Chemorecepcja może dostarczać informacji o ofierze, partnerze lub obecności innych osobników. Dlatego wysuwania języka nie należy automatycznie interpretować jako zapowiedzi ataku. Znaczenie zachowania zależy od kontekstu: zwierzę może rozpoznawać nowy fragment otoczenia, śledzić zapach albo aktualizować informację po przemieszczeniu. Aby ustalić funkcję danej reakcji, trzeba porównać sytuacje i bodźce, a nie przypisywać znaczenie pojedynczej fotografii. [29]
Wykrywanie promieniowania cieplnego
Niektóre węże mają wyspecjalizowane narządy dołkowe odbierające promieniowanie podczerwone. Badanie Grachevej i współpracowników wskazało rolę kanałów jonowych TRPA1 w komórkach czuciowych związanych z tymi strukturami. Promieniowanie ogrzewa błonę narządu, a sygnał cieplny zostaje przekształcony w aktywność nerwową. Mechanizm różni się od działania barwników światłoczułych w siatkówce. [123]
Potoczne stwierdzenie, że wąż „widzi ciepło”, oddaje efekt funkcjonalny, lecz nie opisuje narządu ani fizyki odbioru sygnału. Nie wszystkie węże dysponują takim układem. Nie należy więc na tej podstawie tłumaczyć zachowania każdej żmii, zaskrońca czy innego napotkanego gatunku. Widzenie, chemorecepcja i odbiór ciepła mogą dostarczać u wyposażonego w dołki gatunku różnych informacji o tej samej sytuacji. [123]
Dotyk i ruch wody
Małe narządy czuciowe w skórze krokodyli nie są jedynie elementem rysunku łusek. Leitch i Catania badali ich anatomię, unerwienie i odpowiedzi na bodźce u aligatora missisipskiego oraz krokodyla nilowego. Wykazali rozbudowaną mechanorecepcję, w tym reakcje zgodne z odbieraniem drobnych ruchów wody. Narządy te pomagają również w precyzyjnym rozpoznawaniu kontaktu z przedmiotem znajdującym się między szczękami. [124]
Masywna osłona ciała może więc współistnieć z dużą wrażliwością dotykową. Wniosek dotyczy konkretnej organizacji receptorów i ich unerwienia, a nie ogólnej tezy, że każdy fragment skóry krokodyla ma jednakową czułość. Rozmieszczenie narządów oraz odpowiedzi neuronalne trzeba rozpatrywać osobno. Także różnice między rodzinami krokodyli pozostają istotne przy przenoszeniu wyników na inne gatunki. [124]
Tabela 23. Wybrane drogi pozyskiwania informacji o otoczeniu
Bodziec | Przykład mechanizmu | Granica uogólnienia |
|---|---|---|
Substancje chemiczne | Pobieranie próbek językiem i narząd lemieszowo-nosowy | Stopień specjalizacji różni się między łuskonośnymi |
Promieniowanie podczerwone | Ogrzewanie błony narządu dołkowego | Występuje u określonych linii węży |
Ruch wody i dotyk | Skórne narządy czuciowe krokodyli | Czułość zależy od miejsca i rodzaju receptora |
Dźwięk i drgania podłoża | Układ słuchowy oraz przenoszenie drgań | Reakcja behawioralna zależy od gatunku i bodźca |
Pole magnetyczne | Rozpoznawanie sygnałów związanych z położeniem | Mechanizmy mapy i kompasu trzeba badać oddzielnie |
Źródła: [122, 123, 124, 31, 125]. Są to udokumentowane przykłady, a nie jednakowy zestaw zdolności wszystkich gadów.
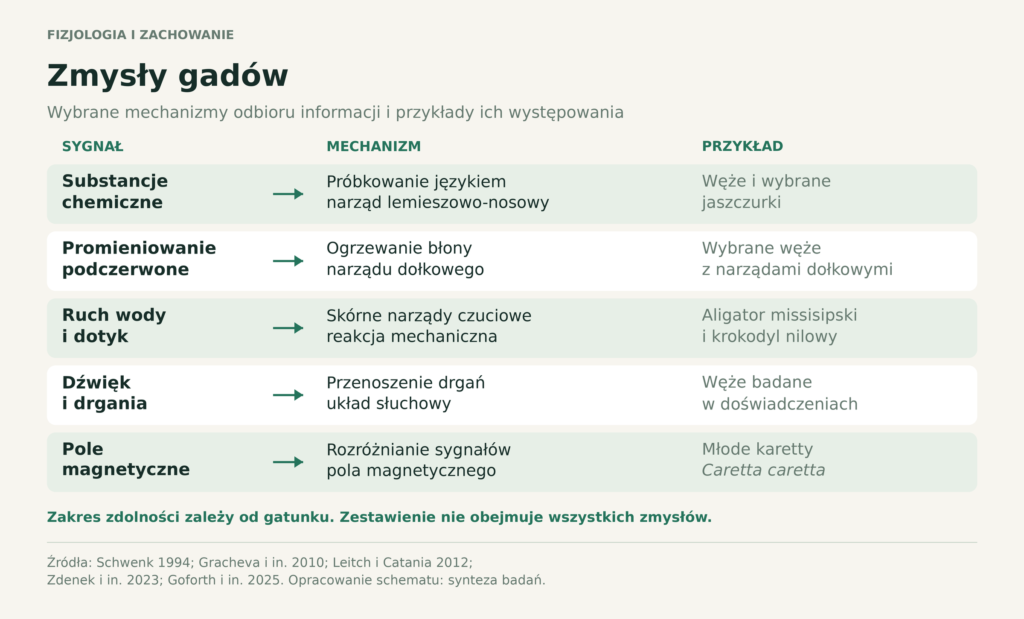
Słuch i eksperymentalna ocena reakcji
W badaniu Zdenek i współpracowników przeprowadzono 304 kontrolowane próby z udziałem 19 węży z pięciu rodzajów. Porównywano zachowanie w warunkach kontrolnych oraz przy emisji dźwięków w trzech pasmach częstotliwości. Jedno pasmo powodowało także mierzalne drgania podłoża. Reakcje różniły się między badanymi rodzajami. Taki projekt pozwala oddzielać rodzaje bodźców, ale nie uprawnia do sporządzenia jednej listy „dźwięków straszących wszystkie węże”. Liczba prób nie jest liczbą niezależnie zbadanych zwierząt. [31]
Uczenie się i orientacja w przestrzeni
Badania opublikowane w 2025 roku wykazały, że młode karetty (Caretta caretta) potrafią uczyć się związku między określonym sygnałem pola magnetycznego a obecnością pokarmu. Naukowcy odtwarzali pola odpowiadające różnym miejscom na oceanie i porównywali reakcje zwierząt. Wynik wspiera możliwość zapamiętywania magnetycznych cech miejsc żerowania. [125]
Magnetyczna „mapa” i „kompas” opisują różne funkcje. Mapa pomaga rozpoznawać położenie, kompas zaś kierunek przemieszczania. Badanie wskazało różną podatność tych funkcji na zastosowane zakłócenia pola. Nie jest to dowód na jedyny mechanizm orientacji podczas każdej migracji: w naturze zwierzęta mogą korzystać z wielu sygnałów, a warunki laboratoryjne izolują tylko wybrane z nich. [125]
Uczenie się udokumentowano również u żółwi olbrzymich. W pracy Gutnick i współpracowników, opublikowanej najpierw elektronicznie w 2019 roku, zwierzęta uczono reakcji na cele nagradzane pokarmem. Trzy żółwie z Aldabry ponownie przebadane po dziewięciu latach zachowały wyuczoną reakcję dotyczącą podejścia do celu i jego ugryzienia. Nie należy utożsamiać tego wyniku z zapamiętaniem każdego szczegółu wszystkich zadań. W odrębnej próbie dotyczącej rozróżniania barw po krótszej przerwie potrzebna była ponowna nauka. [126, 127]
Takie doświadczenie podważa utożsamianie powolnego ruchu z brakiem zdolności poznawczych. Ma jednak wyraźny zakres: dotyczy określonego zadania, małej próby i zwierząt utrzymywanych w ogrodach zoologicznych. „Inteligencja gadów” nie jest pojedynczym wynikiem, który można zmierzyć jedną skalą, niezależną od biologii badanego gatunku. W porównaniach trzeba uwzględniać dostępność sygnału, motywację, wcześniejsze doświadczenie i wymagania ruchowe zadania.
Tabela 24. Jak oddzielać wynik doświadczenia od szerokiego uogólnienia
Badanie | Próba lub zakres | Uprawniony wniosek |
|---|---|---|
Reakcje węży na dźwięk | 19 osobników i 304 próby | Zachowanie może zależeć od rodzaju bodźca i badanej linii |
Pamięć żółwi olbrzymich | 3 osobniki ponownie badane po 9 latach | Wybrane reakcje wyuczone mogą utrzymywać się bardzo długo |
Płeć agam brodatych | 131 osobników z natury, w tym 11 samic ZZ | Sam układ chromosomów nie zawsze przewiduje rozwój płci |
Źródła: [31, 126, 127, 121]. Wartości dotyczą odmiennych pytań i projektów badań; nie są porównywalnymi wskaźnikami dla całych grup gadów.
Wynik z małej próby może dobrze wykazywać istnienie zjawiska, lecz znacznie słabiej określać jego częstość w przyrodzie. Powtórzenie doświadczenia u tego samego zwierzęcia zwiększa wiedzę o powtarzalności jego reakcji, ale nie zastępuje obserwacji kolejnych osobników. Jest to szczególnie ważne przy gatunkach długowiecznych, rzadkich lub trudnych do utrzymania w kontrolowanych warunkach. Właśnie dlatego liczebność próby i rodzaj pomiaru powinny towarzyszyć każdej efektownej liczbie w popularyzacji badań nad gadami.
Rozdział 20Siedliska i znaczenie gadów w ekosystemach
Więcej niż pustynie i tropiki
Gady występują w lasach, na łąkach, pustyniach, terenach skalistych, mokradłach i w morzach. Gatunki strefy umiarkowanej muszą przetrwać okresy, gdy niska temperatura ogranicza aktywność. W tropikach wyzwaniem może być zarówno przegrzanie, jak i sezonowy niedobór wody. Samo określenie klimatu nie wystarcza więc do opisania potrzeb konkretnego gada. [79]
Kluczowe jest mikrosiedlisko, czyli fragment otoczenia dostępny zwierzęciu. Kamień, kępa roślin, szczelina, nora i zacieniony brzeg stawu mogą mieć odmienną temperaturę oraz wilgotność, chociaż znajdują się kilka metrów od siebie. Dla jaszczurki niewielka mozaika takich miejsc bywa równie istotna jak szeroki krajobraz. Utrata kryjówek może ograniczyć wartość obszaru, który na zdjęciu lotniczym nadal wygląda na „zielony”.
Drapieżniki i ofiary
Gady uczestniczą w przepływie energii przez sieci pokarmowe. Liczne jaszczurki zjadają bezkręgowce, część węży poluje na drobne kręgowce, a duże krokodyle zajmują wysokie poziomy troficzne. Równocześnie jaja, młode i dorosłe gady bywają pokarmem ptaków, ssaków oraz innych gadów. Rola gatunku zależy od jego rozmiarów, wieku i dostępności zasobów. [25, 29, 43]
Nie wszystkie gady są drapieżnikami. Wśród jaszczurek i żółwi istnieją formy roślinożerne oraz wszystkożerne. Zjadanie owoców może uczestniczyć w rozsiewaniu nasion. Badania żółwi olbrzymich na Galapagos dokumentują przemieszczanie nasion wraz z ich wędrówkami. Takie procesy pokazują, że znaczenie gadów obejmuje również relacje z roślinnością. [128]
Tabela 25. Rola ekologiczna i jej znaczenie
Funkcja | Przykładowy mechanizm | Co warto mierzyć w badaniach |
|---|---|---|
Drapieżnictwo | Zjadanie bezkręgowców i kręgowców | Dietę, częstość żerowania, dostępność ofiar |
Udział w bazie pokarmowej | Jaja i młode zjadane przez inne zwierzęta | Przeżywalność kolejnych stadiów |
Roślinożerność | Pobieranie liści, owoców i innych części roślin | Dobór pokarmu i wpływ na odnowienie roślin |
Rozsiewanie nasion | Transport nasion po zjedzeniu owoców | Odległość transportu i zdolność kiełkowania |
Łączenie środowisk | Przemieszczanie się między wodą i lądem | Trasy migracji oraz miejsca rozrodu i żerowania |
Tabela przedstawia ramy interpretacji ekologicznej; nie przypisuje każdej funkcji wszystkim gadom. Przykłady: [37, 29, 128, 25].
Rozdział 21Rozmieszczenie gadów i zróżnicowanie regionalne
Bogactwo gatunkowe i endemizm
Pytanie „gdzie żyje najwięcej gadów” może dotyczyć kilku odmiennych zjawisk. Liczba gatunków opisuje bogactwo gatunkowe. Liczba osobników jest miarą liczebności. Endemizm informuje o ograniczeniu naturalnego zasięgu do wskazanego obszaru. Region może być bardzo bogaty w gatunki szeroko rozpowszechnione, podczas gdy mniejszy i pozornie uboższy obszar skupia zwierzęta niewystępujące naturalnie nigdzie indziej. Te sytuacje wymagają innej interpretacji ochronnej. [129]
Tabela 26. Miary przydatne przy porównywaniu regionalnej różnorodności
Miara | Co opisuje | Warunek poprawnego porównania |
|---|---|---|
Bogactwo gatunkowe | Liczbę gatunków w obszarze | Ta sama klasyfikacja, okres i sposób wyznaczania granic |
Liczebność | Liczbę osobników | Porównywalne metody i nakład obserwacji |
Endemizm | Ograniczenie zasięgu do obszaru | Jawna granica regionu i rozróżnienie zasięgu naturalnego od introdukcji |
Bogactwo ważone zasięgiem | Większy udział gatunków o małych zasięgach | Zgodna metoda ważenia i porównywalne mapy |
Obecność na mapie | Znane lub modelowane występowanie | Oddzielenie obserwacji od prognozy i podanie rozdzielczości |
Źródła koncepcji bogactwa i endemizmu: Kier i in. oraz Roll i in.; warunki porównania zestawiono jako wskazówki interpretacyjne. [129, 130]
Znaczenie endemizmu jest szczególnie widoczne na wyspach. Izolacja ogranicza wymianę organizmów z sąsiednimi lądami i sprzyja powstawaniu odrębnych zespołów gatunków. Globalna analiza obejmująca wyspy i obszary kontynentalne wykazała wysoką koncentrację endemizmu na wyspach u kilku grup organizmów, w tym gadów. Nie oznacza to jednak, że każda wyspa ma więcej gatunków niż podobny klimatycznie fragment kontynentu. Wysoki udział endemitów i wysoka całkowita liczba gatunków są różnymi własnościami fauny. [129]
Każda grupa ma własny wzorzec geograficzny
Analiza Rolla i współautorów z 2017 roku objęła mapy 10 064 gatunków gadów. W tamtym zbiorze bogactwo węży koncentrowało się w tropikach, natomiast jaszczurki były szczególnie zróżnicowane zarówno w strefach tropikalnych, jak i suchych, z wyraźnym znaczeniem Australii. Dla żółwi wyróżniały się między innymi południowo-wschodnie Stany Zjednoczone, delta Gangesu i Azja Południowo-Wschodnia. Są to wyniki konkretnego badania, a nie nowy przelicznik katalogu z 2026 roku. [130]
Zsumowanie wszystkich gadów na jednej mapie częściowo ukrywa te różnice. Obszar ważny dla jaszczurek może nie być równie widoczny na mapie bogactwa ssaków i ptaków. Autorzy wykazali, że zastępowanie danych o gadach informacjami o lepiej poznanych kręgowcach słabiej odtwarzało wzorce dotyczące jaszczurek i żółwi. W praktyce ochronnej potrzebne są zatem dane dla grupy, którą rzeczywiście chcemy chronić. [130]
Przy czytaniu mapy należy odróżniać ogólny zasięg gatunku od obszarów rzeczywiście przez niego zajmowanych. Granica obejmująca skrajne stanowiska może otaczać także miejsca, w których zwierzę nie występuje. Rozróżnienie to leży u podstaw odrębnego traktowania zasięgu i obszaru zajmowanego w wytycznych IUCN. [131]
Znaczenie sposobu zbierania danych pokazuje analiza gadów Parku Narodowego Krugera z 2020 roku. Autorzy zestawili 7 118 rekordów występowania 126 gatunków. Rekordy skupiały się w pobliżu publicznie dostępnych dróg i infrastruktury, a przebadane miejsca nie reprezentowały całego zróżnicowania środowisk parku. Wniosek dotyczy tego zbioru: zagęszczenia punktów obserwacji nie można automatycznie odczytywać jako zagęszczenia zwierząt. [34]
Dlaczego nie sumuje się list kontynentów
Ten sam gatunek może naturalnie występować w kilku krajach i po obu stronach umownej granicy kontynentu. Jeżeli dodamy wszystkie regionalne listy, policzymy go wielokrotnie. Dalszą komplikacją są populacje introdukowane: miejsce obecnego występowania może leżeć daleko od naturalnego zasięgu. Historyczne zestawienie geograficzne Reptile Database wyraźnie ostrzega przed obydwoma problemami. Jego opublikowane mapy odnoszą się do okresu 2000–2020 i nie powinny być podpisywane jako statystyki z października 2026 roku. [132]
Użyteczna tabela regionalna powinna podawać co najmniej datę, listę obszarów wchodzących do regionu, sposób traktowania gatunków obcych oraz regułę usuwania duplikatów. Sam numer w rankingu nie zastępuje tych informacji. Duże państwo z wieloma strefami klimatycznymi ma też inną powierzchnię i historię rozpoznania niż mała wyspa. Jeżeli celem jest porównanie znaczenia przyrodniczego, warto obok liczby gatunków pokazać endemizm, zasięgi i presję na siedliska.
Podobne środowiska i powtarzalne przystosowania
Konwergencja oznacza niezależne wykształcanie podobnych cech. Jej czytelnym przykładem są anolisy z Wielkich Antyli. W badaniu z 2013 roku porównano 100 spośród 119 rozpatrywanych wówczas gatunków, wykorzystując 11 cech związanych między innymi z wielkością ciała, długością kończyn i budową powierzchni przylgowych palców. Na różnych wyspach powtarzały się zestawy specjalizacji związanych z podobnymi częściami roślinności. Zespoły nie były jednak identyczne; występowały także rozwiązania charakterystyczne dla poszczególnych wysp. [133]

Przykład anolisów pokazuje, dlaczego wygląd trzeba zestawiać z danymi o pokrewieństwie. Podobieństwo dwóch jaszczurek może wynikać ze wspólnego pochodzenia, z podobnych nacisków środowiska albo z połączenia obu czynników. Dopiero drzewo rodowe pozwala rozpoznać, które podobieństwa powstały niezależnie. Porównanie nie kończy się więc na stwierdzeniu, że dwa zwierzęta żyją na drzewach; obejmuje sposób wykorzystywania gałęzi, proporcje ciała i historię badanych linii. [133]
Rozdział 22Gady Polski
Polska fauna gadów obejmuje przedstawicieli żółwi oraz łuskonośnych. Jej opis wymaga oddzielenia dobrze potwierdzonych rodzimych gatunków od zwierząt obcych i przypadków o nierozstrzygniętym pochodzeniu. Samo odnalezienie osobnika na terenie kraju nie dowodzi jeszcze istnienia rodzimej, trwałej populacji. Z kolei zmiana liczby rozpoznawanych gatunków może wynikać z postępu systematyki, a nie z pojawienia się nowego zwierzęcia.
Dziewięć dobrze potwierdzonych rodzimych gatunków
Poniższe zestawienie przedstawia dziewięć dobrze potwierdzonych rodzimych gatunków. Nie jest katalogiem wszystkich gadów kiedykolwiek stwierdzonych w Polsce. Nazwy odpowiadają wykazowi Atlasu Płazów i Gadów w Polsce IOP PAN, z rozdzieleniem obu gatunków padalców potwierdzonym w badaniach molekularnych. [38, 134]
Tabela 27. Rodzime gady Polski objęte podstawowym przeglądem
Nazwa polska | Nazwa naukowa | Grupa i podstawowa charakterystyka |
|---|---|---|
Żółw błotny | Emys orbicularis | Rodzimy żółw związany ze zbiornikami wodnymi i pobliskimi miejscami rozrodu na lądzie |
Jaszczurka zwinka | Lacerta agilis | Jaszczurka spotykana na otwartych i półotwartych, nasłonecznionych terenach |
Jaszczurka żyworodna | Zootoca vivipara | Jaszczurka występująca także w chłodniejszych i wilgotniejszych siedliskach |
Padalec zwyczajny | Anguis fragilis | Beznoga jaszczurka; w Polsce przede wszystkim w zachodniej części kraju |
Padalec kolchidzki | Anguis colchica | Beznoga jaszczurka; w Polsce przede wszystkim we wschodniej części kraju |
Zaskroniec zwyczajny | Natrix natrix | Wąż często związany z okolicami wód i wilgotnymi siedliskami |
Gniewosz plamisty | Skryty wąż, którego ubarwienie bywa przyczyną mylenia go ze żmiją | |
Wąż Eskulapa | Zamenis longissimus | Ciepłolubny wąż o bardzo ograniczonym krajowym występowaniu |
Żmija zygzakowata | Vipera berus | Rodzimy wąż jadowity; wzór i barwa ciała wykazują znaczną zmienność |
Podział zasięgów padalców na zachód i wschód jest przybliżeniem, nie ostrą granicą administracyjną. Badanie opublikowane w 2025 roku objęło 35 populacji i wykazało obecność pięciu mieszańców w trzech populacjach polskiej strefy kontaktu. Wynik ten przypomina, że rozpoznanie gatunku nie zawsze jest możliwe na podstawie jednej cechy ze zdjęcia. [134]
Gatunki wymagające osobnego komentarza
Zaskroniec rybołów (Natrix tessellata) jest w Polsce potwierdzony. Publikacja z 2022 roku opisała obserwacje osobników w różnym wieku z lat 2019–2021 na Śląsku Cieszyńskim, wskazujące na istnienie rozmnażającej się, potencjalnie trwałej populacji. Autorzy przypuszczali, że populacja mogła powstać wskutek introdukcji, ale nie wykluczyli pochodzenia reliktowego ani naturalnego rozszerzania zasięgu. Obecności populacji nie należy zatem mylić z rozstrzygnięciem jej pochodzenia. [135]
Murówka pospolita (Podarcis muralis) również występuje w kraju. Baza IOP PAN klasyfikuje ją jako obcą w części Polski, a w innych obszarach jako kryptogeniczną, czyli o niepewnym rodzimym lub obcym pochodzeniu. Taki status należy pozostawić widoczny w zestawieniu, zamiast arbitralnie doliczać wszystkie stanowiska do fauny rodzimej. [136]
Jaszczurka zielona (Lacerta viridis) pojawia się w starszych wykazach i materiałach edukacyjnych. Przegląd opublikowany w 2019 roku wskazał jednak, że dostępne dane nie pozwalają jednoznacznie potwierdzić jej naturalnego występowania w Polsce w czasach współczesnych. Nie należy przedstawiać jej jako powszechnie spotykanego krajowego gatunku. Nie należy też uznawać każdej zielono ubarwionej jaszczurki za L. viridis. [137]
Żółw ozdobny (Trachemys scripta) jest gatunkiem obcym i inwazyjnym. Jego obecność w środowisku Polski wiąże się z działalnością człowieka. W materiałach popularnych trzeba wyraźnie odróżniać go od rodzimego żółwia błotnego; samo wspólne występowanie w stawie nie nadaje obu gatunkom tego samego statusu biogeograficznego. [138]
Jak czytać dane o rozmieszczeniu
Atlas obserwacji jest narzędziem dokumentowania obecności gatunków, a nie prostym licznikiem osobników żyjących w kraju. Liczba zgłoszeń zależy również od aktywności obserwatorów, dostępności terenu, rozpoznawalności zwierzęcia i sposobu prowadzenia bazy. Dziesięć obserwacji nie musi oznaczać dziesięciu różnych zwierząt. Brak wpisu na mapie nie jest równoznaczny z udowodnioną nieobecnością gatunku.
Wartościowe zgłoszenie powinno rozdzielać to, co rzeczywiście zaobserwowano, od hipotezy. Informacja o dacie, siedlisku i cechach widocznych na fotografii zwykle jest użyteczniejsza niż stanowcza identyfikacja oparta na kolorze. Obserwowanie z dystansu ogranicza ryzyko niepokojenia zwierzęcia. [139] Przy publikowaniu danych o bardzo rzadkich gatunkach znaczenie ma także ostrożność w ujawnianiu dokładnych lokalizacji.
Rozdział 23Obserwowanie i rozpoznawanie gadów w Polsce
Cechy widoczne z dystansu
W terenowym oznaczaniu należy łączyć kilka cech i zachować możliwość pozostawienia identyfikacji na poziomie grupy. U węży widok głowy, wzoru grzbietu i proporcji ciała bywa użyteczny, ale fotografie mogą zniekształcać rozmiar i barwę. Ciemne ubarwienie, silne cienie albo częściowe zasłonięcie zwierzęcia ograniczają wartość pojedynczego znaku. U gniewosza plamistego zmienność koloru jest duża, natomiast układ plam na głowie może pomagać w odróżnianiu osobników w specjalistycznej dokumentacji. [140]
Tabela 28. Wskazówki do ostrożnego rozpoznawania wybranych krajowych gadów
Zwierzę | Przydatna cecha | Ograniczenie rozpoznania |
|---|---|---|
Padalce Anguis | Ruchome powieki i gładko wyglądające ciało bez kończyn | Odróżnienie dwóch krajowych gatunków ze zdjęcia bywa niepewne |
Zaskroniec zwyczajny | Jasne plamy za głową, często z ciemnym obrzeżeniem | U niektórych osobników, zwłaszcza melanistycznych, plamy mogą być niewidoczne |
Gniewosz plamisty | Ciemna smuga przez oko i plamy na grzbiecie | Zlewające się plamy mogą przypominać wzór innego węża |
Żmija zygzakowata | Często wyraźny zygzak i stosunkowo krępa sylwetka | U osobników bardzo ciemnych zygzak może się nie odcinać |
Tabela ma charakter orientacyjny i nie jest kluczem gwarantującym oznaczenie. Źródła cech i ich ograniczeń: materiały Lasów Państwowych, opis GIOŚ, opracowania muzealne oraz badanie strefy kontaktu padalców. [140, 141, 142, 143, 139, 134]
Kształt źrenicy może wspierać oznaczenie przy dobrym zdjęciu, ale nie powinien być celem zbliżania się do zwierzęcia. Podobnie nie należy przewracać gada, aby obejrzeć brzuch. Fotografia wykonana z dystansu, wraz z opisem siedliska, zwykle pozwala specjaliście ocenić, jakie cechy rzeczywiście widać i czego brakuje. W razie wątpliwości uczciwy opis „wąż nieoznaczony” zachowuje większą wartość niż błędna, kategoryczna nazwa.
Rozpoznanie padalca jako beznogiej jaszczurki nie kończy oznaczenia do gatunku. W Polsce występują dwa gatunki, a wyniki badań ich kontaktu i mieszańców ograniczają użyteczność prostego podziału na „zachodni” i „wschodni”. Także punkt na mapie po niewłaściwej stronie przybliżonej granicy nie jest samodzielnym dowodem błędu obserwacji. O rozpoznaniu powinien decydować materiał dowodowy, a nie granica województwa. [134]
Dokumentacja przydatna przyrodnikom
W notatce terenowej trzeba zapisać datę i godzinę, miejsce wraz z dokładnością lokalizacji, liczbę zauważonych zwierząt, siedlisko oraz sposób obserwacji. Warto osobno opisać zachowanie: wygrzewanie, przemieszczanie się, żerowanie lub ukrywanie. Taka informacja pozwala w przyszłości odróżnić aktywne wykorzystanie siedliska od przypadkowego przejścia. Zdjęcie powinno zachować oryginalną wersję; mocne podbijanie kolorów, wyostrzanie i usuwanie fragmentów otoczenia może utrudnić ocenę cech.
Samo stwierdzenie młodego zwierzęcia jest wartościowe, lecz należy ostrożnie wnioskować o miejscu rozrodu i pochodzeniu populacji. Dobrze ilustruje to zaskroniec rybołów na Śląsku Cieszyńskim: dokumentacja osobników w różnym wieku wspierała wniosek o rozmnażającej się populacji, natomiast nie rozstrzygała między wszystkimi hipotezami jej pochodzenia. Obserwacje terenowe i interpretacja biogeograficzna są osobnymi etapami badania. [135]
Najmniej ingerująca obserwacja pozostawia zwierzęciu drogę odejścia i nie wymaga przenoszenia go na atrakcyjniejsze tło. Podnoszenie kamieni, rozbieranie stert drewna albo wielokrotne odsłanianie kryjówek zmienia warunki schronienia. W rekreacyjnej obserwacji lepiej dokumentować naturalnie widoczne zwierzęta. Metody stosowane w nadzorowanych badaniach nie są automatycznie instrukcją do samodzielnego odtwarzania. [143, 139]
Dokładne współrzędne rzadkiego stanowiska należy przekazywać właściwej bazie lub specjalistom, z uwzględnieniem zasad udostępniania danych. Publiczny opis może ograniczać lokalizację do szerszego obszaru. W zgłoszeniu warto zachować pierwotną niepewność oznaczenia i dopisać późniejszą weryfikację jako osobną informację. Dzięki temu rekord pokazuje zarówno obserwację, jak i historię jej sprawdzenia.
Rozdział 24Zagrożenia i ochrona
Jak duża część gadów jest zagrożona
Global Reptile Assessment, opublikowany w „Nature” w 2022 roku, objął 10 196 gatunków. Do kategorii zagrożonych — VU, EN i CR — przypisano 1 829, a 1 507 miało niedostateczne dane, czyli DD. Najlepszy szacunek udziału zagrożonych wyniósł 21,1%. Oceny gatunkowe pochodziły z różnych lat, od 1996 do 2020. [4]
Tabela 29. Udział zagrożonych gatunków według badania z 2022 roku
Grupa | Najlepszy szacunek | Jak rozumieć wynik |
|---|---|---|
Żółwie | 57,9% | Wysoki udział zagrożonych wśród gatunków z dostatecznymi danymi |
Krokodyle | 50,0% | Niewielka liczba gatunków; duże znaczenie sytuacji poszczególnych z nich |
Łuskonośne | 19,6% | Ogromne zróżnicowanie sytuacji między rodzinami i regionami |
Hatteria | 0% | Wynik dla jednego gatunku; nie oznacza braku zagrożeń lokalnych |
Źródło: Cox i in. 2022. Wartości nie są stanem ponownie obliczonym dla katalogu gatunków z 2026 roku. [4]
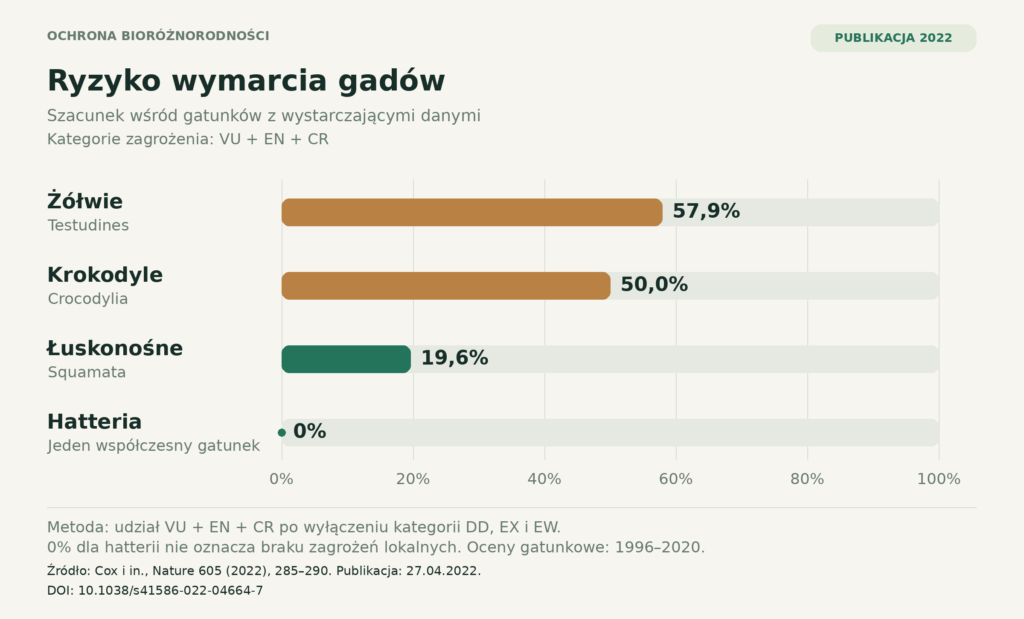
Co oznacza brak danych
Kategoria DD oznacza niedostateczne informacje do określenia ryzyka wymarcia. Nie jest oceną pośrednią między LC i VU. W pracy Coxa i współautorów z 2022 roku DD przypisano 1 507 gatunkom. Najlepszy szacunek 21,1% zagrożonych uzyskano po odjęciu od mianownika gatunków DD, EX i EW. Scenariusze 18,0% i 32,8% odpowiadają założeniom, że żaden albo każdy gatunek DD jest zagrożony. Rozstęp ten opisuje wrażliwość wyniku na brak wiedzy; nie ma znaczenia przedziału ufności. [4]
W podsumowaniu IUCN w wersji 2026-1 stosowana jest odmienna konwencja raportowania: EW włącza się do licznika wraz z CR, EN i VU, a z mianownika najlepszego szacunku wyłącza EX i DD. Porównując publikacje, należy zatem odczytać definicję wskaźnika. Tego samego zaokrąglonego odsetka nie można automatycznie traktować jako pomiaru wykonanego identyczną metodą. [144]
Rzetelny podpis pod tabelą powinien podawać źródło, wersję danych, zakres taksonomiczny i sposób liczenia udziału. Data publikacji nie musi być datą wszystkich obserwacji wykorzystanych w analizie. Porównanie dwóch przekrojów czasowych wymaga dodatkowo ustalenia, czy zmiana kategorii wynikała z rzeczywistego pogorszenia stanu gatunku, nowej wiedzy, czy zmienionej klasyfikacji. IUCN rejestruje przyczyny zmian kategorii właśnie po to, aby oddzielać te procesy. [144]
Główne przyczyny spadków
Utrata siedlisk przez rolnictwo, wycinanie lasów i zabudowę należy do najważniejszych presji. Znaczenie mają też gatunki inwazyjne oraz niezrównoważone pozyskiwanie zwierząt. Zagrożenia mogą się wzmacniać: izolowana populacja ma mniejsze możliwości przemieszczenia się, gdy sąsiedni fragment siedliska zostaje zniszczony. [145]
W przypadku żółwi morskich szczególnie istotny jest przyłów, uszkadzanie miejsc lęgowych, zanieczyszczenie morza i kolizje z jednostkami pływającymi. Problem dotyczy całego cyklu życia. Ochrona samego gniazda nie wystarczy, jeżeli dorosłe samice giną regularnie podczas żerowania. [37]
Zmiana klimatu może modyfikować warunki aktywności, dostępność wody i przebieg rozrodu. U gatunków z temperaturową determinacją płci może również zmieniać proporcje samców i samic. Badanie żółwi zielonych z Wielkiej Rafy Koralowej wykazało bardzo wysoki udział samic w młodszych grupach pochodzących z północnych lęgowisk. Wynik był regionalny i nie opisuje całej światowej populacji gatunku. [146, 120]
Jak działa skuteczna ochrona
Ochrona musi odpowiadać biologii gatunku. Dla gada leśnego priorytetem może być zachowanie ciągłości lasu i odpowiedniego mikroklimatu. Dla żółwia słodkowodnego potrzebny jest zarówno bezpieczny zbiornik, jak i dostęp do miejsc składania jaj. Dla hatterii szczególne znaczenie ma niedopuszczenie do pojawienia się obcych drapieżników w ostojach. [145, 49, 38]
Warto odróżniać liczbę wykonanych działań od efektu biologicznego. Wybudowanie przejścia lub osłonięcie gniazd jest środkiem; rezultatem, który należy sprawdzić, jest poprawa przeżywalności, rozrodu albo łączności populacji. Monitorowanie powinno obejmować kilka sezonów i uwzględniać wykrywalność zwierząt. Pojedynczy rok z małą liczbą obserwacji nie zawsze oznacza gwałtowny spadek populacji.
Udokumentowany przykład poprawy
W październiku 2025 roku opublikowano zmianę globalnej kategorii żółwia zielonego, Chelonia mydas, z EN na LC. Datą samej oceny jest 9 grudnia 2024 roku. [147, 148] Opracowanie autorów ocen MTSG wyjaśnia, że podawany wzrost około 28% odnosi się do gniazdowania w lęgowiskach uwzględnionych w ocenie; nie jest pełnym spisem wszystkich żyjących osobników. Poprawę wiązano z wieloletnią ochroną, lecz część subpopulacji nadal pozostaje zagrożona. [147, 149]
Ten przykład pokazuje, dlaczego w artykule przy kategoriach ochronnych potrzebne są daty. Globalne LC oznacza określony wynik oceny ryzyka, a nie brak presji w każdym miejscu występowania. Nie unieważnia też potrzeby lokalnych programów ochrony.
Rozdział 25Gady wobec zmiany klimatu
Klimat oddziałuje przez warunki dostępne zwierzęciu
Temperatura powietrza nie opisuje całego obciążenia cieplnego gada. Znaczenie mają także promieniowanie słoneczne, wiatr, wilgotność oraz właściwości ciała i podłoża. Kearney i współautorzy w pracy z 2009 roku połączyli bilans cieplny zwierzęcia z modelowaniem jego zachowania. Pokazali, że dostęp do zacienionych miejsc może silnie zmieniać przewidywaną odpowiedź na ocieplenie. Model dopuszczający wybór miejsca daje inne wyniki niż założenie, że zwierzę stale doświadcza temperatury jednego punktu pomiarowego. W części chłodniejszych środowisk wzrost temperatury może wydłużać potencjalny czas aktywności, podczas gdy w gorących środowiskach może go ograniczać. Nie oznacza to automatycznie wzrostu albo spadku liczebności: modelowany czas aktywności jest jednym z ogniw prowadzących do wyniku demograficznego. Z perspektywy ochrony istotna staje się więc przestrzenna różnorodność dostępnych warunków, a nie sama średnia temperatura regionu. [150]
Szybszy wzrost nie gwarantuje trwania populacji
Bestion i współautorzy badali jaszczurkę żyworodną Zootoca vivipara w półnaturalnych warunkach doświadczalnych. Eksperyment obejmował łącznie 18 populacji: osiem w 2012 roku i dziesięć w 2013 roku. W cieplejszym wariancie średnia letnia temperatura była o około 2°C wyższa. Osobniki młodociane szybciej rosły, a młode samice częściej przystępowały do rozrodu kolejnej wiosny; przeżywalność osobników dorosłych i rocznych spadała. Połączenie tych zmian w modelu demograficznym wskazywało na zagrożenie trwałości populacji. To przykład sytuacji, w której pozornie korzystna odpowiedź pojedynczej cechy nie wystarcza do oceny całego cyklu życia. Więcej okazji do wzrostu i wcześniejsze dojrzewanie mogą współwystępować z krótszym udziałem osobnika w rozrodzie. Wynik dotyczy konkretnego gatunku i warunków doświadczenia; nie określa uniwersalnego progu bezpieczeństwa dla gadów. Publikowane przez autorów prognozy zaniku populacji pochodziły z modelu wykorzystującego zmierzone parametry, a nie z wieloletniej obserwacji rzeczywistego wymarcia. [151]
Proporcja płci wymaga określenia wieku i pochodzenia
Jensen i współautorzy (2018) zbadali 411 żółwi zielonych Chelonia mydas z żerowiska Howick Group. Próba obejmowała różne pochodzenia; liczba 411 nie dotyczy wyłącznie północnej populacji. Oznaczanie płci połączono z genetycznym szacowaniem pochodzenia. Klasy wielkości przybliżały wiek; największa nie oznacza potwierdzonej dojrzałości każdego osobnika. [152]
Tabela 30. Szacowany udział samic z północnej Wielkiej Rafy Koralowej według Jensena i współautorów (2018)
Klasa wielkości | Udział samic |
|---|---|
Młodociane | 99,1% |
Poddorosłe | 99,8% |
Osobniki o rozmiarach dorosłych | 86,8% |
To oszacowania dla osobników z żerowiska, nie globalne proporcje płci. [152]
Skład płciowy wylęgu nie jest tym samym co udział płci w rozrodzie. Wright i współautorzy analizowali ponad 800 potomków 20 samic żółwia zielonego z Alagadi na Cyprze, z sezonu 2008. Ustalili udział co najmniej 28 ojców, czyli minimum 1,4 samca na badaną samicę. Jednocześnie udział samic w miejscowym wylęgu tego sezonu oszacowano na 95%. Dorosłe osobniki pochodziły jednak z wcześniejszych pokoleń: badanie nie śledziło tych samych młodych do dojrzałości. Wynik pokazuje potrzebę osobnego badania młodych, dorosłych i rzeczywistych rodziców. Nie dowodzi, że zachowanie samców zawsze skompensuje dalsze przesuwanie proporcji płci ani że ograniczenie liczby samców pozostanie bez konsekwencji genetycznych. [153]
Ten sam kierunek ocieplenia może zmieniać płeć w przeciwnych kierunkach
U hatterii z North Brother Island cieplejsze warunki rozwoju sprzyjają powstawaniu samców. To istotne uzupełnienie przykładu żółwi morskich: określenie „temperaturowe ustalanie płci” nie oznacza identycznej odpowiedzi wszystkich gadów. Mitchell i współautorzy w pracy z 2008 roku połączyli dane o rozwoju zarodków z fizycznym modelem warunków w gniazdach. Badali, jak scenariusze przyszłego klimatu mogą zmieniać proporcję płci oraz termin wykluwania. Rozpatrywali także wpływ głębokości gniazda, zacienienia i przesunięcia terminu składania jaj. Część takich zmian mogła w modelu ograniczać przewagę samców. Było to sprawdzenie potencjalnych mechanizmów kompensacji, a nie dowód, że dzikie samice rzeczywiście zmienią zachowanie w wymaganym tempie. Scenariusze modelowe opisują zależności między przyjętymi warunkami i wynikiem. Nie należy przedstawiać ich jako zaobserwowanego przyszłego losu populacji. [154]
Opady i upał działają razem
Na plaży Playa Grande w Kostaryce badano przeżywanie jaj i młodych żółwia skórzastego Dermochelys coriacea. Santidrián Tomillo i współautorzy wykazali w publikacji z 2012 roku znaczenie zarówno temperatury powietrza, jak i opadów. W cieplejszych i bardziej suchych warunkach związanych z El Niño śmiertelność była wyższa. W takim przypadku uwzględnienie wyłącznie temperatury pomija część procesu: wynik inkubacji zależy od równoczesnego przebiegu warunków cieplnych i wodnych. Autorzy wykorzystali obserwowane zależności również do projekcji przyszłych zmian. Trzeba rozdzielać te dwa elementy pracy. Zależność od historycznej zmienności klimatu była analizowana na danych terenowych, natomiast przyszłe wyniki zależały od scenariusza oraz założenia, że opisane relacje pozostaną odpowiednie. Nie każde gorące lato jest osobnym dowodem zmiany klimatu, ale powtarzalna zależność między warunkami a przeżywaniem pomaga rozpoznać mechanizm wrażliwości populacji. [155]
Porównanie czterech miejsc gniazdowania żółwi skórzastych, opublikowane przez Santidrián Tomillo i współautorów w 2015 roku, ujawniło zróżnicowanie odpowiedzi nawet w obrębie jednego gatunku. Analiza obejmowała Playa Grande, Sandy Point, Pacuare oraz Maputaland, reprezentujące różne warunki klimatyczne. W bardziej suchych miejscach, Playa Grande i Sandy Point, większe opady wiązały się z większą produkcją młodych. W wilgotnym Pacuare zależność była bardziej złożona, a w Maputaland nie wykryto badanego wpływu klimatycznego. Ujemna zależność od temperatury powietrza w analizach poszczególnych stanowisk wystąpiła w Playa Grande. W interpretacji wyników autorzy wskazali różne mechanizmy: deszcz zwiększa wilgotność i chłodzi podłoże, ale nadmiar wody może wypierać powietrze z przestrzeni między ziarnami piasku, utrudniając rozwój zarodków. Praktyczny wniosek dotyczy skali rozpoznania: prognozy dla gatunku powinny uwzględniać lokalne warunki, a brak wykrytego związku na jednym stanowisku nie oznacza odporności wszystkich jego populacji. [156]
Zacienienie trzeba oceniać także przez jakość wylęgu
Wood, Booth i Limpus badali w Mon Repos w Australii wpływ nasłonecznienia na gniazda karetty Caretta caretta. W publikacji z 2014 roku analizowali temperaturę gniazd, opuszczanie gniazda przez młode, przewidywaną proporcję płci oraz cechy wyklutych żółwi. Zacienienie obniżało temperaturę, natomiast wysokie temperatury inkubacji wiązały się z mniejszymi rozmiarami młodych i pogorszeniem badanych zdolności ruchowych. W ocenie wyniku uwzględniano między innymi odwracanie się z pozycji na grzbiecie oraz prędkość pełzania. Dzięki temu skuteczność zmiany warunków nie została sprowadzona wyłącznie do proporcji płci. Badanie dostarcza przesłanek do ochrony i świadomego kształtowania warunków termicznych miejsc gniazdowania. Nie ustanawia jednak jednego stopnia zacienienia właściwego dla wszystkich plaż i gatunków. Ocena zabiegu powinna obejmować faktyczne warunki inkubacji oraz wynik biologiczny, a nie samo stwierdzenie, że powierzchnia gniazda została osłonięta. [157]
Zdarzenia skrajne i możliwość zmian ewolucyjnych
Zmiany biologiczne mogą zachodzić również po krótkich epizodach pogodowych. Campbell-Staton i współautorzy analizowali skutki silnego ochłodzenia zimą 2013–2014 u anolisa zielonego Anolis carolinensis w południowo-wschodnich Stanach Zjednoczonych. Po zimie osobniki na południowym krańcu zasięgu wykazywały większą tolerancję zimna. Badacze stwierdzili również zmiany ekspresji genów i zróżnicowania genomowego, wspierające interpretację udziału doboru naturalnego. Praca z 2017 roku łączyła więc poziom cech organizmu z poziomem molekularnym. Nie wykazywała natomiast, że konkretna burza zimowa została spowodowana globalnym ociepleniem. Nie dowodziła też, że wszystkie gatunki potrafią dostatecznie szybko dostosować się do dowolnego tempa zmian. W ochronie trzeba odróżniać udokumentowaną odpowiedź badanej populacji od nadziei na przyszłą adaptację. Ta druga wymaga danych o zmienności, przeżywaniu i rozrodzie, a nie samego stwierdzenia, że ewolucja jest możliwa. [158]
Tabela 31. Różne badania odpowiadają na różne pytania o klimat
Rodzaj dowodu | Przykład | Co bezpośrednio opisuje |
|---|---|---|
Eksperyment populacyjny | Zootoca vivipara | Odpowiedź przeżywania i rozrodu na warunki doświadczenia. [151] |
Model mechanistyczny | Hatteria | Wynik przy zadanych warunkach klimatu i gniazdowania. [154] |
Badanie warunków inkubacji | Karetta z Mon Repos | Związek zacienienia z temperaturą i cechami młodych. [157] |
Porównanie przed zdarzeniem i po nim | Anolis zielony | Odpowiedź badanych populacji na konkretny epizod zimna. [158] |
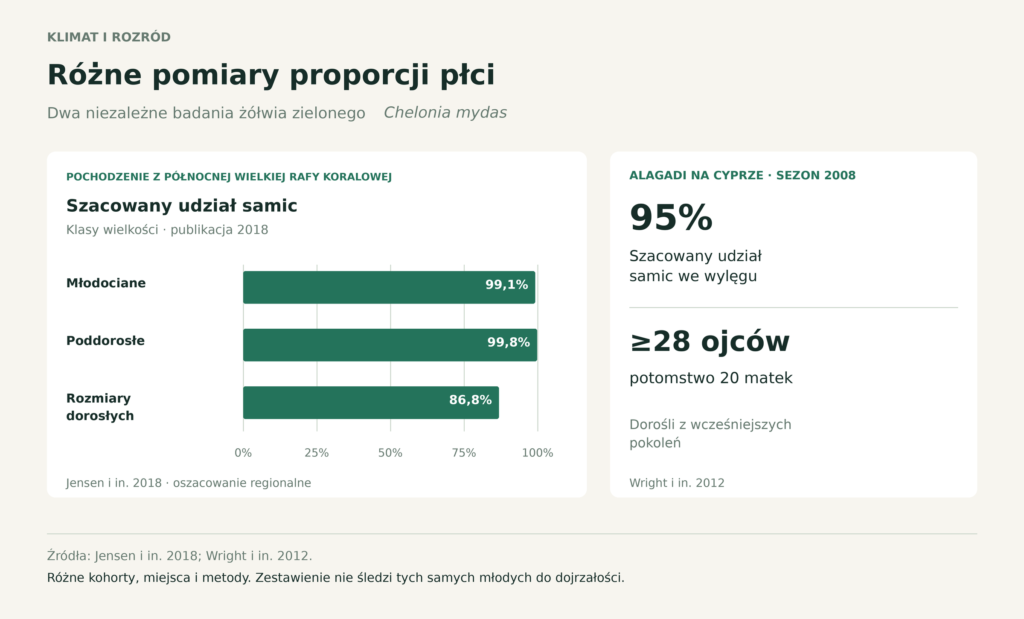
Rozdział 26Choroby i ich znaczenie dla dzikich populacji
Wykrycie drobnoustroju i rozpoznanie choroby
Definicja ophidiomykozy węży USGS z 2024 roku rozdziela wykrycie grzyba Ophidiomyces ophidiicola od choroby. Dodatni wynik molekularny nie określa ciężkości zmian ani wpływu na populację. [159]
Tabela 32. Znaczenie różnych rodzajów dowodu w ocenie ophidiomykozy
Rodzaj informacji | Co można z niej wnioskować |
|---|---|
Widoczna zmiana skóry | Istnieje nieprawidłowość; jej wygląd nie rozstrzyga przyczyny. |
Dodatni qPCR bez zgodnych zmian lub bez ich badania | Wykryto materiał grzyba; samo to nie potwierdza choroby. |
Zgodne zmiany histopatologiczne z obecnością elementów grzyba wewnątrz zmian oraz dodatni qPCR lub hodowla | Spełniono wskazane kryteria potwierdzonego przypadku. |
Tabela przedstawia wybrane poziomy dowodu według USGS, nie kompletną klasyfikację przypadków. [159]
Doświadczenie pozwala sprawdzić rolę przyczynową
Lorch i współautorzy opublikowali w 2015 roku kontrolowane badanie na wężach zbożowych Pantherophis guttatus pochodzących z hodowli. U wszystkich ośmiu zwierząt poddanych ekspozycji na badany grzyb rozwinęły się zmiany makroskopowe i mikroskopowe odpowiadające ophidiomykozie. U siedmiu zwierząt kontrolnych nie stwierdzono takiego zakażenia skóry. Grzyb ponownie wyizolowano ze zmian u eksponowanych węży. Zestawienie doświadczenia, zmian w tkankach i odzyskania tego samego czynnika wspierało wniosek o jego roli przyczynowej. Zaobserwowano również zmiany zachowania, utratę apetytu i częstsze linienie. Wartość tego badania polega na sprawdzeniu związku przyczynowego w kontrolowanych warunkach. Nie dostarcza ono wskaźnika częstości choroby w naturze ani informacji, że każdy zakażony dziki wąż umrze. Liczby osiem i siedem opisują grupy doświadczalne, więc nie można wykorzystywać ich do obliczania śmiertelności populacji dzikich lub porównywania ryzyka między kontynentami. [160]
Materiał terenowy wymaga znajomości sposobu zbierania
Franklinos i współautorzy w pracy z 2017 roku badali materiał od dzikich węży z Wielkiej Brytanii oraz Czech. Przejrzano 33 zwłoki i 303 wylinki, zebrane w latach 2010–2016. Stwierdzono obecność grzyba, a u części węży również zmiany odpowiadające chorobie. Wyniki molekularne i hodowlane poszerzyły udokumentowany zasięg występowania tego czynnika poza Amerykę Północną. Jednocześnie selekcja materiału miała znaczenie dla interpretacji: badaniem molekularnym obejmowano przede wszystkim próbki ze zmianami, a nie losową reprezentację wszystkich węży żyjących w regionie. Patogen wykryto także u jednej żmii bez widocznych zmian skórnych. Przykład ten łączy dwa odrębne wnioski: chorobę udokumentowano w Europie, lecz z przedstawionych próbek nie wynika ogólny odsetek chorych europejskich węży. Wylinka i całe ciało zwierzęcia dostarczają też innego zakresu informacji, dlatego proste sumowanie różnych materiałów nie zastępuje projektu monitoringu populacji. [161]
Późne rozpoznanie problemu nie musi oznaczać niedawnego pojawienia się
Historia ophidiomykozy pokazuje znaczenie zbiorów muzealnych. Lorch i współautorzy opisali w 2021 roku przegląd 524 zachowanych okazów węży, reprezentujących 30 gatunków z 19 stanów wschodnich Stanów Zjednoczonych. Zwierzęta zebrano w latach 1900–2012. Dalsze badania wybranych okazów pozwoliły potwierdzić chorobę u osobników z Florydy z 1945 roku, Wisconsin z 1958 roku i Tennessee z 1973 roku. Potwierdzenie opierało się na zgodności zmian tkankowych i wykryciu DNA grzyba. Oznacza to, że choroba występowała na długo przed zwróceniem na nią szerszej uwagi w XXI wieku. Nie oznacza, że powstała właśnie w 1945 roku ani że jej częstość pozostawała przez ten czas stała. Materiał archiwalny ma dodatkowe ograniczenia: sposób utrwalenia wpływa na możliwość odzyskania DNA. Wynik ujemny w starym preparacie wymaga zatem innej ostrożności niż bezpośrednie stwierdzenie braku patogenu w historycznej populacji. [162]
Epizody masowej śmiertelności mogą mieć różne przyczyny
Ranawirusy stanowią kolejny udokumentowany problem zdrowotny dzikich gadów. Adamovicz i współautorzy przeanalizowali cztery epizody śmiertelności w trzech populacjach żółwia Terrapene carolina carolina w Illinois. Zdarzenia pochodziły z lat 2011, 2013, 2014 i 2015, a wyniki opublikowano w 2018 roku. W pierwszym epizodzie rozpoznano ciężkie zakażenia bakteryjne z udziałem wielu drobnoustrojów. W późniejszych zdarzeniach wykazano udział ranawirusa, wykorzystując między innymi badania tkanek i testy molekularne. Równocześnie wykrywano inne czynniki, w tym herpeswirusy, adenowirusy i mykoplazmy. Część z nich stwierdzano także poza samymi epizodami zwiększonej śmiertelności. Współwykrycie kilku drobnoustrojów nie oznacza zatem, że każdemu można przypisać taki sam udział w śmierci zwierząt. Zasadniczym wynikiem tej serii badań była różnorodność przyczyn oraz znaczenie łączenia obserwacji terenowych z patologią i badaniami laboratoryjnymi. Samo podobieństwo widocznego problemu między latami nie rozstrzygało jego etiologii. [163]
Kontynuacja badań w środkowym Illinois dostarczyła szczególnie pouczającego kontrastu. Rayl i współautorzy monitorowali 36 żółwi wyposażonych w nadajniki od wiosny 2016 do wiosny 2018 roku, po wcześniejszych epizodach związanych z ranawirusem. Badanie sekcyjne przeprowadzono u 17 padłych osobników. Nie wykryto ranawirusa u żadnego z monitorowanych żółwi, a obserwowanych strat nie przypisano jednemu wspólnemu czynnikowi. Praca została opublikowana w tomie czasopisma z 2020 roku. Jej znaczenie polega na weryfikacji hipotezy, która mogłaby wydawać się oczywista na podstawie historii miejsca: wcześniejszy problem z danym patogenem nie wystarczył do wyjaśnienia kolejnych zgonów. Wynik ujemny dotyczył badanych osobników i zastosowanego nadzoru. Nie jest dowodem nieobecności wirusa w całym parku ani gwarancją, że nie pojawi się on w następnych latach. Przykład pokazuje również wartość śledzenia znanych osobników, zamiast opierania oceny wyłącznie na przypadkowo znalezionych zwłokach. [164]
Mykoplazmy i choroby dróg oddechowych żółwi
Związek Mycoplasma agassizii z chorobą górnych dróg oddechowych żółwi pustynnych sprawdzono doświadczalnie już w pracy Browna i współautorów z 1994 roku. Wielogrupowy eksperyment porównywał skutki ekspozycji na mykoplazmę, inny badany drobnoustrój, ich połączenie oraz warunki kontrolne. Wyniki wspierały przyczynową rolę M. agassizii. Obok zmian klinicznych uwzględniano odpowiedź immunologiczną i ponowną izolację czynnika, dzięki czemu wnioskowanie wykraczało poza jednorazowe wykrycie bakterii. Badanie to ma znaczenie historyczne i mechanistyczne: pokazuje, w jaki sposób ustalano etiologię ważnego schorzenia żółwi. Nie stanowi pomiaru dzisiejszej częstości zakażeń ani aktualnego udziału choroby w spadku liczebności wszystkich populacji żółwi pustynnych. Takie pytania wymagają odrębnych danych terenowych. Dowód, że określony mikroorganizm może wywołać chorobę u gospodarza, i oszacowanie jego rzeczywistego znaczenia dla całej populacji są powiązanymi, lecz różnymi etapami badań. [165]
Choroby mogą ograniczać sukces już na etapie jaja
Badania Sarmiento-Ramíreza i współautorów, opublikowane w 2014 roku, objęły jaja sześciu gatunków żółwi morskich z różnych miejsc gniazdowania. Materiał zbierano w latach 2005–2012. Zidentyfikowano grzyby określone w pracy jako Fusarium falciforme i Fusarium keratoplasticum, związane z niskim powodzeniem wylęgu. Osobna analiza 102 gniazd karetty z Boa Vista, przeniesionych na wydzielony teren wylęgowy na plaży Ervatao w 2011 roku, wykazała związek udziału jaj ze zmianami grzybiczymi ze śmiertelnością zarodków. Badano również gniazda różniące się zalewaniem przez pływy i udziałem drobnych frakcji podłoża; warunki te wiązały się z nasileniem problemu. Przykład pokazuje, że ocenę zakażenia warto łączyć z charakterystyką siedliska. Nie dostarcza jednak jednego globalnego odsetka strat jaj powodowanych przez grzyby. Zestawienie różnych stanowisk, gatunków i metod musi zachować ich odrębność, szczególnie gdy wyniki miałyby służyć wyborowi sposobu ochrony konkretnych miejsc gniazdowania. [166]
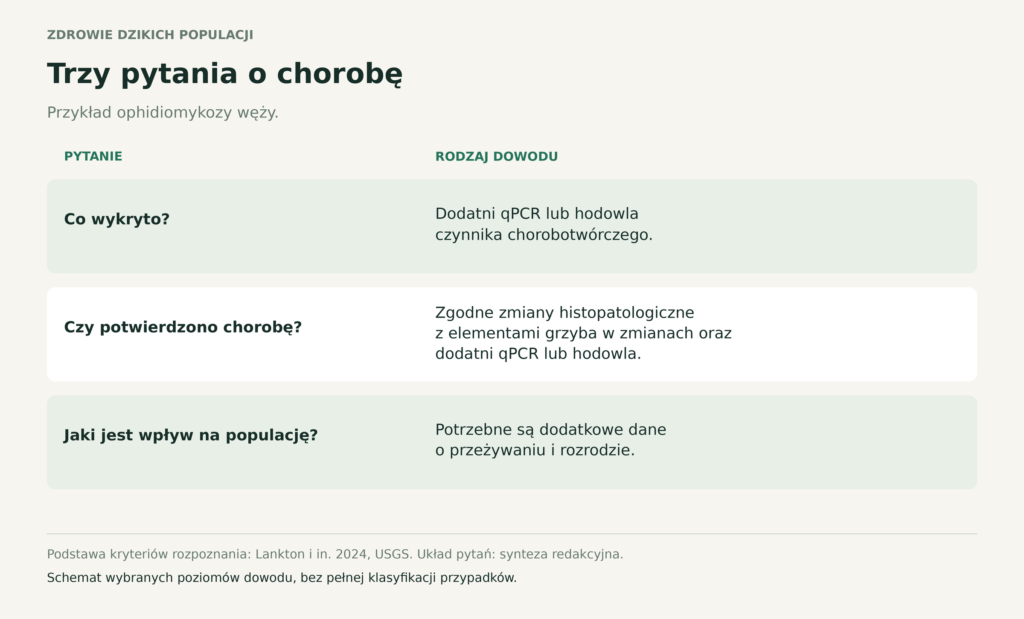
Rozdział 27Jak oceniać skuteczność ochrony gadów
Przykład gniewosza plamistego
Monitoring GIOŚ dla gniewosza plamistego w 2024 roku objął 31 stanowisk: 3 w regionie alpejskim i 28 w kontynentalnym. Wśród tych ostatnich 4 otrzymały ogólną ocenę właściwą FV, 2 niezadowalającą U1, a 22 złą U2. To oceny konkretnych stanowisk, nie kategorie Czerwonej Listy i nie oszacowanie, że taki sam odsetek wszystkich polskich populacji znajduje się w określonym stanie. [167]
Tabela 33. Ogólna ocena monitorowanych stanowisk gniewosza w regionie kontynentalnym w 2024 roku
Ocena stanu ochrony | Liczba stanowisk | Udział w 28 badanych stanowiskach |
|---|---|---|
FV stan właściwy | 4 | 14,3% |
U1 stan niezadowalający | 2 | 7,1% |
U2 stan zły | 22 | 78,6% |
Razem | 28 | 100,0% |
Źródło liczebności: GIOŚ, wyniki monitoringu za 2024 rok. Udziały obliczono z liczby stanowisk i zaokrąglono do jednego miejsca po przecinku. [167]
Raport za 2024 rok odnotowuje wyłączenie czterech stanowisk z dalszego monitoringu w porównaniu z siecią badaną w 2021 roku. Przyczyną było zniszczenie siedlisk związane z użytkowaniem terenu. Data wyłączenia stanowiska z próby nie musi być datą jego zniszczenia. Porównywanie wyłącznie procentów w pozostałej próbie może więc pomijać ważną część zmiany. Informacja o utraconych stanowiskach powinna towarzyszyć tabeli ocen istniejących ostoi. [167]
Metodyka gniewosza z modyfikacją z 15 kwietnia 2024 roku rozdziela trzy poziomy oceny. Populację opisują wskaźniki względnej liczebności i rozrodu, a siedlisko — zacienienia i bazy pokarmowej. Powierzchnię potencjalnych siedlisk w otoczeniu oraz izolację populacji uwzględnia się dodatkowo w perspektywach ochrony. Izolację usunięto jako osobny wskaźnik populacyjny, ale pozostaje ona elementem oceny perspektyw. Sama obecność dorosłych zwierząt nie rozstrzyga więc o długotrwałej zdolności stanowiska do utrzymania populacji. [168]
Działanie i efekt biologiczny
Zdjęcie żółwia w przejściu pod drogą dokumentuje skorzystanie z konstrukcji. Do oceny skuteczności potrzebne jest jeszcze pytanie, czy zmalała śmiertelność i czy zachowano możliwość przemieszczania się między siedliskami. Badanie Baxter-Gilberta i współautorów w Ontario, opublikowane w 2015 roku, łączyło obserwacje przed i po wykonaniu zabezpieczeń z odcinkiem kontrolnym. Stwierdzono, że nieszczelne ogrodzenia ograniczały skuteczność przejść. Zwierzęta używały konstrukcji, ale nadal dostawały się na jezdnię. [169]
Projekt obserwacji „przed i po, z kontrolą” pozwala porównać zmianę w miejscu działania z równoczesną zmianą w podobnym miejscu bez działania. Nie usuwa wszystkich problemów: odcinki mogą różnić się natężeniem ruchu, siedliskiem albo składem gatunków. Ułatwia jednak odróżnienie efektu interwencji od zmian dotyczących całego obszaru. [169]
Tabela 34. Przykładowe pytania do oceny działań ochronnych
Działanie | Bezpośredni pomiar | Pytanie o wynik biologiczny |
|---|---|---|
Przejście pod drogą i ogrodzenia | Liczba przejść i szczelność bariery | Czy ograniczono śmierć zwierząt i zachowano łączność |
Poprawa siedliska | Zmiana pokrycia roślinnością i dostępności kryjówek | Czy gatunek utrzymuje się i rozmnaża przez kolejne sezony |
Zabezpieczenie lęgowiska | Liczba chronionych gniazd | Czy poprawił się sukces lęgowy i dalsze przeżywanie młodych |
Inwentaryzacja nowych stanowisk | Liczba potwierdzonych lokalizacji | Czy odkryto nowe miejsca obecności czy udokumentowano zmianę zasięgu |
Tabela przedstawia przykładowy sposób formułowania pytań badawczych, nie gwarantowane skutki wymienionych działań. Podstawa rozróżnienia wskaźników: monitoring GIOŚ i eksperymentalna ocena zabezpieczeń drogowych. [168, 169]
W opisie projektu warto określić, co uznano za sukces jeszcze przed rozpoczęciem prac. Jedna ocena może dotyczyć obecności dorosłych, druga rozrodu, a trzecia trwałości siedliska. Gdy te kryteria pozostają jawne, łatwiej zauważyć częściowy efekt i odpowiednio zmienić działanie. Sama liczba wykonanych zabiegów lub ustawionych urządzeń nie odpowiada na pytanie, czy populacja ma większą szansę przetrwania.
Rozdział 28Presje środowiskowe i skuteczność działań ochronnych
Skuteczność ochrony najlepiej oceniać na podstawie jasno określonego problemu: utraty schronień, rozdzielenia siedlisk, śmiertelności w narzędziach połowowych albo działania obcego gatunku. Każda z tych presji wymaga innego rozwiązania i innej miary wyniku. Poniższe przykłady pochodzą z konkretnych badań terenowych oraz dokumentacji technicznej. Pokazują zarówno udane działania, jak i granice ich skuteczności. Zalecenia wynikające z porównania przypadków są syntezą redakcyjną; nie oznaczają, że wszystkie opisane rozwiązania sprawdzono dla każdego gada.
Odtwarzanie siedliska obejmuje także jego strukturę
W południowo-wschodniej Australii O’Sullivan i współautorzy porównali dodawanie kamieni oraz wyłączenie wypasu w doświadczeniu na dziesięciu stanowiskach. Przeprowadzono obserwacje przed zabiegami i po nich, uwzględniając powierzchnie kontrolne. Dodanie kamieni zwiększało liczbę odłowów, liczbę rozpoznanych osobników oraz liczbę gatunków. Nie stwierdzono natomiast istotnego ogólnego wpływu wyłączenia wypasu na te miary ani jego interakcji z dodawaniem kamieni. [170]
Układ obejmował miejsca z kamieniami i bez nich, zarówno przy utrzymanym wypasie, jak i po jego wyłączeniu. Dzięki temu można było sprawdzić oddzielnie działanie obu zabiegów. Wynik nie potwierdził założenia, że połączenie ich automatycznie zapewni większą korzyść niż samo odtworzenie skalnej struktury. [170]
Wynik dotyczył krajobrazu, w którym zachowały się pobliskie fragmenty skalnego siedliska, mogące dostarczać zwierząt kolonizujących odtworzone miejsca. Nie uzasadnia więc obietnicy, że dowolna sterta kamieni odtworzy populację na obszarze pozbawionym gadów. Wskazuje konkretny mechanizm: przywrócenie brakującej struktury może zwiększyć wykorzystanie siedliska. Sam wzrost liczby zwierząt na powierzchni badawczej nie rozstrzyga jeszcze, jaka część efektu wynika z przemieszczania się, a jaka z późniejszej poprawy rozrodu i przeżywania. [170]
Łączność wymaga oceny dla poszczególnych grup
Droga może jednocześnie utrudniać przemieszczanie się i powodować śmierć zwierząt. Konstrukcja ochronna powinna zatem ograniczać wejście na jezdnię, zachowując możliwość bezpiecznego przejścia. W sześcioletnim badaniu Boyle’a i współautorów ogrodzenia zmniejszyły liczbę żółwi oraz płazów stwierdzanych na drodze. Nie wykazano analogicznego efektu dla węży, choć korzystały one z tuneli. [171]
Skanery znaczników zarejestrowały 55 użyć przejść przez 24 różne żółwie oraz 69 użyć przez 15 różnych węży. Rozdzielenie liczby zdarzeń i liczby osobników pokazuje, że część zwierząt korzystała z konstrukcji wielokrotnie. Samego odczytu nie należy więc przedstawiać jako kolejnego osobnika objętego ochroną. [171]
To rozróżnienie ma praktyczne znaczenie: wspólna etykieta „przejście dla gadów” nie gwarantuje jednakowego wyniku dla żółwia i węża. Badanie dostarczyło jednocześnie dowodów użytkowania przejść oraz informacji o ograniczeniach ogrodzeń. Przy ocenie kolejnej inwestycji warto więc oddzielić pytanie o dostępność tunelu od pytania o skuteczność bariery. Wyniki należy zestawiać według grup zwierząt, zamiast uznawać poprawę u jednej z nich za automatyczny dowód ochrony wszystkich pozostałych. [171]
Tabela 35. Cztery działania i zakres potwierdzonego efektu
Działanie i kontekst | Co stwierdzono | Granica wniosku |
|---|---|---|
Dodanie kamieni na australijskich pastwiskach | Więcej odłowów, osobników i gatunków na powierzchniach z zabiegiem | Wynik z otoczenia zachowanych siedlisk skalnych [170] |
Ogrodzenia i tunele w badaniu drogowym | Mniej żółwi i płazów na drodze; brak takiego efektu dla węży | Korzystanie z tunelu nie dowodzi jednakowej ochrony wszystkich grup [171] |
Urządzenia TED we włokach krewetkowych | NOAA podaje 97% skuteczności wykluczania żółwi z włoków dla obecnych konstrukcji | Miara pracy urządzenia, nie procent odbudowy populacji [172] |
Usunięcie szczurów i kóz z Redondy | Wzrost wskaźnika względnego zagęszczenia Pholidoscelis atratus | Łączne działanie; badanie nie rozdziela wkładu usunięcia każdego ssaka [173] |
Tabela zestawia różne rodzaje dowodów. Nie tworzy rankingu metod: liczba zwierząt na drodze, częstość przyłowu i wskaźnik zagęszczenia mierzą inne procesy, na innych obszarach i w innych przedziałach czasu.
Dopasowanie ochrony przed przyłowem do narzędzi połowowych
Urządzenie TED, czyli separator umożliwiający ucieczkę żółwiowi, wykorzystuje kratę umieszczoną we włoku. Krewetki przechodzą między jej elementami, natomiast duże zwierzę jest kierowane ku otworowi wyjściowemu. NOAA opisuje obecne konstrukcje jako skuteczne w wykluczaniu 97% żółwi z włoków krewetkowych. Liczby tej nie należy przenosić na sieci skrzelowe ani rozumieć jako dowodu ograniczenia wszystkich przyczyn śmierci żółwi o 97%. Chodzi o określony mechanizm i typ narzędzia. [172]
Dla sieci skrzelowych badano odmienne rozwiązanie: oświetlenie zwiększające ich widoczność. W Zatoce Sechura w Peru testowano zielone diody LED. Porównanie obejmowało 114 par sieci, a opublikowany efekt odnosił się do modelowanego przyłowu żółwia zielonego na jednostkę nakładu połowowego. Badanie nie wykazało istotnej zmiany analogicznego wskaźnika połowu gatunków docelowych. Autorzy wskazywali również na znaczenie kosztu wyposażenia, obsługi sieci i współpracy z rybakami. [174]
W Ekwadorze przetestowano fioletowe diody w 146 zestawach obejmujących odcinki kontrolne i oświetlone. Spadek modelowanego przyłowu wykazano dla żółwia zielonego; dla żółwia oliwkowego nie był on statystycznie istotny. Łącznie odnotowano tylko trzynaście żółwi zielonych, dlatego duży procentowy efekt trzeba czytać razem z wielkością próby. Brak istotności dla drugiego gatunku nie dowodzi, że światło nigdy na niego nie działa — określa wynik tego doświadczenia. [175]
Tabela 36. Oświetlanie sieci: wyniki dwóch doświadczeń dla żółwia zielonego
Badanie i rozwiązanie | Liczba porównań | Surowe zdarzenia przyłowu: kontrola / światło | Spadek modelowanego przyłowu na jednostkę nakładu |
|---|---|---|---|
Peru; zielone LED; publikacja 2016 | 114 par sieci | 125 / 62 | 63,9% [174] |
Ekwador; fioletowe LED; publikacja 2020 | 146 zestawów | 12 / 1 | 93,3% [175] |
Wartości procentowe pochodzą z modeli uwzględniających nakład połowowy i inne zmienne. Nie obliczono ich przez proste dzielenie surowych liczb z sąsiedniej kolumny. Różne narzędzia, środowiska i próby nie pozwalają uznać tej tabeli za eksperyment porównujący kolory światła. Dotyczy ona przyłowu, a nie bezpośredniego pomiaru wzrostu populacji. [175, 174]
Różne drogi oddziaływania gatunków obcych
Przykład Redondy na Karaibach łączy ograniczenie drapieżnictwa z poprawą siedliska. Program usuwania introdukowanych szczurów i kóz zakończono w 2017 roku. Donihue i współautorzy opisali późniejszy wzrost względnego zagęszczenia miejscowej jaszczurki Pholidoscelis atratus. Wskaźnik oparty na liczeniach punktowych wynosił 111,7 osobnika na hektar podczas usuwania obcych ssaków w 2017 roku, 308,5 rok później oraz 935,3 dwa lata później. [173]
Są to wartości uzyskane określoną metodą obserwacyjną, nie pełny spis jaszczurek na całej wyspie. Usunięto dwa gatunki ssaków, a wraz z tym zmieniały się warunki środowiska; projekt nie pozwala przypisać każdemu działaniu osobnego procentu efektu. Autorzy omawiają również ograniczenia liczeń wzrokowych. Przypadek dokumentuje silną poprawę po złożonej interwencji, pozostawiając otwarte pytanie o dokładny udział poszczególnych mechanizmów. [173]
Jak wykorzystać te wyniki w planie ochrony
Porównanie opisanych badań prowadzi do praktycznej zasady: plan powinien wskazywać zarówno oczekiwany mechanizm, jak i sposób sprawdzenia jego działania. Przy odtwarzaniu schronień pytanie dotyczy zasiedlenia i późniejszego utrzymania zwierząt. Przy drodze — bezpiecznego przemieszczania się i ograniczenia ekspozycji na ruch. Przy zmianie sieci — przyłowu odniesionego do rzeczywistego nakładu połowowego oraz skutków dla połowu docelowego. Takie rozpisanie celu ułatwia rozpoznanie sytuacji, w której rozwiązanie działa częściowo i wymaga poprawy. Jest to wniosek z zestawienia przypadków, nie dodatkowy wynik pojedynczego eksperymentu.
Przenosząc metodę do nowego miejsca, należy osobno wskazać element potwierdzony i element nadal sprawdzany. Potwierdzone może być działanie urządzenia w danym rodzaju połowu albo korzystanie z tunelu przez określoną grupę zwierząt. Do sprawdzenia pozostają skuteczność w lokalnych warunkach, trwałość efektu oraz odpowiedź gatunku, którego wcześniejsze badanie nie obejmowało. Raport ochronny zyskuje na wartości, gdy przedstawia również wyniki neutralne i niejednoznaczne. Pozwalają one lepiej dobrać kolejne działania niż sam wykaz wykonanych prac.
Rozdział 29Jak naukowcy badają gady
Od spotkania zwierzęcia do odpowiedzi na pytanie
Poznawanie gadów wymaga rozdzielenia kilku zadań. Rozpoznanie gatunku odpowiada na pytanie, jakie zwierzę zaobserwowano. Rozpoznanie osobnika pozwala ustalić, czy jest to kolejne spotkanie tego samego zwierzęcia. Rejestrowanie położenia ujawnia przemieszczanie, a wykrycie materiału genetycznego może dostarczyć informacji także wtedy, gdy zwierzęcia nie udało się zobaczyć. Każda z tych metod wytwarza inny rodzaj danych. Łączenie ich ma sens wtedy, gdy wiadomo, które pytanie rozstrzyga każdy pomiar.
Fotograficzne rozpoznawanie osobników
U części gadów wzór ubarwienia albo układ łusek może umożliwiać odróżnianie osobników. Moro i MacAulay sprawdzili zastosowanie komputerowego porównywania plam u warana wielkiego, Varanus giganteus. W materiale badania zidentyfikowano 38 osobników. Fotografie dostarczała lokalna społeczność, a ich przydatność do rozpoznawania zwierząt została wcześniej oceniona. Praca pokazuje możliwość ograniczenia konieczności fizycznego znakowania dużych jaszczurek. Nie dowodzi, że każde zdjęcie dowolnego warana pozwala na pewną identyfikację. [176]
W innym badaniu, dotyczącym Sceloporus consobrinus, porównano fotograficzne rozpoznawanie układu łusek na głowie z genotypowaniem. Po sprawdzeniu potencjalnych powtórnych stwierdzeń końcowa próba walidacyjna obejmowała 102 przypadki ponownego stwierdzenia. Program poprawnie dopasował 96 z nich, czyli 94,1%. Sześć przypadków odrzucił błędnie. Autorzy wiązali pomyłki ze słabą jakością zdjęć, uszkodzeniem łusek oraz zmianami układu łusek w trakcie wzrostu. Te wyniki dotyczą konkretnego gatunku, materiału fotograficznego i procedury. [177]
Walidacja powinna uwzględniać trwałość cechy, jakość zdjęcia i przypadki o ustalonej tożsamości. Ranking podobieństwa nie rozstrzyga samodzielnie zgodności osobników. [177, 176]
Telemetria i odtwarzanie ruchu
Telemetria umożliwia śledzenie oznakowanych zwierząt przez kolejne rejestracje ich położenia. W badaniu pytonów birmańskich na Florydzie Pittman i współautorzy porównali sześć osobników przemieszczonych przez badaczy z sześcioma osobnikami kontrolnymi. Przemieszczone węże wypuszczono 21–36 km od miejsca odłowu. Pięć z sześciu dotarło do obszaru położonego nie dalej niż 5 km od pierwotnego miejsca schwytania. Sformułowanie „wróciły dokładnie do punktu odłowu” byłoby mocniejsze niż opisany wynik. [178]
Badanie dostarczyło przesłanek dotyczących zdolności nawigacyjnych pytonów. Zarejestrowana droga pozwala badać kierunek i strukturę ruchu, ale sama nie wskazuje jednoznacznie konkretnego receptora ani wszystkich sygnałów wykorzystywanych przez zwierzę. Wniosek o mechanizmie zmysłowym wymaga odrębnych doświadczeń. Taki rozdział pomiaru zachowania i wyjaśnienia jego przyczyny zapobiega przypisywaniu zwierzętom zdolności, których w danym eksperymencie bezpośrednio nie badano. [178]
Sposób zbierania lokalizacji ma znaczenie także dla opisu przestrzeni życiowej. Hart i współautorzy badali pytony przy użyciu nadajników VHF oraz urządzeń GPS; te części projektu obejmowały inne lata i okresy śledzenia. Jest to przykład danych, których nie powinno się traktować jako jednakowo pełnego zapisu ruchu każdego zwierzęcia. Przy porównywaniu powierzchni użytkowanego obszaru należy sprawdzić metodę lokalizacji i długość obserwacji. [179]
Środowiskowe DNA
Środowiskowe DNA, określane skrótem eDNA, to materiał genetyczny pozyskiwany z próbek środowiska. W badaniach gadów można poszukiwać w wodzie sekwencji odpowiadających określonemu gatunkowi. Hunter i współautorzy opracowali testy dla dużych dusicieli i zastosowali je w południowej Florydzie. DNA pytona birmańskiego wykryto w 37 spośród 63 próbek terenowych, pobranych w 21 lokalizacjach. Liczba dodatnich próbek nie jest liczbą węży. [180]
Autorzy rozdzielili w modelach lokalizację, próbkę i reakcję laboratoryjną. Interpretacja wyników uwzględnia zatem zarówno rozmieszczenie DNA, jak i niedoskonałość wykrywania. [180]
Furlan i współautorzy pokazali na materiale z australijskich wodopojów, że błędy analiz eDNA mogą pochodzić zarówno z zanieczyszczenia obcym DNA, jak i z nieprawidłowego przyporządkowania odczytanej sekwencji. Badanie obejmowało różne kręgowce, więc nie jest oceną skuteczności metody wyłącznie dla gadów. Jego znaczenie metodologiczne polega na pokazaniu, dlaczego wstępnej listy wykrytych nazw nie wolno bez kontroli uznać za listę gatunków zamieszkujących stanowisko. [181]
Tabela 37. Metody badawcze i rodzaje uzyskiwanej informacji
Metoda | Co rejestruje | Co wymaga osobnego ustalenia |
|---|---|---|
Identyfikacja fotograficzna | Podobieństwo i dopasowanie cech osobnika | Trwałość cech i częstość błędnych dopasowań |
Telemetria | Kolejne położenia oznakowanego zwierzęcia | Reprezentatywność próby i mechanizm orientacji |
Test eDNA | Sygnał określonej sekwencji w próbce | Źródło sygnału, błędy wykrycia i liczba zwierząt |
Genotypowanie w walidacji | Zgodność markerów między próbkami | Błędy laboratoryjne oraz zgodność identyfikatorów próbek |
Źródła przykładów: [177, 178, 180, 181]. Tabela opisuje rodzaje informacji; nie porównuje procentowej skuteczności nieporównywalnych metod.

Łączenie metod bez podwójnego liczenia
Ten sam osobnik może zostać sfotografowany, zlokalizowany nadajnikiem i pośrednio zarejestrowany przez analizę DNA. Są to różne zapisy dotyczące badanych zwierząt, a nie automatycznie kolejne osobniki. Dlatego w dokumentacji badania potrzebne są identyfikatory, daty, miejsca i jasne powiązanie próbki z obserwacją. Dopiero potem można oceniać, czy źródła danych potwierdzają się wzajemnie i czy odpowiadają na to samo pytanie.
Rozdział 30Jak czytać dane o gadach
Gatunki oraz osobniki i stanowiska
Słowo „liczba” wymaga w biologii określenia jednostki. Liczba gatunków opisuje różnorodność taksonomiczną, liczba osobników — wielkość populacji, a liczba zajętych stanowisk — rozmieszczenie. Każda z tych wielkości może zmieniać się w innym kierunku. Rozdzielenie jednego szeroko ujmowanego gatunku na dwa zwiększa liczbę nazw w katalogu, nawet jeżeli liczba żyjących zwierząt pozostaje taka sama. Podobnie nowy wpis w atlasie może dokumentować znane wcześniej stanowisko albo ponowne spotkanie tego samego osobnika. [3, 1, 38]
Tabela 38. Jednostki danych stosowane w badaniach gadów
Wielkość | Co opisuje | Czego sama nie rozstrzyga |
|---|---|---|
Liczba gatunków | Zakres różnorodności w przyjętej klasyfikacji | Wielkości populacji i ich trendów |
Liczba obserwacji | Zarejestrowane spotkania lub zgłoszenia | Liczby różnych osobników |
Liczba zajętych stanowisk | Miejsca, w których gatunek wykryto lub oszacowano jego obecność | Zagęszczenia zwierząt w każdym miejscu |
Liczebność populacji | Liczbę osobników na określonym obszarze i w określonym czasie | Liczby gatunków oraz jakości siedliska |
Kategoria ryzyka wymarcia | Wynik oceny według ustalonych kryteriów | Jednolitej sytuacji wszystkich lokalnych populacji |
Źródła pojęć: Reptile Database, IUCN oraz badania monitoringu gadów. [1, 144, 182, 183]
Przykładowo zapis „w tym roku stwierdzono 30 gadów, a poprzednio 15” nie wystarcza do wykazania podwojenia liczebności. Trzeba sprawdzić długość trasy, czas poszukiwań, liczbę wizyt, sezon i sposób rozpoznawania osobników. Jeżeli druga kampania obejmowała dwa razy większy teren, wynik może odzwierciedlać zmianę wysiłku badawczego. Jest to problem porównywalności pomiaru, a nie powód, by odrzucać obserwacje. Dane stają się bardziej użyteczne, gdy opisuje się równocześnie zwierzęta i sposób ich poszukiwania. [183]
Wykrywalność zwierząt
Wykrywalność to prawdopodobieństwo zaobserwowania gatunku podczas kontroli, pod warunkiem że występuje on na badanym stanowisku. W pracy Warda i współautorów z 2017 roku dotyczącej Natrix helvetica na Jersey analizowano 19 kombinacji stanowisko–rok, pochodzących z 14 lokalizacji. Węże wykryto w 11 takich jednostkach stanowisko–rok. Średnie modelowane oszacowanie wykrywalności podczas pojedynczej kontroli wyniosło 0,33, z błędem standardowym 0,06. Wartość dotyczy konkretnego gatunku, obszaru i metody; nie jest uniwersalna ani nie opisuje przeżywalności. [182]
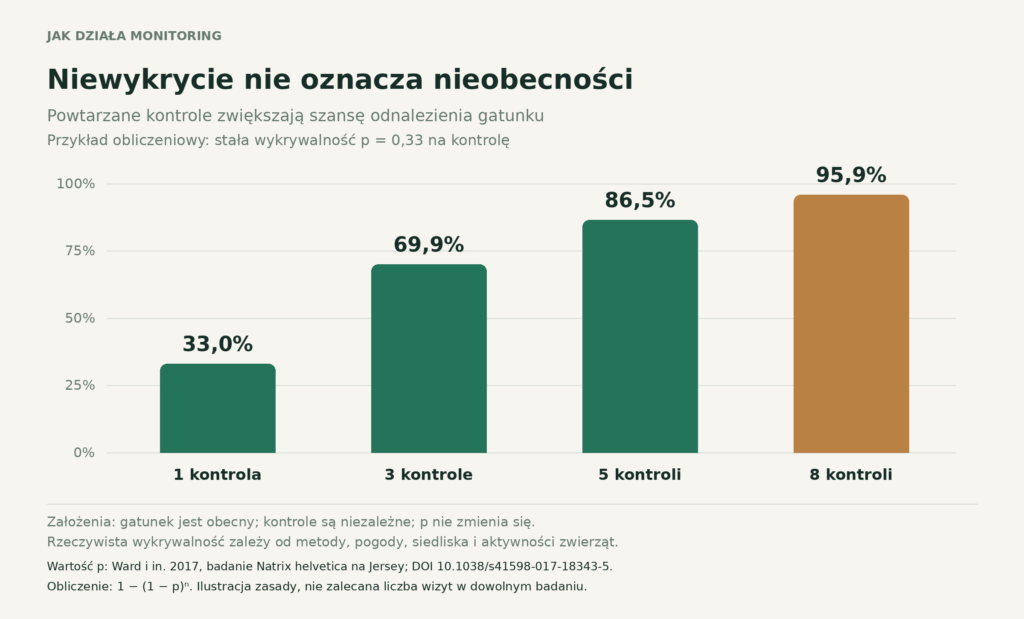
W uproszczonym przykładzie z ryciny trzy niezależne kontrole dają około 70% szansy choć jednego wykrycia, a osiem około 96%. Wynik oblicza się jako dopełnienie prawdopodobieństwa, że każda kontrola zakończy się niewykryciem. W rzeczywistym terenie warunki i aktywność zwierząt zmieniają się, więc prosta formuła wymaga ostrożności. Powtórzenia prowadzone wyłącznie w identycznie niekorzystnych warunkach mogą dać mniej informacji, niż sugeruje ten model. Są to założenia przykładu, a nie dodatkowe wyniki cytowanego badania.
Wykazanie obecności gatunku i wykazanie trendu jego rozmieszczenia to różne zadania. Sewell i współautorzy analizowali gady na stanowiskach w południowo-wschodniej Anglii, na podstawie powtarzanych kontroli z lat 2009–2010. Ich obliczenia wskazały, że wykrywanie umiarkowanych spadków wymaga znacznie większej sieci stanowisk niż samo potwierdzenie obecności na jednym z nich. Z tego względu przypadkowe spotkania są wartościowe dla atlasu, lecz nie zastępują zaplanowanego monitoringu. [183]
Rozdział 31Rekordy i granice uogólnień
Rozmiary trzeba porównywać tą samą miarą
Krokodyl różańcowy, Crocodylus porosus, jest uznawany za najcięższego współczesnego gada. Na drugim krańcu skali znajduje się opisany w 2021 roku kameleon Brookesia nana. Samiec wykorzystany do opisu gatunku mierzył 13,5 mm od końca pyska do kloaki oraz 21,6 mm łącznie z ogonem. Dane te dotyczą konkretnego okazu; nie są średnią dla całej populacji. [184, 46]
Przy porównywaniu rekordów trzeba rozróżnić długość całkowitą, długość ciała bez ogona, masę i rozmiar pancerza. Samo zdanie „największy gad” wymaga doprecyzowania, czy chodzi o masę, długość czy maksymalny potwierdzony okaz. Podobnie wiek zwierzęcia w niewoli nie musi odzwierciedlać typowej długości życia w przyrodzie.
Najczęstsze nieporozumienia
Tabela 39. Mity i wyjaśnienia
Popularne twierdzenie | Wyjaśnienie |
|---|---|
Każdy beznogi gad to wąż | Beznogie są również padalce i większość amfisben |
Wszystkie gady składają jaja | Liczne łuskonośne rodzą żywe młode |
Gady zawsze mają zimne ciało | Temperatura zależy od bilansu cieplnego i zachowania |
Wąż wywichuje szczękę podczas jedzenia | Duże otwarcie pyska wynika z ruchomej budowy czaszki i elastycznych połączeń |
Żółw może opuścić skorupę | Pancerz jest częścią jego szkieletu |
Wszystkie gady ignorują potomstwo | U części występuje ochrona jaj lub młodych |
Hatteria jest odmianą jaszczurki | To przedstawiciel odrębnego rzędu Rhynchocephalia |
Więcej opisanych gatunków oznacza więcej zwierząt | Rozwój klasyfikacji i trendy populacji opisują różne zjawiska |
Źródła objaśnień: [3, 7, 29, 33, 36, 79, 84, 25].
Czy da się rozpoznać gatunek po jednym zdjęciu
Czasami tak, ale nie zawsze. Wiele gatunków zmienia ubarwienie z wiekiem, wykazuje dymorfizm płciowy albo ma formy melanistyczne. Młody osobnik może wyglądać inaczej niż dorosły. Przy oznaczaniu przydają się lokalizacja, termin obserwacji, wielkość oraz zdjęcia różnych części ciała wykonane bez chwytania zwierzęcia.
Poziom pewności warto zapisać wprost. Oznaczenie do rodzaju lub grupy gatunków bywa bardziej rzetelne niż stanowcze przypisanie nazwy na podstawie niewyraźnego ujęcia. Jest to szczególnie ważne tam, gdzie niedawno wydzielono podobne gatunki albo ich zasięgi się stykają. Mapy z atlasów pomagają oceniać prawdopodobieństwo spotkania, ale nie zastępują diagnozy cech. [38, 134]
Czy każdy gad nadaje się do hodowli domowej
Wiedza o ogólnej grupie nie wystarcza do oceny wymagań konkretnego gatunku. Rozmiary, długość życia, dieta, termoregulacja i sposób rozrodu mogą się skrajnie różnić. Informacja, że zwierzę jest „jaszczurką” albo „żółwiem wodnym”, nie jest kompletnym opisem jego potrzeb. Dla zainteresowanych terrarystyką punktem wyjścia powinno być poprawne oznaczenie gatunku, sprawdzenie pochodzenia oraz osobne opracowanie jego biologii i warunków utrzymania.
Nie należy wypuszczać zwierząt utrzymywanych przez człowieka do środowiska. Obce gady mogą wpływać na rodzime gatunki, a uwolniony osobnik może również nie przeżyć lokalnych warunków. W polskim kontekście problem dobrze ilustruje żółw ozdobny opisany w rozdziale krajowym. [138]
W skrócieNajczęstsze pytania
Jakie są rodzaje gadów?
Współczesne gady nieptasie dzieli się zwykle na sześć grup: jaszczurki, węże, amfisbeny, żółwie, krokodyle i hatterię. Pierwsze trzy należą do łuskonośnych, które w zestawieniu Reptile Database z października 2026 roku obejmują 96,9% gatunków. Grupy nie mają jednakowej rangi systematycznej; wyjaśnia to rozdział 2.
Ile jest gatunków gadów na świecie?
Reptile Database ujmuje w zestawieniu z października 2026 roku 12 687 gatunków: 7 838 jaszczurek, 4 252 węże, 365 żółwi, 204 amfisbeny, 27 krokodyli i jeden gatunek hatterii. To stan konkretnej wersji katalogu, a liczba zmienia się wraz z opisami nowych gatunków i rewizjami systematyki [3].
Czy ptaki są gadami?
W klasyfikacji filogenetycznej tak. Ptaki należą do gadziej linii ewolucyjnej i są współczesnymi dinozaurami, a krokodyl jest bliżej spokrewniony z ptakiem niż z jaszczurką. W potocznym znaczeniu ptaki pomija się, dlatego tradycyjnie rozumiane gady są grupą parafiletyczną. Kompendium nie wlicza ptaków do statystyk (rozdział 2).
Ile gatunków gadów żyje w Polsce?
Kompendium opisuje dziewięć dobrze potwierdzonych gatunków rodzimych: żółwia błotnego, jaszczurkę zwinkę, jaszczurkę żyworodną, padalca zwyczajnego, padalca kolchidzkiego, zaskrońca zwyczajnego, gniewosza plamistego, węża Eskulapa i żmiję zygzakowatą. Jadowita jest spośród nich żmija zygzakowata. Szczegóły zawiera rozdział 22.
Czy gady są zagrożone wymarciem?
Globalna ocena opublikowana w „Nature” w 2022 roku objęła 10 196 gatunków. Za zagrożone uznano 1 829, a najlepszy szacunek udziału zagrożonych wyniósł 21,1%. Najwyższy był wśród żółwi (57,9%) i krokodyli (50%). Oceny gatunkowe pochodziły z lat 1996–2020 [4].
Czym gady różnią się od płazów?
Najważniejsze różnice dotyczą rozwoju zarodka, skóry i oddychania. Gady są owodniowcami, mają zrogowaciałe struktury naskórka ograniczające utratę wody, zapłodnienie wewnętrzne i oddychają płucami. Skóra płazów jest zwykle cienka i przepuszczalna, a u wielu gatunków rozwój obejmuje wolno żyjącą larwę wodną (rozdział 13).
Dalej w atlasieGatunki i tematy z tego opracowania
Hasła gatunków omawianych w kompendium, z wymiarami, występowaniem i mapą.
Jaszczurka piaskowa
Lacerta agilis
Jaszczurka zwinka
Lacerta agilis
Zaskroniec zwyczajny
Natrix natrix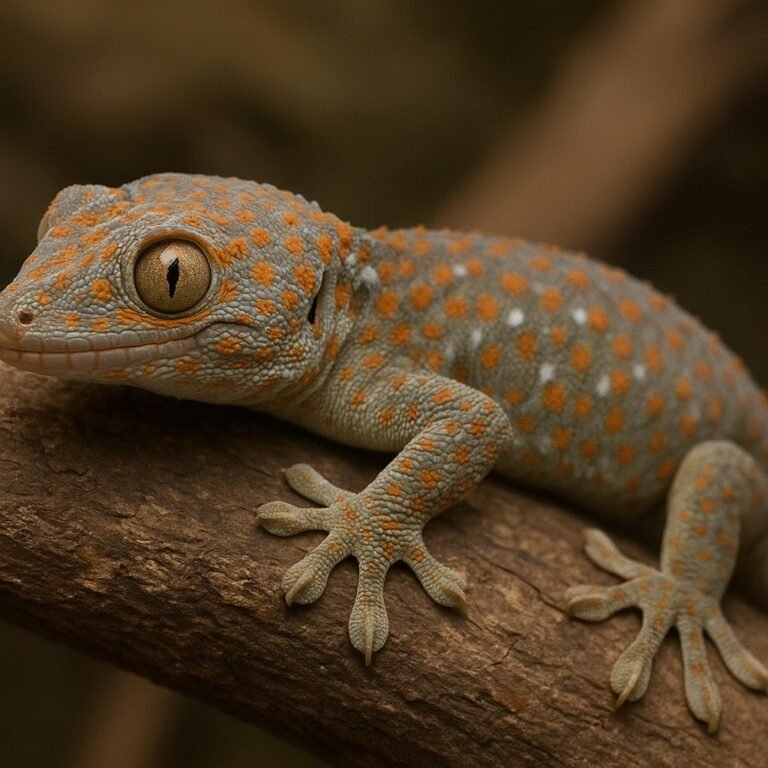
Gekon tokay
Gekko gecko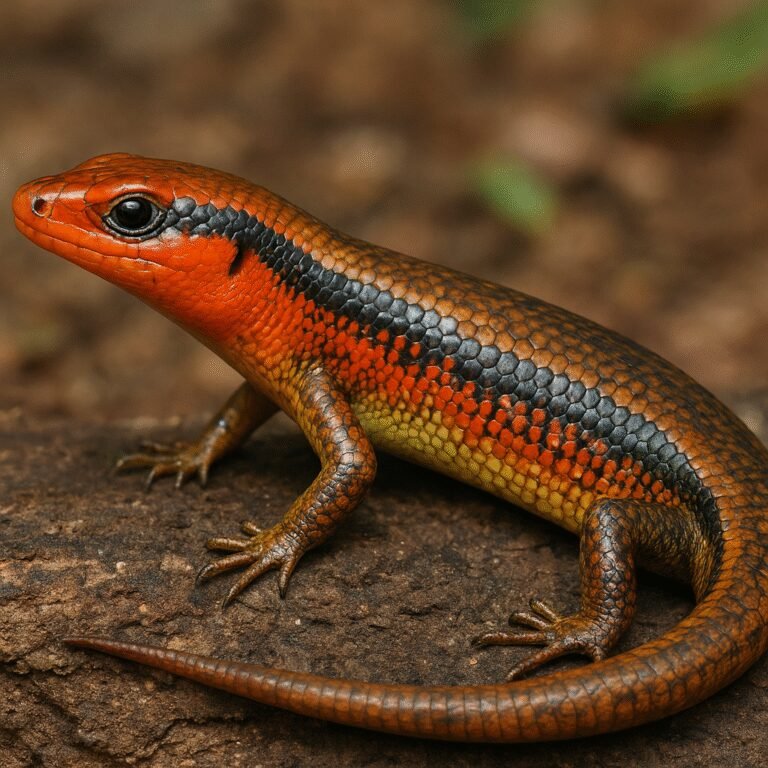
Scynk ognisty
Lepidothyris fernandi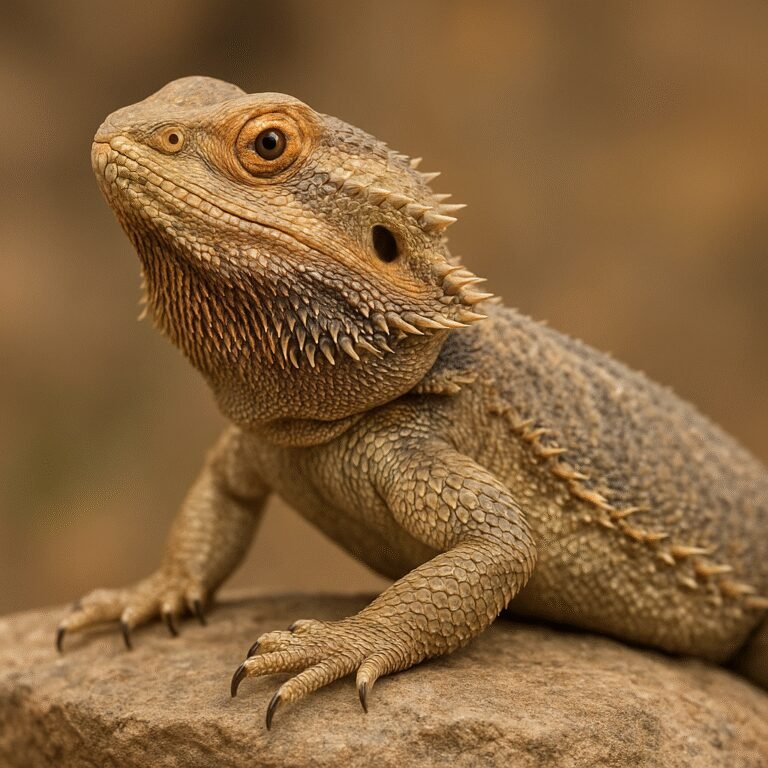
Agama brodata
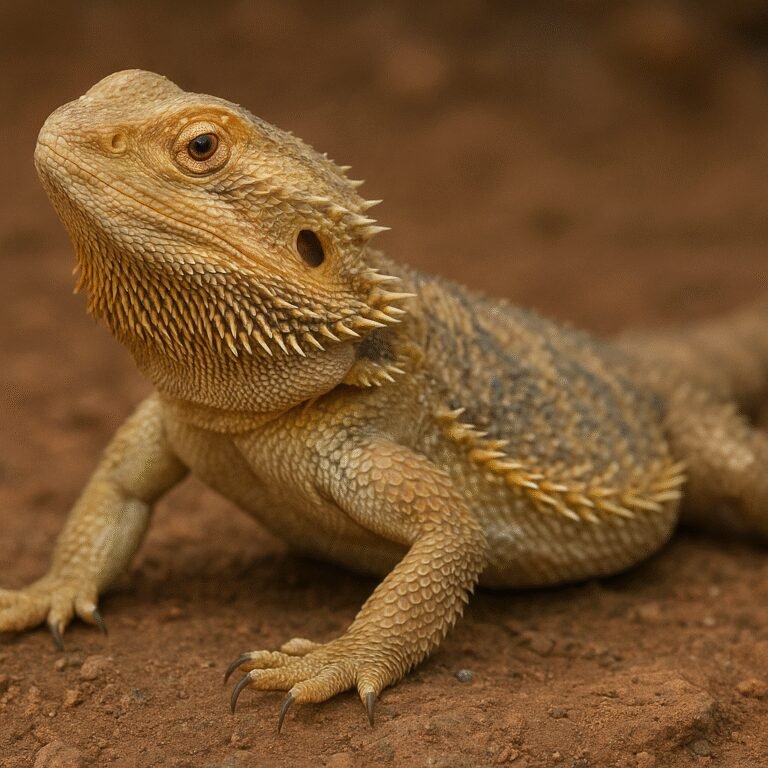
Agama brodata centralna
Pogona vitticeps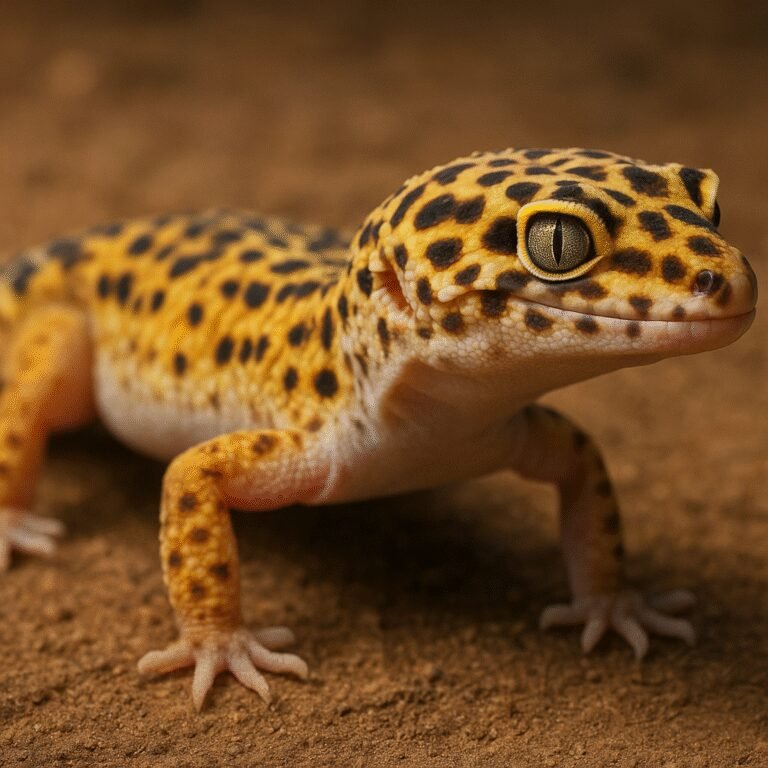
Kameleon lamparci
Furcifer pardalisRodziny w atlasie
Przeglądaj dalej
- Wszystkie hasła: gady
- Gady występujące w Polsce
- Quiz: gady
- Oś czasu: dinozaury i zwierzęta wymarłe
- Porównaj dwa gatunki
Inne kompendia
Rozdział 32Słownik najważniejszych pojęć
Takson — jednostka klasyfikacji biologicznej, na przykład gatunek, rodzaj lub rodzina.
Gatunek — jednostka różnorodności biologicznej wyodrębniana na podstawie określonej koncepcji i dowodów; granice części gatunków są przedmiotem badań.
Klad — wspólny przodek i wszyscy jego potomkowie.
Parafiletyczność — ujęcie obejmujące wspólnego przodka, ale pomijające część jego potomków.
Łuskonośne — Squamata, rząd obejmujący jaszczurki, węże i amfisbeny.
Ektotermia — opieranie bilansu cieplnego w dużej mierze na zewnętrznych źródłach ciepła.
Termoregulacja behawioralna — regulowanie temperatury przez zachowanie, na przykład wybór nasłonecznienia, kryjówki i pory aktywności.
Owodniowce — kręgowce, których zarodki rozwijają błony płodowe, w tym owodnię; należą do nich gady, ptaki i ssaki.
Autotomia — odrzucenie części ciała, u licznych jaszczurek fragmentu ogona, związane z mechanizmami obronnymi.
Endemit — gatunek naturalnie ograniczony do określonego obszaru.
Gatunek kryptogeniczny — gatunek, którego rodzime lub obce pochodzenie na danym obszarze nie zostało jednoznacznie rozstrzygnięte.
VU, EN, CR — odpowiednio narażony, zagrożony i krytycznie zagrożony; kategorie IUCN obejmowane zbiorczym określeniem „gatunki zagrożone”.
DD — niedostateczne dane do oceny ryzyka wymarcia; ta kategoria nie oznacza bezpieczeństwa gatunku.
LC — najmniejsza troska w ocenie IUCN; nie jest równoznaczna z brakiem lokalnych zagrożeń.
Grupa koronna — ostatni wspólny przodek żyjących przedstawicieli rozpatrywanej grupy oraz wszyscy jego potomkowie, także wymarli.
Grupa pniowa — wymarłe linie spoza korony, bliżej spokrewnione z nią niż z jakąkolwiek inną żyjącą grupą.
Konwergencja — niezależne powstawanie podobnych cech w różnych liniach ewolucyjnych.
Mikrosiedlisko — niewielki fragment środowiska o warunkach bezpośrednio dostępnych organizmowi, na przykład szczelina lub osłonięty fragment brzegu.
Wykrywalność — prawdopodobieństwo zarejestrowania gatunku podczas kontroli pod warunkiem jego obecności.
Zajętość stanowisk — obecność gatunku w określonej części badanych miejsc; w modelach można ją szacować z uwzględnieniem niewykrytych obecności.
Chemorecepcja — odbiór informacji niesionej przez substancje chemiczne.
Mechanorecepcja — odbiór bodźców mechanicznych, takich jak ucisk, dotyk lub drgania.
Partenogeneza — rozwój potomstwa z komórki jajowej bez zapłodnienia plemnikiem.
Lecytotrofia — zaopatrywanie zarodka w składniki odżywcze przede wszystkim z zapasu żółtka.
Matrotrofia — dostarczanie zarodkowi substancji odżywczych przez organizm matki w trakcie rozwoju.
Definicje opracowano w kontekście artykułu; system kategorii i ich zakres: IUCN. [1, 144, 79, 84, 38]
Słownik porządkuje pojęcia użyte w rozdziałach biologicznych, ewolucyjnych i metodologicznych. Szczegółowe źródła i granice definicji podano przy ich pierwszym omówieniu. [17, 18, 129, 182, 117, 119]
Rozdział 33Metryka najważniejszych danych liczbowych
Poniższe zestawienie pozwala szybko odszukać zakres najczęściej przywoływanych liczb. Każdy wiersz odnosi się do wskazanego źródła i okresu. Zaokrąglenia służą czytelności; dokładniejsze wartości obliczeń są dostępne w dołączonych plikach danych.
Tabela 40. Kluczowe wartości i ich właściwy zakres
Informacja | Wartość i jednostka | Zakres oraz źródło |
|---|---|---|
Liczba gatunków w katalogu | 12 687 | Gady nieptasie w Reptile Database, październik 2026; katalog uwzględnia także część gatunków niedawno wymarłych [3, 1] |
Jaszczurki w układzie bazy | 8 042, w tym 204 amfisbeny | Amfisben nie dolicza się ponownie do liczby jaszczurek w tej kategorii [3] |
Łuskonośne w rozłącznym zestawieniu | 12 294 | Obliczenie: 8 042 jaszczurki w ujęciu bazy + 4 252 węże [3] |
Zmiana liczby skatalogowanych gatunków | +3 953, czyli około +45,3% | Od 8 734 w lutym 2008 do 12 687 w październiku 2026; zmiana katalogu, nie liczby osobników [3] |
Globalny szacunek udziału zagrożonych gadów | 21,1% | Opublikowany wynik analizy Coxa i współautorów z 2022 roku; zachowano definicję mianownika z tej pracy [4] |
Gatunki z niedostatecznymi danymi w tej analizie | 1 507 | Kategoria DD w próbie ocenionej w pracy z 2022 roku; DD nie oznacza bezpieczeństwa gatunku [4] |
Zła ogólna ocena stanowisk gniewosza | 22 z 28, czyli 78,6% | Region kontynentalny, monitoring GIOŚ 2024; udział badanych stanowisk [167] |
Jednostki analizy w badaniu zaskrońca na Jersey | 19 jednostek stanowisko–rok | Wynik zestawienia danych z 14 lokalizacji, z których 5 badano w obu latach; wykrycia w 11 jednostkach [182] |
Ilustracja powtarzanych kontroli | Przy p = 0,33: około 69,9% po 3 kontrolach | Obliczenie 1 − (1 − p) do potęgi n; zakłada obecność gatunku, niezależność i stałe p [182] |
Walidacja identyfikacji fotograficznej | 96 z 102, czyli 94,1% | Poprawne dopasowania ponownych stwierdzeń Sceloporus consobrinus w konkretnym badaniu [177] |
Wykrycie DNA pytona w próbkach terenowych | 37 z 63 próbek | Badanie eDNA w południowej Florydzie; 21 lokalizacji, nie 37 policzonych węży [180] |
Źródła i definicje podano w każdym wierszu. Wartości modelowe, wyniki prób terenowych i stany katalogu mają odrębne zastosowania.
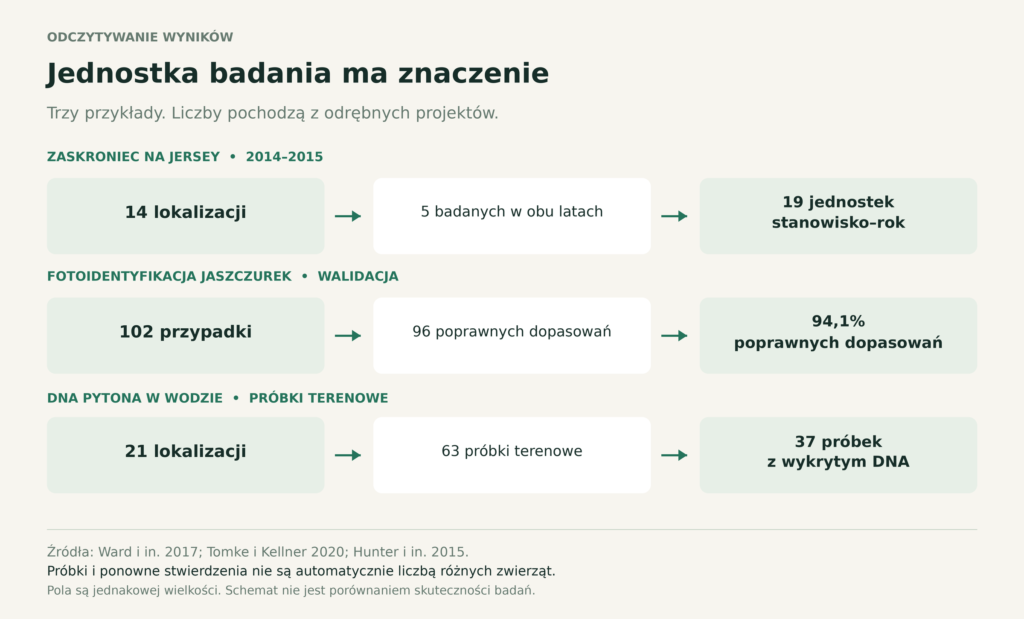
W praktyce aktualizacja kompendium wymaga sprawdzenia zarówno nowej wartości, jak i jej definicji. Nowa liczba gatunków może wynikać ze zmienionej klasyfikacji. Nowy procent zagrożenia może dotyczyć innej próby ocenionych gatunków. Nowy wynik monitoringu może obejmować inny zestaw stanowisk. Zachowanie dat i zakresów umożliwia porównanie wersji bez przypisywania zmianom znaczenia, którego same dane nie uzasadniają.
Rozdział 34Indeks nazw gatunkowych
Indeks obejmuje dwuczłonowe nazwy gatunkowe wyróżnione kursywą w tekście głównym. Liczby wskazują rozdziały, w których dana nazwa występuje. Lista służy wyszukiwaniu omówień; obejmuje także nazwy przywołane w kontekście historycznym lub porównawczym i nie jest odrębnym katalogiem aktualnie uznawanych gatunków.
Tabela 41. Indeks nazw gatunkowych i miejsc ich omówienia
Nazwa gatunkowa | Rozdziały |
|---|---|
Alligator mississippiensis | 10, 12 |
Amblyrhynchus cristatus | 12 |
Anguis colchica | 22 |
Anguis fragilis | 6, 22 |
Anolis aquaticus | 12 |
Anolis carolinensis | 14, 25 |
Apalone spinifera | 16 |
Bipes biporus | 12 |
Boa constrictor | 7, 13 |
Brookesia nana | 31 |
Caiman crocodilus | 10 |
Caretta caretta | 17, 19, 25 |
Chamaeleo calyptratus | 12 |
Chelodina longicollis | 12 |
Chelodina rugosa | 12 |
Chelonia mydas | 9, 17, 24, 25 |
Chrysemys picta | 16, 17 |
Chrysopelea paradisi | 12 |
Conolophus pallidus | 15 |
Coronella austriaca | 22 |
Crocodylus johnstoni | 12 |
Crocodylus niloticus | 10 |
Crocodylus porosus | 10, 31 |
Crotalus atrox | 18 |
Crotalus cerastes | 12 |
Dermochelys coriacea | 12, 25 |
Draco sumatranus | 12 |
Emys orbicularis | 9, 22 |
Eublepharis macularius | 12 |
Furcifer pardalis | 6 |
Fusarium falciforme | 26 |
Fusarium keratoplasticum | 26 |
Gavialis gangeticus | 10 |
Gekko gecko | 6 |
Gopherus agassizii | 16 |
Gopherus polyphemus | 12 |
Heloderma suspectum | 16 |
Hydrophis platurus | 12, 13 |
Iguana iguana | 6 |
Lacerta agilis | 2, 6, 22 |
Lacerta viridis | 22 |
Mochlus fernandi | 6 |
Mycoplasma agassizii | 26 |
Naja naja | 7 |
Natrix helvetica | 4, 30 |
Natrix natrix | 7, 22 |
Natrix tessellata | 22 |
Ophidiomyces ophidiicola | 26 |
Pantherophis guttatus | 26 |
Pelodiscus sinensis | 12 |
Pholidoscelis atratus | 28 |
Phrynocephalus arabicus | 12 |
Phrynosoma cornutum | 12 |
Podarcis muralis | 22 |
Podarcis sicula | 17 |
Pogona vitticeps | 6, 17, 18 |
Python regius | 7, 15 |
Saiphos equalis | 18 |
Salvator merianae | 17 |
Sceloporus consobrinus | 29, 33 |
Sphenodon punctatus | 11, 12 |
Tametara mirim | 5 |
Testudo hermanni | 9 |
Tomistoma schlegelii | 10 |
Trachemys scripta | 22 |
Varanus exanthematicus | 13 |
Varanus giganteus | 29 |
Varanus komodoensis | 6, 12 |
Vipera berus | 7, 22 |
Zamenis longissimus | 7, 22 |
Zootoca vivipara | 22, 25 |
Zestawienie redakcyjne utworzone z nazw użytych w kompendium. Nie obejmuje bibliografii, nazw rodzajowych bez epitetu gatunkowego ani skróconych zapisów nazwy rodzajowej.
Rozdział 35Bibliografia i źródła danych
Data sprawdzenia źródeł internetowych: 11 listopada 2026 roku. Daty publikacji i wersji danych wskazano osobno.
[1] The Reptile Database. General Information and FAQ. Zakres katalogu i zasady klasyfikacji. Otwórz źródło
[2] The Reptile Database. Higher Taxa in Extant Reptiles. Aktualna lista taksonów wyższych. Otwórz źródło
[3] Uetz P. i in. (red.). The Reptile Database — Species Statistics. Zestawienie: październik 2026. Otwórz źródło
[4] Cox N. i in. (2022). A global reptile assessment highlights shared conservation needs of tetrapods. Nature 605:285–290. Otwórz źródło
[5] International Code of Zoological Nomenclature. Glossary. Gatunek, podgatunek, nazwa dwuczłonowa i trójczłonowa, kombinacja, holotyp, syntypy i synonimy. Otwórz źródło
[6] Chiari Y., Cahais V., Galtier N., Delsuc F. (2012). Phylogenomic analyses support the position of turtles as the sister group of birds and crocodiles (Archosauria). BMC Biology 10:65. Otwórz źródło
[7] Gemmell N.J. i in. (2020). The tuatara genome reveals ancient features of amniote evolution. Nature 584:403–409. Otwórz źródło
[8] Jenkins X.A. i in. (2026). The phylogenetic origin of turtles. Current Biology 36:2907–2917.e2. Otwórz źródło
[9] Kindler C., Chèvre M., Ursenbacher S., Böhme W., Hille A., Jablonski D., Vamberger M., Fritz U. (2017). Hybridization patterns in two contact zones of grass snakes reveal a new Central European snake species. Scientific Reports 7:7378. Otwórz źródło
[10] Hay J.M., Sarre S.D., Lambert D.M., Allendorf F.W., Daugherty C.H. (2010; online 2009). Genetic diversity and taxonomy: a reassessment of species designation in tuatara (Sphenodon: Reptilia). Conservation Genetics 11(3):1063–1081. Otwórz źródło
[11] International Commission on Zoological Nomenclature. Frequently Asked Questions. Rozróżnienie taksonomii i nomenklatury; funkcja okazów typowych. Otwórz źródło
[12] Uetz P., Koo M.S. i in. (2021). A Quarter Century of Reptile and Amphibian Databases. Herpetological Review 52(2):246–255. Otwórz źródło
[13] de Queiroz K. (2007). Species concepts and species delimitation. Systematic Biology 56(6):879–886. Otwórz źródło
[14] Sukumaran J., Knowles L.L. (2017). Multispecies coalescent delimits structure, not species. PNAS 114(7):1607–1612. Otwórz źródło
[15] International Code of Zoological Nomenclature. Article 13: Names published after 1930. Wymagania dostępności nomenklatorycznej nazw. Otwórz źródło
[16] International Code of Zoological Nomenclature. Article 16: Names published after 1999. Ustalenie typów dla nowych nazw gatunkowych i podgatunkowych. Otwórz źródło
[17] Budd G.E., Mann R.P. (2020). The dynamics of stem and crown groups. Science Advances 6(8):eaaz1626. Otwórz źródło
[18] Royal Ontario Museum. Stem Group and Crown Group Concepts. The Burgess Shale. Objaśnienie grup koronnych i pniowych. Otwórz źródło
[19] Marshall C.R. (2019). Using the Fossil Record to Evaluate Timetree Timescales. Frontiers in Genetics 10:1049. Otwórz źródło
[20] Rae S., Hendry L. Natural History Museum, London. What are dinosaurs? Rozróżnienia między dinozaurami, pterozaurami, gadami morskimi i synapsydami. Otwórz źródło
[21] Sachs S., Lindgren J., Kear B.P. (2018; publikacja online 2019). A global perspective on Mesozoic marine amniotes. Alcheringa 42(4):457–460. Otwórz źródło
[22] Simões T.R. i in. (2026). Exceptional brain and ecological diversity in the earliest snakes. Nature 657:170–178. Otwórz źródło
[23] Autumn K. i in. (2002). Evidence for van der Waals adhesion in gecko setae. PNAS 99:12252–12256. Otwórz źródło
[24] Teyssier J., Saenko S.V., van der Marel D., Milinkovitch M.C. (2015). Photonic crystals cause active colour change in chameleons. Nature Communications 6:6368. Otwórz źródło
[25] Meiri S. (2024). SquamBase — A database of squamate (Reptilia: Squamata) traits. Global Ecology and Biogeography 33:e13812. Otwórz źródło
[26] Jagnandan K., Russell A.P., Higham T.E. (2014). Tail autotomy and subsequent regeneration alter the mechanics of locomotion in lizards. Journal of Experimental Biology 217:3891–3897. Otwórz źródło
[27] Lozito T.P., Tuan R.S. (2016). Lizard tail skeletal regeneration combines aspects of fracture healing and blastema-based regeneration. Development 143:2946–2957. Otwórz źródło
[28] Wiens J.J., Brandley M.C., Reeder T.W. (2006). Why does a trait evolve multiple times within a clade? Repeated evolution of snakelike body form in squamate reptiles. Evolution 60(1):123–141. Otwórz źródło
[29] Natural History Museum, London. Snakes: Super senses, stretchy jaws and deadly venom. Otwórz źródło
[30] The Reptile Database. Natrix natrix. Aktualne nazewnictwo i umiejscowienie w Colubridae (Natricinae). Otwórz źródło
[31] Zdenek C.N., Staples T., Hay C., Bourke L.A., Candusso D. (2023; korekta danych autora w 2025). Sound garden: How snakes respond to airborne and groundborne sounds. PLOS ONE 18:e0281285. Otwórz źródło
[32] Title P.O. i in. (2024). The macroevolutionary singularity of snakes. Science 383(6685):918–923. Otwórz źródło
[33] Clark G.E. i in. (2024). The specialized inner ear labyrinth of worm-lizards (Amphisbaenia: Squamata). PLOS ONE 19:e0312086. Otwórz źródło
[34] Barends J.M., Pietersen D.W., Zambatis G., Tye D.R.C., Maritz B. (2020). Sampling bias in reptile occurrence data for the Kruger National Park. Koedoe 62(1):a1579. Otwórz źródło
[35] Kazi S., Hipsley C.A. (2018). Conserved evolution of skull shape in Caribbean head-first burrowing worm lizards (Squamata: Amphisbaenia). Biological Journal of the Linnean Society 125(1):14–29. Otwórz źródło
[36] American Museum of Natural History. Collections Core — Turtle Shells. Budowa pancerza żółwi. Otwórz źródło
[37] NOAA Fisheries. Sea Turtles. Biologia, migracje i zagrożenia żółwi morskich. Otwórz źródło
[38] Instytut Ochrony Przyrody PAN. Atlas Płazów i Gadów w Polsce. Wykaz i karty gatunków. Otwórz źródło
[39] Anquetin J., Tong H., Claude J. (2017). A Jurassic stem pleurodire sheds light on the functional origin of neck retraction in turtles. Scientific Reports 7:42376. Otwórz źródło
[40] NOAA. Sea turtles. Zestawienie siedmiu współczesnych gatunków i podstaw biologii. Otwórz źródło
[41] Chen C. i in. (2025). Global assessment of current extinction risks and future challenges for turtles and tortoises. Nature Communications 16:7114. Otwórz źródło
[42] Turtle Taxonomy Working Group (2025). Turtles of the World: Annotated Checklist and Atlas of Taxonomy, Synonymy, Distribution, and Conservation Status, 10th edition. Chelonian Research Monographs 10:1–575. Otwórz źródło
[43] Smithsonian’s National Zoo and Conservation Biology Institute. Gharial — Gavialis gangeticus. Otwórz źródło
[44] Smithsonian’s National Zoo and Conservation Biology Institute. Tomistoma — Tomistoma schlegelii. Otwórz źródło
[45] Australian Museum. Estuarine Crocodile — Crocodylus porosus. Wielkość, występowanie i biologia. Otwórz źródło
[46] San Diego Zoo Wildlife Alliance. Reptiles. Porównanie wielkości współczesnych gadów. Otwórz źródło
[47] U.S. Geological Survey (około 2017). Alligator Hatchlings. Zachowania opiekuńcze aligatorów. Otwórz źródło
[48] Stubbs T.L., Pierce S.E., Elsler A., Anderson P.S.L., Rayfield E.J., Benton M.J. (2021). Ecological opportunity and the rise and fall of crocodylomorph evolutionary innovation. Proceedings of the Royal Society B 288:20210069. Otwórz źródło
[49] Department of Conservation, New Zealand. Tuatara. Biologia i ochrona hatterii. Otwórz źródło
[50] Belfast Zoo. Leopard gecko — Eublepharis macularius. Budowa palców, powieki i tryb życia. Otwórz źródło
[51] Galapagos Conservation Trust. Marine iguana — Amblyrhynchus cristatus. Żerowanie, wygrzewanie i usuwanie soli. Otwórz źródło
[52] National Parks Board Singapore. Draco sumatranus. Flora & Fauna Web, karta gatunku zaktualizowana 29.01.2024. Otwórz źródło
[53] Beatson C. Australian Museum. Yellow-bellied Sea Snake. Biologia gatunku opisanego także pod starszą nazwą Pelamis platurus. Otwórz źródło
[54] The Reptile Database. Hydrophis platurus. Aktualna nazwa i synonimy. Otwórz źródło
[55] Marvi H. i in. (2014). Sidewinding with minimal slip: snake and robot ascent of sandy slopes. Science 346:224–229. Otwórz źródło
[56] Animal Diversity Web, University of Michigan Museum of Zoology. Bipes biporus. Budowa, siedlisko i ruch pod ziemią. Otwórz źródło
[57] NOAA Fisheries. Leatherback Turtle — Dermochelys coriacea. Biologia i odżywianie. Otwórz źródło
[58] Florida Fish and Wildlife Conservation Commission. Leatherback sea turtle. Budowa pancerza i pokarm. Otwórz źródło
[59] U.S. Fish and Wildlife Service. Gopher Tortoise: Overview, Habitat and Range. Odczyt 11.11.2026. Otwórz źródło
[60] Florida Fish and Wildlife Conservation Commission. Gopher Tortoise Commensals. Gatunki korzystające z nor żółwia norowego. Otwórz źródło
[61] U.S. Geological Survey (2004). American Alligator Ecology and Monitoring for the Comprehensive Everglades Restoration Plan. Fact Sheet 2004–3105. Otwórz źródło
[62] Jones M.E.H., O'Higgins P., Fagan M.J., Evans S.E., Curtis N. (2012). Shearing mechanics and the influence of a flexible symphysis during oral food processing in Sphenodon (Lepidosauria: Rhynchocephalia). The Anatomical Record 295(7):1075–1091. Otwórz źródło
[63] National Parks Board, Singapore. Chrysopelea paradisi, Flora & Fauna Web; aktualizacja karty 18.01.2024. Otwórz źródło
[64] Yeaton I.J., Ross S.D., Baumgardner G.A., Socha J.J. (2020). Undulation enables gliding in flying snakes. Nature Physics 16:974–982. Otwórz źródło
[65] Boccia C.K. i in. (2021). Repeated evolution of underwater rebreathing in diving Anolis lizards. Current Biology 31(13):2947–2954.e4. Otwórz źródło
[66] Swierk L. (2024). Novel rebreathing adaptation extends dive time in a semi-aquatic lizard. Biology Letters 20(9):20240371. Otwórz źródło
[67] Comanns P., Effertz C., Hischen F., Staudt K., Böhme W., Baumgartner W. (2011). Moisture harvesting and water transport through specialized micro-structures on the integument of lizards. Beilstein Journal of Nanotechnology 2:204–214. Otwórz źródło
[68] Comanns P. i in. (2015). Directional, passive liquid transport: the Texas horned lizard as a model for a biomimetic liquid diode. Journal of the Royal Society Interface 12(109):20150415. Otwórz źródło
[69] Purwandana D. i in. (2016). Ecological allometries and niche use dynamics across Komodo dragon ontogeny. The Science of Nature 103:27. Otwórz źródło
[70] LeBlanc A.R.H. i in. (2024). Iron-coated Komodo dragon teeth and the complex dental enamel of carnivorous reptiles. Nature Ecology & Evolution 8:1711–1722. Otwórz źródło
[71] Kennett R., Christian K., Pritchard D. (1993). Underwater nesting by the tropical freshwater turtle, Chelodina rugosa (Testudinata: Chelidae). Australian Journal of Zoology 41(1):47–52. Otwórz źródło
[72] Kennett R., Georges A., Palmer-Allen M. (1993). Early developmental arrest during immersion of eggs of a tropical freshwater turtle, Chelodina rugosa (Testudinata: Chelidae), from northern Australia. Australian Journal of Zoology 41(1):37–45. Otwórz źródło
[73] Ip Y.K., Loong A.M., Lee S.M.L., Ong J.L.Y., Wong W.P., Chew S.F. (2012). The Chinese soft-shelled turtle, Pelodiscus sinensis, excretes urea mainly through the mouth instead of the kidney. Journal of Experimental Biology 215(21):3723–3733. Otwórz źródło
[74] Ip Y.K., Lee S.M.L., Wong W.P., Chew S.F. (2013). The Chinese soft-shelled turtle, Pelodiscus sinensis, decreases nitrogenous excretion, reduces urea synthesis and suppresses ammonia production during emersion. Journal of Experimental Biology 216(9):1650–1657. Otwórz źródło
[75] Australian Museum. Freshwater Crocodile, Crocodylus johnstoni; aktualizacja karty 19.11.2020. Otwórz źródło
[76] Hutchinson J.R. i in. (2019). Divergent evolution of terrestrial locomotor abilities in extant Crocodylia. Scientific Reports 9:19302. Otwórz źródło
[77] Anderson C.V., Deban S.M. (2010). Ballistic tongue projection in chameleons maintains high performance at low temperature. Proceedings of the National Academy of Sciences 107(12):5495–5499. Otwórz źródło
[78] Herrel A., Redding C.L., Meyers J.J., Nishikawa K.C. (2014). The scaling of tongue projection in the veiled chameleon, Chamaeleo calyptratus. Zoology 117(4):227–236. Otwórz źródło
[79] Bicego K.C., Barros R.C.H., Branco L.G.S. (2007). Physiology of temperature regulation: comparative aspects. Comparative Biochemistry and Physiology A 147:616–639. Otwórz źródło
[80] Dubiner S., Jamison S., Meiri S., Levin E. (2023; errata odsyłaczy do numerów równań w 2025). Squamate metabolic rates decrease in winter beyond the effect of temperature. Journal of Animal Ecology 92:2163–2174. Otwórz źródło
[81] Alibardi L. (2014; publikacja online 2015). Transition from embryonic to adult epidermis in reptiles occurs by the production of corneous beta-proteins. International Journal of Developmental Biology 58:829–839. Otwórz źródło
[82] Burken R.R., Wertz P.W., Downing D.T. (1985). The effect of lipids on transepidermal water permeation in snakes. Comparative Biochemistry and Physiology A 81:213–216. Otwórz źródło
[83] Vickaryous M.K., Hall B.K. (2008). Development of the dermal skeleton in Alligator mississippiensis (Archosauria, Crocodylia) with comments on the homology of osteoderms. Journal of Morphology 269:398–422. Otwórz źródło
[84] OpenStax. Biology 2e, rozdział 29.4 Reptiles. Wykorzystano opis błon płodowych, skóry i rozrodu. Otwórz źródło
[85] Jensen B., van den Berg G., van den Doel R., Oostra R.-J., Wang T., Moorman A.F.M. (2013). Development of the Hearts of Lizards and Snakes and Perspectives to Cardiac Evolution. PLOS ONE 8:e63651. Otwórz źródło
[86] Eme J., Gwalthney J., Owerkowicz T., Blank J.M., Hicks J.W. (2010). Turning crocodilian hearts into bird hearts: growth rates are similar for alligators with and without right-to-left cardiac shunt. Journal of Experimental Biology 213:2673–2680. Otwórz źródło
[87] Lyson T.R. i in. (2014). Origin of the unique ventilatory apparatus of turtles. Nature Communications 5:5211. Otwórz źródło
[88] Capano J.G., Boback S.M., Weller H.I., Cieri R.L., Zwemer C.F., Brainerd E.L. (2022). Modular lung ventilation in Boa constrictor. Journal of Experimental Biology 225:jeb243119. Otwórz źródło
[89] Schachner E.R., Cieri R.L., Butler J.P., Farmer C.G. (2014). Unidirectional pulmonary airflow patterns in the savannah monitor lizard. Nature 506:367–370. Otwórz źródło
[90] Lillywhite H.B., Sheehy C.M. III, Brischoux F., Grech A. (2014). Pelagic sea snakes dehydrate at sea. Proceedings of the Royal Society B 281:20140119. Otwórz źródło
[91] OpenStax. Biology 2e, rozdział 29.3 Amphibians. Skóra, oddychanie i rozwój płazów. Otwórz źródło
[92] Di-Poï N., Milinkovitch M.C. (2016). The anatomical placode in reptile scale morphogenesis indicates shared ancestry among skin appendages in amniotes. Science Advances 2:e1600708. Otwórz źródło
[93] Santos-Durán G.N., Cooper R.L., Jahanbakhsh E. i in. (2025; online 11.12.2024). Self-organized patterning of crocodile head scales by compressive folding. Nature 637:375–383. Otwórz źródło
[94] Secor S.M. (2003). Gastric function and its contribution to the postprandial metabolic response of the Burmese python Python molurus. Journal of Experimental Biology 206:1621–1630. Otwórz źródło
[95] Duan J., Sanggaard K.W., Schauser L., Lauridsen S.E., Enghild J.J., Schierup M.H., Wang T. (2017). Transcriptome analysis of the response of Burmese python to digestion. GigaScience 6:gix057. Otwórz źródło
[96] Starck J.M., Beese K. (2001). Structural flexibility of the intestine of Burmese python in response to feeding. Journal of Experimental Biology 204:325–335. Otwórz źródło
[97] Starck J.M., Moser P., Werner R.A., Linke P. (2004). Pythons metabolize prey to fuel the response to feeding. Proceedings of the Royal Society B 271:903–908. Otwórz źródło
[98] Mackie R.I., Rycyk M., Ruemmler R.L., Aminov R.I., Wikelski M. (2004). Biochemical and microbiological evidence for fermentative digestion in free-living land iguanas (Conolophus pallidus) and marine iguanas (Amblyrhynchus cristatus) on the Galápagos archipelago. Physiological and Biochemical Zoology 77:127–138. Otwórz źródło
[99] Hong P.-Y., Wheeler E., Cann I.K.O., Mackie R.I. (2011). Phylogenetic analysis of the fecal microbial community in herbivorous land and marine iguanas of the Galápagos Islands using 16S rRNA-based pyrosequencing. ISME Journal 5:1461–1470. Otwórz źródło
[100] Storey K.B., Storey J.M., Brooks S.P., Churchill T.A., Brooks R.J. (1988). Hatchling turtles survive freezing during winter hibernation. Proceedings of the National Academy of Sciences. DOI: 10.1073/pnas.85.21.8350. Otwórz źródło
[101] Costanzo J.P., Litzgus J.D., Iverson J.B., Lee R.E. Jr. (2000). Seasonal changes in physiology and development of cold hardiness in the hatchling painted turtle Chrysemys picta. Journal of Experimental Biology. DOI: 10.1242/jeb.203.22.3459. Otwórz źródło
[102] Costanzo J.P., Baker P.J., Dinkelacker S.A., Lee R.E. Jr. (2003). Endogenous and exogenous ice-nucleating agents constrain supercooling in the hatchling painted turtle. Journal of Experimental Biology. DOI: 10.1242/jeb.00112. Otwórz źródło
[103] Jackson D.C., Ramsey A.L., Paulson J.M., Crocker C.E., Ultsch G.R. (2000). Lactic Acid Buffering by Bone and Shell in Anoxic Softshell and Painted Turtles. Physiological and Biochemical Zoology. DOI: 10.1086/316754. Otwórz źródło
[104] Reese S.A., Stewart E.R., Crocker C.E., Jackson D.C., Ultsch G.R. (2004). Geographic variation of the physiological response to overwintering in the painted turtle (Chrysemys picta). Physiological and Biochemical Zoology. DOI: 10.1086/383514. Otwórz źródło
[105] Davis J.R., DeNardo D.F. (2007). The urinary bladder as a physiological reservoir that moderates dehydration in a large desert lizard, the Gila monster Heloderma suspectum. Journal of Experimental Biology. DOI: 10.1242/jeb.003061. Otwórz źródło
[106] Wright C.D., Jackson M.L., DeNardo D.F. (2013). Meal consumption is ineffective at maintaining or correcting water balance in a desert lizard, Heloderma suspectum. Journal of Experimental Biology. DOI: 10.1242/jeb.080895. Otwórz źródło
[107] Henen B.T., Peterson C.C., Wallis I.R., Berry K.H., Nagy K.A. (1998). Effects of climatic variation on field metabolism and water relations of desert tortoises. Oecologia. DOI: 10.1007/s004420050669. Otwórz źródło
[108] Innocenti A., Minutini L., Foà A. (1993). The pineal and circadian rhythms of temperature selection and locomotion in lizards. Physiology & Behavior. DOI: 10.1016/0031-9384(93)90268-K. Otwórz źródło
[109] Smith K.R., Cadena V., Endler J.A., Porter W.P., Kearney M.R., Stuart-Fox D. (2016). Colour change on different body regions provides thermal and signalling advantages in bearded dragon lizards. Proceedings of the Royal Society B. DOI: 10.1098/rspb.2016.0626. Otwórz źródło
[110] Lutterschmidt D.I., Mason R.T. (2009). Endocrine mechanisms mediating temperature-induced reproductive behavior in red-sided garter snakes (Thamnophis sirtalis parietalis). Journal of Experimental Biology. DOI: 10.1242/jeb.033100. Otwórz źródło
[111] Tattersall G.J., Leite C.A.C., Sanders C.E., Cadena V., Andrade D.V., Abe A.S., Milsom W.K. (2016). Seasonal reproductive endothermy in tegu lizards. Science Advances. DOI: 10.1126/sciadv.1500951. Otwórz źródło
[112] Blake S., Yackulic C.B., Cabrera F., Tapia W., Gibbs J.P., Kümmeth F., Wikelski M. (2013). Vegetation dynamics drive segregation by body size in Galapagos tortoises migrating across altitudinal gradients. Journal of Animal Ecology. DOI: 10.1111/1365-2656.12020. Otwórz źródło
[113] Broderick A.C., Coyne M.S., Fuller W.J., Glen F., Godley B.J. (2007). Fidelity and over-wintering of sea turtles. Proceedings of the Royal Society B. DOI: 10.1098/rspb.2007.0211. Otwórz źródło
[114] Reinke B.A., Cayuela H., Janzen F.J. i in. (2022). Diverse aging rates in ectothermic tetrapods provide insights for the evolution of aging and longevity. Science. DOI: 10.1126/science.abm0151. Otwórz źródło
[115] da Silva R., Conde D.A., Baudisch A., Colchero F. (2022). Slow and negligible senescence among testudines challenges evolutionary theories of senescence. Science. DOI: 10.1126/science.abl7811. Otwórz źródło
[116] Warner D.A., Miller D.A.W., Bronikowski A.M., Janzen F.J. (2016). Decades of field data reveal that turtles senesce in the wild. Proceedings of the National Academy of Sciences. DOI: 10.1073/pnas.1600035113. Otwórz źródło
[117] Foster C.S.P. i in. (2022). Different Genes are Recruited During Convergent Evolution of Pregnancy and the Placenta. Molecular Biology and Evolution 39:msac077. Otwórz źródło
[118] Linville B.J., Stewart J.R., Ecay T.W., Herbert J.F., Parker S.L., Thompson M.B. (2010). Placental calcium provision in a lizard with prolonged oviductal egg retention. Journal of Comparative Physiology B 180:221–227. Otwórz źródło
[119] Levine B.A., Schuett G.W., Booth W. (2021). Exceptional long-term sperm storage by a female vertebrate. PLOS ONE 16:e0252049. Otwórz źródło
[120] NOAA Ocean Service (aktualizacja 23.09.2026). What causes a sea turtle to be born male or female? Otwórz źródło
[121] Holleley C.E. i in. (2015). Sex reversal triggers the rapid transition from genetic to temperature-dependent sex. Nature 523:79–82. Otwórz źródło
[122] Schwenk K. (1994). Why snakes have forked tongues. Science 263:1573–1577. Otwórz źródło
[123] Gracheva E.O. i in. (2010). Molecular basis of infrared detection by snakes. Nature 464:1006–1011. Otwórz źródło
[124] Leitch D.B., Catania K.C. (2012). Structure, innervation and response properties of integumentary sensory organs in crocodilians. Journal of Experimental Biology 215:4217–4230. Otwórz źródło
[125] Goforth K.M. i in. (2025). Learned magnetic map cues and two mechanisms of magnetoreception in turtles. Nature 638:1015–1022. Otwórz źródło
[126] Gutnick T., Weissenbacher A., Kuba M.J. (2020; online 2019). The underestimated giants: operant conditioning, visual discrimination and long-term memory in giant tortoises. Animal Cognition 23:159–167. Otwórz źródło
[127] Okinawa Institute of Science and Technology (13.12.2019). A tortoise never forgets. Omówienie badań Gutnick i współpracowników przez instytucję prowadzącą badanie. Otwórz źródło
[128] Blake S. i in. (2012). Seed dispersal by Galápagos tortoises. Journal of Biogeography 39:1961–1972. Otwórz źródło
[129] Kier G. i in. (2009). A global assessment of endemism and species richness across island and mainland regions. PNAS 106(23):9322–9327. Otwórz źródło
[130] Roll U. i in. (2017). The global distribution of tetrapods reveals a need for targeted reptile conservation. Nature Ecology & Evolution 1:1677–1682. Otwórz źródło
[131] IUCN Standards and Petitions Committee (2024). Guidelines for Using the IUCN Red List Categories and Criteria. Version 16. Rozdziały 4.9–4.10: zasięg i obszar zajmowany. Otwórz źródło
[132] The Reptile Database. Worldwide Diversity of Reptiles 2000–2020. Uwagi metodologiczne do zestawień geograficznych; aktualizacja 20 lutego 2021. Otwórz źródło
[133] Mahler D.L., Ingram T., Revell L.J., Losos J.B. (2013). Exceptional convergence on the macroevolutionary landscape in island lizard radiations. Science 341(6143):292–295. Otwórz źródło
[134] Skórzewski G., Borczyk B., Bury S., Kulik D., Kotusz J. (2025). Contact zone of slow worms Anguis fragilis Linnaeus, 1758 and Anguis colchica (Nordmann, 1840) in Poland. PeerJ 13:e18563. Otwórz źródło
[135] Zając B. i in. (2022). Stabilna populacja zaskrońca rybołowa Natrix tessellata na Śląsku Cieszyńskim. Przegląd Przyrodniczy XXXIII(1):35–48. Otwórz źródło
[136] Instytut Ochrony Przyrody PAN. Gatunki obce w Polsce — Podarcis muralis. Status gatunku i jego pochodzenie. Otwórz źródło
[137] Skawiński T., Kolenda K., Zając B., Kaczmarski M. (2019). Przegląd doniesień o występowaniu jaszczurki zielonej Lacerta viridis w Polsce. Przegląd Przyrodniczy XXX(2):89–97. Otwórz źródło
[138] Generalna Dyrekcja Ochrony Środowiska. Trachemys scripta — żółw ozdobny. Otwórz źródło
[139] Osterloff E. (aktualizacja 2024). British snakes: Are there dangerous reptiles in the UK? Natural History Museum, London. Wykorzystano cechy morfologiczne Vipera berus i zasadę obserwacji z dystansu. Otwórz źródło
[140] Główny Inspektorat Ochrony Środowiska. Gniewosz plamisty Coronella austriaca. Karta gatunku i opis cech. Otwórz źródło
[141] Centrum Informacyjne Lasów Państwowych (2023). Nie taki ten gad straszny. Echa Leśne 2(652):20–23. Wykorzystano opis plam za głową zaskrońca i ich zaniku u niektórych osobników. Otwórz źródło
[142] Gostynińsko-Włocławski Park Krajobrazowy (2020). Gniewosz plamisty. Portal Województwa Kujawsko-Pomorskiego. Wykorzystano opis ciemnej smugi i zmienności plam. Otwórz źródło
[143] Hendry L. Natural History Museum, London. Slow worms: Britain's most unusual lizards. Wykorzystano ruchome powieki oraz zasady ograniczania niepokojenia zwierząt. Otwórz źródło
[144] IUCN (2026). The IUCN Red List of Threatened Species — Summary Statistics, wersja 2026-1. Otwórz źródło
[145] IUCN (27.04.2022). World’s reptiles comprehensively assessed — IUCN Red List. Otwórz źródło
[146] NOAA Fisheries (8.01.2018). Rising Temperatures Turning Major Sea Turtle Population Female. Omówienie wyników badania z Wielkiej Rafy Koralowej. Otwórz źródło
[147] IUCN (10.10.2025). Arctic seals threatened by climate change, birds decline globally — IUCN Red List. Część dotycząca odbudowy populacji żółwia zielonego. Otwórz źródło
[148] Wallace B.P., Broderick A.C. (2025). Chelonia mydas. The IUCN Red List of Threatened Species: e.T4615A285108125. Ocena 09.12.2024, publikacja 2025. Otwórz źródło
[149] Rguez-Baron J.M. i in., MTSG Green Turtle Red List working group (2026). The Conservation Status of Green Turtle Populations Worldwide. SWOT Report 21. Otwórz źródło
[150] Kearney M., Shine R., Porter W. P. (2009). The potential for behavioral thermoregulation to buffer “cold-blooded” animals against climate warming. Proceedings of the National Academy of Sciences 106(10):3835–3840. Otwórz źródło
[151] Bestion E., Teyssier A., Richard M., Clobert J., Cote J. (2015). Live Fast, Die Young: Experimental Evidence of Population Extinction Risk due to Climate Change. PLOS Biology 13(10):e1002281. Otwórz źródło
[152] Jensen M. P. i in. (2018). Environmental Warming and Feminization of One of the Largest Sea Turtle Populations in the World. Current Biology 28(1):154–159.e4. Otwórz źródło
[153] Wright L. I. i in. (2012). Turtle mating patterns buffer against disruptive effects of climate change. Proceedings of the Royal Society B 279:2122–2127. Otwórz źródło
[154] Mitchell N. J., Kearney M. R., Nelson N. J., Porter W. P. (2008). Predicting the fate of a living fossil: how will global warming affect sex determination and hatching phenology in tuatara? Proceedings of the Royal Society B 275:2185–2193. Otwórz źródło
[155] Santidrián Tomillo P. i in. (2012). Climate Driven Egg and Hatchling Mortality Threatens Survival of Eastern Pacific Leatherback Turtles. PLOS ONE 7(5):e37602. Otwórz źródło
[156] Santidrián Tomillo P. i in. (2015). Global analysis of the effect of local climate on the hatchling output of leatherback turtles. Scientific Reports 5:16789. Otwórz źródło
[157] Wood A., Booth D. T., Limpus C. J. (2014). Sun exposure, nest temperature and loggerhead turtle hatchlings: Implications for beach shading management strategies at sea turtle rookeries. Journal of Experimental Marine Biology and Ecology 451:105–114. Otwórz źródło
[158] Campbell-Staton S. C. i in. (2017). Winter storms drive rapid phenotypic, regulatory, and genomic shifts in the green anole lizard. Science 357(6350):495–498. Otwórz źródło
[159] Lankton J. S., Stevens B., Shirose L., Davy C. (2024). Ophidiomycosis (snake fungal disease) case definition for wildlife. U.S. Geological Survey Techniques and Methods 19–F1. Otwórz źródło
[160] Lorch J. M. i in. (2015). Experimental Infection of Snakes with Ophidiomyces ophiodiicola Causes Pathological Changes That Typify Snake Fungal Disease. mBio 6(6):e01534-15. Otwórz źródło
[161] Franklinos L. H. V. i in. (2017). Emerging fungal pathogen Ophidiomyces ophiodiicola in wild European snakes. Scientific Reports 7:3844. Otwórz źródło
[162] Lorch J. M., Price S. J., Lankton J. S., Drayer A. N. (2021). Confirmed Cases of Ophidiomycosis in Museum Specimens from as Early as 1945, United States. Emerging Infectious Diseases 27(7). Otwórz źródło
[163] Adamovicz L. i in. (2018). Investigation of multiple mortality events in eastern box turtles (Terrapene carolina carolina). PLOS ONE 13(4):e0195617. Otwórz źródło
[164] Rayl J. M. i in. (2020). Mortality investigation of monitored eastern box turtles (Terrapene carolina carolina) in Central Illinois, USA, from 2016–18. Journal of Wildlife Diseases 56(2):306–315. Otwórz źródło
[165] Brown M. B., Schumacher I. M., Klein P. A., Harris K., Correll T., Jacobson E. R. (1994). Mycoplasma agassizii causes upper respiratory tract disease in the desert tortoise. Infection and Immunity 62(10):4580–4586. Otwórz źródło
[166] Sarmiento-Ramírez J. M. i in. (2014). Global Distribution of Two Fungal Pathogens Threatening Endangered Sea Turtles. PLOS ONE 9(1):e85853. Otwórz źródło
[167] Główny Inspektorat Ochrony Środowiska. Sprawozdanie z monitoringu gniewosza plamistego Coronella austriaca w roku 2024. Otwórz źródło
[168] Główny Inspektorat Ochrony Środowiska (2024). Gniewosz plamisty Coronella austriaca. Metodyka monitoringu z modyfikacją z 15 kwietnia 2024 roku. Otwórz źródło
[169] Baxter-Gilbert J.H., Riley J.L., Lesbarrères D., Litzgus J.D. (2015). Mitigating Reptile Road Mortality: Fence Failures Compromise Ecopassage Effectiveness. PLOS ONE 10:e0120537. Otwórz źródło
[170] O’Sullivan J.L. i in. (2023). Reversing habitat loss: An experimental test of the interactive effects of grazing exclusion and surface rock restoration on reptile conservation. Journal of Applied Ecology 60:1778–1789. Otwórz źródło
[171] Boyle S.P., Keevil M.G., Litzgus J.D., Tyerman D., Lesbarrères D. (2021). Road-effect mitigation promotes connectivity and reduces mortality at the population-level. Biological Conservation 261:109230. Otwórz źródło
[172] NOAA Fisheries. Turtle Excluder Devices. Materiał techniczny; dostęp 11.11.2026. Otwórz źródło
[173] Donihue C.M., Daltry J.C., Challenger S., Herrel A. (2021). Przyrost populacji i zmiany zachowania oraz morfologii jaszczurki z Redondy po usunięciu obcych szczurów i kóz [tytuł w tłumaczeniu]. Integrative Zoology 16:379–389. Otwórz źródło
[174] Ortiz N. i in. (2016). Reducing green turtle bycatch in small-scale fisheries using illuminated gillnets: the cost of saving a sea turtle. Marine Ecology Progress Series 545:251–259. Otwórz źródło
[175] Darquea J.J. i in. (2020). Trialing net illumination as a bycatch mitigation measure for sea turtles in a small-scale gillnet fishery in Ecuador. Latin American Journal of Aquatic Research 48(3). Otwórz źródło
[176] Moro D., MacAulay I. (2014). Computer-aided pattern recognition of large reptiles as a noninvasive application to identify individuals. Journal of Applied Animal Welfare Science 17:125–135. Otwórz źródło
[177] Tomke S.A., Kellner C.J. (2020). Genotyping validates the efficacy of photographic identification in a capture-mark-recapture study based on the head scale patterns of the prairie lizard (Sceloporus consobrinus). Ecology and Evolution 10:14309–14319. Otwórz źródło
[178] Pittman S.E. i in. (2014). Homing of invasive Burmese pythons in South Florida: evidence for map and compass senses in snakes. Biology Letters 10:20140040. Otwórz źródło
[179] Hart K.M. i in. (2015). Home range, habitat use, and movement patterns of non-native Burmese pythons in Everglades National Park, Florida, USA. Animal Biotelemetry 3:8. Otwórz źródło
[180] Hunter M.E. i in. (2015). Environmental DNA (eDNA) sampling improves occurrence and detection estimates of invasive Burmese pythons. PLOS ONE 10:e0121655. Otwórz źródło
[181] Furlan E.M., Davis J., Duncan R.P. (2020). Identifying error and accurately interpreting environmental DNA metabarcoding results: A case study to detect vertebrates at arid zone waterholes. Molecular Ecology Resources 20:1259–1276. Otwórz źródło
[182] Ward R.J., Griffiths R.A., Wilkinson J.W., Cornish N. (2017). Optimising monitoring efforts for secretive snakes: a comparison of occupancy and N-mixture models for assessment of population status. Scientific Reports 7:18074. Otwórz źródło
[183] Sewell D., Guillera-Arroita G., Griffiths R.A., Beebee T.J.C. (2012). When Is a Species Declining? Optimizing Survey Effort to Detect Population Changes in Reptiles. PLOS ONE 7:e43387. Otwórz źródło
[184] Glaw F. i in. (2021). Extreme miniaturization of a new amniote vertebrate and insights into the evolution of genital size in chameleons. Scientific Reports 11:2522. Otwórz źródło
Nota o opracowaniu. Kompendium jest syntezą popularnonaukową. Wyniki badań zachowują zakres wskazanych prób i metod. Własne obliczenia oraz schematy pojęciowe oznaczono w podpisach. Nazwy oraz rozstrzygnięcia systematyczne odpowiadają przywołanym źródłom i datom.