Streszczenie
Pierścienice (Annelida) obejmują organizmy morskie, słodkowodne i lądowe o zróżnicowanej budowie oraz sposobach odżywiania. Współczesne ujęcie ich różnorodności opiera się na pokrewieństwie, dlatego tradycyjny podział na wieloszczety, skąposzczety i pijawki wymaga wyjaśnienia. Segmentacja, szczecinki, celoma i brzuszny układ nerwowy są ważnymi elementami porównania, lecz ich postać i obecność zmieniają się między liniami. Przekrój dżdżownicy stanowi użyteczny model określonej organizacji ciała, a pełniejszy obraz typu wymaga zestawienia go z formami morskimi i pijawkami. [1, 2, 3, 4]
Kompendium łączy opis organizmu z analizą funkcji ekologicznych. Dżdżownice przemieszczają glebę i resztki organiczne, a wiele morskich pierścienic przebudowuje osady i wentyluje nory. Znaczenie tych procesów ocenia się przez konkretne miary: zagęszczenie i biomasę zwierząt, transport cząstek, wymianę wody, dostępność składników pokarmowych lub reakcję roślin. Wyniki zależą od siedliska, gatunku i projektu badania. Korzystne efekty w agroekosystemach mogą współistnieć z niekorzystnymi skutkami introdukcji dżdżownic do określonych lasów. [5, 6, 7, 8, 9, 10]
Opracowanie wyjaśnia również cykle rozwojowe, sensorykę, regenerację i symbiozy oraz pokazuje zastosowanie pierścienic w badaniach laboratoryjnych i terenowych. Szczególną uwagę poświęcono jakości wnioskowania: rozdzielono wynik pomiaru od wyniku modelu, efekt względny od udziału procentowego, a obserwowany mechanizm od uogólnienia na cały typ. Przy danych podano ich zakres i ograniczenia. Tekst ma charakter przeglądu narracyjnego; służy pogłębionemu zrozumieniu biologii i ocenie informacji, a szczegółowe procedury badawcze należy odczytywać w dokumentach źródłowych. [11, 12, 13, 14, 6, 7, 15]
Słowa kluczowe. Annelida; segmentacja; siodełkowce; dżdżownice; wieloszczety; pijawki; bioturbacja; bioirygacja; regeneracja; chemosymbioza.
Wprowadzenie
Pierścienice, czyli Annelida, to typ zwierząt obejmujący dżdżownice, pijawki i ogromną różnorodność form wodnych. Łączy je wspólna historia ewolucyjna, a u wielu przedstawicieli także segmentowa organizacja ciała. Żyją w ściółce i glebie, osadach jezior i rzek, na wybrzeżach oraz w głębinach oceanicznych. W tej samej grupie mieszczą się zwierzęta połykające osad, aktywni drapieżcy, filtratorzy i gatunki uzależnione od bakterii symbiotycznych. [1, 3, 16]
Ich znaczenie wynika z konkretnych procesów: przemieszczania cząstek gleby i osadu, wymiany wody w norach, przetwarzania materii organicznej oraz uczestnictwa w sieciach pokarmowych. Nie istnieje jednak jedna odpowiedź na pytanie, czy pierścienice są „pożyteczne”. Dżdżownice mogą wspierać uprawy, a po wprowadzeniu do ekosystemu poza naturalnym zasięgiem przekształcać go w sposób niekorzystny dla miejscowych organizmów. Ocena zależy od gatunku, środowiska i badanego procesu. [6, 8, 9, 10]
To kompendium prowadzi od rozpoznania grupy przez anatomię, fizjologię i rozwój do ekologii oraz zastosowań. Łączy wiedzę podstawową z wynikami badań i pokazuje, gdzie kończy się dobrze potwierdzona reguła, a zaczyna zmienność biologiczna. Nazwy naukowe podano kursywą; numery w nawiasach kierują do bibliografii. Dane liczbowe zachowują rok, jednostkę i zakres badania. Ryciny są autorskimi schematami lub wizualizacjami opublikowanych wartości, a nie dokumentacją fotograficzną.
Zakres i aktualność. Weryfikację źródeł zakończono 13 listopada 2026 r. Jest to opracowanie syntetyczne, nie formalny przegląd systematyczny. Daty przy wynikach oznaczają publikację lub rok obserwacji, zgodnie z opisem; nie wszystkie liczby przedstawiają stan przyrody w 2026 r. Nie podano jednej „aktualnej” liczby wszystkich gatunków ani niezweryfikowanego spisu gatunków Polski.
Rozdział 1Czym są pierścienice
Annelida należą do zwierząt dwubocznie symetrycznych. Współczesne analizy umieszczają je w szerokiej radiacji Spiralia, zwykle omawianej także w kontekście Lophotrochozoa. Dla rozpoznawania ich budowy ważniejsze od zapamiętania kolejnych rang są trzy pojęcia: segmentacja, szczecinki i celoma. Segmentacja oznacza powtarzalną organizację kolejnych części tułowia; szczecinki są strukturami wytwarzanymi przez naskórek; celoma to wtórna jama ciała, której płyn może uczestniczyć w podpieraniu ciała i ruchu. Żadnej z tych cech nie należy jednak traktować jako prostego, widocznego gołym okiem testu bez wyjątków. [1, 3, 17]
Określenie „robak” nie jest nazwą jednej jednostki systematycznej. W potocznym użyciu obejmuje zwierzęta o wydłużonym ciele, które mogą należeć do odległych linii ewolucyjnych. Dżdżownica nie jest nicieniem, a podobna do niej larwa owada nie staje się pierścienicą tylko dlatego, że jej ciało ma poprzeczne przewężenia. Rozpoznanie wymaga porównania zestawu cech: organizacji powierzchni ciała, obecności odnóży lub szczecinek, budowy części przedniej oraz środowiska znalezienia. Przy drobnych formach niezbędna bywa mikroskopia. [1, 3]
Tabela 1. Jakich zwierząt nie należy mylić z pierścienicami
| Grupa | Wskazówka rozpoznawcza | Ograniczenie |
|---|---|---|
| Pierścienice | U wielu form powtarzalne segmenty i szczecinki; brak członowanych odnóży stawonogów | Cechy mogą być zredukowane; szczególnie nietypowe są m.in. Sipuncula i pijawki. |
| Nicienie | Ciało zwykle obłe, bez prawdziwego segmentowego planu typowego dla wielu pierścienic | Poprzeczne prążki kutykuli nie są dowodem segmentacji narządów. |
| Płazińce | Wiele form ma ciało spłaszczone i inną organizację jamy ciała | Sam spłaszczony kształt nie wystarcza: pijawki również bywają spłaszczone. |
| Larwy owadów | Przynależność do stawonogów; u części widoczna puszka głowowa lub odnóża | Niektóre larwy są beznogie; wygląd „robakowaty” jest zawodny. |
Porównanie orientacyjne, nie klucz do oznaczania. Cechy Annelida według [1, 3, 17]; pozostałe kolumny przedstawiają podstawowe różnice planów budowy.
Rozdział 2Różnorodność i współczesna klasyfikacja
W przekrojowym zestawieniu opublikowanym w 2021 r. Magalhães i współautorzy oszacowali liczbę uznanych gatunków Annelida na 20 188, podając w abstrakcie zaokrągloną wartość około 20 200. Jest to punkt odniesienia z określonej publikacji, a nie licznik na dzień czytania artykułu. Nowe opisy, rozpoznawanie gatunków kryptycznych i rewizje synonimów powodują zmianę sum. Trzeba też rozróżniać gatunki opisane, aktualnie uznawane oraz szacowaną liczbę wszystkich gatunków, łącznie z nieodkrytymi. [19]
W tradycyjnym nauczaniu dzielono pierścienice na wieloszczety, skąposzczety i pijawki. Ten układ pomaga opisywać znane formy, ale nie oddaje pełnego drzewa pokrewieństwa. Siodełkowce, czyli Clitellata, są zagnieżdżone w obrębie linii dawniej obejmowanych nazwą „wieloszczety”. Z kolei pijawki wywodzą się z wnętrza szerszej radiacji siodełkowców. Grupa parafiletyczna obejmuje wspólnego przodka, lecz pomija część jego potomków; właśnie dlatego tradycyjnych „Polychaeta” i „Oligochaeta” nie należy bez wyjaśnienia traktować jako pełnych naturalnych gałęzi. [1, 2, 16]
Duża część współczesnej różnorodności należy do dwóch kladów: Errantia i Sedentaria, razem ujmowanych jako Pleistoannelida. Clitellata znajdują się w Sedentaria. Poza tym głównym podziałem pozostają inne linie pierścienic. Nazwy Errantia i Sedentaria mają historię związaną z trybem życia, ale w obecnym zastosowaniu oznaczają pokrewieństwo: nie każda „Sedentaria” prowadzi całkowicie osiadły tryb życia. Nowsze porównania genomów wspierają podstawowe elementy tego obrazu, choć nie rozwiązują jednakowo wszystkich rozgałęzień. [2, 20]
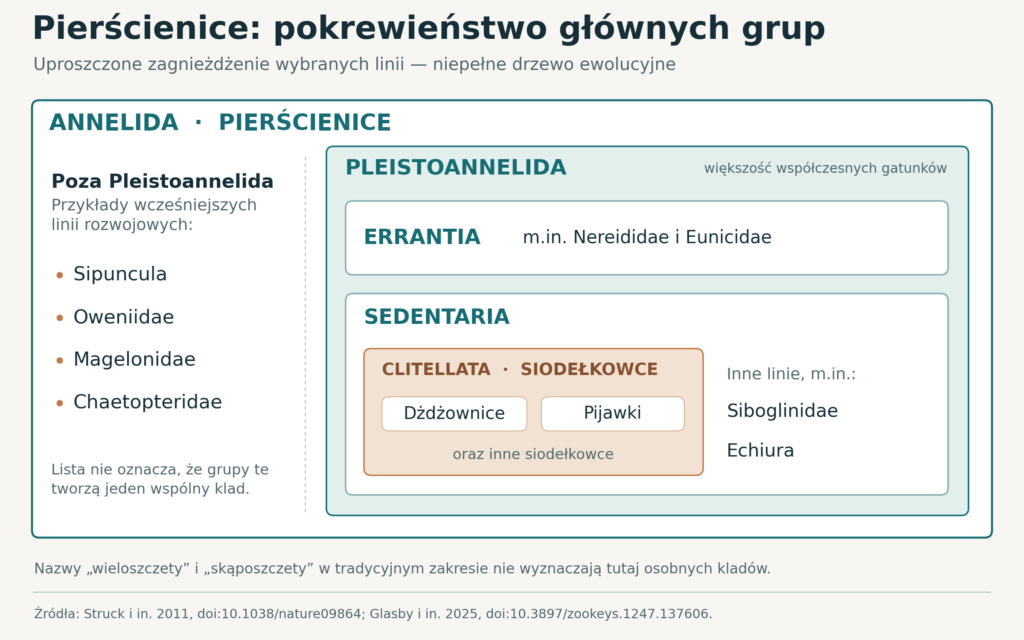
Zmieniły się również granice samego typu. Sipuncula i Echiura, dawniej często przedstawiane jako osobne typy, są obecnie włączane do Annelida. Dotyczy to także linii znanych historycznie jako Pogonophora i Vestimentifera, dziś ujmowanych w rodzinie Siboglinidae. Ewolucyjna przynależność nie zależy więc wyłącznie od tego, czy dorosłe zwierzę wygląda jak podręcznikowa dżdżownica. Utrata lub przekształcenie widocznej segmentacji nie usuwa organizmu z jego linii rodowej. [1, 21]
Tabela 2. Tradycyjne nazwy a ich współczesna interpretacja
| Nazwa | Jak jej używać | Przykłady lub uwagi |
|---|---|---|
| Wieloszczety | Przydatny termin tradycyjny i opisowy; dawny zakres jest parafiletyczny | Wiele morskich form ze szczecinkami i parapodiami. |
| Skąposzczety | Tradycyjne określenie wielu siodełkowców poza pijawkami | Obejmuje dżdżownice oraz liczne drobne formy wodne. |
| Clitellata | Grupa obejmująca siodełkowce | Siodełko jest związane z rozrodem; w tej grupie są także pijawki. |
| Errantia i Sedentaria | Dwie duże gałęzie obejmujące większość pierścienic | Nie wyczerpują wszystkich linii Annelida. |
| Sipuncula i Echiura | Linie włączane do Annelida | Dorosłe odbiegają od schematu wyraźnie segmentowanego ciała. |
| Siboglinidae | Rodzina pierścienic morskich | Należą tu m.in. rodzaje Riftia i Osedax. |
Źródła: [1, 2, 20, 21, 16]. Rangi i zakres niektórych nazw różnią się między systemami; tabela wyjaśnia relacje, nie zastępuje kompletnej klasyfikacji.
Jak czytać drzewo pokrewieństwa i rangi taksonomiczne
Drzewo filogenetyczne jest hipotezą o rozgałęzianiu się linii rodowych. O pokrewieństwie decyduje wspólny węzeł, a nie sąsiedztwo nazw na kartce. Obrócenie gałęzi wokół węzła może zmienić kolejność podpisów, zachowując te same relacje. W drzewie gatunków węzły wewnętrzne reprezentują rekonstruowanych przodków; w analizie sekwencji mogą odpowiadać przodkom badanych genów. Przed interpretacją trzeba więc sprawdzić, co właściwie porównano. [22]
Szczególnej uwagi wymaga długość gałęzi. Na kladogramie może ona służyć wyłącznie czytelności, w drzewie molekularnym często oznacza szacowaną liczbę zmian na pozycję sekwencji, a dopiero w drzewie skalibrowanym czasowo odnosi się do czasu. Dłuższa linia nie oznacza automatycznie starszego gatunku. Również liczby przy rozgałęzieniach trzeba odczytywać zgodnie z legendą: wartości bootstrap i prawdopodobieństwa a posteriori są różnymi miarami wsparcia. Odnoszą się do określonego rozgałęzienia, danych i metody, nie do procentu „poznanej ewolucji” całej grupy. [22]
Klad i ranga to dwa różne pojęcia. Klad obejmuje wspólnego przodka i wszystkich jego potomków, natomiast rodzina, rząd czy gromada są poziomami porządkującymi nazwy. Z samego przypisania dwóch grup do rangi rodziny nie wynika równy wiek, podobna liczba gatunków ani taki sam zakres odmienności anatomicznej. W ANNiKEY autorzy wyraźnie omawiają rozbieżności rang i zakresów grup między systemami; stabilniejsza od samej etykiety bywa dobrze potwierdzona relacja zagnieżdżenia. [1, 22]
W badaniach Annelida znaczenie ma również dobór organizmów. Weigert i współautorzy analizowali w 2014 r. zestawy obejmujące od 305 do 622 białek, rozszerzając reprezentację wczesnych odgałęzień. Po uwzględnieniu dodatkowych taksonów zmieniły się niektóre wnioski o cechach przodka, m.in. dotyczące narządów karkowych i wewnętrznych szczecinek podporowych. To przykład, dlaczego rekonstrukcja morfologii przodka powinna być prezentowana jako wynik określonej analizy, a nie portret zwierzęcia bezpośrednio zaobserwowanego w przeszłości. [23]
Nie można także utożsamiać małego, zewnętrznie prostego organizmu z pierwotnym stanem całego typu. Analiza filogenomiczna Andrade i współautorów umieściła różne drobne pierścienice śródpiaskowe w obrębie odrębnych linii, podważając traktowanie dawnych „Archiannelida” jako jednej grupy stojącej u podstaw drzewa. Ograniczenie wyrostków lub słaba widoczność segmentacji mogą być cechami wtórnymi, związanymi z historią danej linii. Sama złożoność wyglądu nie wyznacza kierunku pokrewieństwa. [24]
Tabela 3. Drzewo pokrewieństwa: informacja i granica interpretacji
| Element | Uprawniona interpretacja | Czego nie należy dopowiadać |
|---|---|---|
| Klad | Wspólny przodek i wszyscy potomkowie w danej hipotezie. | Jednakowy wygląd lub jeden tryb życia wszystkich członków. |
| Gałęzie siostrzane | Dwie linie połączone bezpośrednio wspólnym węzłem. | Że jedna współczesna linia powstała z drugiej. |
| Ranga, np. rodzina | Poziom w przyjętym systemie nazw i klasyfikacji. | Stały wiek, rozmiar lub bogactwo gatunkowe. |
| Wsparcie rozgałęzienia | Wynik oceny konkretnej relacji metodą wskazaną w publikacji. | Gwarancja poprawności całego drzewa niezależna od próby i modelu. |
Objaśnienia na podstawie materiałów EMBL-EBI [22] i uwag klasyfikacyjnych ANNiKEY [1]. Tabela nie ustala arbitralnego progu, powyżej którego każda hipoteza staje się pewna.
Rozdział 3Pochodzenie i zapis kopalny
Miękkie ciało słabo sprzyja zachowaniu w skałach. Brak skamieniałości w danym przedziale czasu nie oznacza zatem automatycznie nieobecności pierścienic. Najwięcej informacji dostarczają stanowiska, w których wyjątkowe warunki utrwaliły drobne struktury ciała. Analiza skamieniałości uwzględnia układ segmentów i wyrostków, a także sposób zachowania okazu. Sam wydłużony zarys może być zbyt mało charakterystyczny, by przypisać go do Annelida. [3, 25]
W 2026 r. opisano fosfatyzowane mikroskamieniałości z południowych Chin o wieku około 535 mln lat, interpretowane przez autorów jako wczesne pierścienice o morfologii wieloszczetów. Znaleziska poszerzają znany zapis ciała tej grupy do najwcześniejszego kambru. Wiek warstwy z okazem nie jest jednak dokładną datą powstania wspólnego przodka wszystkich dzisiejszych pierścienic. To świadectwo obecności wczesnej linii pierścienic w tym czasie; nie datuje samo w sobie wspólnego przodka wszystkich dzisiejszych grup. [25]
Drugim źródłem wiedzy są porównania DNA i organizacji genomów. Badacze szukają zgodnych sygnałów w wielu genach i testują modele historii rodowej. Wynik zależy m.in. od doboru gatunków, jakości danych i sposobu analizy. Rozsądna synteza łączy dane molekularne z morfologią i paleontologią. Ewolucja nie jest drabiną od „prostych” robaków do „doskonalszych” zwierząt: żyjąca dziś dżdżownica i morski wieloszczet mają za sobą równie długą historię od wspólnych przodków, choć zachowały i przekształciły różne cechy. [2, 20, 3]
Homologia i odmienności segmentacji
Pytanie o segmentację obejmuje kilka poziomów: powtarzalność budowy dorosłego, sposób powstawania części ciała w rozwoju oraz historię ewolucyjną tych procesów. Homologia oznacza wspólne pochodzenie porównywanych struktur, nie obowiązkowo identyczny kształt lub funkcję. Dlatego podobna drabinka nerwowa u dwóch organizmów nie rozstrzyga jeszcze, czy cały jej układ odziedziczyły po takim samym przodku. W analizie Helm i współautorów drabinkowa organizacja brzusznych pni powstawała niezależnie, a stan przodka odtworzono jako układ położony w naskórku. [4]
Przypadek sipunkulidów pokazuje, dlaczego trzeba porównywać również stadia rozwojowe. U Phascolosoma agassizii opisano kolejno powstające pary komórek nerwowych i połączenia poprzeczne, tworzące przejściowy wzór segmentalny. W późniejszym rozwoju układ ulega przebudowie i traci tę postać. Wynik wspiera interpretację pochodzenia Sipuncula od segmentowanych przodków. Nie znaczy jednak, że larwa odtwarza kompletną anatomię dawnego dorosłego zwierzęcia albo że każdy narząd przechodzi identyczną sekwencję zmian. [26]
Równie ostrożnie należy interpretować wspólne geny. U Capitella teleta zbadano ekspresję homologów genów runt, Pax3/7 oraz dwóch genów even-skipped. Nie wykazywały one pasmowego wzoru charakterystycznego dla omawianych genów segmentacji muszki. Autorzy uznali wynik za zgodny z niezależnym powstaniem segmentacji pierścienic i stawonogów, podkreślając potrzebę badań funkcjonalnych. Rzetelny wniosek dotyczy tego zestawu genów i badanego gatunku; nie jest ostatecznym rozstrzygnięciem pochodzenia każdej formy metamerii u zwierząt. [27]
Stan ancestralny to cecha przypisywana wspólnemu przodkowi na podstawie drzewa i rozkładu cech. Nie należy utożsamiać go z całym organizmem należącym do wcześnie odgałęzionej współczesnej linii. Badanie Weigert i współautorów wykazało, że takie linie obejmują bardzo różne sposoby życia, a poszczególne gatunki łączą cechy zachowane i przekształcone. W kompendium bezpieczniej mówić osobno o prawdopodobnym pochodzeniu konkretnej struktury niż o jednej „najbardziej pierwotnej pierścienicy”. [23]
Rozdział 4Segmentacja i plan budowy ciała
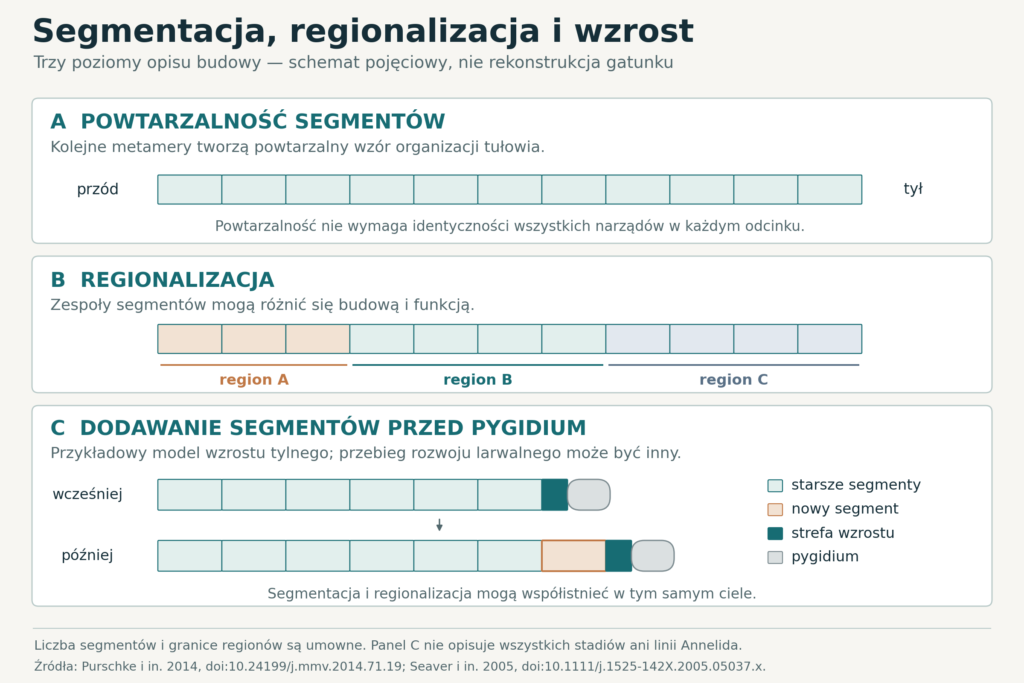
U wielu pierścienic tułów składa się z kolejnych metamerów, czyli segmentów. Powtarzać mogą się części umięśnienia, struktury nerwowe, narządy wydalnicze oraz szczecinki. Powtarzalność nie oznacza identyczności. Poszczególne odcinki pełnią odmienne funkcje, a przednia część ciała bywa wyraźnie wyspecjalizowana. W opisach anatomicznych rozróżnia się m.in. przedgębowy płat nazywany prostomium, okolicę otworu gębowego i tułów oraz tylną część określaną jako pygidium. U wielu gatunków strefa dodawania segmentów leży przed pygidium. [3]
Zewnętrzne pierścienie nie zawsze odpowiadają segmentom wewnętrznym w stosunku jeden do jednego. Jest to szczególnie ważne u pijawek, których powierzchnia może być wtórnie podzielona na drobniejsze pierścienie. Również siodełko dojrzałej dżdżownicy nie jest pojedynczym „dużym segmentem”: obejmuje zmodyfikowany obszar naskórka związany z rozrodem. Liczenie bruzd na przypadkowym zdjęciu rzadko wystarcza do odtworzenia rzeczywistego planu budowy. [1, 18, 28]
Szczecinki, nazywane też chetami, pomagają w kontakcie z podłożem, utrzymywaniu pozycji i ruchu; u poszczególnych form mają także inne funkcje. Nie są włosami w sensie budowy włosa ssaka. Powstają w strukturach naskórkowych i zawierają chitynę. Ich mikroskopijny kształt jest ważny w systematyce. Badania Platynereis dumerilii pokazały, jak komórka szczecinkotwórcza i komórki otaczające uczestniczą w formowaniu złożonej struktury chety. Nie wszystkie pierścienice mają jednak szczecinki. [1, 30]
Parapodia to nieczłonowane boczne wyrostki występujące u wielu form tradycyjnie zaliczanych do wieloszczetów. Mogą podtrzymywać szczecinki, wspomagać ruch i zwiększać powierzchnię wymiany gazowej. Nie są odpowiednikiem członowanych odnóży owada w sensie prostego podobieństwa budowy. U siodełkowców parapodiów brak, a u wielu pozostałych pierścienic są one zmniejszone lub przekształcone. Rozbudowane parapodia aktywnie poruszającego się wieloszczeta i krótkie szczecinki dżdżownicy reprezentują odmienne rozwiązania funkcjonalne. [3, 17]
Tabela 4. Podstawowe elementy budowy i najważniejsze wyjątki
| Element | Znaczenie funkcjonalne | Dlaczego potrzebne jest zastrzeżenie |
|---|---|---|
| Segmentacja | Lokalna kontrola ruchu i powtarzalność części narządów | Może być słabo widoczna albo wtórnie przekształcona. |
| Celoma | Przestrzeń wypełniona płynem; udział w hydraulice ciała | Stopień podziału przegrodami jest zmienny; u części form silnie zredukowana. |
| Szczecinki | Kontakt z podłożem, ruch, zakotwiczenie | Nie występują u każdej linii; różnią się liczbą i kształtem. |
| Parapodia | Ruch i inne funkcje wyrostków bocznych | Brak m.in. u Clitellata; nie są cechą wszystkich Annelida. |
| Układ krążenia | Transport substancji i często gazów oddechowych | Zamknięty u wielu form, lecz bywa nieobecny lub zmodyfikowany. |
| Pnie nerwowe | Przewodzenie sygnałów i koordynacja | Układ drabinkowy jest jednym z wariantów. |
| Nefrydia | Wydalanie i regulacja składu płynów | Rodzaj i rozmieszczenie zależą od gatunku oraz stadium życia. |
Źródła: [3, 17, 4, 31]. Tabela dotyczy funkcji i zmienności, nie listy cech obowiązkowych u każdego przedstawiciela.
Porównanie czterech organizacji ciała
Porównanie powinno zestawiać konkretne modele budowy, nie sugerować, że wszystkie wieloszczety lub wszystkie siodełkowce wyglądają jednakowo. U nereidowatych, takich jak Platynereis dumerilii, wyraźne parapodia i ich złożone szczecinki kontrastują z budową dżdżownicy. W tym pierwszym modelu parapodium ma część grzbietową, czyli notopodium, i brzuszną, czyli neuropodium; obie podpierają wewnętrzne szczecinki zwane acikulami. Nazwy określają położenie części wyrostka, a nie dwa osobne segmenty. [30]
Dżdżownica zachowuje wyraźną metamerię tułowia, ale nie ma podobnych bocznych wyrostków. Narządy rozrodcze i siodełko zajmują określone odcinki ciała; ich położenie ma znaczenie diagnostyczne. Do oznaczenia wielu dżdżownic potrzebny jest osobnik dojrzały, a samo ubarwienie i ogólny kształt nie wystarczają. Schemat z siodełkiem opisuje dojrzałą postać, nie wygląd każdego młodego osobnika. [32, 28]
Nawet wśród dżdżownic rozmieszczenie szczecinek nie jest identyczne. Australian Museum opisuje u niektórych przedstawicieli Megascolecidae układ otaczający segment, odmienny od ograniczonego zestawu spotykanego u dżdżownicowatych. Nie wystarczy zatem przenieść charakterystycznego przekroju Lumbricus na dowolną dużą dżdżownicę z innego kontynentu. Liczba i położenie szczecinek, porów rozrodczych oraz siodełka tworzą zestaw cech; ich znaczenie trzeba oceniać łącznie. [33]
Sformułowanie „pijawki nie mają szczecinek” wymaga określenia zakresu nazwy. W odniesieniu do pijawek właściwych jest przydatne, ale blisko spokrewnione Acanthobdellidae zachowują szczecinki z przodu ciała. ANNiKEY omawia je osobno i wskazuje również odmienną organizację przyssawki przedniej. To ważny przykład, w którym rozszerzenie potocznej nazwy na grupę krewniaczą zmienia prawdziwość pozornie prostej reguły. [1]
U sipunkulidów istotną częścią mechaniki jest introvert, czyli wciągana przednia część ciała. Badania rozwoju trzech gatunków wykazały powstawanie zawiązków czterech mięśni retraktorów oraz powiązanie ich organizacji z podłużnym umięśnieniem ściany ciała. Przypomina to, że zanik wyraźnej segmentacji powierzchni może współistnieć ze specjalizacją aparatu mięśniowego; nie jest po prostu utratą całej organizacji ciała. Wniosku o czterech zawiązkach rozwojowych nie należy zamieniać w twierdzenie o czterech mięśniach każdego dorosłego sipunkulida. [34]
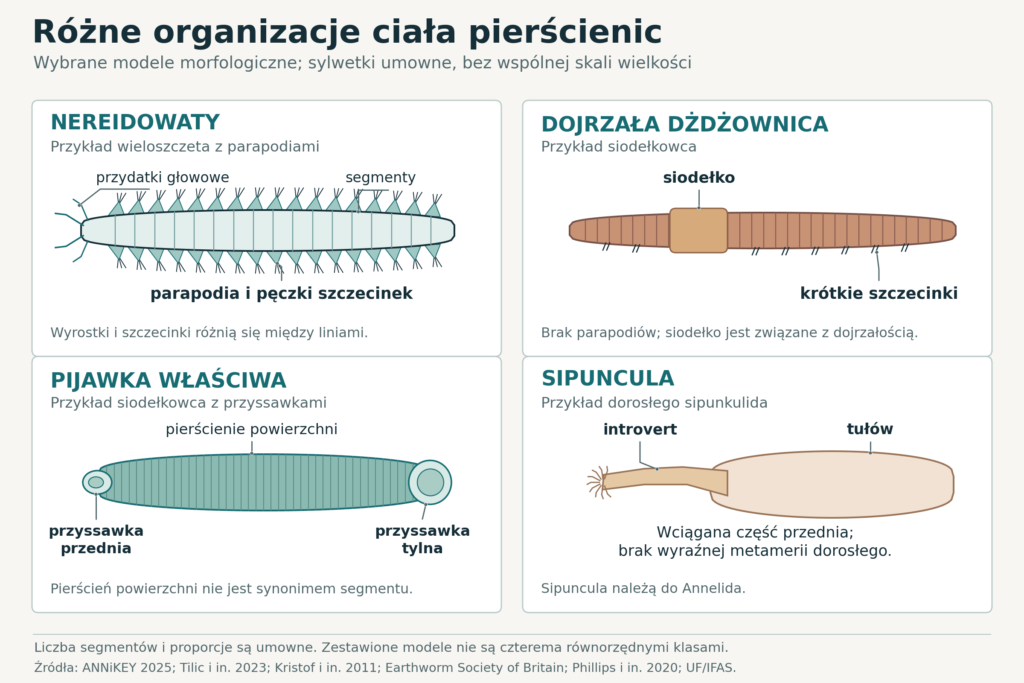
Tabela 5. Porównanie wybranych modeli budowy Annelida
| Model | Cechy powierzchni | Organizacja funkcjonalna | Ograniczenie porównania |
|---|---|---|---|
| Nereidowate: Platynereis | Segmenty, parapodia i pęczki szczecinek. | Dwie gałęzie parapodium; acikule zapewniają podparcie. [30] | Przykład konkretnej linii, nie wszystkich wieloszczetów. |
| Dżdżownice | Metameria, krótkie szczecinki; siodełko u dojrzałych. | Współdziałanie mięśni ściany ciała, płynu i kontaktu z podłożem. [32, 28, 35] | Cechy rozrodcze i ich położenie zależą od taksonu. |
| Pijawki właściwe | Drobniejsze pierścieniowanie, przyssawki; brak szczecinek. | Pełzanie lub pływanie z odmiennymi wzorcami ciśnienia wewnętrznego. [18, 36] | Nie utożsamiać z zachowującymi szczecinki Acanthobdellidae. |
| Sipuncula | Dorosłe bez wyraźnej metamerii; introvert. | Retraktory związane z podłużnym umięśnieniem ściany ciała. [34] | Pozornie jednolity tułów nie dowodzi braku segmentowanych przodków. [26] |
Zestawiono modele morfologiczne o różnym zakresie taksonomicznym. Nie są to cztery równorzędne klasy; pijawki należą do siodełkowców. Liczb segmentów i rozmiarów nie ujednolicono.
Regionalizacja i powstawanie nowych segmentów
Metameria może być homonomiczna, gdy kolejne odcinki są podobne, lub silnie zróżnicowana wzdłuż osi ciała. Regionalizacja oznacza wyodrębnienie obszarów o innej budowie lub zadaniach; nie usuwa segmentowej organizacji. Trzeba przy tym rozdzielić numer segmentu, nazwę regionu i granicę narządu. Jeden wyspecjalizowany obszar może obejmować wiele metamerów, a przewód pokarmowy przechodzi przez kolejne odcinki bez stawania się szeregiem oddzielnych jelit. [3, 17]
W opisach morfologicznych ważna jest także różnica między segmentem a chetigerem, czyli segmentem niosącym szczecinki. Jeżeli przednia część ciała zawiera odcinki bez szczecinek, „pierwszy chetiger” nie musi odpowiadać pierwszemu elementowi liczonemu według innej konwencji. Wiele pomyłek przy porównywaniu rycin wynika właśnie z pomieszania tych numeracji. Poprawny opis podaje, od jakiego punktu zaczyna liczenie i czy obejmuje okolice przedgębowe. [1]
Tylna strefa wzrostu nie wyjaśnia automatycznie powstawania wszystkich segmentów we wszystkich stadiach. Seaver, Thamm i Hill śledzili podziały komórek u Hydroides elegans oraz organizmu nazywanego wówczas Capitella sp. I. Segmenty larwalne powstawały z bocznie położonych pól proliferacji, natomiast późniejsze zwykle z tylnej strefy. U H. elegans cztery tylne segmenty regionu torakalnego (thorax) były wyjątkiem: wyniki wskazywały ich powstawanie w środkowej okolicy ciała. [37]
Badanie to zmienia sposób czytania schematu wzrostu. Strzałka przy końcu ciała może poprawnie przedstawiać określoną fazę życia, ale nie jest pełnym opisem embriogenezy. Należy też odróżniać obserwowany rozkład podziałów komórkowych od dowodu funkcji konkretnego genu. Łączenie obrazowania proliferacji, anatomii i ekspresji genów pozwala zawężać hipotezy, lecz pojedynczy typ danych nie zastępuje pozostałych. [27, 37]
Szczecinki jako struktury wytwarzane przez komórki
Szczecinka jest strukturą pozakomórkową powstającą we wpukleniu naskórka. U podstawy mieszka znajduje się komórka szczecinkotwórcza, chaetoblast, której mikrokosmki wyznaczają przestrzenny wzór odkładania materiału. Badania ultrastruktury Platynereis dumerilii pokazują, że zmiana liczby, układu i kształtu mikrokosmków uczestniczy w kształtowaniu trzonu, ząbków oraz ruchomej części szczecinki złożonej. Określenie „komórkowa drukarka 3D” jest tu metaforą procesu biologicznego, nie informacją o dosłownym drukowaniu. [30]
Ta sama analiza wykazała zmiany zestawu szczecinek w cyklu życia: inne postacie występują u larw, inne u osobników młodych i dorosłych, a postać rozrodcza przystosowana do pływania wytwarza duże szczecinki o łopatkowatym kształcie. Dlatego nietypowy pęczek na okazie nie musi oznaczać błędnej identyfikacji lub osobnego gatunku. Trzeba ustalić stadium życia, odcinek ciała i stan rozrodczy. Nie jest to jednak reguła mówiąca, że wszystkie pierścienice przechodzą taką samą przemianę. [30]
Klucz taksonomiczny może prowadzić do błędu także wtedy, gdy stosuje się go do materiału spoza zadeklarowanego zakresu. Autorzy ANNiKEY zastrzegają, że silnie przekształcone postacie rozrodcze niektórych wieloszczetów mogą nie odpowiadać standardowym diagnozom. Rozpoznanie powinno więc łączyć kilka cech; pojedyncza szczecinka, fotografia całego zwierzęcia albo informacja o środowisku nie zastępują kompletnego opisu okazu. [1]
Rozdział 5Ruch i szkielet hydrauliczny
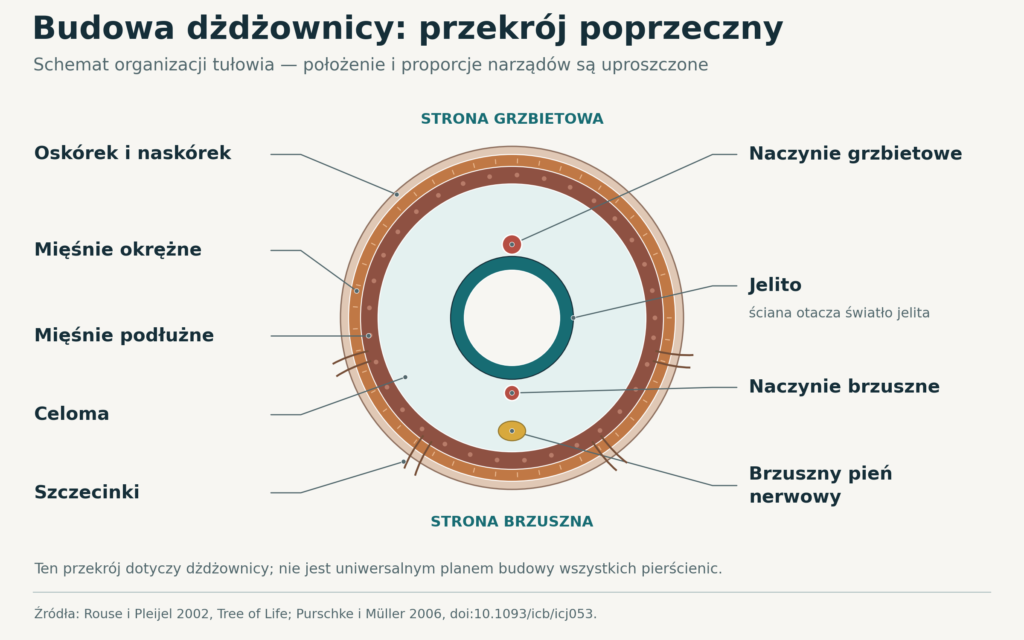
Dżdżownica może poruszać się bez sztywnego szkieletu, ponieważ mięśnie działają na ciało zawierające płyn o niewielkiej ściśliwości. W uproszczonym modelu odcinka o prawie stałej objętości zwężenie wymusza wydłużenie, a skrócenie towarzyszy poszerzeniu. Skurcz mięśni okrężnych sprzyja wydłużeniu odcinka, natomiast skurcz mięśni podłużnych jego skróceniu. Płyn przenosi siły, a ściana ciała ogranicza odkształcenia. Tak działa szkielet hydrauliczny, występujący również w wielu innych liniach zwierząt. [38]
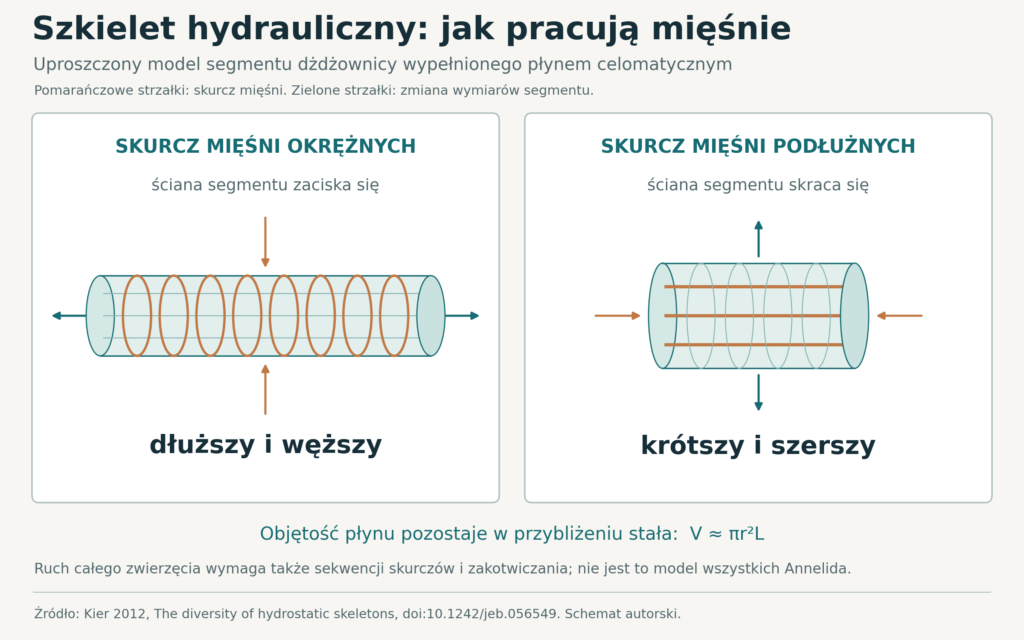
Sam skurcz nie wystarcza do ruchu naprzód. Potrzebny jest także kontakt z podłożem: część ciała utrzymuje pozycję, gdy inna się przesuwa. U dżdżownicy pomagają w tym szczecinki oraz skoordynowane zmiany napięcia mięśni. Przegrody między częściami celomy mogą ułatwiać lokalne sterowanie ciśnieniem. W gruncie dochodzi ponadto opór gleby, a warunki mechaniczne zmieniają się wraz z jej wilgotnością i strukturą. Model hydrauliczny wyjaśnia zasadę działania; nie wyznacza jednej prędkości przemieszczania się każdego gatunku. [17, 38, 28]
W obrębie typu istnieją inne sposoby lokomocji. Wieloszczety mogą pełzać, pływać z udziałem parapodiów, drążyć osad lub pracować wewnątrz rurki. Pijawki wykorzystują mięśnie i przyssawki, a część także pływa falując ciałem. Co więcej, u wielu wieloszczetów mięśnie podłużne tworzą pasma, a pełna warstwa mięśni okrężnych może być nieobecna. Dlatego obraz dwóch równych, ciągłych warstw mięśni należy odnosić do określonego modelu anatomicznego, nie do każdej pierścienicy. [17, 29, 18]
Współdziałanie celomy i tkanek podczas ruchu w podłożu
Celoma nie jest pustą przestrzenią ani jednolitym odpowiednikiem naczynia krwionośnego. U wielu pierścienic jej płyn uczestniczy w przenoszeniu sił, lecz przegrody, krezki i narządy zmieniają geometrię dostępnej przestrzeni. Dla mechaniki trzeba zatem osobno opisać jamę, właściwości ściany ciała oraz sposób ograniczania przepływu płynu. Sama etykieta „szkielet hydrauliczny” nie określa jeszcze, jak powstaje lokalne zgięcie albo jak zwierzę zachowuje kształt. [17, 38]
Przestrzeń celomatyczna może również pomieścić rozwijające się gamety, a jej powiązanie z przewodami wyprowadzającymi wymaga osobnego opisu. Przegrody mają konsekwencje mechaniczne także przy uszkodzeniu: ograniczają utratę płynu do części odcinków, podczas gdy słabiej podzielona jama może tracić większą część zawartości. Stopień redukcji celomy jest jednak znaczny u niektórych drobnych form i pijawek. Porównywanie samych wielkości jamy bez uwzględnienia budowy tkanek prowadziłoby więc do błędnego utożsamienia większej przestrzeni z automatycznie lepszą sprawnością ruchu. [17]
W najprostszym modelu cylindrycznym zależność objętości od promienia i długości pozwala wyjaśnić współzależność zwężania i wydłużania. Rzeczywisty ruch wymaga jednak również ustalenia, które odcinki ślizgają się po podłożu, które są zakotwiczone i jak zmienia się opór. W badaniu Quillin analizowano osobniki Lumbricus terrestris o masie 0,012–8,5 g. Szybsze pełzanie wiązało się przede wszystkim z dłuższym przemieszczeniem w jednym cyklu, a także ze zmianą częstotliwości cykli i czasu kontaktu. Jest to pomiar kinematyki badanego gatunku, nie uniwersalna prędkość „robaka”. [38, 35]
U pijawek różne zachowania mogą wytwarzać odmienne przebiegi ciśnienia. Wilson i współautorzy wprowadzali cewniki do jelita żywych zwierząt i rejestrowali zmiany podczas pełzania, skracania ciała i pływania. Jednoczesne pomiary w dwóch miejscach wskazały, że ciśnienie nie jest jednakowe wzdłuż całego ciała. Wynik wspiera interpretację funkcjonalnego podziału układu, ale nie uprawnia do narysowania wszędzie przegród anatomicznych takich jak w podręcznikowym modelu dżdżownicy. [36]
Podłoże także jest częścią układu mechanicznego. Dorgan i współautorzy wykazali, że wieloszczet opisany jako Nereis virens może przedłużać norę przez propagację szczeliny w spoistym, sprężystym materiale. Wysuwana gardziel działała jak klin; doświadczenia z żelatyną i analizą naprężeń ujawniały odkształcenia otoczenia. Autorzy podali siłę mniejszą niż jedna dziesiąta wartości potrzebnej zwierzęciu do napierania na sztywne ściany akwarium. To porównanie określonych warunków mechanicznych, nie procent oszczędności energetycznej w każdym osadzie. [39]
Przy czytaniu doświadczeń należy rozdzielać kinematykę, czyli opis ruchu, od pomiaru sił i energetyki. Film pozwala wyznaczyć przemieszczenie oraz częstotliwość cykli, ale nie dostarcza samodzielnie kosztu metabolicznego. Pomiar ciśnienia pokazuje warunki mechaniczne, lecz sam także nie wyznacza zużycia energii przez zwierzę. Wymienione badania odpowiadają zatem na uzupełniające się pytania, a ich wyników nie należy układać w jeden pozornie ilościowy ranking sprawności pierścienic. [39, 35, 36]
Tabela 6. Trzy doświadczenia, trzy różne pytania o lokomocję
| Badanie | Co mierzono lub obserwowano | Wniosek i ograniczenie |
|---|---|---|
| Quillin 1999; Lumbricus terrestris | Ruch i zmiany kształtu osobników o masie 0,012–8,5 g. | Rozmiar i sposób wykonania cyklu wpływają na prędkość; nie wyznaczono stałej dla wszystkich dżdżownic. [35] |
| Wilson i in. 1996; pijawki | Ciśnienie rejestrowane cewnikami podczas różnych zachowań. | Ciśnienie zmienia się w czasie i wzdłuż ciała; funkcjonalny podział nie dowodzi przegród jak u dżdżownicy. [36] |
| Dorgan i in. 2005; Nereis virens | Przedłużanie szczeliny i pole naprężeń podczas drążenia. | Mechanika materiału otaczającego zwierzę zmienia siły; wynik nie opisuje dowolnego piasku czy gleby. [39] |
Wyniki nie są jednym rankingiem sprawności. Dotyczzą różnych organizmów, podłoży i wielkości fizycznych; masy, ciśnienia i siły nie mogą być ze sobą utożsamiane.
Rozdział 6Wymiana gazowa i transport substancji
Wymiana gazowa zachodzi przez powierzchnię ciała albo wyspecjalizowane struktury, takie jak skrzela. U dżdżownic istotna jest wilgotna powierzchnia skóry, przez którą tlen może przenikać do wnętrza. Zależność od wilgoci nie oznacza, że każda ilość wody jest korzystna: woda uboga w tlen ogranicza oddychanie. W środowisku wodnym znaczenie mają także przepływ i odnawianie wody przy powierzchni oddechowej. Wentylowanie nory może więc służyć jednocześnie zwierzęciu i zmieniać warunki chemiczne osadu. [17, 16, 40]
U wielu pierścienic krew krąży w naczyniach, a transport wspomagają kurczliwe odcinki układu. Szkolne opisy dżdżownicy zwykle pokazują naczynie grzbietowe, naczynie brzuszne i połączenia między nimi. Nie należy z tego tworzyć uniwersalnego zestawu „serc” dla całego typu. U części małych form brak wyodrębnionego układu krwionośnego; u pijawek stosunki między naczyniami a kanałami celomatycznymi mogą być głęboko przekształcone. Płyn celomatyczny i krew są odmiennymi składnikami organizacji ciała, choć oba uczestniczą w transporcie. [17]
Pierścienice mają zróżnicowane białka wiążące tlen, w tym hemoglobiny występujące wewnątrz komórek lub poza nimi. Badanie sekwencji z 250 transkryptomów wykazało złożoną historię genów globin i ujawniło dodatkowe ich typy. Nie wynika z tego, że każda pierścienica posiada wszystkie te białka. Również barwa ciała nie jest prostą wskazówką, jakiego barwnika oddechowego używa zwierzę: zależy od wielu tkanek i pigmentów, a krew może być słabo widoczna. [41]
Nefrydia uczestniczą w usuwaniu produktów przemiany materii oraz utrzymywaniu składu płynów. W modelu metanefrydium orzęsiony lejek otwiera się do celomy, a kanalik prowadzi ku ujściu na zewnątrz; po drodze skład płynu ulega modyfikacji. U larw i drobnych form spotyka się protonefrydia o innej organizacji. Badania rozwoju Platynereis dumerilii wykazały następowanie po sobie trzech zespołów nefrydiów. To mocny argument, by nie redukować wydalania u wszystkich Annelida do hasła „jedna identyczna para narządów w każdym segmencie”. [31]
Osmoregulacja, czyli kontrola gospodarki wodnej i stężenia rozpuszczonych substancji, nabiera szczególnego znaczenia na granicy wód słodkich, słonawych i morskich. Zasolenie wpływa na kierunek wymiany wody i jonów między ciałem a środowiskiem. Tolerancje poszczególnych gatunków są różne, dlatego obecność pierścienic w ujściu rzeki nie dowodzi, że dowolnego morskiego gatunku można przenieść do wody słodkiej. Szeroki zasięg całego typu powstał dzięki wielokrotnym zmianom przystosowań w różnych liniach. [16]
Rozdział 7Układ nerwowy i odbiór bodźców
Pierścienice odbierają bodźce mechaniczne, chemiczne i świetlne, lecz rozbudowa poszczególnych zmysłów zależy od trybu życia. Aktywny mieszkaniec dna morskiego może wykorzystywać oczy i wyrostki czuciowe, podczas gdy zwierzę stale ukryte w osadzie reaguje przede wszystkim na bodźce dostępne w bezpośrednim otoczeniu. W przedniej części ciała wielu gatunków znajduje się skupienie tkanki nerwowej określane jako mózg; łączy się ono z podłużnymi częściami układu nerwowego. Rysunek jednej drabinki z identycznym zwojem w każdym segmencie pokazuje jedynie wybrany wariant. [3, 4]
Porównawcze badania wykazały, że drabinkowy układ brzusznych pni nerwowych powstawał w ewolucji pierścienic niezależnie więcej niż raz. Różne są także położenie pni względem naskórka i stopień koncentracji komórek nerwowych. Uproszczenie „pierścienice mają zawsze układ drabinkowy” usuwa zatem informację biologicznie istotną. Anatomia porównawcza pozwala odróżniać podobieństwo odziedziczone po wspólnym przodku od podobieństwa powstałego niezależnie. [4]
Zachowanie pierścienic obejmuje poszukiwanie pokarmu, wybór kryjówki, reakcje ucieczkowe, wentylowanie nor i zachowania rozrodcze. U Platynereis dumerilii badane są m.in. rytmy dobowe i miesięczne związane z warunkami oświetlenia. Ten model pozwala łączyć obserwację zachowania z analizą komórek i genów. Sama reakcja ruchowa nie mówi jednak wszystkiego o jej znaczeniu: cofnięcie ciała może być odpowiedzią na światło, dotyk lub zmianę chemiczną, zależnie od sytuacji i gatunku. [11]
Jak światło staje się informacją i steruje zachowaniem
U larwy Platynereis dumerilii można prześledzić związek między odbiorem światła a konkretnym ruchem. Wczesne plamki oczne zawierają fotoreceptor i komórkę barwnikową, która zacienia go zależnie od kierunku oświetlenia. Taki układ rozpoznaje kierunek padania światła, choć nie tworzy obrazu otoczenia. W doświadczeniach wybiórcze oświetlenie jednej plamki zmieniało pracę sąsiednich rzęsek. Bezpośrednie połączenie cholinergiczne między fotoreceptorem a aparatem rzęskowym pozwalało przekształcić bodziec w lokalną zmianę przepływu wody. Obracanie ciała podczas śrubowego pływania dostarczało kolejnych próbek kierunku światła; model ruchu pokazał, jak te lokalne odpowiedzi mogą skierować larwę ku źródłu. To mechanizm fototaksji, czyli ukierunkowanego ruchu względem światła. [42]
Dalsze badania ujawniły współdziałanie dwóch klas fotoreceptorów: rabdomerycznych w oczach oraz rzęskowych w mózgu larwy. Bodziec nadfioletowy uruchamiał pływanie w dół, a odpowiedź ta zanikała po wyłączeniu genu badanej opsyny rzęskowej. Unikanie UV mogło przeważyć nad dodatnią fototaksją. W mieszaninach światła UV i niebieskiego kierunek pływania zależał od ich proporcji. Ponieważ składowe widma są różnie tłumione w wodzie, autorzy zaproponowali funkcję widmowego wskaźnika głębokości. Jest to interpretacja łącząca doświadczenia laboratoryjne z fizyką światła w morzu, nie pomiar głębokości wyrażony przez zwierzę w metrach. Odkrycie pokazuje, że nawet niewielka larwa integruje bodźce przez powiązane obwody nerwowe, a sama obecność oka nie wyczerpuje jej zdolności odbierania światła. [43]
Rozdział 8Odżywianie i sieci pokarmowe
U większości pierścienic przewód pokarmowy prowadzi od otworu gębowego do odbytu, lecz jego poszczególne części różnią się budową i funkcją. W znanym modelu dżdżownicy pokarm przechodzi przez gardziel i przełyk do wola, służącego magazynowaniu, następnie do umięśnionego żołądka rozcierającego oraz jelita, gdzie zachodzą trawienie i wchłanianie. Taka regionalizacja oddziela pobieranie, obróbkę i wykorzystanie pokarmu. Nie każdy gatunek ma identyczny zestaw i proporcje odcinków; skrajnym wyjątkiem od posiadania funkcjonalnego przewodu pokarmowego jest dorosła Riftia, opisana w rozdziale 14. [17, 44, 33]
Pierścienice zajmują różne poziomy sieci pokarmowej. Część pobiera materiał bogaty w detrytus, czyli martwą materię organiczną; część połyka osad wraz z mikroorganizmami i drobnymi cząstkami pokarmowymi. Inne wychwytują zawiesinę z wody, zjadają żywe zwierzęta albo wykorzystują gospodarzy. U wielu gatunków dieta jest elastyczna i zależy od dostępności zasobów. Podział na „drapieżnika” i „detrytusożercę” bywa więc użyteczny, ale nie zawsze opisuje całe zachowanie pokarmowe konkretnego organizmu. [1, 16, 18, 45]
Dżdżownice nie odżywiają się samymi minerałami, choć wraz z pokarmem mogą połykać duże ilości gleby. W pobranym materiale znajdują się szczątki organiczne, mikroorganizmy i związki, które mogą zostać wykorzystane po trawieniu. Rozdrobnienie, przejście przez przewód pokarmowy i wydalanie zmieniają rozmieszczenie materiału oraz warunki działania mikroorganizmów. Ostateczna szybkość rozkładu zależy jednak od całego zespołu organizmów, rodzaju resztek i środowiska. Sformułowanie „dżdżownice tworzą glebę” opisuje ich udział w procesie, nie wyłączną odpowiedzialność za powstanie gleby. [46, 28]
Tabela 7. Strategie odżywiania pierścienic
| Strategia | Przykład | Co rzeczywiście jest wykorzystywane |
|---|---|---|
| Pobieranie materii ze ściółki i gleby | Dżdżownice o różnych strategiach ekologicznych | Materiał organiczny i związane z nim mikroorganizmy; udział gleby w pobranym materiale bywa duży. |
| Połykanie osadu | Arenicola marina | Frakcje pokarmowe znajdujące się w osadzie. |
| Pobieranie zawiesiny i elastyczna dieta | Hediste diversicolor | Cząstki zawiesiny zatrzymywane w sieci śluzowej, detrytus oraz inne zwierzęta. |
| Drapieżnictwo | Liczne wieloszczety i część pijawek | Żywe bezkręgowce; zakres ofiar zależy od gatunku. |
| Krwiopijność | Część pijawek, w tym Hirudo medicinalis | Krew kręgowców; nie jest to dieta wszystkich pijawek. |
| Chemosymbioza | Riftia pachyptila | Związki organiczne powstające dzięki aktywności bakterii symbiotycznych. |
| Wykorzystywanie kości | Osedax | Materia organiczna kości, udostępniana przy udziale specjalizacji zwierzęcia i symbiontów. |
Źródła: [44, 47, 13, 48, 18, 40, 45, 46, 28]. Kategorie mogą się nakładać; nie są podziałem systematycznym.
Pierścienice są również pokarmem innych zwierząt. Ich związek z osadem lub glebą włącza materię z tych środowisk do szerszych sieci troficznych. Dla oceny ekologicznej znaczenie mają nie tylko liczba osobników, lecz także ich rozmiary, dostępność dla drapieżników i aktywność w danym sezonie. Zespół złożony z wielu bardzo małych osobników może mieć inną biomasę i rolę niż zespół z kilkoma dużymi dżdżownicami. To jeden z powodów, dla których badania mierzą kilka parametrów równocześnie. [40, 45, 14]
Rozdział 9Rozród i rozwój
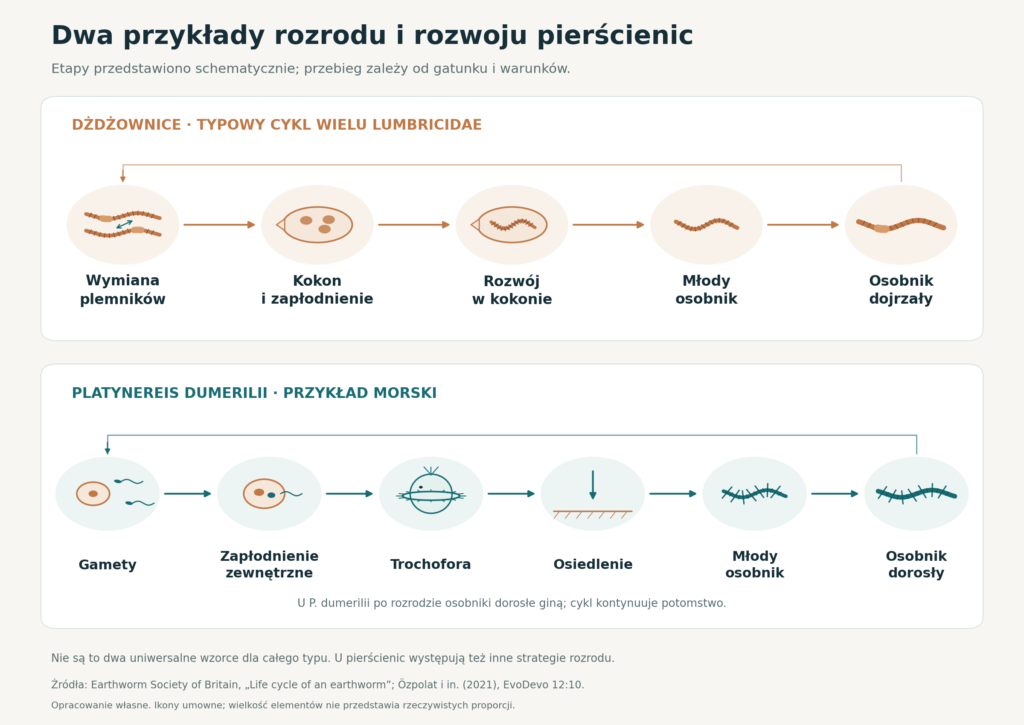
W Annelida występują rozdzielnopłciowość, obojnactwo oraz rozmaite formy rozmnażania bezpłciowego. Nie ma jednego cyklu życiowego obowiązującego cały typ. Różnice dotyczą miejsca zapłodnienia, ochrony zarodków, występowania larwy, liczby epizodów rozrodczych i zdolności do podziału ciała. Te cechy wiążą się z historią danej linii i warunkami środowiska. Dla zrozumienia grupy lepiej porównać kilka rzeczywistych cykli niż zapamiętywać jeden schemat jako uniwersalny. [16, 11, 32, 49]
Dżdżownice i rola siodełka
Wiele dżdżownic jest jednoczesnymi obojnakami: dojrzały osobnik ma męskie i żeńskie narządy rozrodcze. Typowy rozród obejmuje wymianę plemników między partnerami i ich przechowywanie. Siodełko wydziela materiał tworzący osłonkę kokonu, do którego trafiają jaja oraz plemniki; zachodzi zapłodnienie i rozwój zarodkowy. Z kokonu wychodzą młode osobniki przypominające ogólną budową dorosłe, bez wolno żyjącej trochofory. Dojrzałe siodełko pojawia się później. Liczba potomstwa i czas rozwoju zależą od gatunku oraz warunków. [32]
Obojnactwo nie oznacza automatycznie rutynowego samozapłodnienia. Wymiana materiału rozrodczego z partnerem może współistnieć z innymi strategiami, a u niektórych dżdżownic opisano także partenogenezę. Badania rodzaju Eisenia dokumentują możliwość samozapłodnienia w określonych układach hodowlanych. Dlatego oba kategoryczne zdania, „wszystkie dżdżownice zapładniają się same” i „żadna dżdżownica nie może tego zrobić”, są błędnymi uogólnieniami. [50, 32]
Larwy i rozwój w morzu
U wielu pierścienic morskich występuje larwa trochofora, wyposażona w pasma rzęsek uczestniczące w ruchu. Larwa i dorosły osobnik mogą wykorzystywać różne części środowiska. U Platynereis dumerilii gamety trafiają do wody, rozwija się pływająca larwa, a następnie młody osobnik przechodzi do życia przy dnie. Dojrzewaniu towarzyszy przebudowa ciała związana z rozrodem. Opisany cykl tego gatunku jest ważnym modelem badawczym, ale nie dowodzi, że wszystkie morskie pierścienice przechodzą identyczne etapy. [11]
Sposoby ochrony potomstwa są zróżnicowane. U Arenicola marina jaja i wczesne larwy rozwijają się w norze samicy. W innych liniach występują kokony, inkubacja albo różne sposoby uwalniania larw. Pływające stadium może pomagać w rozsiedlaniu, lecz jego obecność sama w sobie nie wyznacza zasięgu gatunku: znaczenie mają prądy, czas trwania stadium, przeżywalność i dostępność odpowiedniego dna. Rozwój bez pelagicznej larwy także nie oznacza całkowitego braku możliwości rozprzestrzeniania. [16, 40]
Tabela 8. Porównanie wybranych sposobów rozrodu
| Cecha | Wiele dżdżownic Lumbricidae | Platynereis dumerilii | Lumbriculus variegatus |
|---|---|---|---|
| Organizacja rozrodu | Jednoczesne obojnactwo | Rozdzielnopłciowość | W wielu hodowlach dominuje rozmnażanie bezpłciowe |
| Ważny etap | Wymiana plemników i kokon | Uwolnienie gamet do wody | Fragmentacja i odtworzenie brakujących części |
| Rozwój młodych | W kokonie, bez wolno żyjącej trochofory | Z pływającą larwą i przejściem do życia przy dnie | Z istniejącego fragmentu ciała w rozrodzie bezpłciowym |
| Granica uogólnienia | Nie wszystkie gatunki mają identyczną strategię | Opis dotyczy konkretnego modelowego gatunku | Nie przenosić zdolności na dżdżownicę Lumbricus terrestris |
Źródła: [11, 50, 32, 49]. Tabela porównuje określone przykłady i nie opisuje wszystkich populacji ani warunków hodowli.
Etapy cyklu życiowego i przemiana rozrodcza
Opisując cykl życiowy, trzeba oddzielić postać organizmu, sposób rozwoju i przemianę związaną z rozmnażaniem. Trochofora to stadium larwalne o określonej organizacji, rozwój bezpośredni oznacza brak odrębnej, wolno żyjącej larwy, natomiast epitokia jest specjalizacją dojrzałego lub dojrzewającego zwierzęcia do rozrodu. Te terminy nie tworzą trzech konkurencyjnych cykli. Ten sam P. dumerilii może najpierw przejść rozwój larwalny, następnie długo rosnąć przy dnie, a dopiero później ulec epitokicznej przebudowie. Zestawienie takich etapów na jednej osi czasu wymaga zaznaczenia, że dotyczą różnych części historii życia. [11, 32, 51]
Atlas rozwoju P. dumerilii z 2010 r. wyróżnił 16 stadiów, od zygoty do końca życia osobnika po rozrodzie. Do ich rozpoznawania wykorzystano cechy takie jak pojawianie się pasm rzęskowych, szczecinek i parapodiów oraz rozpoczęcie odżywiania. Jest to dokładniejsze kryterium porównania doświadczeń niż sam wiek w godzinach. Tempo zmian zależy bowiem od temperatury, a larwy o tym samym wieku chronologicznym mogą znajdować się w różnych stadiach. W tej klasyfikacji po trochoforze następują stadia metatrochofory i nektochaety; rozwija się segmentowany tułów, a parapodia uczestniczą w pływaniu i pełzaniu. Nazwy te opisują rozpoznawalne etapy konkretnego modelu, nie obowiązkową sekwencję wszystkich Annelida. [51]
Epitokia u P. dumerilii zmienia możliwości ruchowe i sensoryczne zwierzęcia: przebudowie ulegają m.in. parapodia, szczecinki i oczy. Osobnik przystosowany do życia przy dnie staje się zdolny do aktywnego udziału w rojeniu rozrodczym. U tego gatunku przemiana obejmuje osobnika, a po jednorazowym rozrodzie dorosłe giną. Larwalne przejście do życia przy dnie i późniejsza przemiana epitokiczna pełnią zatem odmienne funkcje. Rozdzielenie ich w opisie zapobiega utożsamianiu każdego rodzaju metamorfozy z jednym momentem cyklu. Podobnie rozwój młodej dżdżownicy w kokonie nie oznacza osiągnięcia dojrzałości płciowej w chwili wyklucia. [11, 32]
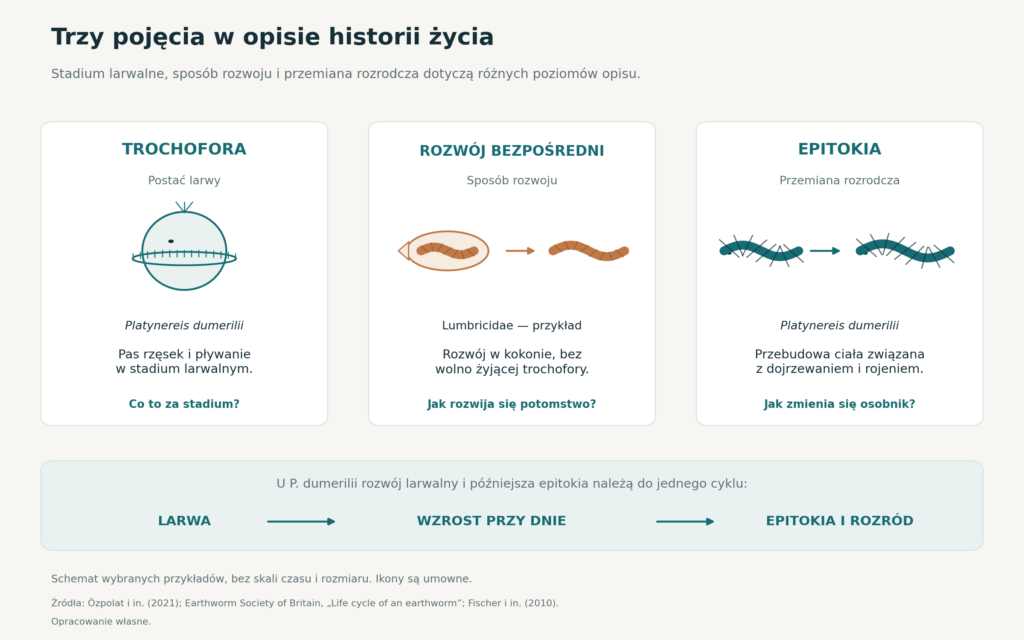
Tabela 9. Trochofora, rozwój bezpośredni i epitokia — co właściwie porównujemy
| Pojęcie | Poziom i przykład | Znaczenie biologiczne i granica uogólnienia |
|---|---|---|
| Trochofora | Postać larwy; m.in. Platynereis dumerilii. | Rzęski uczestniczą w pływaniu. Sama nazwa larwy nie określa długości jej życia ani strategii odżywiania wszystkich gatunków. [11, 51] |
| Rozwój bezpośredni | Sposób rozwoju; wiele dżdżownic Lumbricidae rozwijających się w kokonie. | Młody osobnik opuszcza kokon bez wolno żyjącej trochofory. Nadal rośnie i dojrzewa; brak larwy pelagicznej nie oznacza braku rozwoju zarodkowego. [32] |
| Epitokia | Przemiana związana z rozrodem; przykład P. dumerilii. | Przebudowa sprzyja pływaniu i rojowi rozrodczemu. Zachodzi później niż stadium larwalne i nie jest uniwersalną cechą pierścienic morskich. [11] |
Porównano trzy pojęcia z różnych poziomów opisu. Obecność trochofory i późniejsza epitokia mogą dotyczyć tego samego gatunku.
Jak organizm synchronizuje dojrzewanie
U P. dumerilii wykazano współistnienie endogennego zegara dobowego i zegara o okresie zbliżonym do miesiąca księżycowego. Ten drugi można synchronizować słabym nocnym oświetleniem. W badaniu z 2013 r. zsynchronizowane cykle dojrzewania utrzymywały się również po usunięciu okresowego sygnału nocnego. To istotne kryterium: rytm wytwarzany wewnętrznie różni się od natychmiastowej reakcji zwierzęcia na zapalenie lampy. Farmakologiczne zaburzenie badanych oscylacji dobowych nie zniosło cyklu miesięcznego. Wskazuje to na odrębność mechanizmów, chociaż ich działanie jest powiązane: faza cyklu miesięcznego wpływała także na parametry aktywności dobowej. [52]
Badania kryptochromu L-Cry dostarczyły molekularnego wyjaśnienia części tej synchronizacji. Oczyszczone białko poddane oświetleniu naśladującemu światło dzienne lub księżycowe przyjmowało odmienne stany związane z reakcjami jego kofaktora FAD. Znaczenie miały natężenie i czas ekspozycji, a nie tylko fakt obecności fotonów. W organizmie stany te wiązały się z różnym rozmieszczeniem białka w komórkach. Autorzy przedstawili L-Cry jako element pozwalający rozróżniać znaczenie sygnałów świetlnych przy synchronizacji oscylatora miesięcznego. Zidentyfikowanie takiego czujnika nie jest jeszcze pełnym opisem wszystkich elementów zegara. W doświadczeniach trzeba więc kontrolować również warunki oświetlenia, a nie wyłącznie porę pobrania próbki. [53]
Praktyczną konsekwencją dla biologii rozrodu jest możliwość oddzielenia trzech pytań: czy osobnik osiągnął dojrzałość, w jakiej fazie cyklu miesięcznego ją osiąga i o jakiej porze wykazuje aktywność. Ich mieszanie może przesłonić wpływ bodźca środowiskowego. Wyniki opisanych doświadczeń dotyczą P. dumerilii i określonych warunków hodowli; nie dostarczają podstaw do przypisywania wszystkim dżdżownicom lub pijawkom jednakowego kalendarza rozrodu. [11, 52, 53]
Rozdział 10Regeneracja i rozmnażanie przez podział
Regeneracja oznacza odtwarzanie utraconych struktur, ale jej zakres bywa bardzo różny. Zabliźnienie rany, odtworzenie kilku segmentów tylnych i odbudowa całego przedniego końca to odmienne zdolności. Wśród pierścienic spotyka się zarówno formy o rozległej regeneracji, jak i takie, u których regeneracja segmentalna jest bardzo ograniczona. O wyniku decydują gatunek, miejsce uszkodzenia, zachowane narządy i stan organizmu. Zdolność jednej linii nie jest bezpieczną prognozą dla innej. [12]
Popularne twierdzenie, że z przeciętej dżdżownicy powstaną dwie pełne dżdżownice, nie opisuje ogólnej prawidłowości. Nie wolno jednak zastępować go stwierdzeniem, że żadna pierścienica nie odtwarza głowy. Wodny Lumbriculus variegatus jest modelem regeneracji obu końców i rozmnażania przez podział. Nie jest to Lumbricus terrestris; podobne nazwy rodzajowe nie oznaczają identycznej biologii. Rozród przez podział jest kontrolowanym elementem historii życiowej określonych organizmów, a nie prostą konsekwencją każdego przypadkowego uszkodzenia. W badaniach pod nazwą Lumbriculus variegatus występują przy tym zróżnicowane linie, dlatego identyfikacja i pochodzenie hodowli mają znaczenie dla porównywania wyników. [12, 49]
Badania nad Eisenia fetida śledziły zmiany aktywności genów podczas odtwarzania tylnych części ciała. Analizowano materiał m.in. w 15., 20. i 30. dniu po amputacji, co pozwalało porównywać fazy procesu. Takie daty są punktami pobrania próbek w jednym doświadczeniu, nie uniwersalnym kalendarzem gojenia. Z badań modelowych wynika przede wszystkim możliwość identyfikowania procesów komórkowych i molekularnych: zamykania rany, namnażania komórek, różnicowania i przywracania organizacji tkanek. [54]
Regeneracja wymaga także współdziałania części nowo powstających z tymi, które przetrwały. Organizm musi przywrócić ciągłość układu nerwowego, przewodu pokarmowego i innych struktur. Dlatego prosty opis „odrasta ogon” nie oddaje całego zadania biologicznego. Porównywanie gatunków o różnej zdolności regeneracji pomaga stawiać pytania o to, które mechanizmy zostały zachowane, przekształcone lub utracone w ewolucji. Nie jest natomiast podstawą do prostego przenoszenia wyników na regenerację narządów człowieka. [12, 54, 49]
Od odpowiedzi na ranę do odbudowy osi ciała
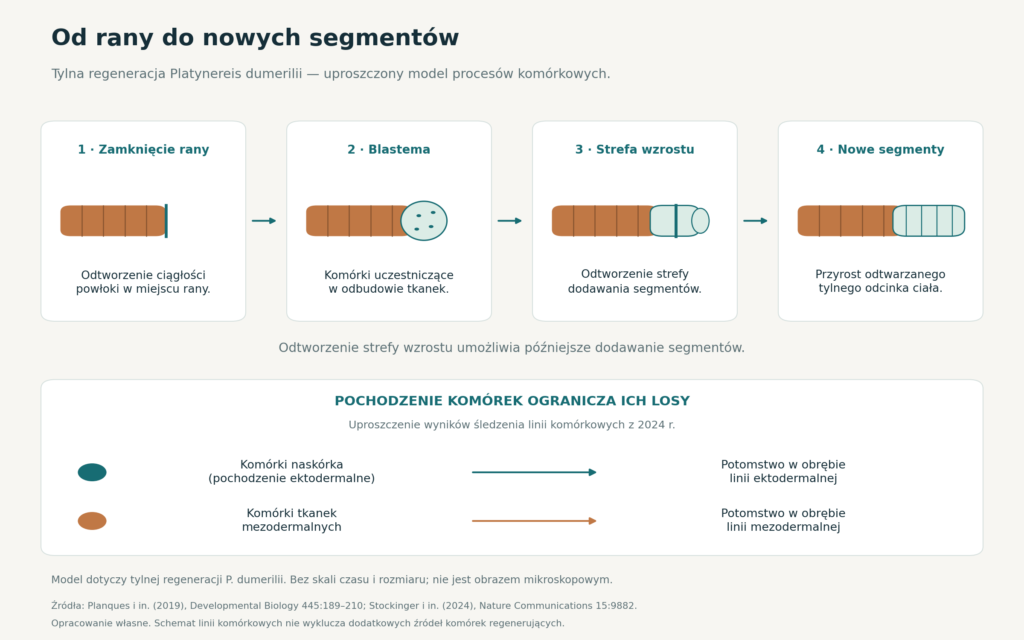
Regenerację można analizować jako serię różnych zadań komórkowych. Najpierw powłoka musi odzyskać ciągłość, następnie należy wytworzyć i rozmieścić nowe tkanki, odtworzyć ich połączenia oraz przywrócić funkcję. Blastema to skupienie komórek uczestniczących w odbudowie, często intensywnie się dzielących. Sama obecność takiego skupienia nie dowodzi, że każda jego komórka potrafi utworzyć wszystkie tkanki. Potencjał komórki, jej pochodzenie i końcowy los są odrębnymi właściwościami. Dlatego obraz mikroskopowy regenerującego fragmentu nie wystarcza do wyjaśnienia mechanizmu odnowy całego zwierzęcia. [12, 55]
W doświadczeniach nad tylną regeneracją P. dumerilii odtwarzany jest tylny koniec oraz strefa, która następnie produkuje nowe segmenty. Odbudowa tej strefy i przyrost kolejnych segmentów są powiązanymi, lecz rozróżnialnymi procesami. Badanie z 2019 r. wykazało intensywne podziały komórek i ich konieczność dla prawidłowego przebiegu regeneracji. Dzięki temu można badać, które reakcje jedynie towarzyszą uszkodzeniu, a które są potrzebne do dalszej odbudowy. Wynik odnosi się do regeneracji tylnej części badanego modelu; nie oznacza, że dowolny odcięty fragment odtworzy głowę. [56]
W 2024 r. połączono analizę RNA pojedynczych komórek z mozaikowym znakowaniem transgenicznym. Pierwsza metoda ujawniła stany aktywności komórek, druga pozwoliła śledzić pochodzenie ich potomstwa. Wyniki wspierają udział odróżnicowania, czyli częściowego cofnięcia specjalizacji komórek w pobliżu rany. Wskazały też odrębny wkład naskórka i tkanek mezodermalnych oraz ograniczenia losów potomnych komórek związane z ich pochodzeniem. Ten obraz jest bardziej precyzyjny niż hasło o jednej puli „uniwersalnych komórek macierzystych”. Autorzy pozostawiają jednak możliwość udziału dodatkowych, dotąd nierozpoznanych komórek; proponowany model nie zamyka wszystkich pytań o źródła blastemy. [55]
Rozróżnienie metod ma znaczenie również przy interpretacji badań Eisenia fetida. Zmiana ilości RNA wskazuje, że dany proces może uczestniczyć w regeneracji, ale sama nie rozstrzyga o funkcji genu. Silniejszy wniosek wymaga dodatkowych danych, np. kontrolowanego zaburzenia funkcji, śledzenia komórek i oceny odtworzonych tkanek. Natomiast w badaniach Lumbriculus trzeba uwzględniać reorganizację zachowanych części organizmu i odzyskiwanie ich funkcjonalnej współpracy. Regeneracja nie sprowadza się do dopisania kilku identycznych segmentów na końcu niezmienionego ciała. [54, 49, 56, 55]
Tabela 10. Co naprawdę wykazuje obserwacja regeneracji
| Obserwacja lub metoda | Uzasadniony wniosek | Czego sama nie rozstrzyga |
|---|---|---|
| Zamknięcie rany | Przywracana jest ciągłość uszkodzonej powłoki. | Nie dowodzi odtworzenia narządów ani pełnej sprawności. [12] |
| Podziały komórek w blastemie | Komórki zwiększają liczebność podczas odbudowy. | Nie określa ich pochodzenia ani zakresu możliwego różnicowania. [12, 56] |
| Zmiany ekspresji RNA | Wskazują procesy i populacje komórkowe reagujące na uszkodzenie. | Nie dowodzą samodzielnie konieczności ani wystarczalności działania genu. [54, 55] |
| Śledzenie potomstwa znakowanych komórek | Ujawnia ich wkład w określone odtwarzane tkanki. | Wniosek pozostaje ograniczony do znakowanych populacji, miejsca uszkodzenia i badanego gatunku. [55] |
Tabela rozdziela rodzaj dowodu od zakresu wniosku. Ocena pełnej regeneracji wymaga uwzględnienia anatomii i funkcji organizmu.
Rozdział 11Środowiska życia i przystosowania
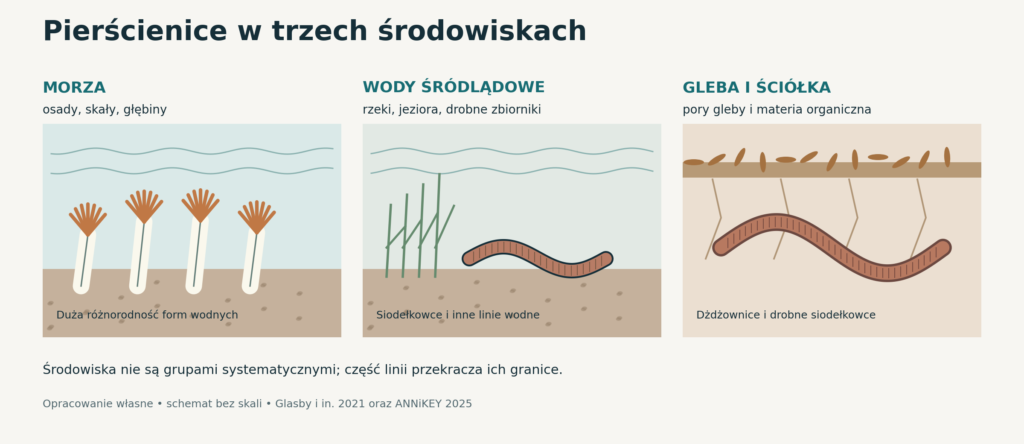
Morza obejmują ogromne zróżnicowanie siedlisk pierścienic: skały porośnięte organizmami, łąki podwodne, osady piaszczyste i muliste, przestrzenie między ziarnami osadu, głębokie dno oraz środowiska związane z emisją związków chemicznych. Niektóre formy żyją w rurkach, inne przemieszczają się swobodnie lub zagrzebują. Rozmiar ziaren, natlenienie, dostępność materii organicznej i energia falowania mogą silnie różnicować warunki na niewielkiej odległości. Samo określenie „gatunek morski” jest więc bardzo szeroką informacją ekologiczną. [1, 16, 40, 45]
W wodach śródlądowych pierścienice zasiedlają osady, roślinność i inne powierzchnie. Występują tu zarówno drobne siodełkowce, jak i pijawki o różnych strategiach pokarmowych. Część gatunków toleruje niedobór tlenu lub wysoką zawartość materii organicznej; inne wymagają bardziej ograniczonego zestawu warunków. Nie można zatem interpretować obecności dowolnej pierścienicy jako dowodu zanieczyszczenia. Do oceny jakości środowiska potrzebne jest rozpoznanie organizmów i ich wymagań, a nie sama nazwa typu. [16, 18]
Na lądzie wiele pierścienic korzysta z wilgotnych mikrosiedlisk gleby i ściółki. Warstwa opadłych liści, pory glebowe i korytarze ograniczają bezpośrednie działanie światła oraz gwałtownych zmian warunków. Aktywność powierzchniowa jest tylko fragmentem ich życia. Niewielka liczba osobników widocznych na powierzchni nie musi oznaczać ubogiej populacji, podobnie jak nagłe pojawienie się zwierząt po deszczu nie stanowi pomiaru całkowitego zagęszczenia. Metoda obserwacji decyduje o tym, którą część zespołu widzimy. [14, 46, 28]
Tabela 11. Środowisko a wybrane wyzwania biologiczne
| Środowisko | Ważne warunki | Przykładowe rozwiązania |
|---|---|---|
| Gleba i ściółka | Wilgotność, pokarm, opór mechaniczny podłoża | Korytarze, zróżnicowana głębokość aktywności, wykorzystanie resztek. |
| Osady wód śródlądowych | Tlen, materia organiczna, zmiany poziomu wody | Zróżnicowana tolerancja fizjologiczna i zachowania oddechowe. |
| Strefa ujściowa i wybrzeże | Zmienność zasolenia, pływy, typ osadu | Regulacja gospodarki wodnej i jonowej; życie w norach. |
| Dno morskie | Sposób dostarczania pokarmu i właściwości podłoża | Filtrowanie, połykanie osadu, drapieżnictwo, rurki. |
| Otoczenie kominów hydrotermalnych | Dostępność związków zredukowanych i utleniaczy | U wybranych linii współpraca z bakteriami chemosyntetyzującymi. |
Źródła: [16, 44, 47, 13, 40, 45, 46]. Są to przykłady, nie kompletna lista adaptacji.
Rozdział 12Dżdżownice jako organizmy przekształcające glebę
Dżdżownice należą do inżynierów ekosystemu: przez aktywność zmieniają fizyczne warunki życia innych organizmów. Tworzą pory i korytarze, przemieszczają cząstki mineralne i resztki roślinne oraz odkładają odchody o odmiennej strukturze niż materiał wyjściowy. Działanie to wpływa na miejsca kontaktu mikroorganizmów, wody, powietrza i materii organicznej. Skutki zależą od gatunku oraz podłoża. Nie każdy kanał ma identyczną trwałość i nie każda forma odżywia się na tej samej głębokości. [46, 5]
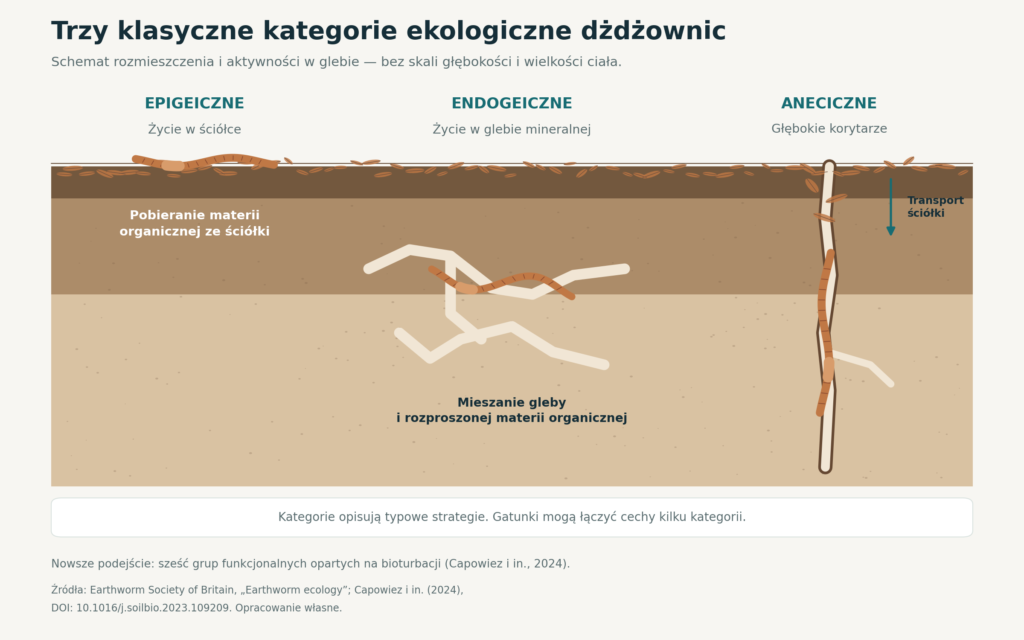
Klasycznie wyróżnia się dżdżownice epigeiczne, endogeiczne i aneciczne. Pierwsze wiąże się przede wszystkim ze ściółką i powierzchniowym materiałem organicznym, drugie z żerowaniem w glebie mineralnej, a trzecie z trwałymi, często pionowymi korytarzami oraz pobieraniem materiału z powierzchni. To użyteczny język opisu. Nie jest on jednak sztywną klasyfikacją systematyczną ani pełną prognozą zachowania każdej populacji. Granice kategorii nie zamykają całego kontinuum ekologicznego. [46]
Tabela 12. Trzy klasyczne kategorie ekologiczne dżdżownic
| Kategoria | Miejsce aktywności | Typowy sposób działania | Przykład |
|---|---|---|---|
| Epigeiczne | Ściółka i nagromadzona materia organiczna przy powierzchni | Intensywne korzystanie z materiału organicznego; zwykle brak rozbudowanych głębokich korytarzy | Eisenia fetida |
| Endogeiczne | Gleba mineralna | Połykanie gleby i drążenie rozgałęzionych korytarzy w jej obrębie | Aporrectodea caliginosa |
| Aneciczne | Korytarz łączący głębszą glebę z powierzchnią | Pobieranie resztek z powierzchni i transport w głąb | Lumbricus terrestris |
Model dydaktyczny według [46]. Przykłady nie określają uniwersalnej głębokości życia ani jednakowego zachowania wszystkich osobników.
Capowiez i współautorzy w pracy z 2024 r. badali zachowania bioturbacyjne 50 europejskich gatunków lub podgatunków w ujednoliconych warunkach laboratoryjnych. Na tej podstawie wyodrębnili sześć grup funkcjonalnych, tylko częściowo pokrywających się z klasycznymi kategoriami. Jest to propozycja dokładniejszego opisu funkcji, a nie ogłoszenie sześciu nowych grup systematycznych. Pokazuje, dlaczego sama etykieta „endogeiczna” może nie wystarczyć do przewidywania ilości przemieszczanej gleby lub charakteru korytarzy. [5]
Znaczenie dla roślin może wynikać z uwalniania składników pokarmowych, mieszania resztek i zmiany struktury siedliska korzeni. Jednocześnie reakcja roślin zależy od zasobności podłoża, nawożenia, zagęszczenia dżdżownic i gatunku uprawy. Ochrona istniejących zespołów glebowych jest innym działaniem niż wsypywanie kupionych osobników na dowolne pole. Nawet bardzo dodatni średni efekt z doświadczeń nie jest instrukcją introdukcji ani obietnicą plonu w konkretnym ogrodzie. [6, 7, 9]
Od cechy organizmu do funkcji ekosystemu
Funkcja ekologiczna wymaga wskazania procesu, jego wykonawcy i warunków. Zdanie, że pierścienice „poprawiają glebę”, pomija te trzy elementy. Przemieszczanie cząstek, tworzenie porów i zmiana dostępności zasobów mogą następować jednocześnie, lecz nie są jedną wielkością. W badaniu trzeba przejść od cechy zwierzęcia przez przypuszczalny mechanizm do mierzalnej odpowiedzi. Jest to sposób porządkowania wniosków: osobno opisujemy, co organizm robi, co zmieniło się w otoczeniu i jakie znaczenie ma ta zmiana dla wybranego odbiorcy, na przykład rośliny. [5, 57]
Hallam i Hodson porównali w doświadczeniu mezokosmowym Lumbricus terrestris oraz Allolobophora chlorotica w trzech glebach różniących się uziarnieniem. Mierzyli udział agregatów trwałych w wodzie i zdolność gleby do zatrzymywania wody. Odpowiedź zależała od gatunku, gleby i głębokości. To mocny argument za rozdzielaniem cech funkcjonalnych, lecz nie gotowy przelicznik retencji dla pola: eksperyment trwał 40 dni, ograniczał przestrzeń zwierząt i stosował zagęszczenia wyższe od terenowych. [57]
Przepływ i magazynowanie wody należy analizować oddzielnie. Szybsze przemieszczanie się wody przez duże pory nie jest matematycznie tożsame z większą ilością wody zatrzymanej po odpływie. Tak samo większa masa agregatów odpornych na rozpad nie pozwala sama w sobie obliczyć wzrostu plonu. Dobra hipoteza wskazuje ogniwa łączące te wielkości, a dobry projekt pomiarowy sprawdza każde z nich. Jeśli zbadano wyłącznie strukturę gleby, wniosek o produkcji roślin pozostaje hipotezą wymagającą dodatkowego doświadczenia.
W bentosie morskim znaczenie ma również to, które gatunki zanikają. Solan i współautorzy wykorzystali dane o zespołach bezkręgowców do parametryzacji modeli utraty gatunków i bioturbacji. Wielkość przewidywanego spadku funkcji zależała od związku cech organizmów z ryzykiem wymarcia i od kolejności ich utraty. Badanie dotyczyło zespołów bentosowych, nie wyłącznie Annelida. Pokazuje jednak, dlaczego zastąpienie dużego, intensywnie przemieszczającego osad gatunku kilkoma innymi nie musi zachować tej samej funkcji. [58]
Wpływ siedliska można badać eksperymentalnie. Liu i współautorzy zestawili dwa systemy gruntów ornych i dwa systemy łąkowe, stosując także manipulację temperaturą oraz opadami. W publikacji z 2025 r. opisali różnice zespołów między sposobami użytkowania. Główne efekty manipulacji klimatem na łączną liczebność i biomasę nie były istotne, natomiast interakcja klimatu z użytkowaniem wiązała się ze zmianą składu zespołu. Naturalne susze w latach 2018–2020 stanowiły dodatkowe tło doświadczenia; nie należy utożsamiać ich skutków z efektem samego zabiegu eksperymentalnego. [59]
Z tych przykładów wynika praktyczna zasada: wybór wskaźnika powinien poprzedzać ocenę, czy zmiana jest korzystna. Zachowanie rodzimego zespołu, wzrost plonu, utrzymanie wody i ograniczenie emisji gazów to różne cele. Mogą współwystępować, ale ich zgodność trzeba wykazać. Wartość przyrodnicza gatunku nie zależy wyłącznie od korzyści gospodarczej; równie odrębnym pytaniem jest zachowanie różnorodności i procesów charakterystycznych dla danego siedliska.
Tabela 13. Przyczyna, mechanizm i miara: cztery różne pytania ekologiczne
| Układ i czynnik | Badane ogniwo mechanizmu | Miara odpowiedzi | Granica wniosku |
|---|---|---|---|
| Gleba; obecność dwóch gatunków dżdżownic | Przekształcanie struktury podczas żerowania i drążenia | Trwałość agregatów i zatrzymywanie wody | Wynik mezokosmu zależny od gleby i głębokości. [57] |
| Zespół bentosowy; utrata gatunków | Utrata określonych cech funkcjonalnych | Modelowana zmiana bioturbacji | Ważna kolejność utraty; zespół obejmuje różne typy zwierząt. [58] |
| Agroekosystem; klimat i użytkowanie | Zmiana warunków środowiska oraz składu zespołu | Skład, zagęszczenie i biomasa oceniane osobno | Zmiana składu może wystąpić bez istotnej zmiany sumarycznej biomasy. [59] |
| Gleba z substancją; ekspozycja organizmów | Pobieranie i eliminacja związku | Stężenie w tkankach i parametry kinetyczne | Bioakumulacja nie jest miarą tempa oczyszczania całego siedliska. [60] |
Autorskie uporządkowanie pytań badawczych. Wiersze reprezentują odmienne projekty i nie tworzą wspólnej skali korzyści.
Rozdział 13Pierścienice morskie i obieg substancji w osadzie
W osadach trzeba odróżniać bioturbację, czyli biologiczne przemieszczanie i mieszanie cząstek, od bioirygacji, czyli wymiany wody związanej z aktywnością organizmów w norach. Pierwszy proces zmienia położenie materiału, drugi transportuje substancje rozpuszczone. Oba mogą współdziałać, ale nie są synonimami. Nory zwiększają złożoność przestrzenną granicy między wodą a osadem, a ich wentylacja może dostarczać tlen i usuwać produkty przemiany materii. [8, 61]
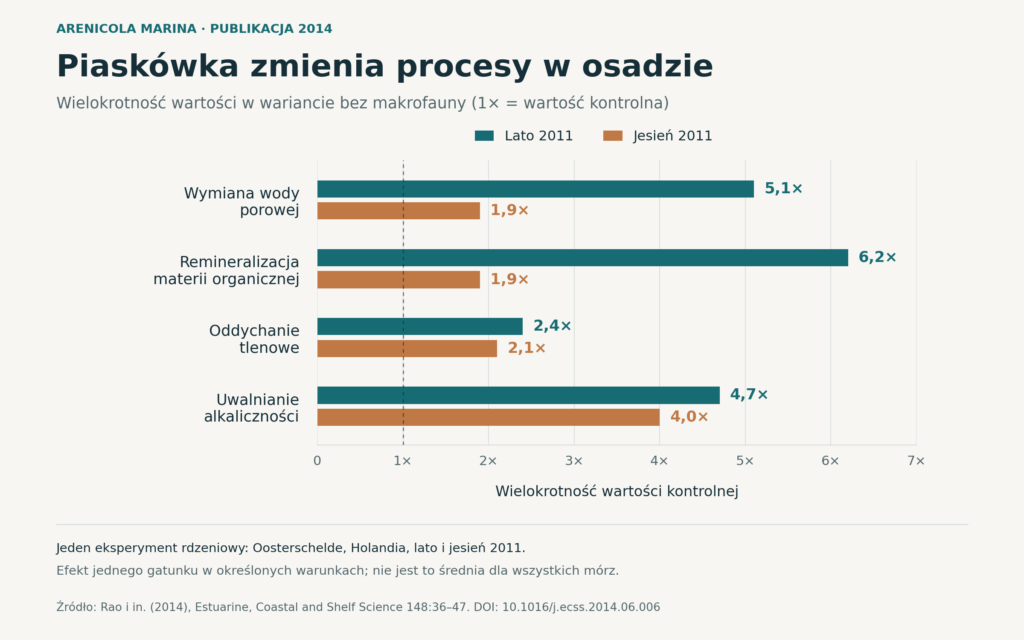
Dobrym przykładem jest piaskówka Arenicola marina, której żerowanie i wentylowanie nory wpływają na otaczający osad. W doświadczeniu z rdzeniami z Oosterschelde porównano działanie zwierzęcia w lecie i jesienią 2011 r. Wymiana wody porowej stanowiła odpowiednio 5,1- i 1,9-krotność wartości w wariancie kontrolnym bez fauny. Dla remineralizacji materii organicznej wartości wynosiły 6,2 i 1,9 razy wartość kontrolną. Są to wyniki określonego układu eksperymentalnego; nie opisują średniej dla wszystkich wybrzeży. [8]
Tabela 14. Wyniki eksperymentu z Arenicola marina
| Proces | Lato 2011 | Jesień 2011 |
|---|---|---|
| Wymiana wody porowej | 5,1× | 1,9× |
| Remineralizacja materii organicznej | 6,2× | 1,9× |
| Oddychanie tlenowe | 2,4× | 2,1× |
| Uwalnianie alkaliczności | 4,7× | 4,0× |
Wielokrotność wartości kontrolnej bez fauny; 1× oznacza brak zmiany. Rdzenie osadu z Oosterschelde, Holandia. Źródło: Rao i in. 2014 [8]. Alkaliczność i pH to różne wielkości.
Mikroorganizmy reagują na takie przemiany, ponieważ zmienia się dostęp do tlenu, związków organicznych i innych reagentów. W doświadczeniach z piaskówkami i mechanicznymi modelami ich pompowania badano także wpływ transportu wody na mikrofitobentos, czyli drobne organizmy fotosyntetyzujące przy powierzchni osadu. Wyniki wspierały znaczenie przepływu dla dostępności składników pokarmowych. Autorzy nie mierzyli jednak bezpośrednio strumieni tych składników, dlatego mechanizm należy opisywać jako wniosek z połączonych doświadczeń i modelu. [61]
W praktyce ekologicznej liczebność jednego gatunku nie zastępuje oceny funkcjonowania całego dna. Dwa zespoły o podobnej biomasie mogą różnić się głębokością drążenia, sposobem pobierania pokarmu i intensywnością wentylacji. Zmiana składu gatunkowego może więc zmienić obieg substancji bez równie wyraźnej zmiany całkowitej masy zwierząt. Rozróżnienie składu i funkcji jest podstawą interpretacji badań bentosu. [1, 40, 45, 61]
Rozdział 14Symbiozy głębinowe
Riftia i bakterie wykorzystujące energię chemiczną
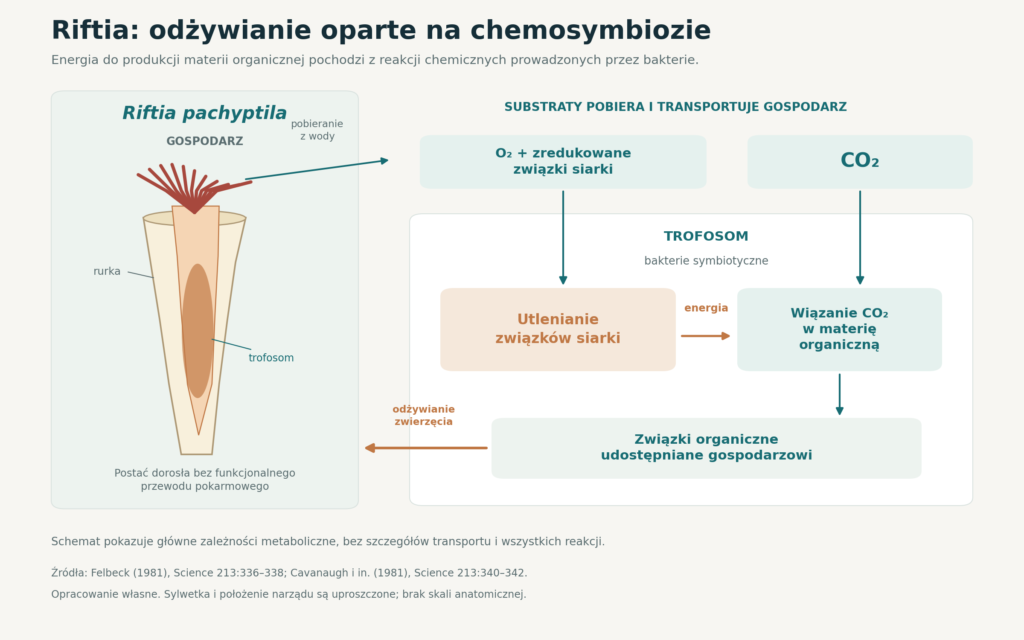
Dorosła Riftia pachyptila nie ma funkcjonalnego przewodu pokarmowego. Żyje w rurce w otoczeniu głębinowych źródeł hydrotermalnych i korzysta z bakterii symbiotycznych umieszczonych w narządzie zwanym trofosomem. Klasyczne badania z 1981 r. wykazały podstawy tego związku: obecność komórek prokariotycznych oraz zdolność układu do wykorzystywania energii chemicznej. Dzięki temu zwierzę może uzyskiwać pokarm w miejscu, w którym lokalna fotosynteza jest niemożliwa z powodu braku światła. [44, 47]
To bakterie wiążą węgiel nieorganiczny, wykorzystując energię z utleniania zredukowanych związków siarki. Gospodarz zapewnia im środowisko oraz transport potrzebnych substratów. Związek wymaga skoordynowania dostępu do substancji, które w niekontrolowanych warunkach mogą być szkodliwe, oraz utrzymania odpowiedniej liczby symbiontów. Badania metaproteomiczne wskazują na udział gospodarza w przekazywaniu substratów, regulacji populacji bakterii i pozyskiwaniu składników odżywczych, także poprzez ich trawienie. Nie jest to zatem zwykłe „hodowanie jedzenia w środku”, lecz złożony układ fizjologiczny. [13]
Transport substratów i ustanawianie symbiozy
Dla Riftia samo występowanie siarczków w otoczeniu nie wystarcza: muszą one dotrzeć do bakterii razem z pozostałymi potrzebnymi substratami, przy zachowaniu sprawnego oddychania zwierzęcia. Duże hemoglobiny pozakomórkowe mogą odwracalnie wiązać zarówno tlen, jak i siarczki, co umożliwia ich transport w tym samym układzie. Ogranicza to także problem toksyczności wolnego siarkowodoru dla oddychania komórkowego. Badania strukturalne i biochemiczne hemoglobin wykazały udział związanych jonów cynku w wiązaniu siarczków. To przykład specjalizacji białka transportowego, a nie dowód, że siarkowodór zastępuje tlen w oddychaniu gospodarza. W opisie trzeba rozróżniać rolę związku siarki jako substratu metabolizmu bakterii od funkcji tlenu w procesach utleniania. [62]
Związki organiczne wytworzone przez symbionty stają się zasobem zwierzęcia, lecz transfer nie musi polegać wyłącznie na wydzielaniu gotowych produktów przez żywe bakterie. Analiza metaproteomiczna trofosomu wspiera istotny udział trawienia komórek symbiontów. Zestaw wykrytych białek wskazuje także na dostarczanie substratów przez gospodarza i ochronę przed uszkodzeniami oksydacyjnymi. Porównanie okazów o różnej dostępności zasobów energetycznych sugerowało większy udział trawienia symbiontów przy niedoborze siarki. Są to wnioski z określonych analiz, nie uniwersalna proporcja dwóch sposobów odżywiania. Trofosom jest zatem miejscem dynamicznych relacji metabolicznych, a nie biernym pojemnikiem na stale identyczną liczbę bakterii. [13]
Ustanowienie tego układu jest osobnym problemem rozwojowym. Badania wczesnych stadiów hydrotermalnych rurkoczułkowców wykazały poziome nabywanie symbiontów: bakterie pochodzą ze środowiska, zamiast trafiać do każdego potomka w gotowym zestawie wraz z gametą. Po osiedleniu się larwy bakterie kolonizują jej rozwijającą się rurkę i wnikają przez powierzchnię ciała gospodarza; następnie zasiedlają tkanki tworzącego się trofosomu. Opisana droga różni się od wyobrażenia, że bakterie są jedynie połykane i pozostają w jelicie. Zależność dorosłego od symbionta nie oznacza więc nieprzerwanej obecności symbionta we wszystkich etapach rozwoju. W tym przypadku rozwój gospodarza obejmuje także zorganizowanie kontaktu z odpowiednimi mikroorganizmami. [63]
Osedax i materia organiczna kości
Rodzaj Osedax reprezentuje inne rozwiązanie. Samice tworzą korzeniopodobne wypustki wnikające w kości zatopionych kręgowców. Badania wykazały mechanizmy wydzielania kwasu sprzyjające rozpuszczaniu części mineralnej kości i dostępowi do jej składników organicznych. W tkankach żyją bakterie symbiotyczne, ale źródłem zasobów jest tu materia organiczna kości. Nie należy utożsamiać tego sposobu odżywiania z chemosymbiozą Riftia. Wspólna przynależność do Siboglinidae nie oznacza identycznej fizjologii odżywiania. [1, 48]
U wielu gatunków Osedax występują bardzo małe samce związane z samicami. Analizy genetyczne O. rubiplumus wsparły pochodzenie obu płci ze wspólnej puli larw. Samce nie są po prostu potomstwem samicy, przy której przebywają. Nie jest to jednak cecha całego rodzaju bez wyjątku: badacze MBARI opisują O. priapus z dużymi, odżywiającymi się kością samcami. Taki przykład pokazuje, dlaczego nawet efektowne odkrycie wymaga podania gatunku i zakresu. [64, 65]
Co komórki Osedax robią z kością
Wykorzystanie kości wymaga oddzielenia dwóch zadań: naruszenia jej rusztowania mineralnego i przetworzenia uwolnionej materii organicznej. W korzeniopodobnych strukturach badanych Osedax zlokalizowano anhydrazę węglanową oraz protonową ATPazę typu V. Na tej podstawie zaproponowano mechanizm, w którym CO₂ powstający w metabolizmie stanowi źródło jonów wodorowych, a pompa zużywająca ATP wydziela je ku powierzchni kości. Zakwaszenie sprzyja demineralizacji i udostępnieniu składników organicznych. Jest to fizjologicznie uzasadniony model oparty na rozmieszczeniu białek; szczegóły wszystkich przepływów jonowych nie zostały w tej pracy bezpośrednio zmierzone. Rozpuszczanie minerału oraz uzyskanie użytecznego pokarmu pozostają odmiennymi etapami. [48]
Porównanie genomów opublikowane w 2023 r. pogłębiło ten obraz dla Osedax frankpressi. Stwierdzono rozszerzenie rodziny metaloproteaz związanych z trawieniem kolagenu oraz ubytki w określonych szlakach metabolicznych gospodarza. Zestaw genów symbionta wskazuje możliwość uzupełniania części tych braków, m.in. w syntezie aminokwasów i przetwarzaniu składników pochodzących z kości. Autorzy opisują więc układ współzależności pokarmowej odmienny od chemoautotroficznego odżywiania Vestimentifera. Obecność genu wyznacza potencjał reakcji, a brak wykrytego genu wymaga oceny kompletności danych; sam genom nie jest bezpośrednim pomiarem szybkości metabolizmu. Wnioski o przepływie substancji są tu interpretacją danych porównawczych, która wskazuje kierunki doświadczeń fizjologicznych. [66]
Rozdział 15Reprezentatywne gatunki i modele badawcze
Poniższe przykłady pokazują rozpiętość biologii Annelida. Wybrano gatunki o dobrze udokumentowanych cechach, a nie „rekordzistów” o niepewnych wymiarach. Wielkość ciała, tempo wzrostu i długość życia zależą od populacji, stadium rozwoju oraz warunków; bez jednoznacznego źródła nie należy dopisywać jednej liczby dla każdego gatunku. Również zwyczajowa nazwa handlowa może obejmować więcej niż jeden gatunek, dlatego w opisach naukowych podstawowe znaczenie ma nazwa łacińska. [1, 50, 67]
Tabela 15. Wybrane pierścienice i ich znaczenie
| Gatunek lub rodzaj | Środowisko i cecha | Znaczenie poznawcze lub praktyczne |
|---|---|---|
| Lumbricus terrestris | Dżdżownica aneciczna; korytarz połączony z powierzchnią | Model transportu ściółki w głąb gleby. [46] |
| Eisenia fetida | Materiał organiczny przy powierzchni; gatunek wykorzystywany w hodowli | Wermikompostowanie, testy ekotoksykologiczne i badania regeneracji. [54, 68, 15] |
| Eisenia andrei | Blisko spokrewniona z E. fetida | Odrębny gatunek ważny w badaniach laboratoryjnych i testach OECD. [50, 15] |
| Lumbriculus variegatus | Wodny siodełkowiec zdolny do rozrodu przez podział | Model odtwarzania przedniej i tylnej części ciała. [49] |
| Arenicola marina | Osady wybrzeży; połykanie osadu i wentylacja nory | Badania bioturbacji, bioirygacji i obiegu substancji. [40, 8] |
| Hediste diversicolor | Osady przybrzeżne, także wody słonawe; elastyczna dieta | Łączy drapieżnictwo, pobieranie detrytusu i zawiesiny. [45] |
| Platynereis dumerilii | Morska pierścienica z larwą trochoforą | Model rozwoju, neurobiologii, rytmów biologicznych i regeneracji. [11] |
| Riftia pachyptila | Otoczenie źródeł hydrotermalnych; dorosłe bez przewodu pokarmowego | Model współpracy zwierzęcia z bakteriami chemosyntetyzującymi. [44, 47, 13] |
| Osedax | Kości zatopionych kręgowców | Specjalizacja pokarmowa i różnorodność strategii płciowych. [48, 64, 65] |
| Hirudo medicinalis | Pijawka lekarska w wodach słodkich | Przykład gatunku objętego ochroną częściową w Polsce. [69, 70] |
Zestawienie nie jest kluczem identyfikacyjnym ani listą gatunków Polski. Nazwy gatunkowe należy odróżniać od nazw handlowych i zbiorczych.
Dwa przykłady szczególnie dobrze pokazują ryzyko mylenia podobnych nazw. Lumbriculus variegatus i Lumbricus terrestris różnią się środowiskiem i biologią regeneracji. Z kolei Eisenia fetida i E. andrei są blisko spokrewnionymi, lecz odrębnymi gatunkami, wykorzystywanymi w podobnych zastosowaniach. W badaniu naukowym zapis „dżdżownica kompostowa” jest zbyt mało precyzyjny, jeżeli wynik ma być porównywany między laboratoriami. [50, 49, 46, 15]
Układy modelowe i granice porównań
Dobór organizmu modelowego zaczyna się od pytania badawczego. Larwa dogodna do obserwacji obwodu wzrokowo-ruchowego nie zastępuje gatunku nadającego się do testu rozrodu w glebie. Również ten sam Platynereis dostarcza różnych układów: przezroczystej larwy, rosnącego osobnika z odtwarzaną tylną osią oraz zwierzęcia dojrzewającego w kontrolowanym cyklu oświetlenia. Każdy układ ma inne zmienne: stadium, warunki ekspozycji, rodzaj tkanki i mierzony efekt. Precyzyjny opis tych warunków umożliwia porównywanie wyników bez przypisywania całemu gatunkowi jednej stałej właściwości. [11, 15, 51, 42, 52, 56]
W porównaniach międzygatunkowych warto szukać poziomu, na którym podobieństwo zostało rzeczywiście wykazane. Wspólny gen może wskazywać pokrewieństwo narzędzi molekularnych, ale nie identyczną organizację tkanki ani zdolność odtworzenia tego samego narządu. Podobnie obecność bakterii wewnątrz ciała nie wystarcza do uznania dwóch symbioz za równoważne metabolicznie. Najbardziej przekonujący obraz powstaje przez łączenie danych o budowie, aktywności komórek, eksperymentalnej zmianie funkcji i zachowaniu całego organizmu. Tabela wskazuje, co wybrane modele pozwalają badać szczególnie dobrze i gdzie kończy się prosty transfer wniosków. [12, 13, 56, 55, 66]
Tabela 16. Wybrane układy badawcze: pytanie, mocna strona i ograniczenie
| Układ | Co pozwala badać | Granica przenoszenia wyników |
|---|---|---|
| Larwa Platynereis dumerilii | Związek fotoreceptorów, obwodów nerwowych i ruchu rzęskowego. [42, 43] | Mechanizm larwalnego pływania nie opisuje wszystkich reakcji wzrokowych osobnika dorosłego. |
| Regenerujący P. dumerilii | Pochodzenie komórek oraz odtwarzanie tylnej strefy dodawania segmentów. [56, 55] | Odbudowa tylnego końca nie jest dowodem regeneracji dowolnego narządu z dowolnego fragmentu. |
| Eisenia fetida / E. andrei | Standaryzowane badanie przeżywalności i rozrodu w teście glebowym. [15] | Wynik dla warunków testowych nie jest prognozą dla wszystkich gleb i pierścienic. |
| Lumbriculus variegatus | Fragmentację, regenerację i reorganizację funkcji zachowanych części ciała. [49] | Należy znać pochodzenie linii; nie utożsamiać modelu z Lumbricus terrestris. |
| Riftia pachyptila | Transport substratów i relacje metaboliczne gospodarza z chemoautotroficznym symbiontem. [13, 62] | Odpowiedzi całego układu zależą od dostępności substratów i stanu symbiozy. |
| Osedax frankpressi | Genomowe podstawy wyspecjalizowanego odżywiania i uzupełniania metabolizmu przez symbionta. [66] | Potencjał odczytany z genów wymaga potwierdzenia funkcjonalnego; nie opisuje automatycznie całego rodzaju. |
Wybrano układy reprezentatywne dla pytań omawianych w tekście. Zestawienie nie jest rankingiem ani pełnym katalogiem modeli pierścienic.
Rozdział 16Jak poprawnie czytać dane o pierścienicach
Liczba gatunków, liczba osobników i biomasa opisują różne właściwości. Bogactwo gatunkowe to liczba rozpoznanych gatunków w określonej jednostce próby. Zagęszczenie odnosi liczbę osobników do powierzchni lub objętości, na przykład do metra kwadratowego gleby. Biomasa określa masę organizmów, przy czym trzeba ustalić, czy chodzi o masę świeżą czy suchą. Różnorodność w szerszym sensie może obejmować także względne liczebności gatunków lub różnice między zespołami. [14, 71]
Wynik eksperymentu porównuje konkretne warianty, wynik obserwacyjny opisuje powiązania w terenie, a model łączy dane z założeniami, by oszacować wielkość trudną do bezpośredniego pomiaru. Metaanaliza syntetyzuje wiele badań, ale jej średnia nadal zależy od tego, jakie doświadczenia były dostępne. Liczba rekordów może przewyższać liczbę publikacji, ponieważ jedna praca dostarcza kilku porównań lub wskaźników. Rekordów i prac nie należy używać zamiennie. [14, 6, 7, 71]
Tabela 17. Wybrane liczby i ich rzeczywisty zakres
| Wartość | Czego dotyczy | Rok i ograniczenie |
|---|---|---|
| Około 20 200 | Uznane gatunki Annelida w zestawieniu taksonomicznym | 2021; nie bieżący licznik wszystkich gatunków. [19] |
| 6928 stanowisk, 57 krajów | Globalny zbiór danych o zespołach dżdżownic | 2019; próbkowanie geograficznie nierównomierne. [14] |
| 58 publikacji | Baza metaanalizy produkcji roślinnej | 2014; badania z lat 1910–2013. [6] |
| +25% plonu | Średni efekt obecności dżdżownic w analizowanych porównaniach | 2014; zależny od warunków, nie obietnica dla pola. [6] |
| Około 6,5% | Modelowany udział dżdżownic w produkcji czterech zbóż | 2023; nie udział w całej żywności. [7] |
| Około 2,3% | Modelowany udział w produkcji analizowanych bobowatych | 2023; uwzględniono także uprawy pastewne. [7] |
| Ponad 140 mln t/rok | Łączny modelowany wkład w badane uprawy | 2023; model oparty na historycznych warstwach danych. [7] |
| 70 gatunków obcych | Introdukowane dżdżownice wykazane w analizie Ameryki Północnej | 2024; stan wiedzy w danej publikacji. [9] |
| 41 stanowisk | Monitoring pijawki lekarskiej w polskim regionie kontynentalnym | Dane 2021; nie liczba wszystkich populacji kraju. [72] |
Wartości nie tworzą wspólnego szeregu czasowego i nie należy ich sumować. Szczegółowe metody znajdują się w źródłach.
Wzrost o 25% jest zmianą względną wobec wartości odniesienia. Dla czysto ilustracyjnej wartości 100 oznaczałby 125; przykład służy tylko objaśnieniu procentu, nie odtwarza danych żadnej uprawy. Z kolei 6,5% udziału w produkcji opisuje część całkowitej wielkości oszacowanej w modelu. Te dwa procenty mają inne mianowniki. Także 5,1× wartości kontrolnej nie znaczy „wzrost o 5,1%”: jest to wielokrotność. Jawne określenie mianownika chroni przed bardziej spektakularnym, ale fałszywym odczytaniem wyniku.
Jednostki i rachunek efektu względnego
Podstawowe miary zespołu organizmów odpowiadają na różne pytania. Liczba gatunków opisuje bogactwo gatunkowe, liczba osobników przypadająca na powierzchnię oznacza zagęszczenie, a masa organizmów na powierzchnię określa biomasę powierzchniową. Wzrost jednej z tych wartości nie przesądza o zmianie pozostałych. Kilka dużych osobników może wnosić znaczną część biomasy, podczas gdy większość liczebności stanowią mniejsze zwierzęta. Porównanie publikacji wymaga zatem najpierw sprawdzenia, co autorzy faktycznie liczyli lub ważyli. Tę różnicę widać w globalnej analizie dżdżownic, w której bogactwo, liczebność i biomasa miały odmienne wzorce przestrzenne. [14]
Zagęszczenie powierzchniowe otrzymuje się, dzieląc liczbę znalezionych osobników przez badaną powierzchnię. Przeliczenie jednostki jest operacją matematyczną; porównywalność biologiczna zależy dodatkowo od głębokości poboru, pory roku, wilgotności, sposobu ekstrakcji i dokładności oznaczenia. Analogicznie zapis g/m² wymaga informacji, czy zważono organizmy świeże, osuszone powierzchniowo, utrwalone czy wysuszone. Wynik z małej próbki, przeliczony na metr kwadratowy, pozostaje oszacowaniem odnoszącym się do przyjętego sposobu próbkowania.
Aby obliczyć zmianę względną, od ilorazu wyniku badanego i kontrolnego odejmuje się jeden, a różnicę mnoży przez sto procent. Wynik +25% odpowiada więc ilorazowi 1,25 i odnosi się do wartości zmiennej w kontroli. W metaanalizie produkcji roślinnej tym wynikiem był plon; wielkość ta nie oznacza udziału dżdżownic w masie roślin. Z kolei publikacja o globalnej produkcji upraw przypisuje dżdżownicom modelowany udział w wytwarzanej produkcji. Obie liczby wyrażono w procentach, lecz mają inne definicje i odmienne mianowniki. [6, 7]
Wykres wielokrotności wymaga jeszcze innego odczytu: 1× oznacza wartość równą kontroli, a 5,1× oznacza iloraz 5,1. Przeliczenie tej ostatniej wartości na zmianę względną daje +410%; wynika to z opisanego rachunku i nie stanowi nowego wyniku doświadczenia. W badaniu piaskówki wielokrotności dotyczyły kilku różnych procesów. Wymiana wody porowej, oddychanie tlenowe i uwalnianie alkaliczności mają własne definicje oraz własne wartości odniesienia. Sumowanie tych ilorazów nie ma sensu biologicznego. [8]
Przy metaanalizie trzeba dodatkowo odróżnić liczbę prac od liczby porównań. Jedna publikacja może zawierać kilka wariantów nawożenia, gatunków roślin lub terminów pomiaru. Takie rekordy dostarczają informacji, lecz mogą być zależne statystycznie. Autorzy syntezy określają sposób uwzględnienia tej zależności oraz wagę poszczególnych efektów. Podane w tabelach tego kompendium liczebności opisują zakres materiału źródłowego; same w sobie nie służą do porównywania wiarygodności dwóch publikacji. [6, 73]
Tabela 18. Jak rozpoznawać miarę przed porównaniem liczb
| Miara | Co wyraża | Co musi być wspólne w porównaniu |
|---|---|---|
| Bogactwo gatunkowe | Liczbę rozpoznanych gatunków w określonej jednostce obserwacji | Powierzchnia i intensywność próbkowania oraz rozdzielczość oznaczeń |
| Zagęszczenie osobników | Liczbę osobników na powierzchnię albo objętość | Jednostka odniesienia oraz głębokość i metoda poboru |
| Biomasa | Masę organizmów, np. na jednostkę powierzchni | Stan materiału przy ważeniu i sposób uwzględnienia zawartości przewodu pokarmowego |
| Zmiana względna | Różnicę w stosunku do wartości kontrolnej, wyrażoną w procentach | Definicja kontroli oraz zmiennej mierzonej |
| Wielokrotność | Iloraz wartości badanej i kontrolnej | Ta sama miara w liczniku i mianowniku; poziom odniesienia 1× |
| Udział modelowany | Część określonej całości przypisaną czynnikowi przez model | Zakres całości, dane wejściowe i założenia modelu |
Definicje i interpretacja własna, z przykładami zastosowania w [14, 6, 7, 8, 73]. Tabela porządkuje miary i nie ustanawia wspólnej skali jakości badań.
Rozdział 17Dżdżownice a produkcja roślinna
Metaanaliza van Groenigena i współautorów z 2014 r. zebrała 462 rekordy z 58 prac. Obecność dżdżownic wiązała się w analizowanych porównaniach ze średnim wzrostem plonu o 25%, biomasy nadziemnej o 23%, podziemnej o 20% i całkowitej o 21%. Poszczególne wskaźniki miały różne liczby porównań i publikacji. Nie należy sumować tych liczb, ponieważ zbiory częściowo się pokrywają, a składniki biomasy nie były obliczane z jednego wspólnego zestawu wszystkich roślin. [6]
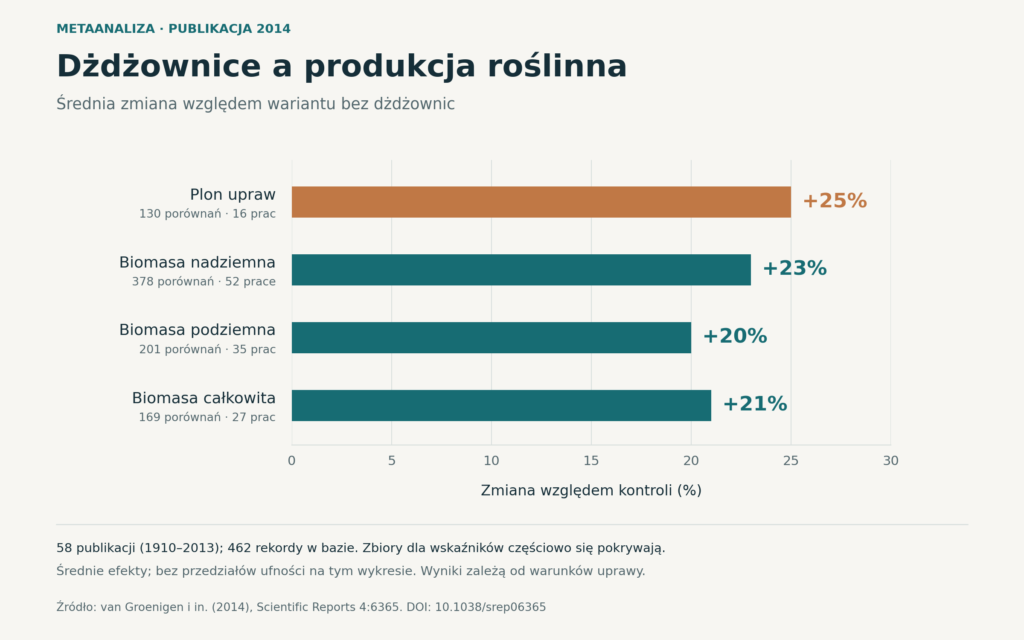
Tabela 19. Średnie efekty obecności dżdżownic w metaanalizie
| Wskaźnik | Średnia zmiana | Porównania | Prace |
|---|---|---|---|
| Plon | +25% | 130 | 16 |
| Biomasa nadziemna | +23% | 378 | 52 |
| Biomasa podziemna | +20% | 201 | 35 |
| Biomasa całkowita | +21% | 169 | 27 |
Wartości zaokrąglone według van Groenigen i in. 2014 [6]. Liczebności dotyczą poszczególnych analiz, nie czterech niezależnych baz.
Autorzy wskazali zależność od dopływu resztek, zagęszczenia dżdżownic oraz nawożenia. Przy wysokiej dostępności azotu dodatni efekt słabł lub przestawał być istotny. Wniosek dotyczy udziału procesów glebowych w odżywianiu roślin, a nie stałej „premii biologicznej” niezależnej od podłoża. [6]
Dla praktyki rolniczej oznacza to potrzebę rozpatrywania dżdżownic razem z gospodarką resztkami, właściwościami gleby i sposobem uprawy. Metaanaliza Briones i Schmidta, obejmująca 165 publikacji z 40 państw, wykazała znaczne różnice zespołów między systemami uprawy. Dla wariantu bez uprawy mechanicznej (no-till) średnia liczebność była o 137%, a biomasa o 196% większa niż przy konwencjonalnej orce. Są to wyniki określonego porównania systemów; czas stosowania praktyk i lokalne warunki nadal wpływały na odpowiedź. [73]
Warunki porównywania metaanaliz
Publikacje o uprawie gleby, produkcji roślinnej i pestycydach odpowiadają na trzy różne pytania. W pierwszym przypadku zmienia się sposób gospodarowania, a odpowiedzią są dżdżownice. W drugim porównuje się obecność tych zwierząt, a odpowiedzią są rośliny. W trzecim czynnikiem jest ekspozycja chemiczna, a odpowiedzią mogą być różne grupy fauny. Zestawienie służy zrozumieniu związku między badaniami, lecz nie pozwala ustawić wszystkich wyników na jednej osi „wpływu na środowisko”. [6, 73, 74]
Briones i Schmidt raportowali dla no-till średni wzrost zagęszczenia o 137% i biomasy o 196% względem orki odwracającej glebę. Dotyczy to wariantu bez uprawy mechanicznej, a nie każdej praktyki nazywanej bezorkową. Baza całej metaanalizy obejmowała 165 publikacji, lecz nie należy przypisywać tej liczby każdemu pojedynczemu słupkowi. Liczby przedstawione na wykresie są zaokrąglonymi średnimi z publikacji; nie odtworzono przedziałów ufności. [73]
Beaumelle i współautorzy objęli syntezą 54 badania i 294 obserwacje dotyczące fauny glebowej. Dżdżownice stanowiły tylko część materiału: 12 badań i 55 obserwacji. Podana średnia g Hedgesa −0,30 jest standaryzowaną wielkością efektu dla całej analizowanej fauny; nie oznacza spadku liczebności dżdżownic o 30%. Standaryzacja odnosi różnicę do zmienności wewnątrz badań. Umożliwia syntezę odmiennych miar, ale odbiera wynikowi prostą interpretację w procentach. [74]
Nie wolno też sumować liczb prac z kilku przeglądów i przedstawiać wyniku jako liczby niezależnych doświadczeń. Ta sama publikacja może wejść do więcej niż jednej syntezy, a jeden eksperyment dostarczyć wielu odpowiedzi. Analiza łączna wymagałaby identyfikatorów badań, zgodnych definicji wariantu odniesienia i informacji o zależności obserwacji. Bez nich profesjonalną formą porównania pozostaje tabela zakresów, a nie wspólna średnia.
W ocenie metaanalizy warto zapytać także o rozrzut wyników i populację, do której mają się odnosić. Średnia może być precyzyjnie oszacowana, a jednocześnie słabo przewidywać wynik pojedynczego gospodarstwa. Przedział ufności średniej odpowiada na inne pytanie niż przedział przewidywania dla nowego badania. Brak tych przedziałów na uproszczonej grafice jest jawnym ograniczeniem prezentacji i nie sugeruje, że wszystkie doświadczenia przyniosły identyczny efekt.
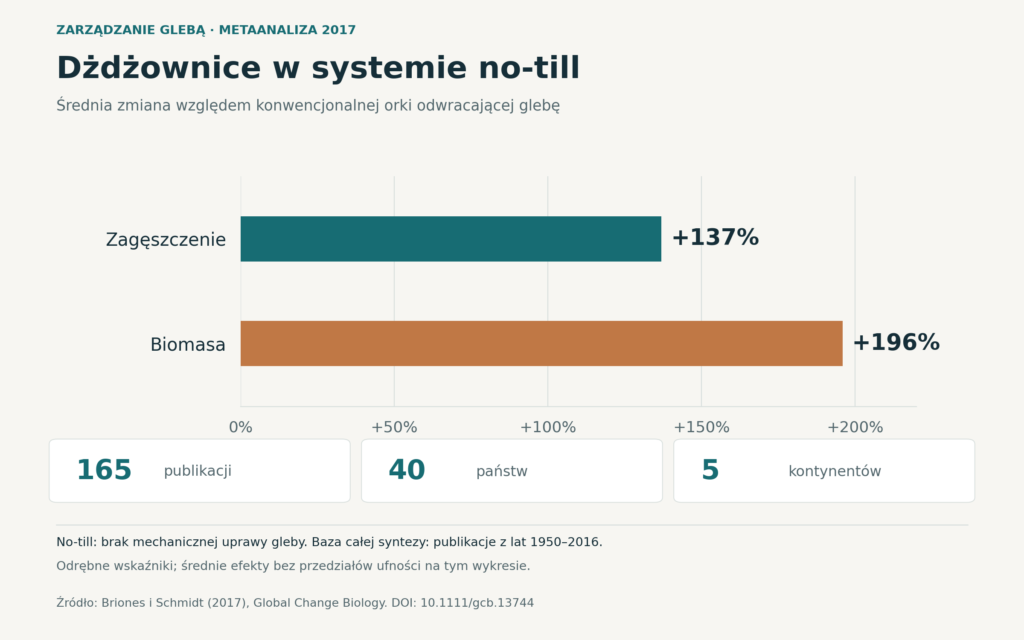
Tabela 20. Trzy metaanalizy, trzy różne definicje efektu
| Synteza | Co porównano | Odpowiedź i jednostka | Zakres danych |
|---|---|---|---|
| Produkcja roślinna; 2014 [6] | Obecność dżdżownic względem kontroli bez nich | Plon: +25% względem kontroli | Dla plonu: 130 porównań z 16 prac; cała synteza: 58 prac |
| Uprawa gleby; 2017 [73] | No-till względem konwencjonalnej orki | Zagęszczenie: +137%; biomasa: +196% | Cała synteza: 165 publikacji z 40 państw |
| Pestycydy; 2023 [74] | Ekspozycja względem właściwej kontroli | Fauna glebowa ogółem: g Hedgesa −0,30; wielkość bez jednostki | 54 badania, 294 obserwacje; dżdżownice: podzbiór 12 badań i 55 obserwacji |
Średnie zaokrąglone według źródeł. Brak wspólnego mianownika i niezależnej, zsumowanej bazy. Efektu g nie przeliczono na procent. Tabela nie przedstawia przedziałów ufności.
Rozdział 18Modelowany wkład w światową produkcję żywności
Fonte, Hsieh i Mueller połączyli w 2023 r. informacje o zagęszczeniu dżdżownic, właściwościach gleb, nawożeniu i produkcji upraw z efektami znanymi z literatury. Model przypisał aktywności dżdżownic około 6,5% produkcji kukurydzy, ryżu, pszenicy i jęczmienia oraz około 2,3% produkcji analizowanych bobowatych. Łącznie oszacowano ponad 140 mln ton rocznie. Bobowate obejmowały także rośliny pastewne. [7]
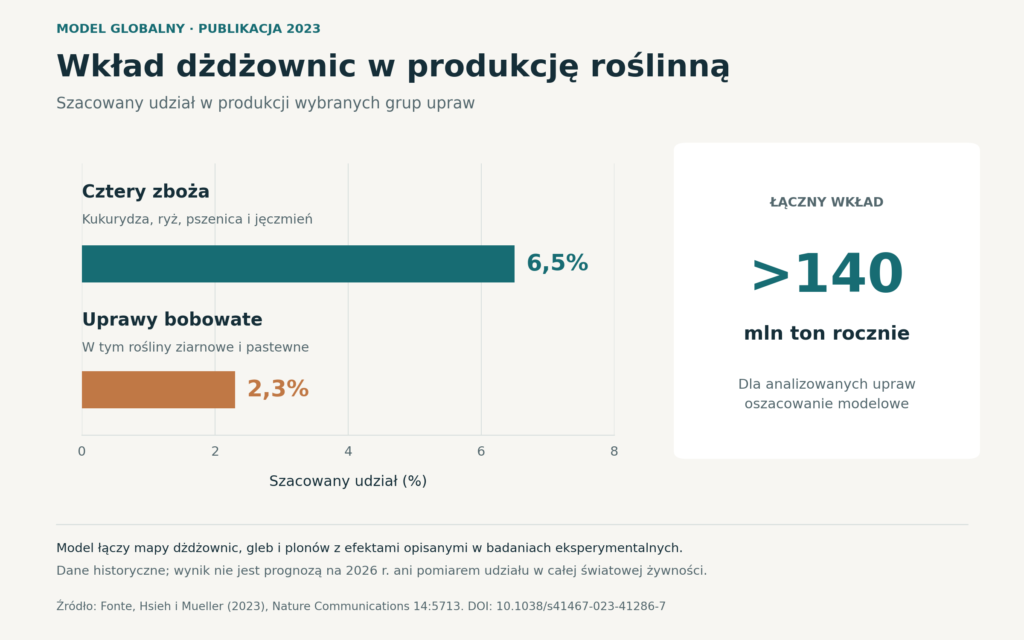
To oszacowanie wkładu w istniejącą produkcję, uzyskane na podstawie historycznych warstw danych i założeń modelu. Nie jest pomiarem wszystkich pól w 2023 r., prognozą zbiorów na 2026 r. ani informacją, że dżdżownice dostarczają 6,5% całej żywności świata. Ograniczenia obejmują nierównomierne rozpoznanie rozmieszczenia zwierząt, zgodność przestrzenną danych i możliwość przenoszenia wyników doświadczeń na duże obszary. Wniosek wspiera ochronę procesów glebowych, nie masową introdukcję dżdżownic. [7]
Rozdział 19Co wiadomo o globalnym rozmieszczeniu dżdżownic
Phillips i współautorzy zestawili w 2019 r. dane z 6928 stanowisk w 57 krajach. Analizowali bogactwo gatunkowe, zagęszczenie i biomasę. Lokalne bogactwo oraz liczebność często osiągały większe wartości na wyższych szerokościach geograficznych. Nie oznacza to jednak, że tropiki jako całość mają mniej gatunków. Duże różnice składu między odległymi stanowiskami tropikalnymi mogą dawać wysoki łączny zasób gatunków, nawet gdy pojedyncze stanowisko jest mniej bogate. [14]
W modelach znaczenie zmiennych klimatycznych było większe niż właściwości gleby i pokrycia siedlisk. Jest to wskazówka dotycząca badanej skali i zestawu danych; nie unieważnia wpływu gleby w konkretnym miejscu. Próby nie były rozmieszczone równomiernie po całej planecie, a mapy przewidywań obejmują obszary o różnej jakości informacji wejściowej. Globalna mapa jest zatem narzędziem do formułowania i testowania hipotez, nie kompletnym spisem każdej populacji. [14]
Na mniejszej skali użytkowanie ziemi może zmieniać liczebność, masę i skład zespołu w różnym stopniu. Metaanaliza z 2024 r. obejmowała 113 publikacji z 44 krajów i 146 lokalizacji. Rozpatrywała osobno zagęszczenie, biomasę i miary różnorodności. Taki sposób analizy pozwala uniknąć założenia, że „więcej dżdżownic” zawsze oznacza równocześnie „więcej gatunków” albo lepszy stan wszystkich funkcji gleby. [71]
Globalna mapa różnorodności a mapa dostępności danych
W 2021 r. opublikowano rozszerzony zbiór danych o dżdżownicach: 10 840 stanowisk, 60 państw i 184 odnotowane gatunki. Materiał pochodził ze 182 artykułów z lat 1973–2017 i 17 nieopublikowanych zbiorów. Warunkiem włączenia było dysponowanie zagęszczeniem albo biomasą; listy gatunków dodawano, gdy były dostępne. Liczba 184 opisuje zawartość tej bazy, a nie wszystkie dżdżownice świata. Różnica względem zbioru wykorzystanego w analizie z 2019 r. nie jest tempem przyrostu populacji ani odkrywania gatunków. [14, 75]
Autorzy wskazali wyraźną nierównomierność geograficzną: dużą koncentrację prób w Europie i znacznie słabsze pokrycie innych regionów. Zapisali również informacje o metodach zbioru, ponieważ wpływają one na miary różnorodności. Zalecili uwzględnianie różnic pomiędzy źródłowymi zbiorami, w tym związanych z pracą obserwatorów. Globalny zasięg geograficzny jest zatem cechą zasięgu bazy, a nie dowodem reprezentatywnego, równomiernego próbkowania całej planety. [75]
Można to wyjaśnić bez dopisywania nieznanych liczb. Gdyby większość dostępnych prób pochodziła z łatwo dostępnych pól, ich średnia opisywałaby przede wszystkim takie pola. Dodanie kilku odległych stanowisk leśnych rozszerzyłoby mapę, lecz samo nie wyrównałoby udziału siedlisk. Korekta tego problemu wymaga projektu losowania albo modelu uwzględniającego reprezentację warstw środowiska. Sama liczba punktów nie zastępuje wiedzy o tym, dlaczego pobrano próbę właśnie tam.
Trzy poziomy różnorodności także powinny pozostać rozdzielone. Różnorodność alfa odnosi się do pojedynczej jednostki badanej, beta do różnic składu między jednostkami, a gamma do zasobu gatunków większego obszaru. Wyobraźmy sobie dwa regiony: w jednym każda próba ma liczne, lecz prawie te same gatunki, w drugim próby są mniej bogate, ale bardziej odmienne. Ranking regionów zależałby od pytania, czy porównujemy przeciętne stanowisko, wymianę gatunków czy sumę regionalną. Jest to przykład logiczny, a nie dodatkowy wynik liczbowy badań.
Przy czytaniu mapy warto więc oddzielić punkty rzeczywiście zbadane od powierzchni przewidywanych przez model. Pytamy następnie, czy nowy obszar przypomina środowiska obecne w danych uczących i czy autorzy sprawdzili przewidywania na niezależnym materiale. W obszarze słabo reprezentowanym mapa może przede wszystkim wskazywać, gdzie potrzebne są nowe próby. Kolejna kampania terenowa ma wtedy wartość nie tylko jako dopisanie rekordu, lecz jako sprawdzenie, czy uogólnienie działa poza najlepiej rozpoznanymi regionami.
Rozdział 20Znaczenie dla człowieka
Wermikompostowanie
Wermikompostowanie wykorzystuje współdziałanie dżdżownic i mikroorganizmów w przekształcaniu materiałów organicznych. Powstający materiał różni się właściwościami od substratu wyjściowego. Jego wpływ na rośliny zależy od pochodzenia surowca, stopnia przetworzenia, ilości zastosowanego produktu i warunków uprawy. Ocena powinna dotyczyć określonego wermikompostu, nie samej etykiety „naturalny”. Nie każdy gatunek dżdżownicy jest odpowiedni do intensywnego przetwarzania nagromadzonego materiału organicznego. [46, 68]
Metaanaliza Blouin i współautorów z 2019 r. wskazała średni wzrost plonu o 26% po zastosowaniu wermikompostu w analizowanych doświadczeniach. Autorzy zwrócili uwagę na nadreprezentację dużych efektów w literaturze oraz potrzebę dalszych porównań. Nie jest to ten sam rodzaj doświadczenia co dodanie żywych dżdżownic do gleby: wermikompost wnosi także materię organiczną i składniki pokarmowe. Z wyniku nie można wyprowadzić jednej najlepszej dawki ani zapewnienia, że każdy produkt przewyższy dowolny zwykły kompost. [68]
Ekotoksykologia i testy laboratoryjne
Dżdżownice wykorzystuje się jako organizmy testowe do badania oddziaływania substancji w glebie. Wytyczna OECD nr 222 opisuje test rozrodu z użyciem Eisenia fetida lub E. andrei. Po pierwszych czterech tygodniach ocenia się dorosłe, a po kolejnych czterech liczbę młodych. Mierzenie rozrodu jest ważne, ponieważ substancja może ograniczać funkcjonowanie populacji bez natychmiastowego zabijania wszystkich dorosłych. [15]
Test laboratoryjny zapewnia kontrolę warunków i porównywalność, lecz nie odtwarza całej złożoności pola lub lasu. Wynik dla jednego gatunku i określonego podłoża nie daje automatycznie prognozy dla wszystkich pierścienic w każdym środowisku. Ocenę uzupełnia się informacjami o narażeniu, trwałości substancji i innych organizmach. Sama obecność kilku żywych dżdżownic w próbce nie jest certyfikatem czystości gleby. [74, 15]
Dobór testu do badanego efektu
Test ekotoksykologiczny zaczyna się od wskazania punktu końcowego, czyli mierzonej odpowiedzi. W wytycznej OECD 207 występują dwa odmienne układy: kontakt z nasączoną bibułą i ekspozycja w sztucznej glebie. W części glebowej przeżycie ocenia się po 7 i 14 dniach. Taki wynik opisuje ostrą toksyczność w określonych warunkach; nawet wysoka przeżywalność nie odpowiada na pytanie o późniejszy rozród, biomasę potomstwa czy skład zespołu w terenie. [76]
Dla rozrodu stosuje się inne procedury i inne organizmy. OECD 220 obejmuje Enchytraeus albidus, przedstawiciela wazonkowców, a OECD 225 wodnego Lumbriculus variegatus w układzie osad–woda. Zastosowanie kilku modeli nie jest dublowaniem tego samego pomiaru: organizmy korzystają z odmiennych siedlisk, a substancja dociera do nich w różnych warunkach. Przenosząc wniosek, trzeba zachować zgodność gatunku, drogi ekspozycji, podłoża, czasu i analizowanej odpowiedzi. [77, 78]
Wskaźnik ECx opisuje oszacowane stężenie powodujące określony procent zmiany badanego punktu końcowego, na przykład ograniczenie rozrodu. Wytyczna OECD 220 zaleca objęcie tego poziomu zakresem stężeń, tak aby wynik wynikał z interpolacji. NOEC oznacza najwyższe badane stężenie bez statystycznie wykrytego efektu w zastosowanej procedurze. Nie jest synonimem biologicznego progu absolutnego bezpieczeństwa: jego interpretacja pozostaje związana z zakresem dawek, zmiennością i siłą wykrywania efektu. [78]
OECD 317 rozdziela fazę pobierania związku z podłoża i fazę eliminacji po przeniesieniu do czystej gleby. Pozwala to analizować nie tylko obecność substancji w organizmie, lecz także dynamikę jej wymiany. Współczynnik bioakumulacji i stałe kinetyczne opisują określony układ organizm–substancja–podłoże. Z ich wartości nie wynika automatycznie, ile zanieczyszczenia zniknie z pola ani czy skażony materiał będzie bezpieczny dla kolejnych poziomów sieci pokarmowej. To odrębne pytania o bilans masy i dalsze narażenie. [60]
OECD 256, opublikowana 2 lipca 2026 r., rozszerza perspektywę na warunki terenowe. Zespoły dżdżownic na poletkach z badaną substancją porównuje się z kontrolą bez jej zastosowania. Uwzględnia się stan sprzed aplikacji oraz obserwacje po niej. Wykres przedstawia minimalny rozkład terminów podany w wytycznej. Badanie zwykle trwa rok i może wymagać przedłużenia. Dzięki powtarzaniu ocen rozdziela się krótkotrwałą odpowiedź od utrzymującej się zmiany; schemat nie zastępuje pełnego protokołu i kryteriów jego ważności. [79]
Tabela 21. Jakie pytanie rozstrzyga wybrana wytyczna OECD
| Wytyczna | Organizm i układ | Podstawowa odpowiedź | Ramy czasowe |
|---|---|---|---|
| 207; 1984 [76] | Dżdżownice; kontakt lub sztuczna gleba | Ostra toksyczność, przeżycie | Bibuła: 48 h; gleba: oceny po 7 i 14 dniach |
| 222; 2016 [15] | Eisenia fetida / E. andrei; gleba | Przeżycie dorosłych i liczba młodych | Łącznie 8 tygodni |
| 220; 2016 [78] | Enchytraeus albidus; gleba | Przeżycie i rozród wazonkowców | Test właściwy: 6 tygodni |
| 225; 2007 [77] | Lumbriculus variegatus; osad–woda | Rozród i biomasa | 28 dni |
| 317; 2010 [60] | Lądowe skąposzczety; gleba | Pobieranie, eliminacja i bioakumulacja | Dwie fazy; czas zależy m.in. od organizmu i osiągnięcia stanu ustalonego |
| 256; 2026 [79] | Zespół dżdżownic; poletka terenowe | Zagęszczenie, biomasa i różnorodność | Zwykle rok; możliwe przedłużenie |
Zestawienie zakresów oficjalnych wytycznych; nie zawiera instrukcji przygotowania dawek ani pełnych warunków ważności testów. W każdej analizie należy podać użyte wydanie dokumentu.
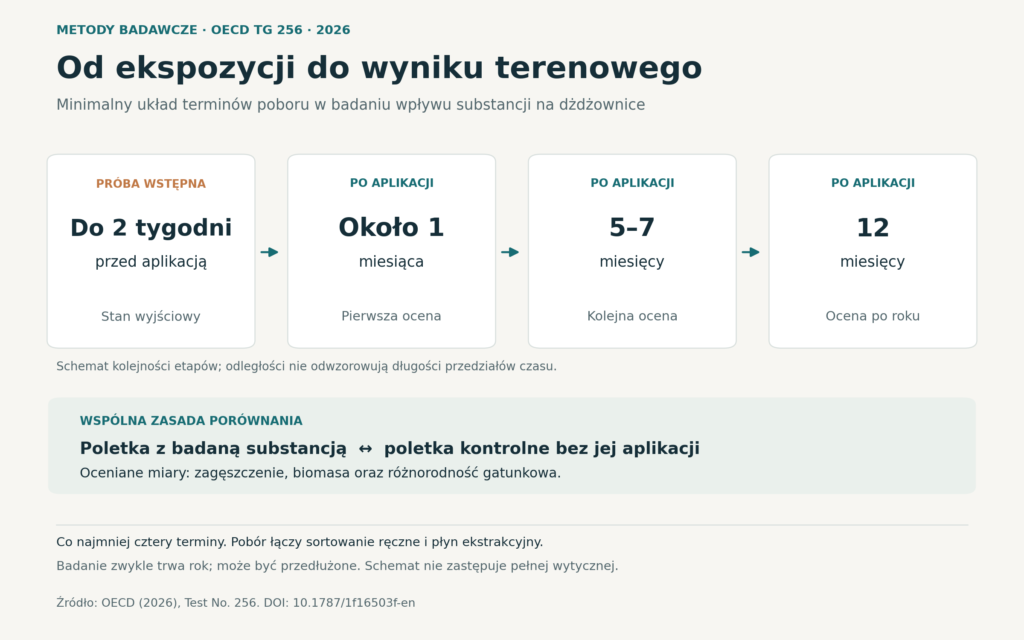
Pijawki w medycynie i badaniach
Pijawki medyczne mają określone zastosowanie wspomagające w sytuacjach zaburzonego odpływu żylnego, m.in. przy niektórych płatach i przeszczepach tkanek. Oficjalna dokumentacja FDA opisuje tworzenie przedłużonego, miejscowego krwawienia jako sposób ograniczania zastoju żylnego. Ten wąski zakres nie uzasadnia przedstawiania pijawek jako uniwersalnej terapii wielu niezwiązanych chorób. Opis w kompendium ma charakter biologiczny i historyczno-medyczny; nie jest instrukcją samodzielnego leczenia. [80]
Istotna jest poprawna identyfikacja. Badania molekularne z 2007 r. wykazały, że przebadane komercyjne pijawki oznaczane jako Hirudo medicinalis należały do H. verbana. Wniosek dotyczy badanego materiału i pomaga rozumieć starszą literaturę. Nie pozwala orzekać o każdym dzisiejszym dostawcy. Nazwa „pijawka medyczna” opisuje zastosowanie, podczas gdy nazwa gatunkowa mówi o tożsamości biologicznej; rozróżnienie ma znaczenie również dla ochrony przyrody. [67]
Biologia rozwoju i nowe zasoby danych
Pierścienice są modelami pozwalającymi badać segmentację, funkcjonowanie neuronów, rytmy biologiczne i odtwarzanie tkanek. Ich wartość nie polega na reprezentowaniu wszystkich zwierząt, lecz na umożliwieniu porównania różnych rozwiązań biologicznych. Dane genomowe i obrazowanie łączy się z eksperymentami na określonych gatunkach. Powiązanie obserwacji z poprawnie oznaczonym okazem pozostaje równie ważne jak zaawansowana technika pomiaru. [11, 54, 49]
Opis platformy AnnelidaDB opublikowany 31 października 2026 r. obejmował zasoby omiczne dla 1121 gatunków, w tym genomy jądrowe 152 gatunków. Są to liczby zasobów w wersji bazy przedstawionej w publikacji, a nie liczba poznanych biologicznie gatunków czy wszystkie dane istniejące na świecie. Kategorie częściowo się pokrywają i nie należy ich sumować. Baza pokazuje rozwój narzędzi badawczych, lecz duża część różnorodności Annelida nadal wymaga podstawowej dokumentacji taksonomicznej i ekologicznej. [19, 81]
Rozdział 21Zagrożenia i ochrona siedlisk
Zmiana warunków wodnych, utrata pokrywy roślinnej, przekształcanie osadów i zanieczyszczenia mogą oddziaływać na pierścienice różnymi drogami. Dla jednego gatunku decydujące będzie wysychanie niewielkiego zbiornika, dla innego zmiana zasolenia lub dostępności pokarmu. W rolnictwie istotne są również sposób uprawy, resztki roślinne i narażenie na substancje chemiczne. Reakcja zespołu nie sprowadza się do jednej liczby: może zmienić się skład gatunkowy, struktura wielkości i rozród, nawet gdy obecne są nadal liczne osobniki. [16, 73, 74, 71, 72]
Tabela 22. Presje środowiskowe i właściwa skala interpretacji
| Presja | Możliwy mechanizm | Co trzeba sprawdzić |
|---|---|---|
| Zmiana wilgotności i temperatury | Zmiana aktywności, przeżywalności lub dostępności siedliska | Gatunek, mikroklimat, czas trwania i pora roku. [16, 14] |
| Intensywna uprawa gleby | Zaburzenie siedliska i warunków pokarmowych | System uprawy, czas stosowania oraz miara odpowiedzi. [73, 71] |
| Pestycydy i inne substancje | Oddziaływanie na przeżywanie, zachowanie lub rozród | Substancja, dawka, ekspozycja i mieszaniny. [74, 15] |
| Osuszanie i zanik zbiorników | Utrata miejsca życia gatunków wodnych | Stan konkretnego siedliska i łączność z innymi stanowiskami. [72] |
| Introdukcje | Nowe oddziaływania z fauną, ściółką i roślinnością | Naturalny zasięg, droga przeniesienia i podatność ekosystemu. [9, 10] |
Tabela przedstawia mechanizmy i pytania diagnostyczne, nie jednakowy poziom ryzyka dla wszystkich Annelida.
Przegląd inwazji w Ameryce Północnej opublikowany w 2024 r. wykazał 70 obcych gatunków dżdżownic. Ich obecność jest wynikiem różnych dróg przenoszenia, a znaczenie ekologiczne zależy od miejsca. W lasach, których organizmy i struktura ściółki kształtowały się bez takich zespołów, dżdżownice mogą silnie zmienić warstwę organiczną i warunki dla innych gatunków. Stwierdzenie ich korzystnego wpływu na jedną uprawę nie rozstrzyga o skutkach wprowadzenia do innego ekosystemu. [9]
Badanie 80 powierzchni w czterech północnoamerykańskich lasach wykazało, że większa intensywność inwazji wiązała się z mniejszą liczebnością i bogactwem części fauny glebowej. Praca terenowa dokumentuje zależności w konkretnych lasach, a jej wyników nie należy traktować jako procentowej prognozy dla całej planety. Z ekologicznego punktu widzenia uzasadniona jest ostrożność w przenoszeniu organizmów, ziemi i materiałów hodowlanych między obszarami; organizm kupiony do jednego celu może stać się elementem nowej sieci oddziaływań. [9, 10]
W syntezie badań nad pestycydami z 2023 r. ujęto 54 prace dotyczące różnych grup fauny glebowej; dżdżownice występowały w 12 z nich. Ogólny wynik dla całej fauny nie jest automatycznie procentem strat dżdżownic. Standaryzowany współczynnik efektu, taki jak Hedgesa g, ma inne znaczenie niż procent zmiany liczebności. Rzetelny opis oddziaływania wymaga podania zarówno grupy organizmów, jak i wskaźnika oraz warunków narażenia. [74]
Dżdżownice a bilans gazów cieplarnianych
Procesy wspierające mineralizację materii organicznej mogą jednocześnie zmieniać emisję gazów z gleby. Starsza metaanaliza z 2013 r. wskazywała wzrost emisji CO₂ i N₂O przy obecności dżdżownic. W dwuletnim doświadczeniu opublikowanym w 2023 r., symulującym rotację trzech upraw w dużych lizymetrach, nie stwierdzono natomiast istotnego skumulowanego wzrostu emisji. Wyniki odpowiadają na pytania w odmiennych układach i okresach obserwacji. [82, 83]
Nie uzasadnia to ani uniwersalnego hasła „dżdżownice ocieplają klimat”, ani przeciwnego zapewnienia o ich klimatycznej neutralności. Trzeba uwzględniać rośliny, dopływ materii, czas pomiaru, warunki tlenowe i poszczególne gazy. Również większy plon i bilans gazów cieplarnianych to oddzielne wyniki, które należy analizować wspólnie. Złożony proces ekologiczny nie ma jednej stałej wartości przypisanej całemu typowi zwierząt. [6, 82, 83]
Rozdział 22Pierścienice w Polsce
Polskie środowiska lądowe, śródlądowe i przybrzeżne reprezentują odmienne warunki życia pierścienic. Ogród, torfowisko, osad rzeczny i dno słonawego akwenu nie są równoważnymi miejscami występowania. Do interpretacji obserwacji potrzebne są nazwa gatunku, lokalizacja i warunki siedliskowe. W kompendium nie podano jednej liczby „pierścienic Polski”, ponieważ wymagałaby zdefiniowania terytorium, zakresu grup, statusu stwierdzeń i aktualnego katalogu taksonomicznego. Brak takiej liczby jest dokładniejszy niż łączenie niespójnych zestawień.
Dobrze udokumentowanym przykładem ochrony jest pijawka lekarska Hirudo medicinalis. W obowiązującym, sprawdzonym tekście jednolitym rozporządzenia została wymieniona w załączniku nr 2, w pozycji 210, jako gatunek objęty ochroną częściową. W dyrektywie siedliskowej znajduje się w załączniku V, dotyczącym gatunków, których pozyskiwanie i eksploatacja mogą podlegać środkom zarządzania. Zakres ochrony krajowej i znaczenie załącznika unijnego to odrębne kwestie. Stan przepisów sprawdzono 13 listopada 2026 r. [69, 84, 70]
W monitoringu GIOŚ z 2021 r. objęto badaniem 41 stanowisk pijawki lekarskiej w polskiej części regionu kontynentalnego. To liczba badanych stanowisk, a nie pełny spis populacji w kraju. W raporcie wskazywano m.in. zanik i wysychanie małych zbiorników. Różnicy między liczbą stanowisk z kolejnych etapów monitoringu nie wolno automatycznie odczytywać jako procentowej zmiany liczebności pijawek: zestaw powierzchni mógł się zmieniać, a każde stanowisko ma własną historię obserwacji. [72]
Ochrona gatunku wodnego wymaga utrzymania odpowiednich warunków całego siedliska, a nie tylko pozostawienia pojedynczych zwierząt. W przypadku niewielkich zbiorników ważne jest ich trwanie i możliwość funkcjonowania lokalnej sieci stanowisk. Materiału hodowlanego nie należy utożsamiać z lokalną populacją dziką, zwłaszcza gdy nazwa handlowa nie gwarantuje oznaczenia gatunku. Wprowadzanie pijawek do naturalnego zbiornika nie wynika jako działanie ochronne z samego faktu, że gatunek jest objęty ochroną. [67, 70, 72]
Interpretacja wyników monitoringu w Polsce
Metodyka Koperskiego i Bonka dla pijawki lekarskiej rozróżnia ocenę populacji, siedliska oraz perspektyw ochrony. Oceniając siedlisko, uwzględnia między innymi brzegi zbiornika, głębokość, wodę, roślinność i obecność ryb. Dokument wymaga zapisywania czasu poszukiwań i przewiduje ponowną kontrolę w określonych sytuacjach, między innymi po początkowym niewykryciu gatunku. Liczba stwierdzeń jest więc wynikiem procedury terenowej, a nie samodzielnym spisem wszystkich osobników w zbiorniku. [85]
Wskaźnik nazwany liczebnością trzeba czytać wraz z jego definicją operacyjną. W tej metodyce ocena zależy m.in. od wykrycia gatunku podczas pierwszej lub kolejnej kontroli. Zmiana klasy oceny nie daje bezpośrednio procentowej zmiany populacji. Podobnie ocena stanu siedliska i prognoza jego trwałości odpowiadają na inne pytania niż sama obecność pijawki w dniu wizyty. Dokument przestrzega również przed wyciąganiem wniosku o perspektywach ochrony na podstawie jednego sezonu. [85]
W praktyce porównania wieloletniego potrzebny jest stały identyfikator stanowiska oraz rejestr zmian metody, daty i nakładu poszukiwań. Jeśli w drugim roku zbadano inny zestaw zbiorników, różnica łącznej liczby stwierdzeń miesza zmianę biologiczną ze zmianą próby. Najpierw porównuje się stanowiska wspólne, następnie analizuje nowe i utracone miejsca oraz przyczyny braku kontroli. Zasada ta dotyczy zarówno pijawki lekarskiej, jak i projektów monitoringu innych pierścienic.
Niewykrycie i nieobecność są odrębnymi zdarzeniami. W czysto ilustracyjnym modelu, przy prawdopodobieństwie wykrycia obecnego gatunku równym 0,5 podczas jednej wizyty, prawdopodobieństwo trzech niezależnych niewykryć wyniosłoby (1 − 0,5)³ = 0,125. Wartość ta nie jest oszacowaniem dla pijawki lekarskiej: prawdziwą wykrywalność trzeba zbadać, a kolejne wizyty mogą nie być niezależne. Przykład pokazuje jednak, dlaczego powtarzanie kontroli i zapis warunków zmieniają siłę wniosku o zaniku stanowiska.
Rozdział 23Jak badać i rozpoznawać pierścienice
Obserwacja zaczyna się od dokumentacji: miejsca, daty, rodzaju podłoża i sposobu znalezienia zwierzęcia. Dla fotografii przydatne są skala oraz ujęcia części przedniej, siodełka u dojrzałych siodełkowców i cech powierzchni ciała. Trzeba zanotować, czy osobnik był żywy, dojrzały i kompletny. Brak siodełka u młodej dżdżownicy nie oznacza automatycznie innej dużej grupy systematycznej. Zdjęcie pozwala czasem rozpoznać grupę, lecz nie zawsze gatunek. [1, 32, 28]
Specjaliści porównują układ szczecinek, budowę parapodiów, segmentów, aparatu gębowego i narządów rozrodczych. Nowoczesny klucz ANNiKEY z 2025 r. obejmuje 166 jednostek głównie na poziomie rodzin, opisanych zestawem 334 cech. Tak rozbudowany zestaw pokazuje, dlaczego samo umaszczenie lub długość ciała może być niewystarczające. Klucz rodzinowy i oznaczenie gatunku odpowiadają na różne pytania; prawidłowe ustalenie rodziny nie kończy identyfikacji. [1]
Metody molekularne pomagają wykrywać linie trudne do odróżnienia morfologicznie, sprawdzać materiał hodowlany i rekonstruować pokrewieństwo. Sekwencja DNA nie zastępuje jednak dobrze udokumentowanego okazu. Błędnie podpisany materiał odniesienia może przenieść pomyłkę na kolejne oznaczenia. Dlatego szczególnie wartościowe są badania łączące morfologię, lokalizację, dane molekularne i porównanie z opisem gatunku. Przykład komercyjnych pijawek pokazuje, że taka kontrola może zmienić interpretację wcześniejszych doświadczeń. [1, 67]
W badaniach ilościowych należy z góry ustalić wielkość próbki, metodę zbioru i liczbę powtórzeń. Obserwacja powierzchni, przeszukiwanie wycinka gleby i pobór rdzenia osadu ujawniają różne części zespołu. Porównywanie próbek wymaga uwzględnienia pory roku i warunków, które wpływają na aktywność zwierząt. Nieobecność w jednej próbie oznacza niewykrycie zastosowaną metodą w danym terminie; nie zawsze dowodzi nieobecności w całym siedlisku. [14, 15, 72]
Tabela 23. Minimalny opis potrzebny do interpretacji wyniku
| Informacja | Dlaczego ma znaczenie |
|---|---|
| Gatunek lub poziom oznaczenia | Pozwala ocenić, czy porównuje się ten sam organizm lub porównywalne grupy. |
| Miejsce i termin | Warunki lokalne i sezon wpływają na wykrywalność oraz aktywność. |
| Metoda i wielkość próby | Umożliwia przeliczenie wyniku i ocenę, której części zespołu dotyczy. |
| Jednostka i rodzaj miary | Osobniki, gatunki i masa nie są zamienne; świeża i sucha masa też się różnią. |
| Liczba powtórzeń i niepewność | Jedna obserwacja nie opisuje zmienności całego siedliska. |
| Wariant odniesienia | Procent zmiany wymaga wskazania, z czym porównano wynik. |
| Zakres wnioskowania | Oddziela wynik dla próbki od hipotezy dla regionu lub całej planety. |
Synteza zasad interpretacji zastosowanych w badaniach [14, 6, 7, 8, 15, 72].
Od próbki do porównywalnego wyniku
Aktualnym dokumentem ISO dotyczącym ręcznego sortowania i ekstrakcji dżdżownic jest ISO 23611-1:2026, wydanie trzecie, opublikowane w czerwcu 2026 r. Zastąpiło wydanie z 2018 r. Oficjalny zakres obejmuje pobieranie i postępowanie z dżdżownicami z gleb terenowych do zastosowań bioindykacyjnych. Wyłącza gleby częściowo wodne, m.in. niektóre środowiska bagienne i brzegi cieków. Nie jest więc wspólną procedurą dla wszystkich pierścienic żyjących w glebie, osadzie i wodzie. [86]
Dobór metody zmienia to, co można wykryć. Pelosi i współautorzy porównali w polach rolniczych kilka płynów wypłaszających, używanych samodzielnie i w połączeniu z sortowaniem ręcznym. Różnice między wariantami zależały od tego, czy dodano przeszukiwanie gleby. Wniosek metodologiczny nie polega na wskazaniu jednego domowego preparatu, lecz na potrzebie opisania kompletnego protokołu. Wynik po jednym sposobie ekstrakcji nie powinien być bez sprawdzenia łączony z wynikiem uzyskanym inną kombinacją metod. [87]
Jednostkę obserwacji definiuje się przed wyjściem w teren. Osobniki w jednej próbce nie są niezależnymi powtórzeniami wpływu gospodarowania na całe pole. Jeżeli pobrano kilka monolitów z jednego poletka, opisują one zmienność wewnątrz tego poletka. Aby wnioskować o różnicy systemów użytkowania, potrzebna jest odpowiednia replikacja na poziomie, na którym systemy rzeczywiście się różnią. Kolejne terminy tego samego stanowiska również tworzą serię powiązaną, a nie zbiór nowych, niezależnych lokalizacji.
Zagęszczenie oblicza się z liczby zebranych osobników i powierzchni objętej poborem: D = n/A. Wartość w osobnikach na metr kwadratowy powinna zachować informację o głębokości próbki. Dwie próby o tej samej powierzchni, lecz różnej głębokości nie obejmują tej samej objętości siedliska. Przy biomasie analogicznie podaje się masę na powierzchnię, ale wcześniej ustala, czy ważono materiał świeży, suchy, żywy czy zakonserwowany. Same zgodne symbole jednostek nie gwarantują zgodności procedur.
Oznaczanie młodych osobników wymaga jawnego potraktowania niepewności. Jeśli część materiału rozpoznano tylko do rodzaju lub grupy, nie należy dopisywać mu gatunków na podstawie proporcji wśród dorosłych bez wyraźnego modelu i uzasadnienia. Rozsądnym wynikiem może być osobna liczba dorosłych oznaczonych do gatunku, młodych oznaczonych szerzej i okazów nieoznaczonych. Zwiększa to przejrzystość porównań: wiadomo wtedy, czy niższe bogactwo gatunkowe wynikało z uboższego zespołu, czy z mniejszej rozdzielczości identyfikacji. [1, 75]
Przed analizą warto zapisać reguły postępowania z brakami. Niewykonany pobór nie jest zerem, a niezważony okaz nie ma biomasy równej zeru. Utrata etykiety, niepełna próbka i brak oznaczenia to różne problemy. Zachowanie tych informacji umożliwia analizę wrażliwości: sprawdzenie, czy wniosek utrzymuje się po ograniczeniu materiału do prób najbardziej porównywalnych. W połączeniu z identyfikatorami stanowisk, kodem analizy i słownikiem zmiennych tworzy to dokumentację pozwalającą niezależnie prześledzić drogę od materiału terenowego do wykresu.
Tabela 24. Warunki porównywalności: co zachować w zbiorze danych
| Element | Zapis potrzebny do analizy | Błąd, któremu zapobiega |
|---|---|---|
| Hierarchia próby | Identyfikatory badania, stanowiska, poletka, próbki i terminu | Traktowanie podprób jak niezależnych doświadczeń |
| Wysiłek i objętość | Powierzchnia, głębokość, liczba podprób, czas sortowania lub poszukiwań | Uznanie większego nakładu pracy za większą liczebność biologiczną |
| Ekstrakcja | Pełny wariant metody, kolejność etapów, odstępstwa | Łączenie selektywnie odławianych części zespołu. [87] |
| Taksonomia | Nazwa, poziom oznaczenia, stadium i status identyfikacji | Sztuczne zwiększanie lub zmniejszanie bogactwa gatunkowego |
| Masa i jednostka | Rodzaj masy, przygotowanie okazów, jednostka i podstawa przeliczenia | Porównywanie świeżej i suchej biomasy jak tej samej zmiennej |
| Braki i kontrola jakości | Oddzielne kody zera, braku pomiaru i próbki niepełnej | Zastępowanie nieznanych wartości zerami |
Autorska lista dokumentacyjna. Nie jest transkrypcją normy ISO ani pełnym protokołem terenowym; zakres normy podano osobno.
Rozdział 24Najczęstsze mity i pytania
Tabela 25. Popularne uproszczenia i poprawne wyjaśnienia
| Twierdzenie | Rzetelna odpowiedź |
|---|---|
| Każda pijawka pije krew | Występują także pijawki drapieżne; dieta zależy od gatunku. [18] |
| Z przeciętej dżdżownicy powstają dwie | Nie jest to ogólna reguła. Regeneracja zależy od gatunku i zakresu uszkodzenia. [12, 54, 49] |
| Obojnactwo oznacza samozapłodnienie | Wiele dżdżownic wymienia plemniki; istnieją też inne strategie i udokumentowane wyjątki. [50, 32] |
| Każda pierścienica ma trochoforę | Wiele form morskich ją ma; siodełkowce rozwijają się bez takiej wolno żyjącej larwy. [16, 11, 32] |
| Wszystkie mają identyczną anatomię | Plan budowy jest zróżnicowany; redukcje dotyczą m.in. szczecinek, celomy i krążenia. [1, 3, 17] |
| Każda dżdżownica poprawia każde siedlisko | Obce gatunki mogą silnie przekształcać ekosystemy, do których trafiły. [9, 10] |
| 6,5% dotyczy całej żywności świata | W modelu ta wartość dotyczyła czterech analizowanych zbóż. [7] |
| Pierścienice świadczą o brudnej wodzie | Wymagania i tolerancje różnią się między gatunkami; sama obecność typu nie diagnozuje jakości wody. [16, 18] |
Twierdzenia przytoczono jako przykłady błędnych uogólnień, nie jako fakty.
Rozpoznawanie dojrzałości dżdżownicy
Rozwinięte siodełko jest ważną cechą dojrzałości rozrodczej i pomaga w oznaczaniu. Jego położenie oraz kształt bywają diagnostyczne. Trzeba jednak uwzględnić gatunek i stan osobnika, a do identyfikacji używać także innych cech. Młode osobniki nie mają jeszcze w pełni rozwiniętej struktury. [32, 28]
Wyodrębnienie głowy
U wielu form przednia część ciała jest wyodrębniona funkcjonalnie i zawiera narządy czuciowe oraz część mózgową układu nerwowego. Stopień jej zróżnicowania jest bardzo różny. Użycie codziennego słowa „głowa” bywa wygodne, ale szczegółowy opis anatomiczny rozróżnia konkretne struktury przedniej części ciała. [3, 4]
Dobór dżdżownic do kompostowania
Gatunki różnią się ekologią. Formy związane z nagromadzeniami powierzchniowej materii organicznej mają inne wymagania niż dżdżownice prowadzące życie w głębszych korytarzach. Z podobnego wyglądu nie wynika wymienność gatunków w hodowli. Przy ocenie konkretnego systemu należy znać gatunek, substrat i warunki. [46, 68]
Interpretacja braku dżdżownic w obserwacji
Gleba zawiera wiele innych grup organizmów, a wykrywalność dżdżownic zależy od metody, warunków i sezonu. Jednorazowe spojrzenie na powierzchnię jest bardzo ograniczoną próbą. Rzetelna diagnoza obejmuje powtarzalne pobieranie próbek i więcej niż jeden wskaźnik biologiczny lub fizykochemiczny. [14, 71]
Kontakt ze znalezionymi pierścienicami
Bezpieczeństwo kontaktu zależy od gatunku. Nie należy traktować nieoznaczonego zwierzęcia morskiego jak znanej dżdżownicy ogrodowej. Do dokumentacji często wystarcza obserwacja i fotografia, a przy badaniach znaczenie mają właściwe postępowanie z okazem i zasady ochrony gatunkowej. Ten tekst nie zastępuje klucza do bezpiecznego obchodzenia się z konkretnym gatunkiem. [1, 69]
Rozdział 25Słownik najważniejszych pojęć
Tabela 26. Pojęcia użyte w kompendium
| Pojęcie | Znaczenie |
|---|---|
| Alkaliczność | Miara zdolności wody do zobojętniania kwasów; nie jest to pH. |
| Annelida | Naukowa nazwa typu pierścienic. |
| Bentos | Organizmy związane z dnem środowiska wodnego. |
| Bioirygacja | Wymiana wody w osadzie związana z aktywnością organizmów. |
| Bioturbacja | Biologiczne przemieszczanie i mieszanie gleby lub osadu. |
| Blastema | Skupienie komórek uczestniczących w odtwarzaniu utraconych struktur; ich pochodzenie i potencjał zależą od układu biologicznego. |
| Bogactwo gatunkowe | Liczba gatunków stwierdzona w określonym zbiorze lub próbie. |
| Celoma | Wtórna jama ciała; jej płyn może pełnić funkcję mechaniczną i transportową. |
| Chemosymbioza | Związek gospodarza z symbiontami wiążącymi węgiel nieorganiczny dzięki energii utleniania związków nieorganicznych. |
| Chety | Szczecinki wytwarzane w strukturach naskórkowych. |
| Clitellata | Siodełkowce, obejmujące m.in. dżdżownice i pijawki. |
| Detrytus | Martwa materia organiczna i jej rozdrobnione pozostałości. |
| Epitokia | Przemiana organizmu związana z rozrodem u wybranych pierścienic morskich, często obejmująca przystosowania do pływania. |
| Filogenomika | Badanie historii pokrewieństwa z wykorzystaniem dużych zbiorów danych genomowych lub transkryptomicznych. |
| Fototaksja | Ukierunkowany ruch organizmu względem źródła światła, ku niemu albo od niego. |
| Gatunek kryptyczny | Gatunek trudny do odróżnienia od pokrewnych wyłącznie po wyglądzie. |
| Homologia | Wspólne pochodzenie porównywanej cechy u różnych organizmów. Samo podobieństwo wyglądu nie jest jej wystarczającym dowodem. |
| Klad | Grupa obejmująca wspólnego przodka i wszystkich jego potomków. |
| Konektom | Mapa połączeń nerwowych w rozpatrywanym układzie lub jego części. |
| Linia komórkowa w rozwoju | Ciąg komórek powiązanych pochodzeniem, obejmujący komórkę wyjściową i jej potomstwo. |
| Metaanaliza | Ilościowa synteza wyników wielu badań zgodnie z określoną metodą. |
| Metameria | Powtarzalna, segmentowa organizacja kolejnych części ciała. |
| Metaproteomika | Analiza białek w materiale obejmującym więcej niż jeden organizm, np. gospodarza i jego symbionty. |
| Nefrydia | Narządy uczestniczące w wydalaniu i regulacji składu płynów. |
| Odróżnicowanie | Częściowe cofnięcie specjalizacji komórki, związane ze zmianą jej stanu i możliwości dalszego rozwoju. |
| Opsyny | Rodzina białek uczestniczących w odbiorze światła w układach fotoreceptorowych. |
| Parafiletyczność | Objęcie grupą przodka z pominięciem części jego potomków. |
| Parapodia | Nieczłonowane wyrostki boczne wielu pierścienic morskich. |
| Prostomium | Przedgębowy obszar ciała wyróżniany w opisach morfologicznych. |
| Pygidium | Końcowa część ciała, przed którą u wielu form znajduje się strefa wzrostu. |
| Remineralizacja | Przekształcanie materii organicznej z uwalnianiem składników nieorganicznych. |
| Septum | Przegroda; w omawianym kontekście oddziela części celomy. |
| Siodełko | Gruczołowy obszar naskórka związany z rozrodem siodełkowców. |
| Stan ancestralny | Rekonstruowana postać cechy u przodka rozpatrywanej grupy. |
| Transkryptom | Zbiór cząsteczek RNA obecnych w badanych komórkach lub tkankach w określonych warunkach. |
| Transmisja pozioma symbiontów | Nabywanie symbiontów ze środowiska lub od innych organizmów, zamiast bezpośredniego dziedziczenia w linii rodzic–potomstwo. |
| Trochofora | Typ orzęsionej larwy występujący u wielu, lecz nie wszystkich pierścienic. |
| Trofosom | Narząd zawierający symbionty, m.in. u Riftia. |
| Zagęszczenie | Liczba osobników przypadająca na jednostkę powierzchni lub objętości. |
| Zegar endogenny | Wewnętrzny mechanizm wytwarzający rytm, który może utrzymywać się również bez okresowo działającego bodźca zewnętrznego. |
Definicje robocze dostosowane do zakresu artykułu; szerszy kontekst: [1, 3, 17, 4, 16, 13, 14, 6, 8]. Rozwinięcia dotyczące filogenezy i biologii komórki: [23, 22, 42, 43, 52, 55, 63].
Rozdział 26Co wynika z wiedzy o pierścienicach
Znaczenie pierścienic najlepiej rozumieć przez powiązanie budowy z działaniem. Segmentacja i hydraulika ciała umożliwiają określone sposoby ruchu, tryb odżywiania wpływa na przemieszczanie materii, a rozród i rozwój decydują o odnowie populacji oraz rozsiedlaniu. Z tych procesów wynikają funkcje widoczne w glebie, osadach i sieciach pokarmowych. Różnorodność rozwiązań jest równie ważna jak wspólny plan organizacji. [3, 38, 16, 5, 8]
Najmocniejsze dane potwierdzają istotny udział dżdżownic w produkcji roślinnej i pierścienic morskich w funkcjonowaniu osadów, ale nie dają jednej wartości efektu dla wszystkich miejsc. Ochrona procesów biologicznych wymaga znajomości siedliska, gatunku i historii jego obecności. Rzetelne kompendium pozostawia miejsce na niepewność: podaje sprawdzone liczby, rozdziela obserwację od modelu i aktualizuje klasyfikację, gdy pojawiają się nowe dowody. [14, 6, 7, 8, 9, 10]
W skrócieNajczęstsze pytania
Czym są pierścienice?
Pierścienice (Annelida) to zwierzęta dwubocznie symetryczne, zaliczane do szerokiej radiacji Spiralia. Do rozpoznania ich budowy kluczowe są trzy pojęcia: segmentacja, szczecinki i celoma, czyli wtórna jama ciała. Żadna z tych cech nie jest jednak prostym testem bez wyjątków, dlatego rozpoznanie wymaga porównania kilku cech naraz (rozdział 1).
Ile jest gatunków pierścienic?
W zestawieniu opublikowanym w 2021 roku Magalhães i współautorzy oszacowali liczbę uznanych gatunków Annelida na 20 188, czyli około 20 200. To punkt odniesienia z jednej publikacji: liczba zmienia się wraz z nowymi opisami, rozpoznawaniem gatunków kryptycznych i rewizjami synonimów [19].
Czy z przeciętej dżdżownicy powstają dwie?
Nie jest to ogólna reguła. Zdolność do regeneracji zależy od gatunku i zakresu uszkodzenia, a przecięcie zwierzęcia nie gwarantuje powstania dwóch osobników [12] [54]. Etapy regeneracji opisuje rozdział 10.
Czy każda pijawka pije krew?
Nie. Występują także pijawki drapieżne, a dieta zależy od gatunku [18].
Jak dżdżownice wpływają na plony?
W metaanalizie van Groenigena i współautorów z 2014 roku obecność dżdżownic wiązała się średnio ze wzrostem plonu o 25% w analizowanych porównaniach. Efekt zależał od dopływu resztek, zagęszczenia dżdżownic i nawożenia, a przy wysokiej dostępności azotu słabł lub przestawał być istotny [6].
Czy dżdżownice dostarczają 6,5% żywności świata?
Nie. Model z 2023 roku przypisał aktywności dżdżownic około 6,5% produkcji kukurydzy, ryżu, pszenicy i jęczmienia oraz około 2,3% produkcji analizowanych bobowatych, łącznie ponad 140 mln ton rocznie. To oszacowanie dla wybranych upraw, a nie udział w całej żywności świata [7].
Czy pijawka lekarska jest chroniona w Polsce?
Dalej w atlasieGatunki i tematy z tego opracowania
Hasła gatunków omawianych w kompendium, z wymiarami, występowaniem i mapą.
Przeglądaj dalej
- Wszystkie hasła: pierścienice
- Pierścienice występujące w Polsce
- Quiz: pierścienice
- Oś czasu: dinozaury i zwierzęta wymarłe
- Porównaj dwa gatunki
Inne kompendia
Metodyka opracowania i dokumentacja grafik
Tekst przygotowano jako przegląd narracyjny obejmujący biologię, ekologię i zastosowania pierścienic. Materiał dobierano do pytań poszczególnych rozdziałów: klasyfikację oparto na opracowaniach taksonomicznych i filogenomicznych, mechanizmy na badaniach organizmów i syntezach specjalistycznych, a dane ilościowe na publikacjach przedstawiających pomiary, metaanalizy lub modele. Dokumenty instytucji publicznych wykorzystano do norm metodycznych, monitoringu i ochrony. Dobór jest celowy, więc opracowanie nie stanowi pełnego przeglądu systematycznego wszystkich prac o Annelida.
Weryfikacja obejmowała zgodność tytułu, autorów, roku i DOI lub adresu oficjalnej publikacji z tezą, dla której przywołano źródło. Rozdzielano rok publikacji od okresu zebrania danych. Przy nowych doniesieniach zachowano informację, czy wynik dotyczy analizy konkretnego gatunku, interpretacji skamieniałości, doświadczenia laboratoryjnego czy syntezy wielu badań. Datą zakończenia sprawdzania źródeł jest 13 listopada 2026 r. Przyszłe zmiany klasyfikacji, zasobów baz danych i przepisów mogą wymagać aktualizacji.
Zasada przypisania wniosku do źródła ma praktyczne znaczenie. Obecność określonej cząsteczki nie dowodzi jeszcze jej wyłącznej funkcji; zmiana ekspresji genu nie jest równoznaczna z wykazaniem, że gen samodzielnie powoduje regenerację. Korelacja terenowa wskazuje zależność, a rozstrzygnięcie przyczynowe wymaga dodatkowych założeń lub eksperymentu. Wykrycie efektu dla jednego gatunku i jednej zmiennej nie określa automatycznie zachowania całego typu. W tekście ograniczenia umieszczono obok twierdzeń, których dotyczą.
Wartości na wykresach zachowują stopień zaokrąglenia podany przez autorów prac. Nie wykonano nowej metaanalizy i nie odczytywano nieznanych wartości przedziałów ufności z obrazu rycin. Wykresy służą porównaniu zweryfikowanych oszacowań punktowych, a szczegóły niepewności należy sprawdzać w publikacjach źródłowych.
Schematy wykonano na potrzeby tego opracowania. Pokazują zależności i wybrane struktury, bez udawania mikrofotografii lub rekonstrukcji o znanej dokładności. Jeżeli grafika nie zawiera skali, nie należy z proporcji elementów wnioskować o wielkości organizmów, głębokości życia ani czasie rozwoju.
Bibliografia obejmuje zarówno badania pierwotne, jak i przeglądy, bazy danych oraz dokumenty urzędowe. Rodzaj źródła podano przy każdej pozycji, aby ułatwić ocenę jego zastosowania. Opracowanie nie przypisuje źródłom liczbowych ocen jakości bez odrębnej, jawnej metody. Przy danych brakujących lub nieporównywalnych zachowano opis ograniczenia zamiast uzupełniać tabelę niezweryfikowaną liczbą.
Bibliografia
Źródła są ponumerowane zgodnie z odsyłaczami w tekście. Typ źródła podano dla ułatwienia oceny charakteru dowodów. Dostęp do źródeł internetowych: 13 listopada 2026 r.
[1] Glasby C.J., Biriukova O., Martin P., Dyne G.R., Utevsky S., Wilson R.S. (2025). ANNiKEY Linear — diagnoses, descriptions, and a single-access identification key to Annelida family-level taxa. ZooKeys 1247:217–403. https://doi.org/10.3897/zookeys.1247.137606
Rodzaj źródła: klucz i diagnozy taksonomiczne.
[2] Struck T.H. i in. (2011). Phylogenomic analyses unravel annelid evolution. Nature 471:95–98. https://doi.org/10.1038/nature09864
Rodzaj źródła: badanie filogenomiczne.
[3] Purschke G., Bleidorn C., Struck T. (2014). Systematics, evolution and phylogeny of Annelida — a morphological perspective. Memoirs of Museum Victoria 71:247–269. https://doi.org/10.24199/j.mmv.2014.71.19
Rodzaj źródła: przegląd morfologiczny.
[4] Helm C. i in. (2018). Convergent evolution of the ladder-like ventral nerve cord in Annelida. Frontiers in Zoology 15:36. https://doi.org/10.1186/s12983-018-0280-y
Rodzaj źródła: badanie porównawcze.
[5] Capowiez Y., Marchán D., Decaëns T., Hedde M., Bottinelli N. (2024). Let earthworms be functional — Definition of new functional groups based on their bioturbation behavior. Soil Biology and Biochemistry 188:109209. https://doi.org/10.1016/j.soilbio.2023.109209
Rodzaj źródła: eksperyment porównawczy.
[6] van Groenigen J.W., Lubbers I.M., Vos H.M.J., Brown G.G., de Deyn G.B., van Groenigen K.J. (2014). Earthworms increase plant production: a meta-analysis. Scientific Reports 4:6365. https://doi.org/10.1038/srep06365
Rodzaj źródła: metaanaliza.
[7] Fonte S.J., Hsieh M., Mueller N.D. (2023). Earthworms contribute significantly to global food production. Nature Communications 14:5713. https://doi.org/10.1038/s41467-023-41286-7
Rodzaj źródła: globalny model przestrzenny.
[8] Rao A.M.F., Malkin S.Y., Montserrat F., Meysman F.J.R. (2014). Alkalinity production in intertidal sands intensified by lugworm bioirrigation. Estuarine, Coastal and Shelf Science 148:36–47. https://doi.org/10.1016/j.ecss.2014.06.006
Rodzaj źródła: eksperyment na rdzeniach osadu.
[9] Mathieu J., Reynolds J.W., Fragoso C., Hadly E. (2024). Multiple invasion routes have led to the pervasive introduction of earthworms in North America. Nature Ecology & Evolution 8:489–499. https://doi.org/10.1038/s41559-023-02310-7
Rodzaj źródła: synteza biogeograficzna.
[10] Jochum M. i in. (2021). Earthworm invasion causes declines across soil fauna size classes and biodiversity facets in northern North American forests. Oikos 130:766–780. https://doi.org/10.1111/oik.07867
Rodzaj źródła: badanie terenowe.
[11] Özpolat B.D. i in. (2021). The Nereid on the rise: Platynereis as a model system. EvoDevo 12:10. https://doi.org/10.1186/s13227-021-00180-3
Rodzaj źródła: przegląd badań modelowych.
[12] Kostyuchenko R.P., Kozin V.V. (2021). Comparative Aspects of Annelid Regeneration: Towards Understanding the Mechanisms of Regeneration. Genes 12(8):1148. https://doi.org/10.3390/genes12081148
Rodzaj źródła: przegląd regeneracji.
[13] Hinzke T. i in. (2019). Host-Microbe Interactions in the Chemosynthetic Riftia pachyptila Symbiosis. mBio 10(6):e02243-19. https://doi.org/10.1128/mBio.02243-19
Rodzaj źródła: badanie metaproteomiczne.
[14] Phillips H.R.P. i in. (2019). Global distribution of earthworm diversity. Science 366(6464):480–485. https://doi.org/10.1126/science.aax4851
Rodzaj źródła: globalna synteza danych terenowych.
[15] OECD (2016). Test No. 222: Earthworm Reproduction Test (Eisenia fetida/Eisenia andrei). OECD Guidelines for the Testing of Chemicals, Section 2. https://doi.org/10.1787/9789264264496-en
Rodzaj źródła: oficjalna wytyczna badawcza.
[16] Glasby C.J., Erséus C., Martin P. (2021). Annelids in Extreme Aquatic Environments: Diversity, Adaptations and Evolution. Diversity 13(2):98. https://doi.org/10.3390/d13020098
Rodzaj źródła: przegląd ekologii i ewolucji.
[17] Rouse G.W., Pleijel F. (2002). Characteristics of Annelida: Plesiomorphies and Other Features. Tree of Life Web Project. https://tolweb.org/articles/?article_id=57
Rodzaj źródła: autorskie opracowanie specjalistyczne.
[18] Phillips A.J., Govedich F.R., Moser W.E. (2020). Leeches in the extreme: Morphological, physiological, and behavioral adaptations to inhospitable habitats. International Journal for Parasitology: Parasites and Wildlife 12:318–325. https://doi.org/10.1016/j.ijppaw.2020.09.003
Rodzaj źródła: przegląd pijawek.
[19] Magalhães W.F. i in. (2021). Segmented worms (Phylum Annelida): a celebration of twenty years of progress through Zootaxa and call for action on the taxonomic work that remains. Zootaxa 4979(1):190–211. https://doi.org/10.11646/zootaxa.4979.1.18
Rodzaj źródła: przegląd taksonomiczny.
[20] Lewin T.D., Liao I.J.-Y., Luo Y.-J. (2024). Annelid Comparative Genomics and the Evolution of Massive Lineage-Specific Genome Rearrangement in Bilaterians. Molecular Biology and Evolution 41(9):msae172. https://doi.org/10.1093/molbev/msae172
Rodzaj źródła: badanie genomów.
[21] Struck T.H. i in. (2007). Annelid phylogeny and the status of Sipuncula and Echiura. BMC Evolutionary Biology 7:57. https://doi.org/10.1186/1471-2148-7-57
Rodzaj źródła: badanie filogenetyczne.
[22] EMBL-EBI Training (b.d.). Phylogenetics: an introduction — What is a phylogeny?; Branches; Nodes; Confidence; Alternative representation of phylogenies. Oficjalny kurs internetowy European Bioinformatics Institute. https://www.ebi.ac.uk/training/online/courses/introduction-to-phylogenetics/what-is-a-phylogeny/
Rodzaj źródła: oficjalny materiał metodyczny instytucji naukowej.
[23] Weigert A., Helm C., Meyer M., Nickel B., Arendt D., Hausdorf B., Santos S.R., Halanych K.M., Purschke G., Bleidorn C., Struck T.H. (2014). Illuminating the Base of the Annelid Tree Using Transcriptomics. Molecular Biology and Evolution 31(6):1391–1401. https://doi.org/10.1093/molbev/msu080
Rodzaj źródła: badanie filogenomiczne i rekonstrukcja stanów ancestralnych.
[24] Andrade S.C.S., Novo M., Kawauchi G.Y., Worsaae K., Pleijel F., Giribet G., Rouse G.W. (2015). Articulating ‘Archiannelids’: Phylogenomics and Annelid Relationships, with Emphasis on Meiofaunal Taxa. Molecular Biology and Evolution 32(11):2860–2875. https://doi.org/10.1093/molbev/msv157
Rodzaj źródła: badanie filogenomiczne.
[25] Xian X., Zhang H., Xiao S., Waloszek D., Maas A., Duan B. (2026). Polychaete annelids from the earliest Cambrian Period. PNAS 123(18):e2538071123. https://doi.org/10.1073/pnas.2538071123
Rodzaj źródła: badanie paleontologiczne.
[26] Kristof A., Wollesen T., Wanninger A. (2008). Segmental Mode of Neural Patterning in Sipuncula. Current Biology 18(15):1129–1132. https://doi.org/10.1016/j.cub.2008.06.066
Rodzaj źródła: badanie neuroanatomii rozwojowej.
[27] Seaver E.C., Yamaguchi E., Richards G.S., Meyer N.P. (2012). Expression of the pair-rule gene homologs runt, Pax3/7, even-skipped-1 and even-skipped-2 during larval and juvenile development of the polychaete annelid Capitella teleta does not support a role in segmentation. EvoDevo 3:8. https://doi.org/10.1186/2041-9139-3-8
Rodzaj źródła: badanie ekspresji genów rozwojowych.
[28] University of Florida IFAS Extension (b.d.). Earthworm, suborder Crassiclitellata, cohort Terrimegadrili (Jamieson 1988). EENY-532 / IN946. https://ask.ifas.ufl.edu/publication/in946
Rodzaj źródła: opracowanie uczelni.
[29] Purschke G., Müller M.C.M. (2006). Evolution of body wall musculature. Integrative and Comparative Biology 46(4):497–507. https://doi.org/10.1093/icb/icj053
Rodzaj źródła: przegląd anatomii porównawczej.
[30] Tilic E., Herkenrath T., Kirfel G., Bartolomaeus T. (2023). The cellular 3D printer of a marine bristle worm—chaetogenesis in Platynereis dumerilii (Audouin & Milne Edwards, 1834) (Annelida). Cell and Tissue Research 391:305–322. https://doi.org/10.1007/s00441-022-03731-9
Rodzaj źródła: badanie mikroanatomii.
[31] Hasse C. i in. (2010). Three consecutive generations of nephridia occur during development of Platynereis dumerilii (Annelida, Polychaeta). Developmental Dynamics 239(7):1967–1976. https://doi.org/10.1002/dvdy.22331
Rodzaj źródła: badanie rozwojowe.
[32] Brown K.D.; Earthworm Society of Britain (b.d.). Life cycle of an earthworm. Earthworm Society of Britain. https://www.earthwormsoc.org.uk/lifecycle
Rodzaj źródła: opracowanie organizacji specjalistycznej.
[33] Blakemore R. (2019). Australian Earthworms. Australian Museum; aktualizacja 25 lutego 2019 r. https://australian.museum/learn/animals/worms/australian-earthworms/
Rodzaj źródła: opracowanie instytucji naukowej.
[34] Kristof A., Wollesen T., Maiorova A.S., Wanninger A. (2011). Cellular and Muscular Growth Patterns During Sipunculan Development. Journal of Experimental Zoology Part B: Molecular and Developmental Evolution 316B(3):227–240. https://doi.org/10.1002/jez.b.21394
Rodzaj źródła: badanie rozwoju umięśnienia i proliferacji komórkowej.
[35] Quillin K.J. (1999). Kinematic scaling of locomotion by hydrostatic animals: ontogeny of peristaltic crawling by the earthworm Lumbricus terrestris. Journal of Experimental Biology 202(6):661–674. https://doi.org/10.1242/jeb.202.6.661
Rodzaj źródła: badanie kinematyki i skalowania lokomocji.
[36] Wilson R.J., Skierczynski B.A., Blackwood S., Skalak R., Kristan W.B. Jr (1996). Mapping motor neurone activity to overt behaviour in the leech: internal pressures produced during locomotion. Journal of Experimental Biology 199(6):1415–1428. https://doi.org/10.1242/jeb.199.6.1415
Rodzaj źródła: pomiary ciśnienia podczas lokomocji.
[37] Seaver E.C., Thamm K., Hill S.D. (2005). Growth patterns during segmentation in the two polychaete annelids, Capitella sp. I and Hydroides elegans: comparisons at distinct life history stages. Evolution & Development 7(4):312–326. https://doi.org/10.1111/j.1525-142X.2005.05037.x
Rodzaj źródła: badanie proliferacji komórkowej i segmentacji.
[38] Kier W.M. (2012). The diversity of hydrostatic skeletons. Journal of Experimental Biology 215:1247–1257. https://doi.org/10.1242/jeb.056549
Rodzaj źródła: przegląd biomechaniczny.
[39] Dorgan K.M., Jumars P.A., Johnson B., Boudreau B.P., Landis E. (2005). Burrow extension by crack propagation. Nature 433(7025):475. https://doi.org/10.1038/433475a
Rodzaj źródła: eksperyment biomechaniczny.
[40] Tyler-Walters H. (2008). Arenicola marina. Blow lug. MarLIN, Marine Biological Association of the United Kingdom. https://www.marlin.ac.uk/species/detail/1402
Rodzaj źródła: karta gatunku instytucji naukowej.
[41] Belato F.A., Coates C.J., Halanych K.M., Weber R.E., Costa-Paiva E.M. (2020). Evolutionary History of the Globin Gene Family in Annelids. Genome Biology and Evolution 12(10):1719–1733. https://doi.org/10.1093/gbe/evaa134
Rodzaj źródła: badanie molekularne.
[42] Jékely G., Colombelli J., Hausen H., Guy K., Stelzer E., Nédélec F., Arendt D. (2008). Mechanism of phototaxis in marine zooplankton. Nature 456:395–399. https://doi.org/10.1038/nature07590
Rodzaj źródła: eksperyment neurobiologiczny i model ruchu.
[43] Verasztó C. i in. (2018). Ciliary and rhabdomeric photoreceptor-cell circuits form a spectral depth gauge in marine zooplankton. eLife 7:e36440. https://doi.org/10.7554/eLife.36440
Rodzaj źródła: badanie konektomiczne, genetyczne i behawioralne.
[44] Felbeck H. (1981). Chemoautotrophic Potential of the Hydrothermal Vent Tube Worm, Riftia pachyptila Jones (Vestimentifera). Science 213(4505):336–338. https://doi.org/10.1126/science.213.4505.336
Rodzaj źródła: badanie biochemiczne.
[45] Budd G.C. (2008). Hediste diversicolor. Ragworm. MarLIN, Marine Biological Association of the United Kingdom. https://www.marlin.ac.uk/species/detail/1426
Rodzaj źródła: karta gatunku instytucji naukowej.
[46] Earthworm Society of Britain (b.d.). Earthworm ecology. Earthworm Society of Britain. https://www.earthwormsoc.org.uk/earthworm-ecology
Rodzaj źródła: opracowanie organizacji specjalistycznej.
[47] Cavanaugh C.M., Gardiner S.L., Jones M.L., Jannasch H.W., Waterbury J.B. (1981). Prokaryotic Cells in the Hydrothermal Vent Tube Worm Riftia pachyptila Jones: Possible Chemoautotrophic Symbionts. Science 213(4505):340–342. https://doi.org/10.1126/science.213.4505.340
Rodzaj źródła: badanie symbiozy.
[48] Tresguerres M., Katz S., Rouse G.W. (2013). How to get into bones: proton pump and carbonic anhydrase in Osedax boneworms. Proceedings of the Royal Society B 280:20130625. https://doi.org/10.1098/rspb.2013.0625
Rodzaj źródła: badanie fizjologiczne.
[49] Martinez Acosta V.G., Arellano-Carbajal F., Gillen K., Tweeten K.A., Zattara E.E. (2021). It Cuts Both Ways: An Annelid Model System for the Study of Regeneration in the Laboratory and in the Classroom. Frontiers in Cell and Developmental Biology 9:780422. https://doi.org/10.3389/fcell.2021.780422
Rodzaj źródła: przegląd modelu regeneracji.
[50] Plytycz B. i in. (2018). The existence of fertile hybrids of closely related model earthworm species, Eisenia andrei and E. fetida. PLOS ONE 13(1):e0191711. https://doi.org/10.1371/journal.pone.0191711
Rodzaj źródła: eksperyment hodowlany i genetyczny.
[51] Fischer A.H.L., Henrich T., Arendt D. (2010). The normal development of Platynereis dumerilii (Nereididae, Annelida). Frontiers in Zoology 7:31. https://doi.org/10.1186/1742-9994-7-31
Rodzaj źródła: pierwotne badanie rozwoju i atlas stadiów.
[52] Zantke J., Ishikawa-Fujiwara T., Arboleda E., Lohs C., Schipany K., Hallay N., Straw A.D., Todo T., Tessmar-Raible K. (2013). Circadian and circalunar clock interactions in a marine annelid. Cell Reports 5(1):99–113. https://doi.org/10.1016/j.celrep.2013.08.031
Rodzaj źródła: eksperymentalne badanie rytmów biologicznych.
[53] Poehn B., Krishnan S., Zurl M. i in. (2022). A Cryptochrome adopts distinct moon- and sunlight states and functions as sun- versus moonlight interpreter in monthly oscillator entrainment. Nature Communications 13:5220. https://doi.org/10.1038/s41467-022-32562-z
Rodzaj źródła: badanie biochemiczne, genetyczne i chronobiologiczne.
[54] Bhambri A. i in. (2018). Large scale changes in the transcriptome of Eisenia fetida during regeneration. PLOS ONE 13(9):e0204234. https://doi.org/10.1371/journal.pone.0204234
Rodzaj źródła: badanie transkryptomiczne.
[55] Stockinger A.W., Adelmann L., Fahrenberger M., Ruta C., Özpolat B.D., Milivojev N., Balavoine G., Raible F. (2024). Molecular profiles, sources and lineage restrictions of stem cells in an annelid regeneration model. Nature Communications 15:9882. https://doi.org/10.1038/s41467-024-54041-3
Rodzaj źródła: transkryptomika pojedynczych komórek i śledzenie linii komórkowych.
[56] Planques A., Malem J., Parapar J., Vervoort M., Gazave E. (2019). Morphological, cellular and molecular characterization of posterior regeneration in the marine annelid Platynereis dumerilii. Developmental Biology 445(2):189–210. https://doi.org/10.1016/j.ydbio.2018.11.004
Rodzaj źródła: eksperymentalne badanie regeneracji.
[57] Hallam J., Hodson M.E. (2020). Impact of different earthworm ecotypes on water stable aggregates and soil water holding capacity. Biology and Fertility of Soils 56:607–617. https://doi.org/10.1007/s00374-020-01432-5
Rodzaj źródła: eksperyment mezokosmowy.
[58] Solan M., Cardinale B.J., Downing A.L., Engelhardt K.A.M., Ruesink J.L., Srivastava D.S. (2004). Extinction and ecosystem function in the marine benthos. Science 306(5699):1177–1180. https://doi.org/10.1126/science.1103960
Rodzaj źródła: modelowanie funkcji z wykorzystaniem danych o zespołach bentosowych.
[59] Liu Q., Eisenhauer N., Scheu S., Reitz T., Schädler M. (2025). Grasslands support more diverse and resilient earthworm communities to climate change than croplands in Central Europe. Agriculture, Ecosystems & Environment 377:109259. https://doi.org/10.1016/j.agee.2024.109259
Rodzaj źródła: eksperyment terenowy obejmujący klimat i użytkowanie.
[60] OECD (2010). Test No. 317: Bioaccumulation in Terrestrial Oligochaetes. OECD Guidelines for the Testing of Chemicals, Section 3; 30 s. https://doi.org/10.1787/9789264090934-en
Rodzaj źródła: oficjalna wytyczna bioakumulacji.
[61] Chennu A., Volkenborn N., de Beer D., Wethey D.S., Woodin S.A. (2015). Effects of Bioadvection by Arenicola marina on Microphytobenthos in Permeable Sediments. PLOS ONE 10(7):e0134236. https://doi.org/10.1371/journal.pone.0134236
Rodzaj źródła: doświadczenia i modelowanie.
[62] Flores J.F., Fisher C.R., Carney S.L., Green B.N., Freytag J.K., Schaeffer S.W., Royer W.E. Jr. (2005). Sulfide binding is mediated by zinc ions discovered in the crystal structure of a hydrothermal vent tubeworm hemoglobin. Proceedings of the National Academy of Sciences USA 102(8):2713–2718. https://doi.org/10.1073/pnas.0407455102
Rodzaj źródła: badanie strukturalne i biochemiczne hemoglobiny.
[63] Nussbaumer A.D., Fisher C.R., Bright M. (2006). Horizontal endosymbiont transmission in hydrothermal vent tubeworms. Nature 441:345–348. https://doi.org/10.1038/nature04793
Rodzaj źródła: pierwotne badanie nabywania symbiontów podczas rozwoju.
[64] Vrijenhoek R.C., Johnson S.B., Rouse G.W. (2008). Bone-eating Osedax females and their harems of dwarf males are recruited from a common larval pool. Molecular Ecology 17(20):4535–4544. https://doi.org/10.1111/j.1365-294X.2008.03937.x
Rodzaj źródła: badanie genetyczne.
[65] Monterey Bay Aquarium Research Institute (b.d.). Osedax Studies. MBARI. https://www.mbari.org/project/osedax-studies/
Rodzaj źródła: strona projektu badawczego.
[66] Moggioli G. i in. (2023). Distinct genomic routes underlie transitions to specialised symbiotic lifestyles in deep-sea annelid worms. Nature Communications 14:2814. https://doi.org/10.1038/s41467-023-38521-6
Rodzaj źródła: porównawcze badanie genomów gospodarzy i symbiontów.
[67] Siddall M.E., Trontelj P., Utevsky S.Y., Nkamany M., Macdonald K.S. (2007). Diverse molecular data demonstrate that commercially available medicinal leeches are not Hirudo medicinalis. Proceedings of the Royal Society B 274(1617):1481–1487. https://doi.org/10.1098/rspb.2007.0248
Rodzaj źródła: badanie molekularne.
[68] Blouin M., Barrere J., Meyer N., Lartigue S., Barot S., Mathieu J. (2019). Vermicompost significantly affects plant growth. A meta-analysis. Agronomy for Sustainable Development 39:34. https://doi.org/10.1007/s13593-019-0579-x
Rodzaj źródła: metaanaliza.
[69] Minister Klimatu i Środowiska (2022). Obwieszczenie z 19 października 2022 r. w sprawie ogłoszenia jednolitego tekstu rozporządzenia w sprawie ochrony gatunkowej zwierząt. Dz.U. 2022 poz. 2380, załącznik nr 2, poz. 210. https://eli.gov.pl/eli/DU/2022/2380/ogl
Rodzaj źródła: akt prawny.
[70] Główny Inspektorat Ochrony Środowiska (b.d.). Pijawka lekarska Hirudo medicinalis. Monitoring gatunków i siedlisk przyrodniczych. https://siedliska.gios.gov.pl/przedmioty-monitoringu-menu/monitoring-zwierzat/monitoring-zwierzat-wszystkie-gatunki?id=297&view=article
Rodzaj źródła: oficjalna karta monitoringu.
[71] Betancur-Corredor B., Zaitsev A., Russell D.J. (2024). The impact of multiple agricultural land uses in sustaining earthworm communities in agroecosystems — A global meta-analysis. Scientific Reports 14:30160. https://doi.org/10.1038/s41598-024-81676-5
Rodzaj źródła: metaanaliza.
[72] Główny Inspektorat Ochrony Środowiska; koordynator Maciej Bonk (2021). Wyniki monitoringu pijawki lekarskiej Hirudo medicinalis w 2021 roku. Program monitoringu 2020–2022; rok danych 2021. https://siedliska.gios.gov.pl/images/pliki_pdf/wyniki/2020-2021/dla_zwierzat/pijawka_lekarska_2021_CON.pdf
Rodzaj źródła: raport monitoringu.
[73] Briones M.J.I., Schmidt O. (2017). Conventional tillage decreases the abundance and biomass of earthworms and alters their community structure in a global meta-analysis. Global Change Biology 23(10):4396–4419. https://doi.org/10.1111/gcb.13744
Rodzaj źródła: metaanaliza.
[74] Beaumelle L. i in. (2023). Pesticide effects on soil fauna communities — A meta-analysis. Journal of Applied Ecology 60(7):1239–1253. https://doi.org/10.1111/1365-2664.14437
Rodzaj źródła: metaanaliza.
[75] Phillips H.R.P. i in. (2021). Global data on earthworm abundance, biomass, diversity and corresponding environmental properties. Scientific Data 8:136. https://doi.org/10.1038/s41597-021-00912-z
Rodzaj źródła: opis i walidacja globalnego zbioru danych.
[76] OECD (1984). Test No. 207: Earthworm, Acute Toxicity Tests. OECD Guidelines for the Testing of Chemicals, Section 2; 9 s. https://doi.org/10.1787/9789264070042-en
Rodzaj źródła: oficjalna wytyczna toksyczności ostrej.
[77] OECD (2007). Test No. 225: Sediment-Water Lumbriculus Toxicity Test Using Spiked Sediment. OECD Guidelines for the Testing of Chemicals, Section 2; 31 s. https://doi.org/10.1787/9789264067356-en
Rodzaj źródła: oficjalna wytyczna dla układu osad–woda.
[78] OECD (2016). Test No. 220: Enchytraeid Reproduction Test. OECD Guidelines for the Testing of Chemicals, Section 2; 24 s. https://doi.org/10.1787/9789264264472-en
Rodzaj źródła: oficjalna wytyczna testu rozrodu wazonkowców.
[79] OECD (2026). Test No. 256: Determination of effects on earthworms (Oligochaeta, Annelida) in Field Studies. OECD Guidelines for the Testing of Chemicals, Section 2, No. 256; 32 s. https://doi.org/10.1787/1f16503f-en
Rodzaj źródła: oficjalna wytyczna terenowa.
[80] U.S. Food and Drug Administration (b.d.). Medicinal Leech — indications for use, BK251217. FDA, dokumentacja wyrobu. https://www.fda.gov/media/188162/download
Rodzaj źródła: oficjalny dokument wskazań.
[81] Li Y. i in. (2026). AnnelidaDB: a comprehensive platform of taxonomic and multi-omic resources across annelids. Nucleic Acids Research, gkag1087; online 31 października 2026 r. https://doi.org/10.1093/nar/gkag1087
Rodzaj źródła: publikacja bazy danych.
[82] Lubbers I.M., van Groenigen K.J., Fonte S.J., Six J., Brussaard L., van Groenigen J.W. (2013). Greenhouse-gas emissions from soils increased by earthworms. Nature Climate Change 3:187–194. https://doi.org/10.1038/nclimate1692
Rodzaj źródła: metaanaliza.
[83] Forey O. i in. (2023). Earthworms do not increase greenhouse gas emissions (CO2 and N2O) in an ecotron experiment simulating a three-crop rotation system. Scientific Reports 13:21920. https://doi.org/10.1038/s41598-023-48765-3
Rodzaj źródła: dwuletni eksperyment.
[84] Rada Wspólnot Europejskich (1992; tekst skonsolidowany 2025). Dyrektywa 92/43/EWG w sprawie ochrony siedlisk przyrodniczych oraz dzikiej fauny i flory. Załącznik V; wersja skonsolidowana z 14 lipca 2025 r. https://eur-lex.europa.eu/legal-content/PL/TXT/?uri=CELEX%3A01992L0043-20250714
Rodzaj źródła: akt prawny.
[85] Koperski P., Bonk M. (2015). 1034 Pijawka lekarska Hirudo medicinalis Linnaeus, 1758. W: Makomaska-Juchiewicz M., Bonk M. (red.), Monitoring gatunków zwierząt. Przewodnik metodyczny. Część IV. GIOŚ, Warszawa, s. 245–261; ISBN 978-83-61227-37-3. https://siedliska.gios.gov.pl/images/pliki_pdf/publikacje/pojedyncze_metodyki_dla_gat_zwierzat/Pijawka-lekarska-Hirudo-medicinalis.pdf
Rodzaj źródła: oficjalna metodyka monitoringu; wykorzystano część metodyczną.
[86] International Organization for Standardization (2026). ISO 23611-1:2026. Soil quality — Sampling of soil invertebrates — Part 1: Hand-sorting and extraction of earthworms. ISO, wydanie 3, 14 s.; publikacja 12 czerwca 2026 r. https://www.iso.org/standard/88092.html
Rodzaj źródła: oficjalny katalog i zakres normy.
[87] Pelosi C., Bertrand M., Capowiez Y., Boizard H., Roger-Estrade J. (2009). Earthworm collection from agricultural fields: Comparisons of selected expellants in presence/absence of hand-sorting. European Journal of Soil Biology 45(2):176–183. https://doi.org/10.1016/j.ejsobi.2008.09.013
Rodzaj źródła: eksperymentalne porównanie metod poboru.