Część ISystematyka i różnorodność
Rozdział 1Jak korzystać z kompendium
Trzy sposoby porządkowania wiedzy: pokrewieństwo, sposób życia i dowody. Każdy odpowiada na inne pytanie.
Ptaki można poznawać na kilka równoległych poziomów. Obserwator terenowy widzi przede wszystkim sylwetkę, ruch, głos i środowisko. Systematyk pyta o wspólne pochodzenie. Ekolog bada zależności z pokarmem, siedliskiem i innymi organizmami. Osoba analizująca ochronę przyrody potrzebuje natomiast wiedzieć, czy porównywane dane dotyczą tych samych gatunków, obszarów i okresów. Dobre kompendium powinno łączyć te perspektywy, a jednocześnie nie zacierać różnic między nimi.
Tytułowe „rodzaje ptaków” jest określeniem potocznym. W systematyce rodzaj ma ścisłe znaczenie i jest tylko jednym z poziomów klasyfikacji. Dlatego materiał prowadzi od zasad nazewnictwa i zestawienia rzędów do grup ekologicznych, biologii organizmu i praktyki obserwacji. Nie należy czytać spisu rozdziałów jak drzewa ewolucyjnego: sąsiedztwo tekstów o ptakach wodnych albo drapieżnych wynika z potrzeb czytelnika, a nie oznacza automatycznie najbliższego pokrewieństwa.
Dla kogo jest to opracowanie
Artykuł jest przeznaczony dla czytelników, którzy chcą wyjść poza rozpoznawanie kilku najbardziej znanych gatunków: osób obserwujących przyrodę, nauczycieli, redaktorów i twórców materiałów edukacyjnych. Poszczególne części można czytać samodzielnie, korzystając z odsyłaczy oraz słownika. Przydatna kolejność to klasyfikacja, przegląd głównych grup, biologia, katalog gatunków Polski, rozpoznawanie, a następnie monitoring i ochrona. Do pracy z liczbami warto wrócić do rozdziału o interpretacji statystyk, zanim wykorzysta się którykolwiek wykres w innym materiale.
Rozbudowane opisy nie zastępują atlasu z dokumentacyjnymi fotografiami wszystkich szat i płci. Zestawienia cech mają uczyć porównywania, a nie obiecywać rozpoznanie każdego osobnika na podstawie jednego koloru. W wielu przypadkach silniejszą wskazówką od szczegółu upierzenia jest kombinacja sylwetki, zachowania, siedliska i głosu. Cornell Lab proponuje właśnie łączenie takich grup cech podczas pierwszej oceny nieznanego ptaka. [1]
Tabela 1. Jakie pytanie zadajesz i gdzie szukać odpowiedzi
| Pytanie | Właściwy rodzaj informacji | Czego nie należy z nim utożsamiać |
|---|---|---|
| Do jakiej grupy należy gatunek? | Rząd, rodzina, rodzaj i gatunek w przyjętej wersji listy | Podobieństwo sylwetki albo wspólne siedlisko |
| Jak żyje i zdobywa pokarm? | Biologia, zachowanie, przystosowania; często zmienne sezonowo | Jedna cecha dzioba lub nazwa potocznej grupy |
| Czy występuje w Polsce? | Krajowa lista i status stwierdzeń w określonym wydaniu | Regularne lęgi w każdym regionie kraju |
| Czy ubywa osobników? | Trend populacji lub indeks liczebności dla zadanego obszaru | Zmiana liczby gatunków w spisie |
| Czy grozi mu wymarcie? | Ocena ryzyka, jej skala geograficzna i data | Sama rzadkość w miejscu jednej obserwacji |
| Czy to właśnie ten gatunek? | Zestaw cech, dokumentacja i porównanie z podobnymi gatunkami | Wynik pojedynczej aplikacji bez weryfikacji |
Porządek redakcyjny opracowania; szczegółowe podstawy i źródła przedstawiono w odpowiednich rozdziałach.
Jak rozumieć słowa ostrożności
Sformułowania „zwykle”, „u części gatunków” czy „w badanej próbie” nie są ozdobnikami. Określają granice wniosku. Jeżeli badanie opisuje kilkanaście ptaków z jednej kolonii, wynik może być bardzo wartościowy, ale nie staje się automatycznie średnią dla wszystkich populacji. Jeśli opracowanie wykrywa związek dwóch zmiennych, samo to nie rozstrzyga kierunku przyczynowości. W tekście zachowano te rozróżnienia również wtedy, gdy popularna opowieść o ptakach brzmiałaby efektowniej po ich pominięciu.
Wykresy w tym wydaniu są samodzielnymi wizualizacjami danych albo wyraźnie opisanymi schematami pojęciowymi. Schemat nie jest pomiarem anatomii, mapa pojęć nie jest mapą zasięgu, a przykład rachunkowy nie jest szeregiem obserwacyjnym. Podpisy określają przeznaczenie każdej grafiki. Pliki z danymi pozwalają prześledzić wartości wykorzystane w wykresach; bibliografia wskazuje źródła, do których warto sięgnąć przy aktualizacji artykułu.
Rozdział 2Jak rozumieć „rodzaje ptaków”? Systematyka bez skrótów myślowych
Klasyfikacja ma opisywać pokrewieństwo, a język obserwacji — wygląd i sposób życia. Te dwa porządki trzeba rozdzielać.
W codziennym języku „rodzaj ptaka” może oznaczać kaczkę, sowę, gatunek odwiedzający karmnik albo dowolną grupę podobnych zwierząt. W systematyce rodzaj jest konkretną rangą: mieści się między rodziną a gatunkiem. Pytając o rodzaje ptaków w sensie popularnym, warto więc od razu ustalić, czy chodzi o pokrewieństwo, środowisko życia, dietę czy oznaczenie pojedynczego osobnika. Mieszanie tych znaczeń prowadzi do pozornie prostych, ale mylących zestawień. „Ptaki wodne”, „wróblowe” i „sikory” nie są trzema równorzędnymi kategoriami.
Taksonomia zajmuje się wyodrębnianiem i klasyfikowaniem jednostek, a nomenklatura regułami ich nazywania. Międzynarodowy kodeks nomenklatury zoologicznej nie rozstrzyga sam, gdzie biolog powinien postawić granicę gatunku. Może zatem istnieć spór o zakres jednostki bez sporu o poprawną pisownię jej nazwy. W pracy ze źródłami jest to ważne: starsza nazwa nie zawsze oznacza błędnie rozpoznanego ptaka, a inna lista gatunków nie zawsze oznacza błąd rachunkowy. [2]
Tabela 2. Hierarchia na przykładzie wróbla
| Ranga | Przykład | Co oznacza w tym przykładzie |
|---|---|---|
| Gromada | Aves — ptaki | Najszerszy poziom pokazany w tabeli |
| Rząd | Passeriformes — wróblowe | Duża linia obejmująca także sikory, drozdy i krukowate |
| Rodzina | Passeridae — wróblowate | Węższa jednostka niż wróblowe |
| Rodzaj | Passer | Pierwszy człon nazwy gatunkowej |
| Gatunek | Passer domesticus — wróbel | Jednostka na liście krajowej |
Klasyfikacja: AviList v2026; polska nazwa gatunku: KF. [3][4]
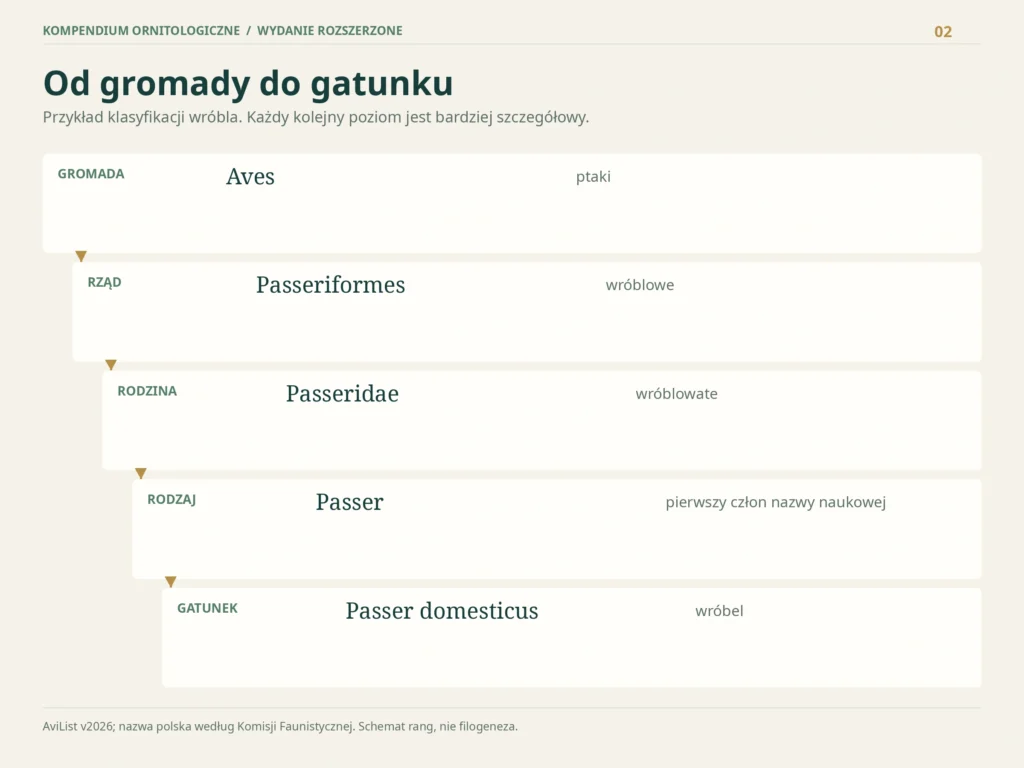
Nazwa gatunkowa składa się z dwóch członów. W zapisie Passer domesticus pierwszy oznacza rodzaj i zaczyna się wielką literą, drugi jest epitetem gatunkowym i zaczyna się małą. Pełnej nazwy nie należy skracać do samego domesticus, ponieważ ten sam epitet może występować w innych rodzajach. Nazwy podgatunków mają trzeci człon. W artykule nazwy naukowe służą identyfikacji jednostki, a nie dekoracji tekstu: ułatwiają odnalezienie właściwego gatunku w różnych językach. [5]
Gatunek to hipoteza oparta na dowodach
Współczesna taksonomia ptaków zestawia dane o budowie, głosach, ekologii, rozmieszczeniu, genomach i izolacji rozrodczej. Nie istnieje jeden dowolnie wybrany próg różnicy DNA, który bez wyjątków zamieniałby każdą parę populacji w dwa gatunki. Decyzja zależy od tego, jak różne linie dowodowe wspierają biologiczną odrębność. W podejściu integracyjnym stosowanym przez AviList szczególnie cenne są sytuacje, w których niezależne źródła informacji prowadzą do zgodnego wniosku. [6]
Dla czytelnika praktyczne konsekwencje są trzy. Po pierwsze, nazwa w przewodniku powinna być czytana wraz z datą wydania. Po drugie, przeniesienie gatunku do innego rodzaju wymaga sprawdzenia synonimów, zanim połączy się dwa zbiory danych. Po trzecie, po podziale dawnego gatunku nie każdą historyczną obserwację da się automatycznie przypisać do jednej z nowych jednostek. Jeżeli opis jest zbyt skąpy, właściwą odpowiedzią jest zachowanie szerszego oznaczenia, zamiast dopisywania precyzji, której obserwator nie uzyskał.
Nie ma drabiny od „prymitywnych” do „doskonałych” ptaków
Lista systematyczna jest liniowym zapisem rozgałęzionej historii ewolucyjnej. Kolejność w tabeli nie oznacza rankingu sprawności ani „wyższości”. Wszystkie współcześnie żyjące linie mają za sobą równie długi czas od ostatniego wspólnego przodka, choć różnią się tempem zmian, liczbą zachowanych gatunków i historią wymierań. Z położenia strusia na początku spisu nie wynika, że jest niedokończoną wersją wróbla. [7]
Podobnie warto odróżnić homologię od konwergencji. Skrzydła ptaków są zmodyfikowanymi kończynami przednimi odziedziczonymi po wspólnych przodkach. Natomiast podobny zarys sylwetki u szybkich łowców owadów może powstawać w odrębnych liniach pod wpływem podobnych wymagań lotu. Rozpoznawanie po wyglądzie i odtwarzanie pokrewieństwa są więc powiązane, lecz nie są tym samym zadaniem. Przykłady jerzyka i jaskółki oraz alki i pingwina pokazują, dlaczego użyteczny terenowy skrót wymaga później korekty systematycznej. [8][9]
Rozdział 3Różnorodność świata ptaków: liczby, wersje i granice porównań
Liczba gatunków ma sens dopiero po podaniu listy, wersji i zakresu.
Podstawą tabel w tym kompendium jest AviList v2026, opublikowana 20 października 2026 r. Suma zestawień rzędów wynosi 11 172 gatunki, 2379 rodzajów i 250 rodzin w 45 rzędach. Liczby sprawdzono przez zsumowanie wszystkich 45 wierszy, a nie przez połączenie wartości z różnych przewodników. Zestawienie ma charakter taksonomiczny: obejmuje również uwzględnione historycznie wymarłe taksony. Nie należy nazywać go bez zastrzeżenia „liczbą gatunków żyjących dziś”. [3]
AviList integruje standardy, lecz synchronizacja baz jest procesem. Komunikat aktualizacji 2026 wprost opisuje stopniowe dopasowywanie eBird i BirdLife. Z tego powodu nie wolno zakładać, że ocena zagrożenia z innego roku została wykonana dla dokładnie takiego samego zbioru jednostek. Przy obliczaniu procentów mianownik musi pochodzić z tego samego systemu i zakresu co licznik. Podzielenie liczby zagrożonych gatunków z jednej oceny przez 11 172 daje pozornie precyzyjny wynik, ale może nie odpowiadać żadnej opublikowanej statystyce. [10]
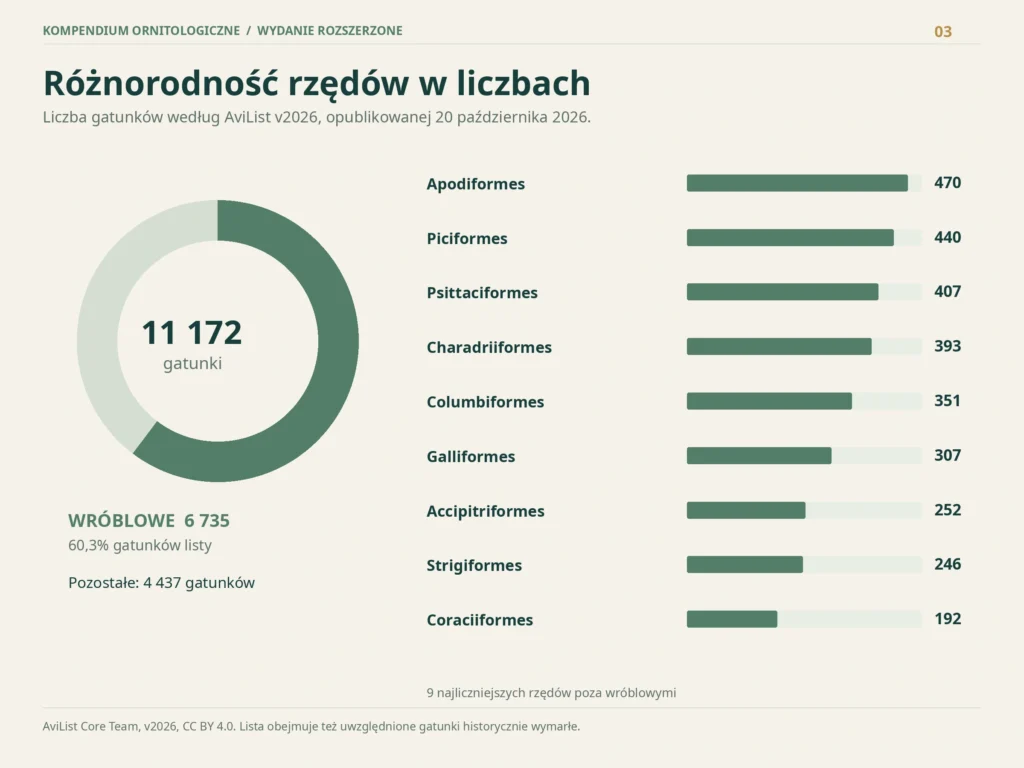
Tabela 3. Najliczniejsze rzędy w przyjętym standardzie
| Rząd | Etykieta pomocnicza | Gatunki |
|---|---|---|
| Passeriformes | wróblowe | 6735 |
| Apodiformes | jerzyki i kolibry | 470 |
| Piciformes | dzięciołowe | 440 |
| Psittaciformes | papugowe | 407 |
| Charadriiformes | siewkowe | 393 |
| Columbiformes | gołębiowe | 351 |
| Galliformes | grzebiące | 307 |
| Accipitriformes | szponiaste | 252 |
| Strigiformes | sowy | 246 |
| Coraciiformes | kraskowe | 192 |
AviList v2026. Pełna lista 45 rzędów znajduje się w aneksie. [3]
Z podanych liczb wynika, że wróblowe obejmują około 60,3% gatunków tej listy:6735/11 172×100. Jest to udział gatunków, nie udział osobników, biomasy, powierzchni występowania ani odsetek ptaków widzianych podczas spaceru. Dwie liczne rodziny tropikalne mogą wnosić wiele gatunków do globalnej listy, choć obserwator w Europie nigdy ich nie spotka. Tabela nie służy więc do przewidywania prawdopodobieństwa zobaczenia ptaka w Polsce.
Dlaczego aktualizacja listy nie jest spisem nowych odkryć
Wzrost liczby uznawanych gatunków może wynikać z podziału wcześniej szeroko traktowanej jednostki. Spadek może wynikać z połączenia dwóch nazw dotyczących tej samej linii. Możliwe są też korekty pisowni, przeniesienia do innych rodzajów i zmiany sekwencji, które nie zmieniają liczby gatunków. Nie należy z samej różnicy między dwiema edycjami wyprowadzać wniosku o liczbie „nowo odkrytych ptaków”, ani tym bardziej o poprawie stanu przyrody. Jednostki w katalogu i osobniki w populacji są różnymi wielkościami.
Koncentracja różnorodności: co wynika z całego zestawienia
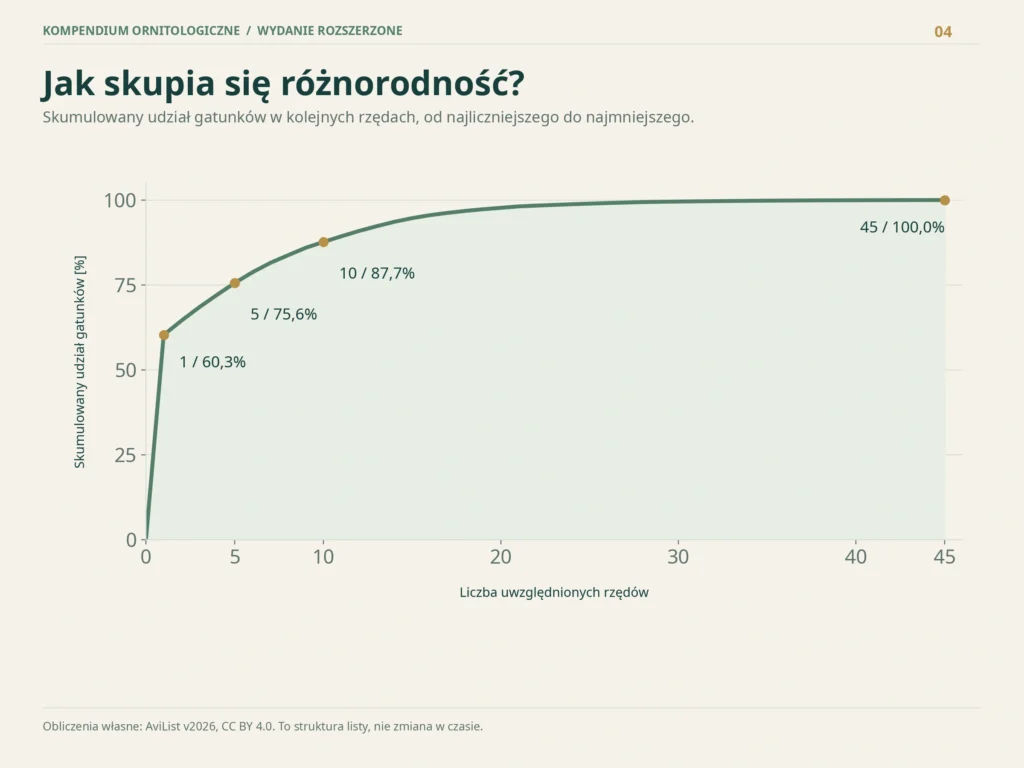
Lista rzędów jest bardzo nierównomierna pod względem liczby należących do nich gatunków. Można to pokazać bez tworzenia nowego modelu biologicznego: wystarczy posortować 45 rzędów według liczby gatunków i kolejno dodawać ich wartości. Otrzymujemy opis struktury przyjętej klasyfikacji. Taki rachunek nie mierzy liczebności ptaków, ich masy, zasięgu ani znaczenia ekologicznego. Każdy gatunek wnosi do sumy jedną jednostkę, niezależnie od tego, czy jego populacja jest duża, mała, czy należy on do uwzględnionych taksonów historycznie wymarłych. [3]
Tabela 4. Skumulowany udział gatunków w najliczniejszych rzędach
| Liczba uwzględnionych rzędów | Łączna liczba gatunków | Udział w całej liście |
|---|---|---|
| 1 | 6 735 | 60,3% |
| 3 | 7 645 | 68,4% |
| 5 | 8 445 | 75,6% |
| 10 | 9 793 | 87,7% |
| 20 | 10 916 | 97,7% |
| 45 | 11 172 | 100,0% |
Obliczenia własne z zestawienia 45 rzędów AviList v2026. Rzędy uporządkowano malejąco według liczby gatunków; udziały zaokrąglono do 0,1 punktu procentowego. [3]
Pięć najliczniejszych rzędów obejmuje w tym zestawieniu 8445 gatunków, czyli około 75,6% listy. To wynik dodania wróblowych, krótkonogich, dzięciołowych, papugowych i siewkowych w przyjętym standardzie. Dziesięć najliczniejszych rzędów skupia około 87,7% gatunków. Rosnący udział na wykresie jest konsekwencją sumowania kolejnych pozycji. Nachylenie tej krzywej nie jest tempem ewolucji, wzrostem populacji ani zmianą zachodzącą w czasie. Oś pozioma oznacza liczbę uwzględnionych rzędów, a nie lata. [3]
Dlaczego średnia nie opisuje tutaj typowej grupy
Podzielenie 11 172 przez 45 daje około 248,3 gatunku na rząd. Taka średnia jest rachunkowo poprawna, ale silnie zależy od bardzo licznego rzędu wróblowych. Po uporządkowaniu wszystkich 45 wartości od najmniejszej do największej wartość środkowa, czyli mediana, wynosi 23. Nie ma sprzeczności między tymi wynikami: odpowiadają na różne pytania. Średnia dzieli całą sumę na równe części; mediana wskazuje środkową pozycję uporządkowanego zbioru. Żadna z nich nie określa biologicznie właściwej wielkości rzędu. [3]
Tabela 5. Cztery różne opisy tego samego zbioru 45 rzędów
| Miara | Wartość | Co opisuje |
|---|---|---|
| Suma | 11 172 gatunki | Wszystkie gatunki ujęte w zestawieniu |
| Średnia arytmetyczna | 248,3 gatunku na rząd | Sumę podzieloną przez liczbę rzędów |
| Mediana | 23 gatunki | Wartość na 23. pozycji po uporządkowaniu 45 liczb |
| Zakres | 1–6735 gatunków | Najmniejszą i największą liczbę gatunków w rzędzie |
Obliczenia własne z jednej wersji listy AviList v2026. Miary dotyczą struktury klasyfikacji, a nie rozkładu osobników w przyrodzie. [3]
Rząd z jednym gatunkiem nie jest przez to mniej interesujący lub mniej ważny dla ochrony. Również bardzo liczny rząd nie musi być jednolity pod względem budowy, zachowania czy zagrożeń. Nadanie tej samej rangi nie gwarantuje, że linie mają identyczny wiek, tempo różnicowania lub stopień wewnętrznego zróżnicowania. Dlatego tabelę liczebności jednostek należy czytać razem z opisami ich cech, a decyzji ochronnych nie wyprowadzać z samej pozycji w rankingu.
Rozdział 4Ewolucja ptaków: wspólne pochodzenie i różne drogi przystosowania
Współczesne ptaki są jedną z żyjących gałęzi dinozaurów. Ich historię odtwarzamy z połączenia skamieniałości, anatomii i DNA.
W ujęciu ewolucyjnym ptaki należą do dinozaurów teropodowych. Stwierdzenie to dotyczy pokrewieństwa, a nie podobieństwa do popularnego wizerunku wielkiego gada. Zęby, długi ogon i pazury na kończynach przednich u dawnych form zestawia się z piórami, zmianami szkieletu oraz budową współczesnych ptaków. Żaden pojedynczy szczegół nie zastępuje analizy całego zespołu cech. Jeżeli w potocznym tekście mówi się, że „dinozaury wymarły”, w dokładnym opisie należy dopowiedzieć: wymarły dinozaury nieptasie. Dzisiejszy wróbel i bocian są potomkami jednej z linii, które przetrwały. [11]
Ptasi plan budowy nie pojawił się w jednym momencie. Zmniejszanie rozmiarów ciała, zmiany proporcji kończyn, rozwój piór i modyfikacje oddychania mają częściowo odmienne historie. Przegląd Brusatte’a i współautorów opisuje stopniowe składanie się cech typowych dla ptaków na długo przed powstaniem współczesnej różnorodności. Nie należy wyobrażać sobie tego procesu jako szeregu organizmów ustawionych od „gorszego” do „lepszego”. Ewolucja tworzy rozgałęziające się drzewo, na którym wiele równoległych linii znika, a inne zmieniają sposób życia. [12]
Pióra są starsze niż współczesne ptaki
Odkrycia opierzonych nieptasich teropodów pokazują, że obecność piór nie dowodzi automatycznie zdolności do aktywnego lotu. Wczesne struktury powłok ciała mogły pełnić funkcje izolacyjne, sygnalizacyjne lub inne, zanim część z nich została wykorzystana aerodynamicznie. Nadal dyskutowany jest dokładny początek ewolucji „prawdziwych” piór i pokrewieństwo różnych nitkowatych struktur znanych ze skamieniałości. Przegląd Xu i Barretta z 2025 r. wprost wskazuje te luki. Rozsądna rekonstrukcja oddziela zatem znaleziony ślad od wniosku o jego funkcji. [13]
Słynny Archaeopteryx jest ważny, ponieważ łączy cechy, które pomagają zrozumieć dawną różnorodność ptasiej linii. Nie trzeba jednak przedstawiać go jako udowodnionego bezpośredniego przodka każdego dzisiejszego ptaka. Skamieniałość może reprezentować bliską boczną gałąź. Także pytanie o powstanie lotu wymaga rozróżnienia szybowania, ruchów skrzydeł wspomagających przemieszczanie się i lotu aktywnego. Zachowanie nie zapisuje się w skale równie bezpośrednio jak kość, dlatego możliwości ruchowe wymarłych zwierząt rekonstruuje się z wielu przesłanek. [14]
Dlaczego drzewa pokrewieństwa bywają poprawiane?
Badanie Stiller i współautorów z 2024 r. analizowało genomy 363 gatunków reprezentujących 218 rodzin w systematyce przyjętej przez autorów. Duża ilość danych poprawiła rozdzielczość drzewa, ale nie usunęła wszystkich konfliktów między sygnałami genetycznymi. Część linii Neoaves różnicowała się bardzo szybko w pobliżu granicy kredy i paleogenu. Różne fragmenty genomu mogą zachowywać ślady odmiennej historii, a model analityczny wpływa na odtworzony układ gałęzi. Zmieniony diagram nie oznacza, że wszystkie wcześniejsze ustalenia były bezwartościowe. [15]
Trzeba także odróżnić homologię od konwergencji. Homologiczne struktury mają wspólne pochodzenie; kończyna przednia ptaka, nietoperza i człowieka jest przykładem tego samego podstawowego planu anatomicznego zmienionego w różnych liniach. Konwergencja oznacza niezależne powstanie podobnych rozwiązań funkcjonalnych. Skrzydła ptaka i nietoperza służą do lotu, ale ich powierzchnia nośna jest zbudowana inaczej. W samej awifaunie zbliżona sylwetka i tryb żerowania również mogą rozwinąć się niezależnie. Dlatego wygląd jest wskazówką, a nie gotowym drzewem pokrewieństwa. [12][14]
Co zmieniają nowe dane, a czego nie rozstrzygają?
Wynik analizy DNA nie wyznacza automatycznie funkcji dawnej struktury ani wyglądu wymarłego ptaka. Genom współczesnego gatunku i skamieniałość odpowiadają na częściowo różne pytania. Pierwszy pozwala porównywać odziedziczone sekwencje, druga dokumentuje organizm żyjący w określonym czasie i miejscu. Połączenie obu typów danych jest silniejsze niż traktowanie ich jako konkurencyjnych opowieści. Jednocześnie duża liczba porównanych sekwencji nie gwarantuje poprawności każdego założenia modelu, a brak zachowanych piór w jednym okazie nie dowodzi ich braku u żywego zwierzęcia. To ograniczenia metody, które należy zachować w podpisach rekonstrukcji. [13][15]
Rozdział 5Przegląd grup I: ptaki wód, mokradeł i wybrzeży
Dziesięć profili pokazuje, jak różne linie ewolucyjne wykorzystują wodę. Środowisko nie tworzy wspólnego rzędu.
Wspólny krajobraz może skupiać gatunki o odmiennym pokrewieństwie i sposobie zdobywania pokarmu. Kaczka, łyska, perkoz i kormoran poruszają się na powierzchni wody, ale należą do czterech rzędów. Długa szyja czapli i bociana również nie wystarcza do umieszczenia ich w jednej jednostce. W profilach najpierw podano rząd, a następnie jego najważniejsze zróżnicowanie. Przykłady nie oznaczają, że wszystkie gatunki danej grupy zachowują się identycznie. [3]
1. Blaszkodziobe — Anseriformes
Do tej grupy należą kaczki, gęsi i łabędzie, ale światowy zakres rzędu jest szerszy niż zestaw znany z polskiego stawu. U wielu gatunków listwy na brzegach dzioba pomagają zatrzymywać lub selekcjonować pokarm. Nie oznacza to jednolitej diety: jedne skubią roślinność, inne filtrują drobne organizmy, a jeszcze inne polują na zwierzęta wodne. Młode są zwykle ruchliwe wkrótce po wykluciu, lecz nadal potrzebują prowadzenia i ochrony. [16]
Dla obserwatora użyteczny jest podział kaczek według sposobu żerowania, lecz jest to narzędzie terenowe. Krzyżówka często pobiera pokarm przy powierzchni, czernica nurkuje, a nurogęś chwyta ryby wąskim dziobem o piłkowanych krawędziach. U kaczek wygląd samca może bardzo zależeć od pory roku i pierzenia. Oznaczenie ptaka wyłącznie po kolorze głowy bez sprawdzenia sylwetki, dzioba i skrzydeł łatwo zawodzi. [17][18][19]
2. Perkozy — Podicipediformes
Perkozy są specjalistami nurkowania. Ich nogi leżą daleko ku tyłowi tułowia, co pomaga w napędzie pod wodą, ale utrudnia chodzenie na lądzie. Palce mają oddzielne płatowate obrzeżenia, zamiast jednej ciągłej błony łączącej je jak u wielu kaczek. W diecie, zależnie od gatunku, pojawiają się ryby i bezkręgowce wodne. Odmienny kształt dzioba i proporcje ciała odpowiadają różnym sposobom zdobywania pokarmu. [20]
Perkoz dwuczuby jest dobrym przykładem sezonowej zmienności. W szacie godowej uwagę zwracają pióra ozdobne na głowie, a podczas toków para wykonuje skoordynowane ruchy. Młode bywają przewożone na grzbiecie rodzica. Nie należy jednak przenosić szczegółów toków jednego gatunku na cały rząd. W trudniejszych oznaczeniach trzeba porównywać linię głowy, długość szyi i profil dzioba, a nie sam fakt wielokrotnego znikania pod wodą. [21]
3. Nury — Gaviiformes
Nury i perkozy bywają mylone ze względu na nurkowanie, wydłużony dziób i cofnięte nogi. W przyjętej klasyfikacji stanowią odrębne rzędy. Nur lodowiec napędza się pod wodą nogami, a jego budowa ogranicza sprawność poruszania się po lądzie. Zależność od wody nie znosi jednak potrzeby bezpiecznego miejsca do rozrodu i odchowu młodych. Przystosowanie do jednego sposobu lokomocji oznacza też określone ograniczenia. [22]
Podczas obserwacji z brzegu największym problemem jest często nie brak barw, lecz duża odległość i falowanie. Należy zanotować proporcje głowy i dzioba, ustawienie dzioba względem powierzchni oraz kontrast szyi. Pojedynczy przechylony kadr może pozornie zmieniać te cechy. W atlasie trzeba korzystać z ilustracji dla właściwego wieku i sezonu; opis dorosłego ptaka w pełnej szacie godowej nie wystarcza do rozpoznawania każdego nura zimującego na wybrzeżu. [22]
4. Siewkowe — Charadriiformes
Siewkowe obejmują między innymi sieweczki, bekasowate, mewy, rybitwy i alki. Jest to znacznie szerszy zakres niż potoczne „ptaki brodzące”. Długonogi ptak sondujący muł, rybitwa polująca z powietrza i alka nurkująca w morzu mogą należeć do tego samego rzędu. Dlatego skrót „siewkowiec” w notatce terenowej powinien być doprecyzowany, jeśli istnieje ryzyko pomylenia szerokiej jednostki systematycznej z węższą grupą obserwacyjną. [3][9]
Czajkę rozpoznaje się po czubku i kontrastowej sylwetce, piskliwca także po ruchach tylnej części ciała, a rybitwę rzeczną po zespole cech lotu, dzioba i ogona. Mew nie można traktować jako zawsze morskich: śmieszki często korzystają z wód śródlądowych. U wielu przedstawicieli grupy upierzenie zmienia się z wiekiem i sezonem, dlatego dokumentacja powinna obejmować więcej niż jedną fotografię z daleka. [23][24][25][26]
5. Żurawiowe — Gruiformes
Żurawiowe obejmują zarówno żurawie, jak i chruściele, do których należą łyska, kokoszka i wodnik. Wielkość i sylwetka są więc bardzo zmienne. Żuraw wyróżnia się długimi nogami i szyją, donośnym głosem oraz zachowaniami tokowymi. Łyska to natomiast niewielki w porównaniu z nim ptak pływający, z jasną tarczką czołową. Ich połączenie systematyczne pokazuje ograniczenia intuicyjnego dzielenia ptaków według podobieństwa zewnętrznego. [3][27]
Łyskę łatwo omyłkowo nazwać kaczką, ale jej palce mają płatowate obrzeżenia, a biały dziób i tarczka są charakterystycznymi wskazówkami. Kokoszka ma czerwony przód dzioba z żółtym końcem i białe znaki na bokach. Także tu trzeba uwzględniać wiek: cechy dorosłego nie muszą wyglądać identycznie u młodego. Z kolei skryte gatunki trzcinowisk łatwiej wykryć głosem niż wypatrzyć; cisza podczas krótkiej wizyty nie jest dowodem ich nieobecności. [28][29]
6. Bocianowe — Ciconiiformes
W AviList v2026 rząd bocianowych obejmuje rodzinę bocianowatych. Czaple i ibisy znajdują się w pelikanowych, dlatego starsze, szerokie użycie nazwy Ciconiiformes może wprowadzać w błąd. Bocian biały korzysta z otwartych siedlisk, w tym łąk i terenów rolniczych; jego żerowiska są często związane z dostępnością drobnych zwierząt. Duże gniazdo jest najbardziej widoczną częścią jego biologii, lecz bez odpowiedniego krajobrazu żerowiskowego samo miejsce gniazdowe nie wystarcza. [3][30]
Bocian czarny dobrze ilustruje zmienność wewnątrz rodziny. W okresie lęgowym związany jest z cichszymi terenami leśnymi w sąsiedztwie wód, a jego wykrywalność i tolerancja obecności człowieka różnią się od dobrze znanego mieszkańca wiejskich dachów. Przy obserwacji obu gatunków warto odróżnić dane o wyglądzie od domysłów o zachowaniu. Widok zimującego bociana białego nie pozwala sam w sobie uznać, że jest chory: niektóre populacje zmieniły udział osobników migrujących. [31][32]
7. Pelikanowe — Pelecaniformes
Dzisiejszy zakres tego rzędu obejmuje między innymi czaple, ibisy, warzęchy i pelikany. Podobny związek z wodą łączy je funkcjonalnie, ale techniki zdobywania pokarmu są odmienne. Czapla siwa często czatuje lub wolno przemieszcza się w płytkiej wodzie, chwytając zdobycz szybkim ruchem szyi i dzioba. Nie jest wyłącznie rybożerna: dostępny pokarm może obejmować także inne zwierzęta. [3][33]
W polskim terenie praktyczne znaczenie ma rozróżnienie czapli białej od innych białych czapli. Oprócz wielkości sprawdza się kolor nóg, stóp i dzioba, uwzględniając porę roku. Czapla biała poza okresem godowym ma zwykle żółty dziób i ciemne stopy; sam kolor upierzenia nie rozstrzyga identyfikacji. Nie należy też bezkrytycznie ufać pozornej skali na zdjęciu, jeżeli ptak stoi samotnie daleko od obiektu odniesienia. [34][35]
8. Głuptakowe — Suliformes
Do Suliformes należą kormorany, głuptaki, fregaty i wężówki. Polski kormoran jest często obserwowanym przedstawicielem tej grupy, lecz nie reprezentuje wszystkich jej strategii. Kormorany nurkują, a do odpoczynku wybierają między innymi wystające gałęzie, kamienie i elementy budowli. Zasiedlają zarówno wody morskie, jak i śródlądowe. Stara klasyfikacja umieszczająca je w szeroko rozumianych pelikanowych jest ważną pułapką przy łączeniu źródeł. [3][36]
U kormorana warto oceniać długą szyję, masywny dziób i sylwetkę w locie oraz na wodzie. Rozpostarte skrzydła są rozpoznawalnym zachowaniem, ale sama pozycja nie stanowi oznaczenia gatunku. W okresie lęgowym białe partie głowy i uda mogą być wyraźniejsze, a ptaki młode bywają znacznie jaśniejsze od dorosłych. Obserwator powinien więc dokumentować wygląd, zanim zacznie interpretować wiek, kondycję lub przynależność do lokalnej kolonii. [37]
9. Rurkonose — Procellariiformes
Rurkonose obejmują albatrosy, burzyki, petrele i nawałniki. Ich nazwa odwołuje się do budowy okolicy nozdrzy, a nie do sposobu śpiewania. Wiele tych ptaków prowadzi pelagiczny, oceaniczny tryb życia, na ląd wracając przede wszystkim w związku z rozrodem. U albatrosów długi czas spędzany na morzu i niewielka produktywność lęgowa sprawiają, że utrata dorosłych osobników może być szczególnie trudna do odrobienia przez populację. [3][38]
Należy odróżniać reprezentatywny przykład od reguły całego rzędu. Albatros nie jest po prostu powiększonym nawałnikiem, a wszystkie rurkonose nie mają identycznego lotu ani zasięgu żerowania. Obserwacje z wybrzeża wymagają oceny sposobu poruszania się nad falami i warunków wiatrowych. Przy dużej odległości rozsądne bywa zapisanie szerszej grupy zamiast arbitralnego wskazania gatunku; w notatce trzeba zachować informację o pewności i zasięgu widocznych cech.
10. Pingwiny — Sphenisciformes
Pingwiny są ptakami, których skrzydła pełnią funkcję płetw. Zachowują pióra i typowo ptasi plan ciała, mimo że utraciły lot w powietrzu. Ich zróżnicowanie obejmuje gatunki związane zarówno z chłodnymi, jak i znacznie cieplejszymi wodami; obraz każdego pingwina na antarktycznym lodzie jest nadmiernym uproszczeniem. Budowa skrzydeł, silne mięśnie i ograniczona pneumatyzacja szkieletu sprzyjają nurkowaniu. [39]
Porównanie z alkami jest szczególnie pouczające. Obie grupy obejmują morskich łowców o kontrastowym upierzeniu, ale alki należą do siewkowych. Większość alek zachowała zdolność lotu, podczas gdy wymarła alka olbrzymia była nielotem. Podobieństwo funkcji nie znosi zatem odrębnego pokrewieństwa. W materiałach edukacyjnych warto tę różnicę zaznaczać w podpisach, zamiast zestawiać obie grupy pod wspólną, nieistniejącą rangą „ptaków pingwinowatych”. [9]
Rozdział 6Przegląd grup II: ptaki drapieżne, naziemne i leśne
Osiem profili łączy podobieństwa użyteczne w terenie z różnicami systematycznymi.
Podział na ptaki „leśne” i „polne” jest wygodny przy planowaniu obserwacji, ale wiele gatunków korzysta z obu środowisk w różnych momentach dnia lub roku. Ptak może gniazdować w lesie, żerować na łące i nocować w jeszcze innym miejscu. Poniższe grupy nie są więc zestawem szczelnych ekologicznych szuflad. Określenia siedliskowe wskazują częste powiązania, a nie zakazy występowania poza nimi.
11. Grzebiące — Galliformes
Grzebiące kojarzą się z kurami, kuropatwami i bażantami, lecz w ujęciu światowym tworzą znacznie bardziej zróżnicowany zespół. Wiele gatunków zdobywa pokarm na ziemi i ma mocne nogi oraz zaokrąglone skrzydła. U innych istotne znaczenie ma przebywanie na drzewach. Różnią się też systemami kojarzenia i opieką nad potomstwem. Szczególnie odmiennym przykładem są nogale, których jaja mogą być ogrzewane przez rozkładającą się materię roślinną, nagrzany piasek lub ciepło geotermalne. [40]
W Polsce przy rozpoznawaniu bażanta trzeba uwzględnić silne różnice między samcem a samicą. Samiec ma długi ogon i kontrastową głowę, samica jest bardziej maskująco ubarwiona. Kuropatwa ma krótszy ogon, krępą sylwetkę i charakterystyczny odcień twarzy. Oba gatunki mogą korzystać z krajobrazu rolniczego, ale wspólne siedlisko nie oznacza tożsamości wymagań. W obserwacji istotne są też osłony: miedze, zakrzaczenia i roślinność umożliwiająca ukrycie. [41][42]
12. Szponiaste — Accipitriformes
Szponiaste obejmują między innymi jastrzębiowate, rybołowa i sekretarza. Dieta oraz technika zdobywania pokarmu są bardzo różne: u jastrzębiowatych spotykamy łowców ptaków, ryb i ssaków, konsumentów bezkręgowców i padliny. Zakrzywiony dziób i chwytne stopy są elementami przystosowania, lecz sam ten ogólny opis nie wystarcza do rozpoznania rzędu ani strategii żerowania. Współczesna klasyfikacja oddziela je od sokołów. [3][43]
Myszołów ma szerokie skrzydła i zmienne ubarwienie, natomiast krogulec jest przystosowany do zwrotnego lotu wśród przeszkód; ważnymi wskazówkami są dłuższy ogon i zaokrąglone końce skrzydeł. W oznaczaniu szponiastych najpierw porównuje się proporcje, potem szczegóły szaty. Wielkość „na oko” bez punktu odniesienia bywa zwodnicza, a chwilowe ułożenie skrzydeł zależy od manewru. Nie każda ciemna sylwetka krążąca wysoko nad polem jest orłem. [44][45]
13. Sokołowe — Falconiformes
Sokoły i karakary należą do odrębnego rzędu. Samo podobieństwo do szponiastych nie uzasadnia połączenia obu grup w jeden takson, choć nadal można zbiorczo mówić o ptakach drapieżnych w sensie ekologicznym. Przedstawiciele sokołowych wykorzystują zróżnicowane siedliska i pokarm, obejmujący między innymi owady, ptaki, drobne kręgowce i padlinę. Popularny wizerunek każdego sokoła jako łowcy ptaków w gwałtownym nurkowaniu opisuje tylko część tej różnorodności. [3][46]
Pustułka często zawisa podczas poszukiwania zdobyczy; w sylwetce widać spiczaste skrzydła i stosunkowo długi ogon. Sokół wędrowny jest masywniejszy, z wyraźnym ciemnym „wąsem”, ale stopień prążkowania i kolor tła różnią się między ptakami dorosłymi a młodymi. Oznaczając sokoła, należy najpierw ustalić etap życia i sprawdzić kilka cech. Rekordowa prędkość przypisywana gatunkowi nie jest cechą, którą da się wiarygodnie oszacować z przypadkowego zdjęcia lub krótkiego nagrania. [47][48]
14. Sowy — Strigiformes
Sowy reprezentują odrębną linię drapieżników. U wielu gatunków istotne są przystosowania do polowania przy słabym oświetleniu: duże oczy, rozwinięty słuch oraz upierzenie ograniczające hałas lotu. Nie oznacza to widzenia w całkowitej ciemności ani jednakowego stopnia nocnej aktywności u wszystkich sów. Szlara otaczająca przednią część głowy pomaga kształtować dopływ dźwięku, a widoczne u niektórych gatunków „uszy” są kępkami piór. [49]
Puszczyk ma ciemne oczy i zaokrągloną głowę bez widocznych pęczków piór, uszatka zwykle wyraźne pęczki i pomarańczowe oczy, a płomykówkę wyróżnia sercowata szlara. Kolor spodu ciała może różnić się geograficznie i indywidualnie; opis brytyjskiej płomykówki nie wyczerpuje zmienności populacji kontynentalnych. Przy sowach szczególnie ważne są spokój i dystans. Wykrytego miejsca dziennego odpoczynku nie należy zamieniać w cel powtarzanego płoszenia dla uzyskania bardziej efektownej fotografii. [50][51][52][53]
15. Gołębiowe — Columbiformes
Gołębiowe obejmują znacznie więcej niż ptaki miejskich placów. Wiele gatunków zjada nasiona, inne owoce; zróżnicowanie obejmuje mieszkańców lasów, terenów otwartych i środowisk przekształconych. Gruba sylwetka, stosunkowo mała głowa i sprawny lot są częstymi cechami, lecz nie tworzą kompletnego klucza. W skali świata grupa zawiera również historycznie wymarłe gatunki, co ma znaczenie przy odczytywaniu globalnych sum taksonomicznych. [54][3]
W polskim krajobrazie grzywacz u dorosłych ma wyraźną białą plamę na szyi i białe pasy widoczne na skrzydłach w locie. Sierpówka jest smuklejsza, jaśniejsza i ma czarną półobrożę. Wiele miejskich gołębi wykazuje bardzo zróżnicowane barwy związane z historią udomowienia, dlatego kolor upierzenia nie powinien prowadzić do dopisywania kolejnych dzikich gatunków. Warto zapisywać to, co widać, a następnie sprawdzać zasięg i status konkretnej formy. [55][56]
16. Kukułkowe — Cuculiformes
Znana z Polski kukułka jest tylko jednym z przedstawicieli zróżnicowanego rzędu. Jej sylwetka z długim ogonem i prążkowanym spodem może przypominać ptaka drapieżnego, zwłaszcza przy krótkiej obserwacji w locie. Charakterystyczny głos samca bywa łatwiejszą wskazówką niż obraz. Oznaczenie głosowe powinno jednak opierać się na rzeczywiście usłyszanym sygnale, a nie na nazwie podpowiedzianej przez aplikację bez kontroli nagrania. [57]
Nie wszystkie kukułkowe są obligatoryjnymi pasożytami lęgowymi. Kukawik żółtodzioby Coccyzus americanus jest przykładem gatunku, którego para buduje własne gniazdo i opiekuje się potomstwem; zdarzające się składanie jaj w cudzych gniazdach nie usuwa tej podstawowej różnicy. To dobre ćwiczenie w czytaniu opisów: cecha jednego znanego gatunku nie staje się automatycznie definicją całego rzędu. Przy zestawieniach biologicznych trzeba wskazywać, którego gatunku dotyczy opisywane zachowanie. [58]
17. Dzięciołowe — Piciformes
Rząd dzięciołowych obejmuje dzięcioły, ale także tukany, brodacze, miodowody i inne tropikalne rodziny. W AviList v2026 znajduje się w nim również linia obejmująca żakamy i drzymy. Dlatego liczba gatunków dzięciołowych nie jest liczbą dzięciołów. W obrębie samych dzięciołowatych także występują duże różnice zachowania; nie każdy przedstawiciel zdobywa większość pokarmu przez kucie pnia. [3]
Dzięcioł duży często przebywa na pniach i grubszych gałęziach; jego bębnienie pełni funkcję sygnałową i nie powinno być automatycznie interpretowane jako wydobywanie owada. Dzięcioł zielony często żeruje na ziemi. W rozpoznawaniu trzeba sprawdzać układ plam, głowę, spód ciała i głos, bo sama obecność czerwieni nie wystarcza: jej położenie może zależeć od płci i wieku. Czerwony wierzch głowy u młodego dzięcioła dużego nie czyni go innym gatunkiem. [59][60][61]
18. Paleognaty: strusie, nandu, kazuary, emu, kiwi i kusacze
Paleognaty są większą linią ewolucyjną, obejmującą w przyjętej liście pięć rzędów. Nie należy przedstawiać ich jako jednego rzędu „strusi” ani wszystkich uznawać za nieloty. Kusacze zachowały zdolność lotu, choć pod względem sylwetki i naziemnego trybu życia mogą przypominać inne ptaki zbierające pokarm na ziemi. Struś pokazuje odmienną specjalizację: duży rozmiar i silne nogi są związane z bieganiem, nie z „brakiem rozwoju” skrzydeł. [3][62]
Badania filogenomiczne wykazały, że zdolność lotu była tracona w tej grupie wielokrotnie. Podobieństwo dużych nielotnych form nie wymaga zatem jednego, równie dużego nielotnego przodka wszystkich obecnych przedstawicieli. To przykład, w którym analiza genomów zmieniła interpretację cech anatomicznych. Nie należy jednak z pojedynczego starszego artykułu rekonstruować wszystkich dzisiejszych szczegółów drzewa; ogólny wniosek o wielokrotnych utratach lotu jest czymś innym niż kompletna, bezsporna sekwencja każdego rozgałęzienia. [63]
Rozdział 7Przegląd grup III: łowcy w powietrzu i różnorodność wróblowych
Sześć profili dopełnia przegląd. Podobny sposób żerowania często maskuje odległe pokrewieństwo.
Szybko przelatujący ptak bywa rozpoznawany po jednym wrażeniu: „jak jaskółka”, „jak sokół” albo „mały kolorowy”. Takie porównania są dobrym początkiem notatki, jeżeli pozostają porównaniami. Następny krok polega na sprawdzeniu cech, które mogą wstępne wrażenie potwierdzić lub obalić. Profil grupy pomaga wybrać te cechy, ale nie zastępuje pełnego klucza do gatunków.
19. Wróblowe — Passeriformes
Wróblowe są najbogatszym w gatunki rzędem przyjętej listy, ale nie są synonimem wróbli ani „wszystkich małych ptaków”. Należą do nich także kruki, a poza rzędem znajdują się niewielkie kolibry. W obrębie wróblowych spotyka się skrajnie różne dzioby, proporcje ciała, diety i strategie lęgowe. Kategoria jest użyteczna systematycznie, lecz dla początkującego obserwatora wymaga dalszego podziału na rodziny i łatwiejsze do porównania grupy. [3]
Dobry zestaw porównawczy tworzą bogatka, kowalik, kos i kruk. Bogatka przeszukuje roślinność i korzysta z dziupli, kowalik silnie wiąże się z pniami i gałęziami, kos często zbiera pokarm na ziemi, a kruk jest dużym, ruchliwym ptakiem o szerokim repertuarze zachowań. Wszystkie należą do jednego rzędu, a podobieństwo ich ekologii jest ograniczone. Przy nauce rozpoznawania lepiej grupować przypadki według rzeczywistego problemu terenowego niż oczekiwać wspólnego wyglądu. [64][65][66][67]
20. Krótkonogie — Apodiformes: jerzyki i kolibry
W rzędzie Apodiformes spotykają się dwie szczególnie efektowne specjalizacje lotne. Jerzyki chwytają drobne organizmy w powietrzu, a kolibry często pobierają nektar podczas zawisu. Jedne i drugie nie są wróblowymi. Kolibry uzupełniają dietę bezkręgowcami; sprowadzenie ich odżywiania wyłącznie do słodkiego płynu pomija ważną część potrzeb pokarmowych. Jerzyki z kolei mają małe stopy przystosowane do przyczepiania się, a nie typowego siedzenia na gałęzi jak wróbel. [8][68]
Jerzyk Apus apus w locie pokazuje długie, wąskie, sierpowate skrzydła, krótki rozwidlony ogon i ciemną sylwetkę. Dymówka ma inny układ proporcji i zwykle długie skrajne sterówki, a oknówkę wyróżnia biały kuper. Jaskółki należą do wróblowych. Warto obserwować kilka kolejnych manewrów, bo chwilowe złożenie ogona albo kąt patrzenia może ukryć cechy. Ten zestaw jest przykładem rozróżniania na podstawie kombinacji wskazówek, nie jednego koloru. [69][70][71]
21. Lelkowe — Caprimulgiformes
Lelki reprezentują odmienną grupę łowców owadów. U polskiego lelka ważne są aktywność o zmierzchu i nocą, maskujące upierzenie oraz bardzo szerokie rozwarcie dzioba. Dzienny wygląd siedzącego ptaka może przypominać korę lub suche podłoże. W locie długie skrzydła i ogon mogą natomiast wzbudzić skojarzenie z kukułką lub niewielkim sokołem. Charakterystyczny, długotrwały głos samca często ujawnia obecność ptaka wcześniej niż obserwacja wzrokowa. [72]
W przypadku takiego gatunku pora kontroli jest częścią metody. Spacer w południe i spokojny nasłuch po zachodzie słońca nie mają identycznej szansy wykrycia obecności. Nie jest to jednak zachęta do wabienia nagraniami ani oświetlania ptaka. W notatce warto podać czas, pogodę, długość nasłuchu i rodzaj sygnału. Dzięki temu informacja pozostaje użyteczna nawet wtedy, gdy nie uzyskano zdjęcia. Brak stwierdzenia trzeba oddzielić od mocnego wniosku o braku gatunku.
22. Kraskowe — Coraciiformes
Kraskowe obejmują między innymi zimorodki, żołny i kraski. Polski zimorodek jest mocno kojarzony z rybami i wodą, ale ta lokalna intuicja nie opisuje całej rodziny zimorodkowatych. W świecie wiele jej gatunków żyje w środowiskach leśnych i korzysta z różnorodnego pokarmu, w tym licznych bezkręgowców. Masywny, wydłużony dziób może zatem służyć chwytaniu różnych zdobyczy, a nie jedynie precyzyjnemu łowieniu ryb. [73]
U zimorodka Alcedo atthis rozpoznaje się połączenie niebieskiego wierzchu i pomarańczowego spodu, długi dziób oraz szybki lot nisko nad wodą. Barwa widziana przez człowieka zależy też od kąta światła; odcień na zdjęciu nie powinien być jedyną przesłanką. Obserwacja ptaka siedzącego na czatowni nie uprawnia do szukania i odsłaniania nory lęgowej. Rozpoznanie i dokumentowanie zachowania można zwykle wykonać z dystansu, bez ingerencji w brzeg. [74]
23. Dzioborożcowe — Bucerotiformes
Współczesna klasyfikacja umieszcza dudki w Bucerotiformes razem z dudkowcami i dzioborożcami. W starszych książkach można spotkać inne rozwiązania. Dudek nie staje się przez to „nowym ptakiem”: zmienia się interpretacja jego pokrewieństwa lub sposób uporządkowania listy. W odniesieniu do polskiej awifauny najważniejszym przykładem jest Upupa epops, wyróżniający się czubem, czarno-białym rysunkiem skrzydeł oraz długim, zagiętym dziobem. [3][75]
Jego wygląd dobrze ilustruje potrzebę odróżnienia nazwy rzędu od cechy rozpoznawczej. Nie każdy przedstawiciel dzioborożcowych ma wielki „róg” na dziobie, a każdy ptak z czubem nie jest dudkiem. W terenowym opisie trzeba zachować kombinację cech, także proporcje, sposób poruszania się i głos. W źródłach z innych państw należy osobno sprawdzić status: opis dudka jako rzadkiego przybysza w Wielkiej Brytanii nie mówi, czy i gdzie gniazduje w Polsce. [4][75]
24. Papugowe — Psittaciformes
Papugowe są kolejną grupą, której stereotypowy obraz wymaga rozszerzenia. Nie wszystkie są duże, jaskrawe i dzienne. Kākāpō jest nielotną papugą aktywną nocą, a kākā korzysta z urozmaiconego pokarmu obejmującego między innymi nasiona, owoce, nektar i bezkręgowce. Te przykłady pokazują, dlaczego od jednej znanej papugi hodowlanej nie można przechodzić do uniwersalnego opisu kilkuset gatunków rzędu. [76][77]
W obserwacjach europejskich istotna jest też geneza obecności. Ptak na wolności może być uciekinierem z niewoli, członkiem trwałej introdukowanej populacji albo naturalnym przybyszem; samą barwą piór nie rozstrzyga się tych możliwości. W krajowym zestawieniu trzeba stosować odpowiednie kategorie pochodzenia. Zapis miejsca i daty, liczby ptaków oraz zaobserwowanego zachowania jest cenniejszy od automatycznego uznania każdego nowego spotkania za „nowy gatunek Polski”. [78]
Rozdział 8Rzadziej opisywane linie: pełniejszy obraz 45 rzędów
Siedemnaście uzupełniających profili pokazuje różnorodność, której nie widać w atlasie opartym głównie na ptakach Europy.
Przegląd ptaków łatwo zdominować przez grupy dobrze znane z własnego otoczenia. Tymczasem krótkie omówienia niepozornych lub geograficznie ograniczonych linii potrafią zmienić sposób rozumienia całej gromady. Poniższe profile uzupełniają wcześniejsze rozdziały o siedemnaście rzędów. Nie nazywamy ich „rzadkimi”: niewielka liczba gatunków w rzędzie nie oznacza automatycznie małej liczebności jego przedstawicieli. Kolejność ma charakter redakcyjny, a nie postać drzewa pokrewieństwa.
Według AviList v2026 te siedemnaście rzędów obejmuje razem 177 gatunków, czyli około 1,6% wszystkich 11 172 pozycji gatunkowych tej wersji listy. To własna suma danych z aneksu. Mały udział w liczbie gatunków nie czyni tych linii biologicznie nieistotnymi. Ich poznanie uzupełnia przegląd o odmienne sposoby odżywiania, poruszania się i wychowu młodych. Zakres sumy, tak jak całej listy, obejmuje uwzględnione taksony historycznie wymarłe. [3]
Płytkie wody, otwarty ocean i leśne podłoże
Phoenicopteriformes — flamingi. Długie nogi i szyja nie wyjaśniają najważniejszej specjalizacji tej grupy: filtrowania. Gdy głowa jest odwrócona, woda przepływa przez dziób, a znajdujące się w nim listewki pomagają oddzielać cząstki pokarmu. Wielkość zatrzymywanych organizmów różni się między gatunkami; nie wszystkie flamingi jedzą więc ten sam zestaw glonów i bezkręgowców. Zestawienie ich z czaplą tylko jako „długonogich ptaków wodnych” pomija zasadniczo odmienny mechanizm pobierania pokarmu. [79]
Phaethontiformes — faetony. Phaethon lepturus jest przykładem ptaka otwartego morza, wracającego na ląd w związku z rozrodem. Dorosłego wyróżniają długie środkowe sterówki, ale młody ptak nie ma jeszcze takich ozdób. Pokarm obejmuje ryby i kałamarnice; zdobywany jest między innymi przez nurkowanie z powietrza. Białe upierzenie i smukła sylwetka mogą przywodzić na myśl rybitwę, jednak faetony stanowią odrębny rząd. Ten przykład pokazuje, że ocenę podobieństwa należy rozdzielić od sprawdzania klasyfikacji. [80]
Eurypygiformes. Rząd obejmuje dwa gatunki, Eurypyga helias oraz Rhynochetos jubatus, należące do dwóch rodzin. Pierwszy związany jest z zalesionymi brzegami cieków tropikalnej Ameryki i chwyta różne drobne zwierzęta. Kagu Rhynochetos jubatus pochodzi z Nowej Kaledonii, porusza się głównie po ziemi i wyszukuje zdobycz w ściółce. Jego duże skrzydła pełnią również funkcje sygnałowe i obronne. Ani wspólny rząd, ani widok podobnie długich nóg nie pozwalają zatem przewidzieć identycznej sprawności lotnej i mikrośrodowiska żerowania. [3][81][82]
Korony drzew i wyspecjalizowane przewody pokarmowe
Musophagiformes — turakowe. Opisywane przez Los Angeles Zoo turaki są ptakami afrykańskich środowisk leśnych, często korzystającymi z owoców. Sprawnie przemieszczają się po gałęziach: biegną, przeskakują między podporami i wykorzystują ogon do równoważenia ciała. Ich sposób ruchu warto zestawiać z konkretną budową roślinności, a nie jedynie z etykietą „nadrzewne”. Profil kilku barwnych gatunków nie upoważnia do uznania, że każdy przedstawiciel rzędu ma takie samo upierzenie, dietę i wymagania siedliskowe. [83]
Opisthocomiformes — hoacyn. Opisthocomus hoazin jest jedynym gatunkiem tego rzędu w przyjętej liście. Spożywanie liści łączy się u niego z fermentacją prowadzoną przez mikroorganizmy w rozbudowanym wolu. Badanie porównujące społeczności bakterii hoacynów i krów pokazuje podobieństwo funkcji trawiennej mimo dalekiego pokrewieństwa gospodarzy. Nie oznacza to, że ptak ma żołądek przeżuwacza. Nazwy narządów, ich pochodzenie i sposób działania trzeba rozpatrywać osobno: podobna rola nie czyni struktur anatomicznie tożsamymi. [3][84]
Coliiformes — czepigi. Colius striatus ilustruje strategię małego, społecznego ptaka sprawnie wspinającego się wśród gałęzi. Jego pokarm obejmuje owoce, inne części roślin oraz także niektóre bezkręgowce. Osobniki korzystają ze wspólnych miejsc odpoczynku i mogą skupiać się blisko siebie. W porównaniu funkcjonalnym ważne są więc zarówno sposób zdobywania pokarmu, jak i organizacja odpoczynku. Sama niewielka wielkość i przebywanie na krzewie nie czynią czepigi przedstawicielem wróblowych. [85][3]
Leptosomiformes — kurol. Leptosomus discolor, związany z Madagaskarem i pobliskimi wyspami, reprezentuje w AviList własny, jednogatunkowy rząd. Angielska nazwa Cuckoo-roller nie jest informacją o przynależności do kukułkowych lub kraskowych. W źródłach należy sprawdzać nazwę naukową i rangę, nie tłumaczyć dosłownie nazw zwyczajowych na systematykę. Kurol jest też dobrym przypomnieniem, że długo rozpoznawana odrębność grupy nie oznacza równie szczegółowej wiedzy o każdym aspekcie jej biologii; w tym profilu nie przypisujemy mu niezweryfikowanych proporcji diety. [3][86]
Trogoniformes — trogony. Przykładem jest Trogon ambiguus, którego opis Cornell obejmuje dietę złożoną z owadów i owoców oraz wyczekiwanie na podporze przed krótkim wypadem po pokarm. Gatunek korzysta z istniejących dziupli, w tym wykutych przez dzięcioły. To zależność ekologiczna między odrębnymi liniami, a nie argument za ich łączeniem w jeden rząd. Przy czytaniu starszych źródeł trzeba uważać na zmiany granic gatunków: obecny profil Cornell zachował w adresie nazwę Elegant_Trogon, choć dotyczy już T. ambiguus. [87]
Ptaki chodzące: kilka różnych rozwiązań
Otidiformes — dropie. Ardeotis kori zamieszkuje otwarte trawiaste i sawannowe krajobrazy Afryki. Większość aktywności odbywa na ziemi, ale zachowuje zdolność lotu. Jest wszystkożerny, a znaczący składnik jego pokarmu stanowią owady. W rozrodzie widoczne są różne role płci: samiec tokuje i może kojarzyć się z więcej niż jedną samicą, natomiast nie uczestniczy w wysiadywaniu ani odchowie piskląt. To opis tego gatunku, nie model rodzicielstwa narzucony wszystkim dużym ptakom naziemnym. [88]
Mesitornithiformes — madagaskarniki. Trzy gatunki tej linii występują na Madagaskarze. Większość ruchu odbywają na ziemi, lecz określenie ich po prostu jako nielotów byłoby błędne. Badania Monias benschi z lat 1997–2000 opisały życie w grupach i wspólną opiekę nad potomstwem. Zestawienia autorów wskazują też różnice między gatunkami w siedlisku oraz organizacji społecznej. Nie należy więc rozciągać wyników uzyskanych dla Monias na obydwa gatunki rodzaju Mesitornis bez osobnego sprawdzenia. [89][3]
Pterocliformes — stepówki. Wyjątkowo pouczający jest przypadek Pterocles namaqua. Dorosły samiec przenosi wodę do młodych w wyspecjalizowanych piórach brzucha. Badacze opisali, jak po zwilżeniu zmienia się ułożenie drobnych elementów pióra, a napięcie powierzchniowe sprzyja zatrzymywaniu wody. To szczególna funkcja określonych piór określonego ptaka. Nie wynika z niej, że całe upierzenie ma chłonąć wodę ani że transport wody zastępuje wszystkie inne potrzeby opieki nad młodymi. [90]
Cariamiformes — kariamy. Cariama cristata wyszukuje pokarm podczas chodzenia po trawiastych i zakrzewionych terenach Ameryki Południowej. Poluje na różne małe zwierzęta; większą zdobycz może uderzać o podłoże przed połknięciem. Długie nogi i naziemne łowy tworzą funkcjonalne podobieństwo do afrykańskiego sekretarza, ale oba ptaki należą do innych rzędów. Kariama potrafi latać, choć często wybiera chodzenie. Ocena zdolności lokomotorycznej wymaga zatem czegoś więcej niż zanotowania najczęściej widzianego sposobu przemieszczania się. [91][3]
Nocna aktywność nie oznacza przynależności do sów
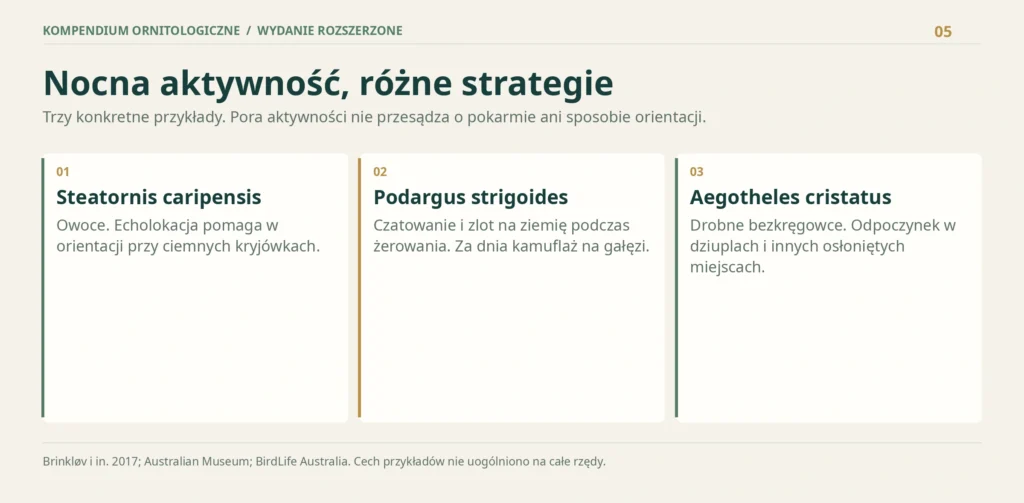
Steatornithiformes — tłuszczak. Steatornis caripensis żeruje nocą na owocach. Do orientacji w otoczeniu wykorzystuje różne informacje zmysłowe, a przy jaskiniowych miejscach odpoczynku posługuje się echolokacją. W badaniu dzikich osobników wykazano zmianę parametrów serii kliknięć w różnych naturalnych warunkach oświetlenia. Nie trzeba przypisywać wszystkim ptakom nocnym polowania na zwierzęta ani jednego uniwersalnego „nocnego zmysłu”. Tłuszczak daje konkretny przykład odmiennego połączenia diety, pory aktywności i nawigacji. [92]
Nyctibiiformes. Należą tu ptaki znane pod angielską nazwą potoos. U Nyctibius griseus barwy, kształt i nieruchoma postawa pomagają upodobnić ciało do fragmentu gałęzi. Jest to istotne dla interpretacji obserwacji: ptak może znajdować się w polu widzenia, a mimo to pozostawać nierozpoznany. Badania wykorzystujące dane obserwatorów wykazały też sezonowe przesunięcia rozmieszczenia w części jego zasięgu w Brazylii. Nie oznacza to wędrówki każdego osobnika ani wszystkich gatunków rzędu. [93]
Podargiformes — paszczaki. Australijski Podargus strigoides ma szeroki dziób i maskujące upierzenie, a w dzień odpoczywa na gałęziach. Dużą część pokarmu zdobywa, zlatując z czatowni na ziemię; może również chwytać niektóre owady w powietrzu. Zbieżność sylwetki z sową nie jest wystarczającą podstawą klasyfikacji. Co więcej, nawet w opisie pojedynczego gatunku trzeba odróżnić dominującą technikę polowania od dodatkowych możliwości. Jedno zaobserwowane zachowanie nie wyczerpuje repertuaru ptaka. [94]
Aegotheliformes. Przykład Aegotheles cristatus łączy nocną aktywność, pokarm z drobnych bezkręgowców oraz korzystanie z dziupli i innych osłoniętych miejsc dziennego odpoczynku. Angielska nazwa owlet-nightjar może sugerować mieszankę sowy i lelka; nie jest to jednak opis taksonomiczny. AviList wyodrębnia rząd Aegotheliformes. Przy poszukiwaniu informacji warto zapisywać nazwę naukową, ponieważ dosłowne tłumaczenie zwyczajowej nazwy może tworzyć pozorną kategorię biologiczną. Dziuple mają tu znaczenie także poza samym okresem składania jaj. [95][3]
Padlinożercy o odrębnej historii
Cathartiformes — kondory i sępniki. Podobna dieta nie łączy wszystkich ptasich padlinożerców w jeden rząd. Cathartes aura wyszukuje padlinę z istotnym udziałem węchu, podczas gdy Coragyps atratus w większej mierze korzysta ze wzroku i może obserwować inne żerujące ptaki. Już ta para pokazuje zróżnicowanie w obrębie jednej rodziny. Widok krążącego ptaka nie określa automatycznie rodzaju zdobyczy ani kanału zmysłowego użytego do jej odnalezienia; obserwowany tor lotu i funkcja poszukiwania to różne poziomy opisu. [96][97][3]
Tabela 6. Co sprawdzić, gdy źródła inaczej nazywają tę samą grupę?
| Przypadek | Co może zmylić? | Rozwiązanie w kompendium |
|---|---|---|
| Eurypyga helias | Profil Smithsonian nadal zawiera Gruiformes. | Biologię zaczerpnięto z profilu, a rząd Eurypygiformes z AviList v2026. [82][3] |
| Trogon ambiguus | Adres strony Cornell zawiera dawną nazwę Elegant_Trogon. | Odczytano bieżący nagłówek i zakres gatunkowy; nie przeniesiono liczebności sprzed podziału. [87] |
| Aegotheles cristatus | Nazwa zwyczajowa sugeruje sowę lub lelka. | Użyto nazwy naukowej oraz rzędu Aegotheliformes, bez tworzenia nazwy hybrydowej. [95][3] |
| Monias benschi | Artykuł z 2003 r. stosuje dawną szerszą klasyfikację. | Zachowano historyczny zakres wyników behawioralnych, a przypisanie rzędowe ujednolicono. [89][3] |
Synteza redakcyjna. Źródła wskazano przy poszczególnych przykładach; porównania nie tworzą nowej klasyfikacji.
Po tych uzupełnieniach czytelnik ma opisowe punkty odniesienia do wszystkich 45 rzędów przyjętej listy. Nie oznacza to jednak pełnego opisu każdej rodziny i każdego gatunku. Rząd jest poziomem organizacji przeglądu; pytania o dietę, gniazdo, rozmieszczenie lub zachowanie wymagają często zejścia do konkretnego gatunku, populacji, płci i etapu roku. Aneks liczbowy służy sprawdzaniu zakresu klasyfikacji, a profile biologiczne — stawianiu precyzyjniejszych pytań.
Rozdział 9Atlas strategii życia: jak porównywać grupy ptaków
Porównanie ma wyjaśniać mechanizm. Sama podobna sylwetka, dieta lub pora aktywności nie wystarcza do wniosku o wspólnym pochodzeniu.
Profesjonalny atlas porównawczy powinien określać, co jest jednostką porównania. Może nią być cały gatunek, konkretny narząd, zachowanie w jednej sytuacji albo funkcja ekologiczna. Te poziomy nie są wymienne. Stwierdzenie, że dwa ptaki pobierają owoce, nie mówi jeszcze, czy korzystają z tych samych roślin, połykają równie duże owoce, zdobywają je podczas lotu czy na podporze oraz gdzie później przemieszczają nasiona. Podobieństwo jest początkiem analizy; wyjaśnienie wymaga opisania czynności i warunków.
Najpierw zasób i sposób dostępu, potem ogólna etykieta
Nazwy „owocożerca”, „owadożerca” i „padlinożerca” porządkują wiedzę, ale należy je czytać jako skróty. W przypadku Trogon ambiguus opis obejmuje zarówno owoce, jak i owady, a młode otrzymują pokarm zwierzęcy. U Colius striatus odnotowuje się również różne składniki roślinne i zwierzęce. Zamiast przydzielać gatunkowi jedną niezmienną szufladę, warto zapisać dietę wraz z etapem życia i sposobem zdobywania pokarmu. Wtedy porównanie pomaga rozumieć wybór siedliska, a nie jedynie zapamiętać etykietę. [87][85]
Tabela 7. Podobna nazwa strategii może ukrywać inny mechanizm
| Etykieta ogólna | Dwa konkretne przykłady | Co rzeczywiście porównujemy? |
|---|---|---|
| Korzystanie z owoców | Turaki opisane przez LA Zoo oraz nocny tłuszczak. [83][92] | Ruch wśród gałęzi i porę żerowania; wspólny zasób nie oznacza identycznego sposobu dostępu. |
| Nocne żerowanie | Podargus strigoides i Steatornis caripensis. [94][92] | U pierwszego istotne są łowy z czatowni, u drugiego pobieranie owoców; noc nie określa diety. |
| Naziemne poszukiwanie pokarmu | Kagu i Ardeotis kori. [81][88] | Warstwę ściółki leśnej oraz otwarty krajobraz; samo chodzenie nie wyznacza jednego siedliska. |
| Związek z wodą | Flamingi i Phaethon lepturus. [79][80] | Filtrowanie w płytkiej wodzie oraz pozyskiwanie zdobyczy z powietrza nad morzem. |
| Wyszukiwanie padliny | Cathartes aura i Coragyps atratus. [96][97] | Znaczenie węchu, wzroku i obserwacji innych osobników; jedna rodzina nie oznacza jednej metody. |
Synteza redakcyjna. Źródła wskazano przy poszczególnych przykładach; porównania nie tworzą nowej klasyfikacji.
Dobrze zbudowana tabela nie musi rozstrzygać, która strategia jest „lepsza”. Takie porównanie wymagałoby wspólnej miary, na przykład pozyskiwanej energii w danych warunkach, oraz uwzględnienia kosztów. Bez tych danych ranking zręczności czy inteligencji jest opinią. Można natomiast uczciwie wskazać, które pytanie rozwiązuje dana obserwacja: czy ptak żerował sam, skąd ruszał po zdobycz, jak długo przebywał w określonej warstwie roślinności i co rzeczywiście udało się zobaczyć.
Skrzydło i noga mają więcej niż jedną rolę
Sprowadzenie skrzydła do lotu w powietrzu utrudnia opis gatunków, które używają go także do sygnalizacji lub obrony. Kagu rozpościera skrzydła między innymi w zachowaniach związanych z zagrożeniem, a Eurypyga helias pokazuje na nich kontrastowy wzór. Z kolei częste chodzenie kariamy nie jest dowodem braku zdolności lotu. Podczas opisu należy więc oddzielić funkcję narządu, jego widoczną budowę i to, jak często dany ruch wystąpił w krótkiej obserwacji. [81][82][91]
Tabela 8. Od widocznej cechy do sprawdzalnego pytania
| Obserwacja | Uzasadnione pytanie | Czego sama obserwacja nie rozstrzyga? |
|---|---|---|
| Ptak długo chodzi po ziemi. | Czy lot jest niemożliwy, czy po prostu nie został w tej sytuacji użyty? | Nie rozstrzyga nielotności. Kariamy potrafią korzystać z lotu. [91] |
| Ptak ma rozpostarte skrzydła. | Czy jest to start, równoważenie, sygnał lub reakcja obronna? | Nie określa automatycznie jednej funkcji; u kagu i Eurypyga występują pokazy skrzydeł. [81][82] |
| Ptak siedzi nieruchomo na gałęzi. | Czy odpoczywa, ukrywa się, czy wypatruje pokarmu? | Podobna pozycja może towarzyszyć kamuflażowi Nyctibius albo żerowaniu trogona. [93][87] |
| Ptak przebywa w dziupli. | Czy jest to miejsce lęgu, schronienie dzienne czy chwilowy postój? | Nie potwierdza samoistnie lęgu; Aegotheles wykorzystuje kryjówki także do odpoczynku. [95] |
Synteza redakcyjna. Źródła wskazano przy poszczególnych przykładach; porównania nie tworzą nowej klasyfikacji.
Własny opis warto formułować czasownikami: „przeskakiwał między gałęziami”, „zlatywał z podpory”, „wkładał odwrócony dziób do wody”. Są one informacyjnie bogatsze niż ogólne „zachowywał się typowo”. Dopiero kolejny krok polega na powiązaniu zapisu z hipotezą biologiczną. Jeśli nie było widać przełkniętego obiektu, można opisać atak lub ruch chwytania, lecz nie trzeba dopisywać gatunku ofiary. Taka precyzja sprawia, że notatka pozostaje użyteczna również wtedy, gdy początkowa interpretacja się zmieni.
Miejsce lęgu, miejsce odpoczynku i społeczność
Porównywanie gniazd nie powinno polegać na układaniu drabiny od „prostych” do „doskonałych”. Najpierw trzeba rozpoznać, co podtrzymuje jaja, jakie zasoby otoczenia są wykorzystywane i kto uczestniczy w opiece. Należy też rozdzielać gniazdo od noclegowiska lub dziennej kryjówki. Ten sam typ przestrzeni, na przykład otwór w drzewie, może pełnić kilka funkcji. Zestawienie poniżej nie jest pełnym opisem lęgów poszczególnych rzędów; pokazuje, jak ograniczyć porównanie do konkretnych przykładów.
Tabela 9. Różne rozwiązania przestrzenne i rodzicielskie
| Przykład | Rozwiązanie opisane w źródle | Granica uogólnienia |
|---|---|---|
| Ardeotis kori | Samica składa jaja na ziemi; samiec nie uczestniczy w ich wysiadywaniu ani odchowie. [88] | Nie jest to reguła dla wszystkich dużych ptaków chodzących. |
| Podargus strigoides | Luźna konstrukcja z patyków na gałęzi; wysiadywanie dzielą obie płcie. [94] | Podobieństwo do sowy nie określa rodzaju gniazda. |
| Trogon ambiguus | Wykorzystuje istniejące otwory w drzewach, także wykonane przez dzięcioły. [87] | Zajęcie dziupli nie oznacza, że ptak sam ją wykuł. |
| Monias benschi | W badanej populacji dorosłe osobniki w grupie współpracowały przy wychowie. [89] | Wynik z lat 1997–2000 nie opisuje automatycznie każdego gatunku madagaskarnika. |
| Aegotheles cristatus | Dziupla lub inna osłonięta przestrzeń może służyć dziennemu odpoczynkowi. [95] | Samo zajmowanie kryjówki nie dowodzi obecności jaj lub piskląt. |
Synteza redakcyjna. Źródła wskazano przy poszczególnych przykładach; porównania nie tworzą nowej klasyfikacji.
Istotne jest także rozróżnienie obserwacji jednorazowej i wyniku badań. Widok kilku ptaków koło gniazda nie dowodzi współpracy przy rozrodzie. Mogą przelatywać, żerować w pobliżu lub reagować na zagrożenie. Aby mówić o pomocnikach, trzeba wykazać udział w opiece, a często również rozpoznać osobniki i ich relacje. Nie należy też utożsamiać społecznej pary z wyłącznym rodzicielstwem genetycznym. Tabela opisuje zachowania potwierdzone w wykorzystanych źródłach, bez dopisywania niebadanych więzi pokrewieństwa.
Konwergencja, wspólne pochodzenie i granice analogii
Słowo „konwergencja” oznacza niezależne powstanie podobnych rozwiązań w różnych liniach. Nie można jej dowieść jedynie fotografią podobnych ptaków ani stwierdzeniem, że należą do różnych rzędów. Część podobieństw wynika ze wspólnego pochodzenia, inne mogą pojawiać się niezależnie, a jeszcze inne są powierzchowne i znikają po porównaniu anatomii. Rozstrzygnięcie wymaga zrekonstruowania historii cechy na tle pokrewieństwa. W praktycznym opisie bez takiej analizy bezpieczniej mówić o podobieństwie funkcjonalnym.
Przykład hoacyna i przeżuwaczy ma mocniejszą podstawę niż luźne porównanie wyglądu: autorzy badania społeczności bakterii traktowali fermentację w przedniej części przewodu pokarmowego jako niezależnie wykształconą funkcję i porównywali jej środowisko mikrobiologiczne. Jest to analogia działania, a nie dowód, że ptasi i ssaczy narząd są tą samą strukturą. Tę samą dyscyplinę pojęciową warto zachowywać przy zestawianiu dziobów, skrzydeł, pokarmu i zachowań społecznych. [84]
Tabela 10. Cztery poziomy porównania, których nie należy mieszać
| Poziom | Przykład pytania | Jakie dane są potrzebne? |
|---|---|---|
| Opis wyglądu | Czy dwa ptaki mają podobnie długie nogi? | Porównywalna skala, pozycja ciała, wiek i sposób pomiaru. |
| Opis funkcji | Czy oba wykorzystują nogi do podobnego sposobu przemieszczania się? | Obserwacje ruchu w określonym środowisku; sama fotografia nie wystarcza. |
| Wyjaśnienie mechanizmu | Jak narząd lub materiał wykonuje swoją funkcję? | Badanie struktury i działania; przykładem są zmiany ułożenia elementów mokrego pióra Pterocles namaqua. [90] |
| Wyjaśnienie ewolucyjne | Czy podobna funkcja powstała niezależnie? | Dane o pokrewieństwie i historii cechy; przykład fermentacji hoacyna i przeżuwaczy. [84] |
Synteza redakcyjna. Źródła wskazano przy poszczególnych przykładach; porównania nie tworzą nowej klasyfikacji.
Najbardziej użyteczny rezultat takiego atlasu nie polega na nauczeniu się kolejnej listy wyjątków. Czytelnik zyskuje procedurę: nazwać porównywaną cechę, wskazać gatunki i warunki, opisać zachowanie, sprawdzić źródło oraz oddzielić obserwację od wyjaśnienia. Dzięki temu nowy, nieznany ptak staje się przedmiotem uporządkowanego pytania. Nie trzeba od razu wiedzieć wszystkiego o gatunku, aby przygotować poprawny opis; trzeba wiedzieć, których wniosków jeszcze nie uzasadnia dostępny materiał.
Część IIBiologia i przystosowania
Rozdział 10Anatomia i oddychanie: organizm działający jako całość
Skrzydła nie wystarczyłyby do lotu bez współpracy mięśni, szkieletu, krążenia i układu oddechowego.
Ptasi szkielet łączy ruchomość tam, gdzie potrzebna jest precyzja, z usztywnieniem części przenoszących obciążenia. Szyja pozwala przemieszczać głowę i dziób, natomiast liczne zrosty stabilizują tułów i kończyny. U wielu ptaków grzebień mostka stanowi rozbudowane miejsce przyczepu mięśni związanych z lotem. Inny układ proporcji spotyka się u biegaczy, nurków i ptaków chwytających pokarm w powietrzu. Zamiast szukać jednej „idealnej” budowy ptaka, warto pytać, jakie siły działają na ciało w konkretnym środowisku. [98]
Pneumatyczne kości: precyzyjniejsze wyjaśnienie
Pneumatyzacja oznacza obecność przestrzeni powietrznych powiązanych z układem oddechowym w części kości. Jej zakres różni się między gatunkami oraz między elementami szkieletu tego samego ptaka. U wielu wyspecjalizowanych nurków jest ograniczony. Nieprawdziwe jest zatem twierdzenie, że „wszystkie kości ptaków są puste”. Zbyt prosty jest również wniosek, że całe szkielety ptaków muszą ważyć mniej niż szkielety innych zwierząt o tej samej masie ciała. Przegląd Moore’a i Schachner z 2025 r. wyraźnie rozdziela lokalną strukturę kości, masę szkieletu i proporcje całego organizmu. [99]
Wyobrażenie kości jako cienkiej, jednolitej rurki także wprowadza w błąd. O wytrzymałości decydują geometria, rozmieszczenie tkanki i wewnętrzne wzmocnienia, a nie sama ilość materiału. Dla obserwatora praktyczny wniosek jest prosty: cecha anatomiczna nie działa w izolacji. Nurkowanie wiąże się między innymi z wypornością, lot z obciążeniami i transportem tlenu, a wzrost z przemianami całego szkieletu. Opis „lekkości” ma sens dopiero po podaniu, co dokładnie porównujemy. [98][99]
Płuca wymieniają gazy, worki powietrzne wentylują
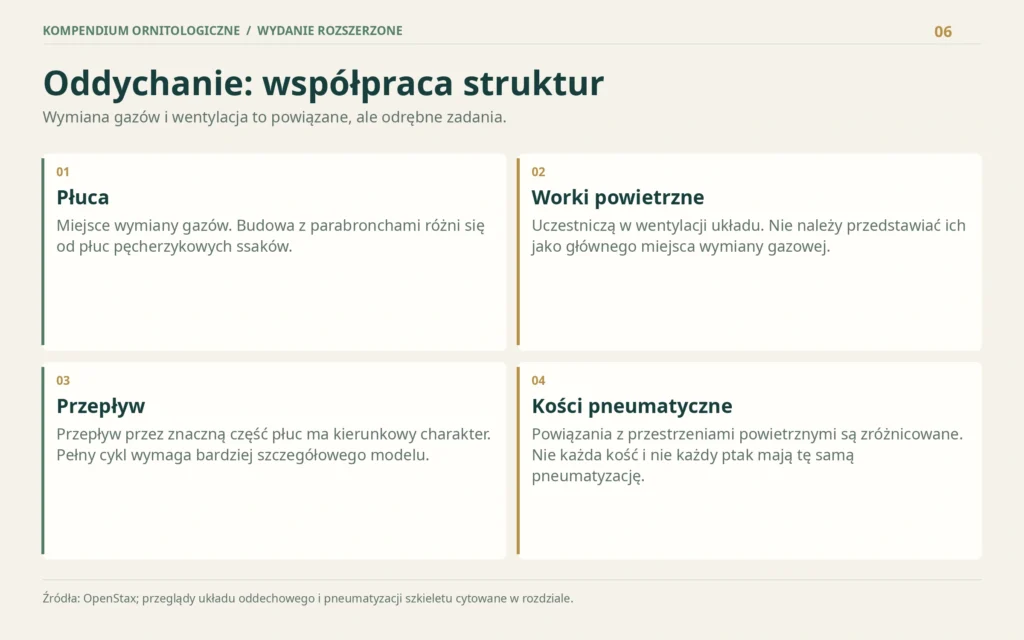
W zasadniczym uproszczeniu ptasie płuca są stosunkowo sztywne i zawierają powierzchnię wymiany gazowej, natomiast worki powietrzne uczestniczą w przemieszczaniu powietrza. Nie należy rysować worków jako odpowiedników pęcherzyków płucnych ssaków. W znacznej części płuca przepływ przez drogi wymiany gazowej ma kierunek pozwalający utrzymywać wentylację zarówno podczas wdechu, jak i wydechu. Szczegóły różnią się między częściami układu i gatunkami; popularny schemat jednego „pakietu powietrza” jest modelem dydaktycznym, a nie pełnym opisem przepływu. [100]
Sprawność oddychania zależy także od powierzchni wymiany, bariery powietrze–krew i przepływu krwi. Sama pojemność płuc ani fotografia anatomiczna nie pozwala wyznaczyć wydolności wysiłkowej czy sprawności migracyjnej gatunku. [100]
Tabela 11. Trzy częste skróty myślowe dotyczące budowy ptaków
| Skrót myślowy | Dokładniejsze ujęcie | Konsekwencja dla interpretacji |
|---|---|---|
| „Każda kość jest pusta” | Zakres pneumatyzacji zależy od gatunku i kości. | Nie przenoś opisu jednego szkieletu na wszystkie ptaki. |
| „Worki powietrzne to płuca” | Worki przede wszystkim uczestniczą w wentylacji; wymiana gazów zachodzi w płucach. | Oddziel pompę wentylacyjną od powierzchni wymiany. |
| „Mniejsza masa zawsze znaczy lepiej” | Budowa musi również zapewniać wytrzymałość, magazynowanie zasobów i sprawność w wodzie lub na lądzie. | Przystosowanie ocenia się względem warunków życia. |
Synteza anatomii i fizjologii; ostatnia kolumna zawiera wnioski interpretacyjne. [98][100][99]
W obrębie jednego organizmu cechy także bywają powiązane. Zmiana proporcji skrzydeł wpływa na sposób ich poruszania, a praca mięśni stawia wymagania wentylacji i ukrwieniu. Nie da się więc rzetelnie przypisać osiągnięć ptaka pojedynczemu „cudownemu” narządowi. Dobry opis anatomii prowadzi od budowy do mierzalnej funkcji, następnie do zachowania i warunków, w których funkcja ma znaczenie. Taki porządek ogranicza kuszące, ale niepełne wyjaśnienia oparte wyłącznie na małej masie lub wyjątkowo dużych płucach.
Rozdział 11Lot, szybowanie i sen w powietrzu
Wspólny problem utrzymania ciała w powietrzu ma wiele rozwiązań, zależnych od sylwetki i warunków atmosferycznych.
Lot można opisywać przez analizę działających sił: ciężaru, sił aerodynamicznych podtrzymujących ciało, oporu oraz składowej zapewniającej ruch. Skrzydło ptaka zmienia ustawienie i kształt, a ruchy lotek wpływają na przepływ powietrza. W odróżnieniu od prostego rysunku nieruchomego profilu lot aktywny jest procesem zmiennym w czasie. Popularne wyjaśnienie nie powinno zakładać, że dwie porcje powietrza rozdzielone na krawędzi skrzydła muszą spotkać się jednocześnie za nim. Opis mechaniki wymaga powiązania różnic ciśnienia z ruchem powietrza. [101][102]
Długie, stosunkowo wąskie skrzydła mogą sprzyjać sprawnemu przemieszczaniu się na otwartej przestrzeni, a bardziej zwarte sylwetki ułatwiają inne zadania, na przykład manewrowanie między przeszkodami. Nie jest to jednak prosty klucz pozwalający z jednego pomiaru przewidzieć wszystkie zachowania. Znaczenie ma też masa ciała, powierzchnia skrzydeł, sposób ich używania i wiatr. Ten sam ptak w różnych momentach przechodzi między machaniem skrzydłami, ślizgiem i wykorzystywaniem wznoszącego się powietrza. [101][103]
Energia z atmosfery
Szybowanie termiczne polega na wykorzystywaniu wznoszących się mas powietrza. Ptak może krążyć, zyskiwać wysokość, a potem pokonywać odcinek lotem ślizgowym. Szybowanie dynamiczne albatrosów opiera się na wykorzystywaniu zmian prędkości wiatru w przestrzeni, szczególnie nad powierzchnią oceanu. Pomiary trajektorii potwierdziły związek odpowiednich manewrów z pobieraniem energii z takiego przepływu. Określenie „lot bez machania” nie oznacza braku zużycia energii przez cały organizm: ptak nadal oddycha, utrzymuje napięcie mięśni i steruje. [104][103]
Tabela 12. Różne tryby przemieszczania się w powietrzu
| Tryb | Główne źródło energii mechanicznej | Ważne ograniczenie |
|---|---|---|
| Lot aktywny | Praca mięśni poruszających skrzydłami | Wymaga ciągłego zaopatrzenia tkanek w energię i tlen. |
| Lot ślizgowy | Wykorzystanie wysokości i prędkości | W spokojnym powietrzu ptak stopniowo traci wysokość. |
| Szybowanie termiczne | Wznoszące się powietrze | Zależy od dostępności odpowiednich prądów. |
| Szybowanie dynamiczne | Gradienty prędkości wiatru | Wymaga odpowiedniej trajektorii i warunków przepływu. |
Schemat funkcjonalny, a nie rozłączny podział gatunków. [101][104][103]

Co rzeczywiście wykazały rejestratory?
Hedenström i współautorzy opublikowali w 2016 r. wyniki wskazujące, że monitorowane jerzyki Apus apus spędzały ponad 99% dziesięciomiesięcznego okresu pozalęgowego w powietrzu. U części osobników nie zarejestrowano osiadania, u innych wystąpiły krótkie okresy bez aktywności lotnej. To niezwykły wynik dotyczący określonej próby i fazy cyklu rocznego. Nie uprawnia do zdania, że każdy jerzyk nigdy nie ląduje, ani do przenoszenia wyniku na wszystkie jerzykowate. [105]
Długotrwałe przebywanie w powietrzu rodzi pytanie o sen. Rattenborg i współautorzy mierzyli aktywność mózgu fregat Fregata minor podczas lotów nad oceanem. W badanych warunkach ptaki spały średnio 0,69 godziny na dobę, czyli około 41 minut, znacznie mniej niż na lądzie. Rejestrowano sen obejmujący jedną lub obie półkule. Bezpośredni pomiar fizjologiczny pozwala stwierdzić sen u tych ptaków; sam zapis ruchu skrzydeł lub toru lotu nie wystarcza do równie mocnego wniosku. [106]
Prędkość względem powietrza i względem ziemi
Przemieszczenie na mapie zależy zarówno od ruchu ptaka względem powietrza, jak i od ruchu samej masy powietrza. Przy sprzyjającym wietrze ptak może szybko przesuwać się względem powierzchni Ziemi bez proporcjonalnego zwiększenia wysiłku. Przy przeciwnym wietrze może zużywać dużo energii, uzyskując mały postęp na trasie. Z tego wynika wymóg metodologiczny: przy rekordzie trzeba zapytać o układ odniesienia oraz sposób pomiaru. Dystans między rzadko zapisanymi pozycjami dodatkowo pomija drobne zakręty i lokalne manewry. W badaniach szybowania właśnie szczegółowy przebieg trajektorii ujawnia mechanizm korzystania z wiatru. [104]
Rozdział 12Pióra, barwy i pierzenie
Upierzenie jest jednocześnie powierzchnią aerodynamiczną, izolacją, ochroną i nośnikiem informacji.
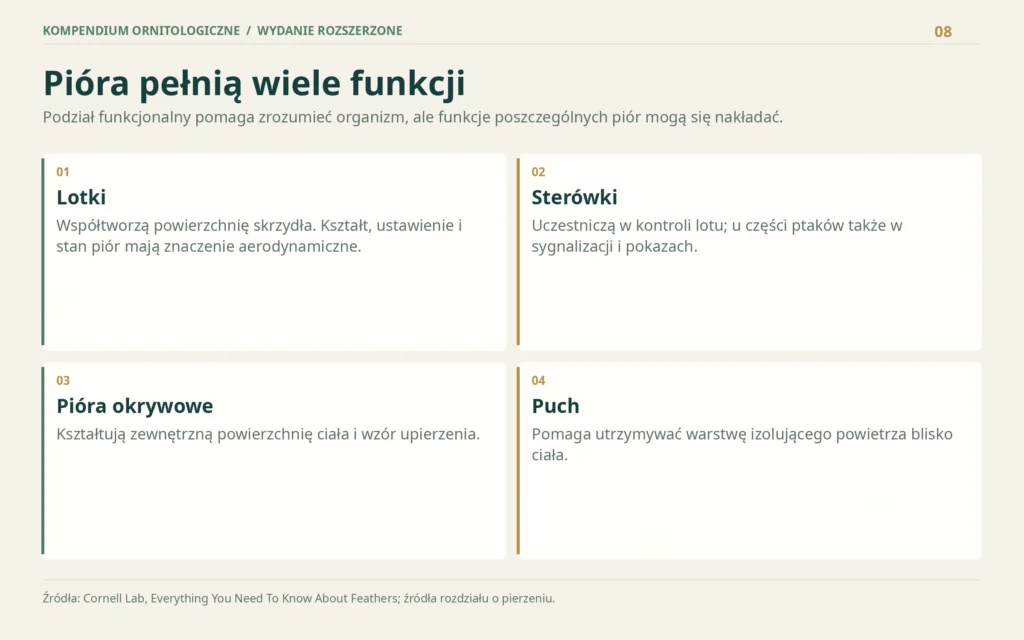
Pióro tworzy rozgałęzioną strukturę. W typowym piórze o zwartej chorągiewce od osi odchodzą promienie, a od nich drobniejsze elementy łączące sąsiednie części. Dzięki temu powierzchnia może być lekka i podatna na uporządkowanie podczas czyszczenia. W puchu układ jest luźniejszy, co sprzyja zatrzymywaniu powietrza blisko ciała. Nie każde pióro pełni tę samą funkcję, a jedno pióro konturowe może łączyć część zwartą i bardziej puszystą. [107]
Dojrzałe pióro jest wytworem naskórka, którego odsłonięta część nie naprawia się tak jak żywa tkanka. Mechaniczne rozdzielenie elementów chorągiewki można częściowo skorygować przez ich ponowne ułożenie, ale złamanego lub zużytego fragmentu ptak nie „zagoi”. Odnowę zapewnia wzrost nowego pióra w kolejnych etapach pierzenia. To wyjaśnia, dlaczego codzienna pielęgnacja i okresowa wymiana upierzenia są odrębnymi procesami. [108][109]
Tabela 13. Pióra według funkcji: praktyczny porządek pojęć
| Element upierzenia | Najważniejsza rola | Co widać w terenie |
|---|---|---|
| Lotki | Tworzenie i kontrola powierzchni skrzydła | Długość, kształt i kontrastowe wzory na skrzydle. |
| Sterówki | Udział w kierowaniu lotem; u części ptaków również podparcie | Kształt ogona i sposób jego rozkładania. |
| Pióra konturowe tułowia | Osłona i zewnętrzny obrys ciała | Wzór, barwa, gładkość lub nastroszenie. |
| Puch i części puchowe | Ograniczanie przepływu ciepła przez warstwę zatrzymanego powietrza | Puszystość nie oznacza większych rozmiarów szkieletu. |
Podział służy wyjaśnieniu funkcji; nie jest kompletną klasyfikacją wszystkich typów piór. [107][108]
Kolor nie zawsze jest pigmentem
Barwy piór mogą wynikać z obecności pigmentów i z oddziaływania światła z ich drobną strukturą. Melaniny współtworzą między innymi ciemne odcienie, a karotenoidy uczestniczą w powstawaniu części barw żółtych, pomarańczowych i czerwonych. Barwy strukturalne zależą od uporządkowania materiału na bardzo małej skali. Zmiana kąta oświetlenia i obserwacji może więc radykalnie zmienić wygląd połyskującego fragmentu upierzenia. Nazwa koloru w przewodniku opisuje efekt widziany w określonych warunkach, nie uniwersalną właściwość fotografii. [111]
Dwa zdjęcia tego samego osobnika mogą wyglądać jak fotografie różnych ptaków, jeżeli wykonano je w cieniu i w pełnym słońcu. Wpływ mają także balans bieli, ekspozycja, odbicie światła od otoczenia i wilgotność upierzenia. Wniosek identyfikacyjny warto zatem opierać na położeniu plam, proporcjach i kilku współwystępujących cechach. Barwa jest ważna, ale jej interpretacja wymaga znajomości mechanizmu powstawania oraz ograniczeń obserwacji. To praktyczna konsekwencja fizyki piór. [111][108]
Pierzenie zmienia wygląd i koszty życia
Pierzenie może być pełne albo obejmować tylko część upierzenia. Kolejność wymiany i jej termin zależą od gatunku, wieku, płci oraz cyklu rocznego. Część ptaków wymienia lotki stopniowo, zachowując zdolność lotu, natomiast u niektórych grup utrata lotek jest na tyle zsynchronizowana, że przez pewien czas nie mogą latać. Nie wolno więc przedstawiać jednego kalendarza jako wspólnego dla całej awifauny. Szata, która wygląda na „inną płeć”, może być efektem wieku, pory roku albo ścierania końców piór. [109][110]
Rozpoznawanie wieku na podstawie granic pierzenia wymaga znajomości konkretnego gatunku. Zestaw nowych i starych piór bywa informacyjny, ale nie każde jaśniejsze pióro jest starsze, a nie każda nierówność skrzydła wynika z normalnej wymiany. Pióra niszczą się mechanicznie i pod wpływem warunków środowiska. Jeśli zdjęcie nie pokazuje odpowiednich partii skrzydła lub jakość obrazu jest słaba, profesjonalny opis powinien pozostać przy ostrożniejszym „wiek nieoznaczony”. [110]
Opis upierzenia warto rozdzielić na barwę, rozmieszczenie wzoru i stan piór. Określenie „ciemniejszy” może oznaczać inny pigment, odmienną strukturę, mokre pióra albo tylko inne oświetlenie. Słowo „wyblakły” zakłada już proces zmiany, którego pojedyncze zdjęcie nie dokumentuje. Rzetelna notatka obserwacyjna podaje najpierw to, co widoczne: na przykład jasne obrzeżenia określonych piór i brak kontrastu w konkretnym miejscu. Dopiero potem można rozważać wiek lub etap pierzenia. Oddzielenie obserwacji od wyjaśnienia ułatwia późniejszą kontrolę oznaczenia przez inną osobę.
Rozdział 13Ciepło, woda i sól: mniej widoczne przystosowania
Utrzymanie sprawności wymaga regulacji temperatury i bilansu wody. Te same rozwiązania nie działają identycznie u wszystkich gatunków.
Ptaki wytwarzają ciepło w procesach metabolicznych, ale temperatura ich ciała nie jest zawsze jedną stałą wartością. Może zmieniać się z aktywnością, porą doby i warunkami. Część gatunków potrafi czasowo obniżać metabolizm oraz temperaturę, ograniczając wydatki energetyczne. Taką elastyczność nazywa się heterotermią. Głębokiego torporu nie należy jednak przypisywać wszystkim małym ptakom ani utożsamiać go z dowolnym bezruchem. Prawidłowy opis wymaga pomiaru fizjologicznego lub dobrze udokumentowanej wiedzy o gatunku. [112]
Izolacja upierzenia ogranicza wymianę ciepła, lecz sama nie produkuje energii. Nastroszenie zwiększa objętość warstwy powietrza, a zmiana postawy wpływa na odsłoniętą powierzchnię ciała. Z punktu widzenia bilansu energii znaczenie ma nie tylko temperatura powietrza, lecz także wiatr, promieniowanie słoneczne, wilgotność i dostępność pokarmu. Dlatego dwa ptaki obserwowane przy tej samej temperaturze mogą ponosić różne koszty utrzymania ciała. Interpretacja zachowania wymaga kontekstu, a nie samego odczytu termometru. [107][112]
Torpor: pomiar w konkretnych warunkach
W badaniu Wolf i współautorów opublikowanym w 2020 r. monitorowano w marcu 2015 r. nocą 26 kolibrów należących do sześciu gatunków w peruwiańskich Andach, na wysokości około 3800 m n.p.m. Ptaki przetrzymywano nocą w warunkach naturalnego przebiegu temperatury otoczenia. U jednego osobnika Metallura phoebe zmierzono minimum 3,26°C. Jest to opis skrajnego wyniku w danym badaniu, a nie „zwykła nocna temperatura kolibra”. Nie dowodzi również, że dowolny koliber może bezpiecznie osiągać taką wartość. [113]

Torpor pokazuje, że stałocieplność nie musi oznaczać niezmienności temperatury przez całą dobę. Należy jednak pamiętać o koszcie ponownego ogrzania, ograniczeniu aktywności i potencjalnej ekspozycji na zagrożenia. Przeglądy podkreślają zróżnicowanie między gatunkami oraz trudności z określaniem rzeczywistej oszczędności energii w naturze. Zastosowanie słowa „oszczędność” wymaga porównania z odpowiednim scenariuszem: ile energii ten sam ptak zużyłby w tych samych warunkach, pozostając aktywnie ogrzany? [113][112]
Dziób może pomagać oddawać ciepło
Badanie tukana wielkiego Ramphastos toco z 2009 r. wykazało regulowane oddawanie ciepła przez silnie unaczyniony dziób. Zmiana przepływu krwi umożliwia zmianę jego roli w bilansie cieplnym. Ten przykład przypomina, że duża struktura nie musi mieć jednej funkcji: dziób uczestniczy w pobieraniu pokarmu, interakcjach i fizjologii. Wyniku u tukana nie należy mechanicznie przenosić na każdy ptasi dziób ani używać jako jedynego wyjaśnienia jego ewolucji. [114]
Jak ptaki morskie radzą sobie z solą?
U ptaków wyposażonych w czynne gruczoły solne nadmiar soli może być usuwany w wydzielinie bardziej stężonej niż płyny organizmu. Gruczoły współdziałają z nerkami i przewodem pokarmowym, dlatego regulacja wody nie sprowadza się do jednego narządu. Ich aktywność i wydolność mogą odpowiadać na obciążenie solą. Stwierdzenie, że „ptaki piją wodę morską”, jest bez określenia grupy i warunków zbyt szerokie. Obecność ptaka nad morzem nie dowodzi też, że czerpie całą wodę właśnie z morza. [115]
Oddawanie ciepła przez powierzchnię ciała zależy od różnicy temperatur i warunków przepływu powietrza. Zwiększenie ukrwienia dzioba może pomóc w odpowiednich warunkach, lecz nie jest nieograniczoną ochroną przed przegrzaniem. Podobnie izolacja korzystna w chłodzie może wymagać kompensacji podczas wysiłku. Termoregulacja jest zarządzaniem kilkoma strumieniami energii, a nie utrzymywaniem jednego ustawienia organizmu. W porównaniu gatunków warto więc pytać o warunki doświadczenia: temperaturę, aktywność, dostęp do wody i czas trwania pomiaru. Bez tych informacji dwie podane temperatury ciała mogą opisywać zupełnie różne sytuacje. [114]
Rozdział 14Pokarm, dziób i trawienie: od narzędzia do całej strategii
Kształt dzioba pomaga zrozumieć żerowanie, lecz nie jest samodzielnym i niezawodnym kluczem do diety.
Najbardziej użyteczne jest rozdzielenie trzech pytań: co ptak zjada, gdzie zdobywa pokarm i jak go obrabia. Dwa gatunki owadożerne mogą polować zupełnie inaczej: jeden chwyta ofiary w powietrzu, drugi wybiera je z kory lub podłoża. Ptak żywiący się głównie nasionami może w okresie karmienia młodych dostarczać im również pokarm zwierzęcy. Klasyfikacja diety jest więc uproszczonym opisem, zależnym od pory roku, wieku i sposobu mierzenia udziału różnych składników. [116]
Badania porównawcze dziobów pokazują ograniczenia szkolnego schematu „jeden kształt — jeden pokarm”. Bright i współautorzy, analizując ptaki drapieżne, wykazali duże znaczenie integracji dzioba z pozostałą częścią czaszki oraz rozmiarów ciała. Szersza analiza Navalóna i współautorów potwierdziła związek budowy z ekologią żerowania, ale nie sprowadziła całej różnorodności kształtów do kategorii diety. Znaczenie mają również historia ewolucyjna, rozwój i inne funkcje dzioba. [117][116]
Tabela 14. Dzioby jako wskazówki funkcjonalne, nie gwarancja diety
| Ogólny typ | Przykładowe zadanie | Zastrzeżenie |
|---|---|---|
| Krótki i masywny | Chwytanie i rozdrabnianie twardych obiektów | Nie dowodzi wyłącznej ziarnożerności. |
| Smukły i wydłużony | Sięganie do szczelin, podłoża lub kwiatów | Podobna forma może obsługiwać różne zasoby. |
| Silnie zakrzywiony | Uchwycenie i rozrywanie pokarmu | Zakrzywienie nie oznacza automatycznie drapieżnego polowania. |
| Spłaszczony z odpowiednimi strukturami krawędzi | Oddzielanie i pobieranie drobnych cząstek | Poszczególne blaszkodziobe różnią się dietą i techniką. |
Zestawienie jakościowe. Nie jest skalą siły ugryzienia ani kluczem do oznaczania gatunków. [117][116][118]
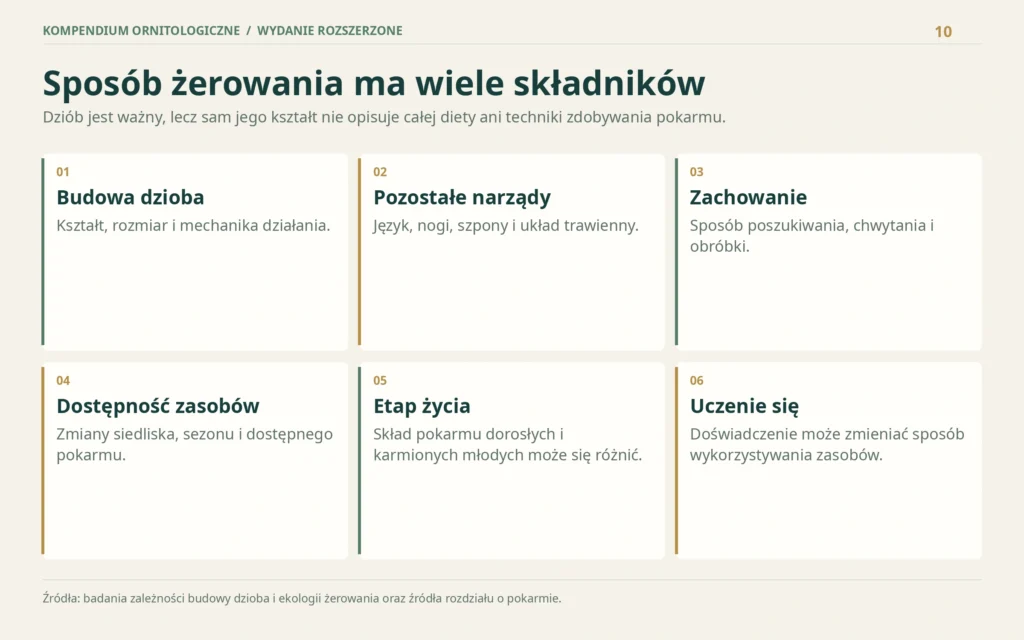
Żołądek gruczołowy i mięśniowy
Pokarm trafia przez przełyk do kolejnych odcinków przewodu pokarmowego. U części ptaków występuje wole służące między innymi czasowemu przechowywaniu pokarmu, lecz nie wolno zakładać identycznego wola u wszystkich gatunków. Żołądek gruczołowy uczestniczy w chemicznym trawieniu, a mięśniowy w mechanicznym przetwarzaniu. Stopień umięśnienia i rola połkniętych drobnych kamieni zależą od sposobu odżywiania. Ogólna obecność żołądka mięśniowego nie oznacza, że każdy ptak potrzebuje identycznej ilości żwirku. [120]
Przewód pokarmowy nie jest konstrukcją niezmienną przez całe życie. Zmiany dostępnego pokarmu i okresów intensywnego żerowania mogą wiązać się z dostosowaniem wielkości lub aktywności jego części. U ptaków wodnych opisano związek wielkości żołądka mięśniowego z charakterem spożywanych pokarmów. To dobry przykład plastyczności: organizm może zmieniać sposób inwestowania zasobów w zależności od potrzeb. Nie należy jednak z tego wyciągać wniosku, że każda dowolna zmiana pokarmu jest dla niego obojętna. [118]
Koliber nie jest po prostu ptakiem ze słomką
Mechanizm pobierania nektaru przez kolibry był długo wyjaśniany zbyt prostą analogią do kapilary. Badania Rico-Guevary i współautorów opublikowane w 2015 r. wykazały, jak elastyczne bruzdy języka zmieniają kształt i pobierają ciecz. Model języka jako mikropompy lepiej opisuje obserwowaną mechanikę niż wyobrażenie sztywnej rurki. Przypadek ten ilustruje, dlaczego nawet bardzo rozpowszechniona ilustracja podręcznikowa może wymagać korekty po zastosowaniu szybkiego filmowania i eksperymentu. [119]
W analizie diety ważna jest również jednostka. Udział „50% owadów” może oznaczać połowę rozpoznanych obiektów, połowę masy albo połowę energii. Mały liczny pokarm i duży rzadki pokarm nie dadzą takiego samego wyniku przy każdej metodzie. Wypluwki wskazują część zjedzonych organizmów, lecz podatność elementów na trawienie wpływa na to, co zostaje wykryte. Profesjonalne zestawienie diety powinno więc podawać metodę, sezon i grupę badanych ptaków, a nie samą pozornie precyzyjną liczbę. [120]
Zachowanie pomaga uzupełnić to, czego nie widać w samym kształcie dzioba. Istotne jest, czy ptak rozłupuje obiekt, połyka go w całości, odrywa fragmenty, przesiewa materiał czy wielokrotnie sonduje podłoże. W każdej z tych czynności inne właściwości mogą ograniczać skuteczność: siła, precyzja, zasięg albo tempo ruchów. Badania morfologiczne mierzą zatem nie tylko wygląd, lecz również mechanikę i sposoby pobierania pokarmu. W terenie warto zapisywać obserwowane czynności oddzielnie od domyślnej diety, zwłaszcza gdy małe ofiary pozostają nierozpoznawalne. [117][116]
Rozdział 15Zmysły, uczenie się i komunikacja
Ptak nie odbiera świata jako pomniejszonej wersji ludzkiego obserwatora. Jego zmysły i zachowania wymagają osobnych testów.
Wiele ptaków dysponuje czterema typami czopków uczestniczących w widzeniu barw. Wrażliwość na krótkie fale różni się jednak między gatunkami, a znaczenie ma także to, jakie promieniowanie przepuszczają elementy oka. W literaturze rozróżnia się układy bardziej wrażliwe na ultrafiolet i na fiolet. Z tego powodu zdanie „wszystkie ptaki widzą UV tak samo” jest nieuzasadnione. Sama obecność określonego pigmentu wzrokowego nie opisuje jeszcze całego sposobu postrzegania sceny. [122]
Badanie Stoddard i współautorów z 2020 r. pokazało, że dzikie kolibry w testach z nagradzanymi karmnikami rozróżniały określone kombinacje bodźców świetlnych, w tym barwy niespektralne. To bezpośredni dowód zachowania w konkretnym zadaniu. Nie pozwala odtworzyć subiektywnego „wyglądu” świata kolibra na ludzkim monitorze. Ilustracja z fałszywymi kolorami może objaśniać różnice w odbiciu światła, ale powinna być podpisana jako wizualizacja danych, a nie dosłowna symulacja ptasiego widzenia. [123]
Mózg: rozmiar nie jest samodzielną miarą sprawności
Olkowicz i współautorzy wykazali u badanych papug i ptaków śpiewających dużą gęstość neuronów oraz znaczący udział neuronów w przednich częściach mózgu. Wynik pomaga wyjaśnić, jak niewielki objętościowo mózg może wspierać złożone zachowania. Nie jest jednak testem inteligencji wszystkich ptaków. Liczba komórek, ich organizacja, łączność i historia uczenia się opisują różne poziomy zagadnienia. Porównywanie gatunków wymaga również zadań odpowiednich do ich zmysłów i sposobu zdobywania pokarmu. [124]
Nowokaledońskie wrony Corvus moneduloides stanowią dobrze badany przykład używania narzędzi. W eksperymencie von Bayern i współautorów z 2018 r. ośmiu dziko schwytanym osobnikom przedstawiono nowe zadanie z elementami, które można było połączyć w dłuższe narzędzie. Wyniki dokumentują zdolności badanych ptaków w tej sytuacji, a nie poziom umiejętności każdego krukowatego. Określenia typu „inteligencja siedmiolatka” wymagają porównań między odmiennymi testami i łatwo nadają wynikom znaczenie, którego badanie nie sprawdzało. [121]
Jak powstaje śpiew?
Głównym narządem wytwarzania głosu jest u ptaków krtań dolna, czyli syrinx. U ptaków śpiewających jej dwie strony mogą być kontrolowane w sposób umożliwiający złożone efekty akustyczne. Równie ważne są oddech, sterowanie mięśniami i uczenie się. Rozwój śpiewu u wielu gatunków obejmuje słuchanie innych osobników i doskonalenie własnej wokalizacji, ale zakres oraz okres uczenia nie są identyczne w całej awifaunie. Nie każdy dźwięk jest śpiewem, a nie każdy jest wytwarzany przez narząd głosowy. [125]
Śpiew może uczestniczyć w obronie terytorium, kontaktach między partnerami i rywalizacji. Krótsze głosy kontaktowe, alarmowe lub żebranie piskląt pełnią inne zadania, choć granice między kategoriami zależą od przyjętej definicji. Terenowa interpretacja powinna uwzględniać kontekst: kto odpowiada, jak zmienia się zachowanie i w jakiej sytuacji dźwięk powstaje. Sam podobny rytm nie dowodzi jednakowej funkcji u odległych gatunków. Sygnał może też mieć więcej niż jednego odbiorcę. [125]
Samice także śpiewają
Odom i współautorzy z 2014 r. stwierdzili obecność śpiewu samic u 229 spośród 323 gatunków ptaków śpiewających, dla których uzyskano jednoznaczne informacje. To około 71% ocenionej próby. Dobór gatunków służył również odtwarzaniu historii ewolucyjnej cechy; nie była to losowa próba całej światowej awifauny. Poprawny wniosek brzmi, że śpiew samic jest szeroko rozpowszechniony i nie powinien być ignorowany. Niepoprawny: „71% wszystkich gatunków ptaków ma śpiewające samice”. [126]
Węch i słuch: dwa kolejne okna na środowisko
Pogląd, że ptaki prawie nie korzystają z węchu, nie odpowiada wynikom badań. Nevitt i współautorzy łączyli obserwacje żerowania albatrosów wędrownych z analizą przemieszczania względem wiatru. Uzyskane dane wspierają udział zapachów w poszukiwaniu pokarmu. Nad oceanem informacja chemiczna może docierać z obiektu niewidocznego bezpośrednio przed ptakiem. Nie oznacza to rezygnacji ze wzroku: różne zmysły mogą uzupełniać się na kolejnych etapach poszukiwania. Wniosek o zdolnościach węchowych albatrosa nie powinien jednak zmieniać się w identyczny opis wszystkich ptaków. [127]
Wskazówka zapachowa nie tworzy nieruchomej linii prowadzącej do pokarmu. Jest przenoszona i rozpraszana przez powietrze, a jej dostępność zależy od kierunku wiatru oraz turbulentnego przepływu. Dlatego znaczenie ma sposób przecinania obszaru poszukiwań i dalsze manewry po napotkaniu sygnału. Takie ujęcie pozwala zrozumieć, dlaczego sensoryka i mechanika lotu nie są odrębnymi tematami. Aby wykazać rolę węchu, potrzebne są pomiary i doświadczenia odróżniające korzystanie z zapachu od reakcji na widoczne skupienie innych ptaków. [127]
Płomykówki lokalizują źródła dźwięku między innymi na podstawie różnic czasu dotarcia i poziomu dźwięku między uszami. Znaczenie mają budowa okolicy twarzy, położenie uszu i obliczenia wykonywane w układzie nerwowym. Badanie Kettlera i współautorów pokazało, że łączenie różnych wskazówek pomaga rozstrzygać niejednoznaczne sygnały. Nie należy sprowadzać tego do hasła, że ptak „słyszy dokładny punkt zawsze i w każdych warunkach”. Zakres częstotliwości bodźca, tło i odbicia dźwięku wpływają na dostępność informacji. Nie wszystkie gatunki sów mają też identyczną budowę układu słuchowego. [128]
Porównując sprawność zmysłów, trzeba rozróżnić wykrycie bodźca, rozróżnienie dwóch bodźców i ich lokalizację. Ptak może reagować na bardzo słaby dźwięk, a mimo to mieć trudność ze wskazaniem jego położenia w określonym doświadczeniu. Podobnie rozróżnianie barw nie jest tym samym co ostrość wzroku. Ogólne hasło „ptaki widzą i słyszą lepiej od człowieka” zaciera te różnice. Profesjonalne porównanie nazywa zadanie, warunki i gatunek, po czym opisuje konkretny wynik. [122][128]
Rozdział 16Migracje i cykl roczny: podróż, która łączy siedliska
Wędrówka jest częścią całego cyklu życia. Lęgowisko, postoje i obszar pozalęgowy tworzą zależny od siebie układ.
Migracja nie jest po prostu ucieczką przed chłodem. Sezonowe przemieszczanie umożliwia korzystanie ze zmieniającej się dostępności zasobów i warunków rozmnażania. Gatunki mogą odbywać dalekie lub krótkie wędrówki, przesuwać się w górach albo wykazywać migrację częściową, gdy tylko część populacji zmienia obszar pobytu. Ten sam gatunek może łączyć osiadłe i wędrowne populacje. Dlatego etykieta „ptak wędrowny” wymaga doprecyzowania regionu i skali. [129]
Cykl roczny obejmuje więcej niż wiosenny przylot i jesienny odlot: przygotowanie do lęgu, rozród, pierzenie, gromadzenie zasobów, migrację i okres pozalęgowy. Poszczególne procesy mogą częściowo się nakładać. Schemat koła czterech pór roku jest użyteczny dla wybranej populacji strefy umiarkowanej, ale nie jest uniwersalnym kalendarzem wszystkich ptaków. W tropikach duże znaczenie może mieć sezonowość opadów, a u gatunków morskich rozmieszczenie zasobów zmienia się także wraz z warunkami oceanograficznymi. [129][103]
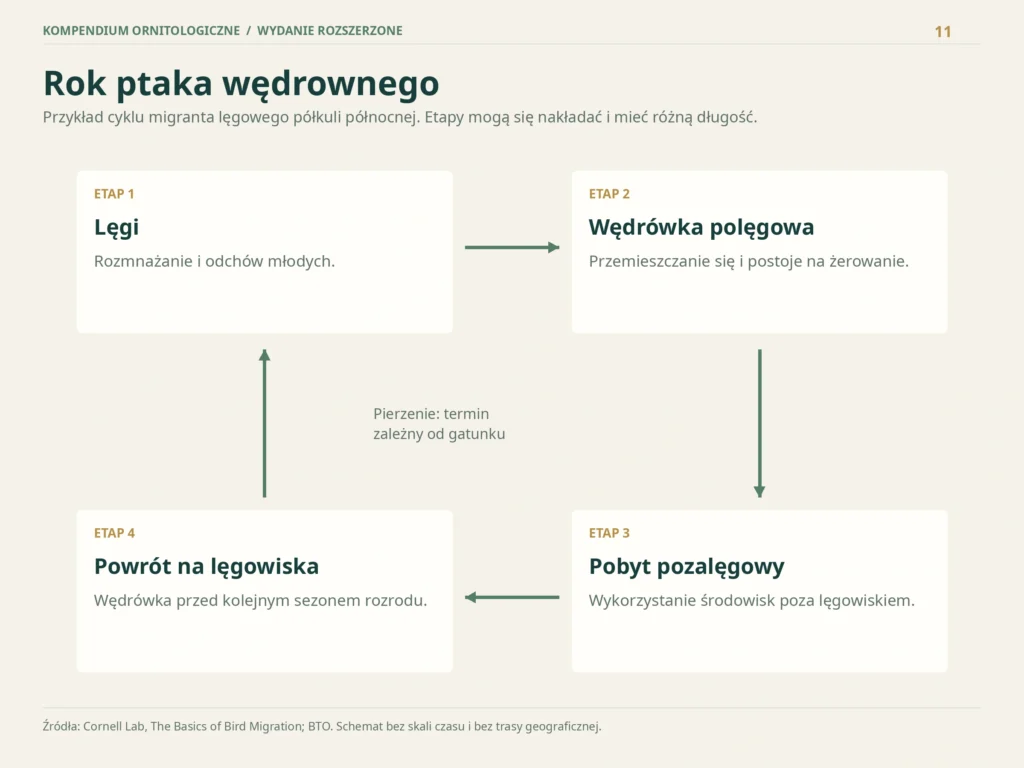
Postój jest częścią strategii
Podczas postoju ptak może uzupełniać zapasy, odpoczywać i czekać na odpowiednie warunki. O wartości miejsca decydują jakość i dostępność pokarmu, osłona, ryzyko drapieżnictwa oraz jego położenie względem kolejnego etapu. Długi przystanek nie musi świadczyć o złej kondycji, a szybki odlot nie zawsze o dobrej. Sama obecność dużej liczby migrantów nie informuje, czy miejsce jest wystarczająco zasobne: może być niezbędnym wąskim gardłem, w którym ptaki się koncentrują. [130]
Tłuszcz dostarcza paliwa migracyjnego, ale zwiększa masę w locie. Kondycję ocenia się względem strategii i etapu wędrówki. Wiatr zmienia koszt podróży, więc najkrótsza trasa nie musi być energetycznie najkorzystniejsza. [103]
Orientacja, mapa i kompas
Orientacja oznacza wybór kierunku, a nawigacja obejmuje także ustalanie położenia względem celu. Ptaki wykorzystują różne informacje: położenie Słońca, układ gwiazd, pole magnetyczne i cechy otoczenia. Udział poszczególnych wskazówek zależy od gatunku, wieku i sytuacji. Wiele pierwszorocznych migrantów nie odbywa całej podróży pod bezpośrednim przewodnictwem rodziców. Nie znaczy to jednak, że doświadczenie jest zbędne; wraz z kolejnymi podróżami mogą zmieniać się trasy i dokładność docierania do znanych miejsc. [131]
Badanie Xu i współautorów z 2021 r. wykazało magnetyczną wrażliwość fotochemii kryptochromu 4 rudzika w warunkach laboratoryjnych in vitro. Wynik wspiera mechanistyczne hipotezy o ptasim kompasie. Nie przedstawia jednak kompletnego łańcucha od pola magnetycznego, przez reakcje białka i układ nerwowy, do decyzji na trasie. Profesjonalna popularyzacja zachowuje tę różnicę: zidentyfikowanie obiecującego mechanizmu molekularnego nie jest równoznaczne z pełnym wyjaśnieniem nawigacji. [132]
Jak interpretować niezwykłe dystanse?
Egevang i współautorzy opisali w 2010 r. trasy rybitw popielatych Sterna paradisaea z Grenlandii i Islandii. W projekcie uzyskano dane z 11 ptaków; dziesięć rejestratorów dostarczyło pełnego rocznego zapisu, a jeden danych z sześciu miesięcy. Autorzy podali średni dystans rocznej wędrówki 70 900 km, z zakresem 59 500–81 600 km. Trasy obejmowały kolejne etapy i ruchy w obszarze pozalęgowym; nie chodziło o pojedynczy lot bez odpoczynku. To historyczny wynik badania, a nie aktualizowany ranking światowych rekordów. [133]
Tabela 15. Trzy badania podróży i życia w powietrzu: czego liczba nie oznacza
| Badanie | Wynik podany przez autorów | Ograniczenie interpretacji |
|---|---|---|
| Rybitwa popielata; 2010 | Średnio 70 900 km rocznej wędrówki; zakres 59 500–81 600 km | Dane z 11 ptaków, w tym jeden zapis półroczny; suma etapów i ruchów, nie jeden lot. |
| Jerzyk; 2016 | Ponad 99% czasu dziesięciomiesięcznego okresu pozalęgowego w powietrzu | Dotyczy monitorowanych osobników; nie całego życia wszystkich jerzyków. |
| Fregata; 2016 | Średnio 0,69 godziny snu na dobę w locie | EEG w badanych lotach; nie uniwersalne zapotrzebowanie ptaków na sen. |
Wyniki nie są bezpośrednio porównywalnymi miarami wytrzymałości. [133][105][106]

Ochrona migrantów musi obejmować wszystkie istotne etapy podróży. Dobre warunki na lęgowisku nie zrekompensują automatycznie utraty kluczowego postoju. Z kolei pojedyncza obserwacja ptaka w miejscu zimowania nie mówi, skąd pochodzi ani którędy przyleciał. Do ustalenia połączeń między populacjami potrzebne są znakowanie, śledzenie lub inne odpowiednio zweryfikowane metody. Mapa z szeroką strzałką przedstawia orientacyjny kierunek, dopóki nie wskazano populacji, źródła i sposobu wyznaczenia trasy. [129][133]
Rozdział 17Rozród, gniazda i rozwój młodych
Gniazdo, para i pisklę są etapami złożonego procesu. Ich znaczenie zależy od strategii gatunku.
Gniazdo służy przede wszystkim rozrodowi, ale jego forma bywa skrajnie różna: od niewielkiego zagłębienia lub półki po misterną konstrukcję i wnętrze dziupli. Nie wszystkie ptaki budują gniazda w potocznym znaczeniu, a obecność dorosłego przy konstrukcji nie zawsze oznacza aktywny lęg. Żeby ocenić etap rozrodu, trzeba odróżnić wybór miejsca, budowę, składanie jaj, wysiadywanie, opiekę nad pisklętami i opiekę po opuszczeniu gniazda. [135]
Wysiadywanie obejmuje utrzymywanie warunków potrzebnych do rozwoju zarodka. U wielu gatunków odsłonięta, ukrwiona powierzchnia skóry na spodzie ciała ułatwia przekazywanie ciepła. Ptaki mogą zmieniać czas przebywania na jajach i przerw w odpowiedzi na warunki. Nie zawsze zaczynają intensywne wysiadywanie dopiero po skompletowaniu zniesienia. Różny moment rozpoczęcia może prowadzić do równoczesnego albo rozłożonego w czasie wykluwania, z konsekwencjami dla konkurencji między młodymi. [136]
Gniazdowniki i zagniazdowniki to dwa końce spektrum
U gniazdowników świeżo wyklute młode są słabo rozwinięte ruchowo i zależne od opieki w gnieździe. Zagniazdowniki zwykle mają bardziej rozwinięte zmysły i ruchy, a wiele z nich opuszcza miejsce wyklucia bardzo szybko. Nie oznacza to jednak pełnej samodzielności: mogą wymagać ogrzewania, ochrony, prowadzenia, a u części grup również dostarczania pokarmu. Między skrajnościami istnieją formy pośrednie. Prosty podział nie wyczerpuje rzeczywistej różnorodności rozwoju. [137][135]
Tabela 16. Etapy rozwoju, których nie należy utożsamiać
| Etap lub termin | Co rzeczywiście opisuje | Czego sam w sobie nie dowodzi |
|---|---|---|
| Wyklucie | Opuszczenie osłon jaja | Zdolności do samodzielnego ogrzewania lub zdobywania pokarmu. |
| Opuszczenie gniazda | Zmianę miejsca przebywania młodego | Pełnej sprawności lotu i niezależności od rodziców. |
| Uzyskanie zdolności lotu | Osiągnięcie odpowiedniej sprawności skrzydeł i zachowania | Dojrzałości płciowej. |
| Samodzielność pokarmowa | Brak konieczności stałego dostarczania pokarmu przez opiekunów | Końca uczenia się ani końca wszystkich więzi rodzinnych. |
Zestawienie porządkuje obserwowane etapy; ich kolejność i czas zależą od gatunku. [137][135]
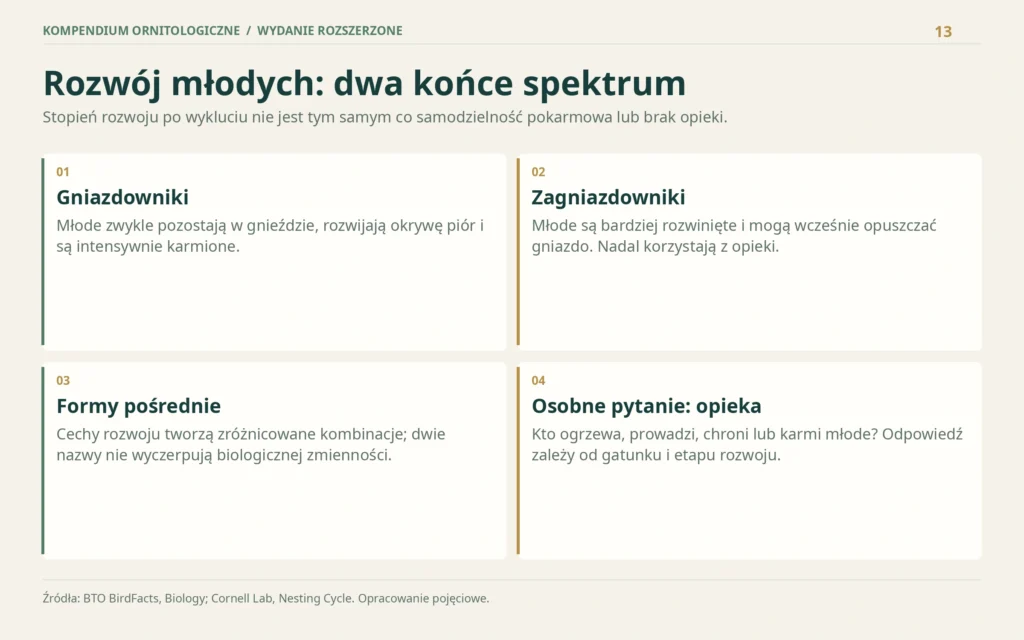
Para społeczna nie zawsze oznacza wyłączne rodzicielstwo genetyczne
Monogamia społeczna opisuje związek partnerów współdziałających przy rozrodzie lub zajmujących terytorium. Monogamia genetyczna oznacza, że potomstwo ma tych właśnie rodziców. Badania DNA wykazały, że kategorie te nie muszą się pokrywać. Można więc obserwować parę wspólnie karmiącą młode, a jednocześnie stwierdzić w lęgu potomstwo spoza tej pary. Nie należy tłumaczyć różnic moralnymi pojęciami ludzkiej „wierności”; biologiczny opis dotyczy zachowania, pokrewieństwa i wyników rozrodu. [138]
W części gatunków opieka wykracza poza dwoje rodziców. U dzięciura żołędziowego Melanerpes formicivorus występują grupy z pomocnikami oraz złożone konfiguracje osobników rozmnażających się. Młodsze ptaki mogą uczestniczyć w wychowie kolejnego potomstwa. To przykład rozrodu kooperatywnego, ale nie wzorzec dla wszystkich dzięciołów. Równie istotna jak etykieta systemu jest zmienność między populacjami i latami: dostęp do miejsc lęgowych oraz zasobów może wpływać na skład grupy. [139]
Pasożytnictwo lęgowe i wyścig adaptacji
Pasożyty lęgowe składają jaja w gniazdach gospodarzy, przenosząc część lub całość kosztów opieki na inne osobniki. W niektórych systemach presja selekcyjna sprzyja podobieństwu jaj pasożyta do jaj gospodarza, a po drugiej stronie — skuteczniejszemu rozpoznawaniu obcych jaj. Rozpoznanie nie jest jednak bezbłędne: odrzucenie własnego jaja także kosztuje. Skuteczność obrony zależy od informacji wzrokowej, doświadczenia i historii współistnienia. Nie każdy gatunek kukułki jest obligatoryjnym pasożytem lęgowym. [140]
Ocena sukcesu lęgowego wymaga wybrania miary. Liczba złożonych jaj, liczba wyklutych młodych i liczba podlotów opuszczających gniazdo nie są równoważne. Również opuszczenie gniazda nie zapewnia przeżycia do następnego sezonu. Dlatego badanie skuteczności budek lub zmian siedliska powinno obejmować określony etap, wiele lęgów i porównywalne warunki. Jedno efektowne zdjęcie licznego lęgu nie jest dowodem, że lokalna populacja rośnie; dokumentuje tylko konkretny moment. [137]
Podział obowiązków rodzicielskich nie musi być równy, aby opieka obojga partnerów była ważna. Jedno z rodziców może więcej wysiadywać, drugie intensywniej dostarczać pokarm; proporcje mogą zmieniać się wraz z etapem rozrodu. Pomocnicy także nie są automatycznie „trzecim rodzicem” w znaczeniu genetycznym. Obserwacja karmienia, rozpoznanie osobnika i analiza pokrewieństwa odpowiadają na odmienne pytania. To rozróżnienie ma znaczenie przy interpretacji kamer gniazdowych: atrakcyjny zapis zachowania nie daje sam w sobie pełnej wiedzy o strukturze społecznej rodziny. [138][139]
Rozdział 18Życie społeczne: stada, kolonie, terytoria i współpraca
Podobny widok wielu ptaków może oznaczać odmienne relacje. Liczą się funkcja grupy, sezon i pozycja osobnika.
Określenie „ptak społeczny” staje się użyteczne dopiero po doprecyzowaniu, o jakim zachowaniu mowa. Wspólne żerowanie, nocowanie i wychowywanie młodych są różnymi formami współdziałania lub tolerowania sąsiadów. U Aphelocoma coerulescens grupę rodzinną tworzą rozmnażająca się para i pomocnicy, zwykle jej wcześniejsze potomstwo. Taki układ ma inną organizację niż przypadkowe spotkanie kilku osobników przy zasobie pokarmowym. Sama bliskość przestrzenna nie dowodzi współpracy, pokrewieństwa ani trwałego związku. [141]
Tabela 17. Cztery sytuacje społeczne, których nie należy utożsamiać
| Sytuacja | Co organizuje grupę | Czego sam widok nie rozstrzyga |
|---|---|---|
| Stado przemieszczające się lub żerujące | Wspólna aktywność i reakcje na sąsiadów | Czy grupa ma stały skład i czy wszystkie osobniki odnoszą jednakową korzyść. |
| Kolonia lęgowa | Sąsiedztwo miejsc rozrodu | Czy ptaki karmią cudze młode albo wspólnie zdobywają pokarm. |
| Wspólne noclegowisko | Korzystanie z miejsca odpoczynku | Czy te same osobniki spotykają się również podczas dziennego żerowania. |
| Rodzina z pomocnikami | Udział dodatkowych osobników w opiece | Czy pomoc zwiększa liczbę podlotów, czy przede wszystkim odciąża rodziców. |
Synteza pojęć na podstawie badań stad, kolonii, noclegowisk i rodzin. [142][143][144][145]
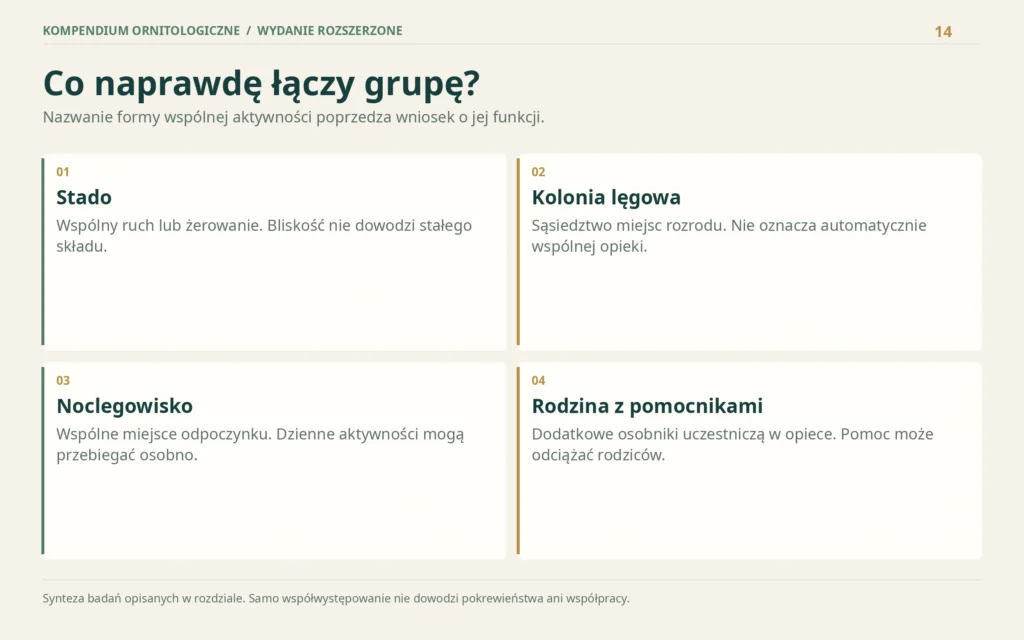
Koordynacja bez centralnego dyrygenta
Ballerini i współautorzy odtworzyli trójwymiarowe pozycje szpaków w dużych stadach i opisali relacje między sąsiadami. W analizowanych zbiorowiskach oddziaływanie odpowiadało przeciętnie sześciu–siedmiu najbliższym sąsiadom, a nie wszystkim ptakom znajdującym się w jednym stałym promieniu. „Najbliższy” oznacza tu kolejność sąsiadów, nie konkretną odległość w metrach. Wynik pomaga wyjaśnić utrzymanie spójności, gdy zagęszczenie stada się zmienia. Nie jest dowodem, że każdy szpak świadomie liczy do siedmiu ani że tę samą regułę stosuje każdy gatunek. Obraz stada można badać jako rezultat lokalnych reakcji, bez zakładania centralnego kierowania wszystkimi ruchami. [142]
W praktyce obserwacji warto osobno zapisać kierunek ruchu, rozstawienie ptaków i chwilę pojawienia się bodźca. Zdanie „całe stado skręciło równocześnie” może opisywać wrażenie człowieka, którego oko nie rozdziela krótkich opóźnień. Film również wymaga oceny liczby klatek, perspektywy i zasłaniania się osobników. To przykład różnicy między trafnym opisem wizualnym a wnioskiem o mechanizmie. W notatce można zachować oba poziomy: najpierw to, co widoczne, następnie pytanie, jakie pomiary byłyby potrzebne do sprawdzenia interpretacji.
Bezpieczeństwo grupy nie rozkłada się równo
Badania zimujących krwawodziobów Tringa totanus w szkockim estuarium wskazywały mniejsze indywidualne ryzyko drapieżnictwa w większych stadach. Rozróżniano przy tym rozcieńczenie ryzyka między potencjalne ofiary, skuteczniejsze wykrywanie zagrożenia oraz prawdopodobny efekt utrudniania drapieżnikowi wyboru celu. Są to odrębne mechanizmy: nawet jeżeli ataków na całą grupę jest więcej, ryzyko przypadające na jednego ptaka może być mniejsze. Taki rezultat dotyczy jednak konkretnego układu ofiar, drapieżników i siedliska, nie gwarancji bezpieczeństwa każdej dużej grupy. [147]
Kolejne badanie naturalnych ataków krogulców na krwawodzioby pokazało znaczenie odstępów między osobnikami. Ptaki szerzej oddalone od sąsiadów były częściej wybierane jako cel. Dlatego „ryzyko dla stada” i „ryzyko dla konkretnego osobnika w stadzie” nie są tym samym. Zagęszczenie, pozycja i zachowanie mogą zmieniać bilans korzyści. Z samej liczby ptaków nie da się wyliczyć indywidualnego prawdopodobieństwa ataku; potrzebna jest informacja o przestrzennej organizacji grupy. [148]
Kolonia: dostęp do informacji i koszt bliskości
W koloniach Petrochelidon pyrrhonota w Nebrasce badano pasożyty gniazdowe, łącząc obserwacje z eksperymentalnym ograniczaniem ich liczebności w części gniazd. Większe kolonie miały więcej pasożytujących pluskwiaków na gniazdo, a doświadczenie ujawniło ich negatywny wpływ na masę i przeżywanie piskląt w dużych koloniach. Poszczególne grupy pasożytów nie dawały identycznego wyniku. Przykład pokazuje, dlaczego samo porównanie liczby sąsiadów z kondycją młodych nie wyjaśnia jeszcze przyczyny: trzeba ustalić, jaki czynnik pośredniczy w zależności. Opis eksperymentu nie jest instrukcją samodzielnego stosowania środków chemicznych przy gniazdach. [146]
Długoterminowe badania tego samego gatunku opublikowane w 2024 r. wykazały, że zachowanie społeczne nie musi pozostawać stałe przez dziesięciolecia. W porównaniu z latami osiemdziesiątymi ptaki w latach 2016–2022 częściej żerowały pojedynczo lub w mniejszych grupach, a przekazywanie informacji o pokarmie w kolonii miało mniejsze znaczenie. Autorzy nie rozstrzygnęli ostatecznie przyczyn tej zmiany. Nie należy więc dopisywać jednej pewnej przyczyny, na przykład konkretnego pestycydu. Badanie dostarcza dowodu elastyczności zachowania i zmienności korzyści z życia kolonijnego w badanej populacji. [143]
Noclegowisko może być także schronieniem termicznym
Wspólne konstrukcje gniazdowe Philetairus socius w Kalahari są wykorzystywane przez cały rok. Pomiary opublikowane przez Lowneya i współautorów w 2020 r. pokazały łagodzenie skrajnych temperatur: wnętrza komór chroniły zarówno przed upałem, jak i chłodem. Znaczenie miało położenie komory oraz długość jej tunelu wejściowego; środkowe i głębsze komory zapewniały lepszą izolację. Zatem liczba ptaków nie jest jedynym wyjaśnieniem warunków noclegu. Właściwości samej konstrukcji stanowią część środowiska, które ptaki wytwarzają i utrzymują. Nie przenosi się tego wyniku bezpośrednio na otwarte noclegowisko innego gatunku. [144]
Pomoc może odciążać rodzica, a nie zwiększać liczbę młodych
W badaniu 111 grup rodzinnych Aphelocoma coerulescens w Ocala National Forest użyto monitoringu gniazd i kamer. W grupach z pomocnikami samice rozmnażające się karmiły pisklęta z około połową częstości stwierdzonej u samic bez pomocników. Jednocześnie nie wykryto wpływu pomocników na masę piskląt, przeżywanie gniazd ani produktywność. Autorzy wskazali efekt odciążenia samic; jego konsekwencje dla ich późniejszego przeżycia i rozrodu wymagały dalszych badań. Wniosek „pomocnicy są zbędni, bo podlotów nie było więcej” pomijałby więc wynik dotyczący wysiłku rodzicielskiego. [145]
Tabela 18. Jak rozdzielić korzyść, koszt i potrzebny dowód
| Pytanie | Właściwa miara | Ostrożny sposób interpretacji |
|---|---|---|
| Czy grupa ogranicza drapieżnictwo? | Ataki i straty w przeliczeniu na osobnika, pozycja w stadzie | Mniejsza liczba ataków na grupę nie jest jedyną możliwą korzyścią. |
| Czy pomocnicy poprawiają rozród? | Karmienia rodziców i pomocników oraz los młodych | Brak większej liczby podlotów nie wyklucza odciążenia rodziców. |
| Czy kolonia poprawia warunki noclegu? | Temperatura w komorze i na zewnątrz, cechy komory | Nie utożsamiać budowy schronienia z samą obecnością wielu ptaków. |
| Czy duża kolonia zwiększa koszt pasożytów? | Obciążenie pasożytami i reakcja na kontrolowaną zmianę | Rozróżniać grupy pasożytów i lokalne warunki doświadczenia. |
Synteza pytań badawczych; nie zestawienie uniwersalnych efektów. [147][148][146][144][145]
Organizacja społeczna może zmieniać się także w obrębie roku. Natural History Museum opisuje u rudzika terytoria utrzymywane latem przez pary, a zimą osobno przez samce i samice. Obserwacja samotnego ptaka nie oznacza zatem „braku życia społecznego”: obrona przestrzeni także jest relacją z innymi osobnikami. Trafny opis powinien wskazywać sezon i funkcję zachowania, zamiast przypisywać całemu gatunkowi jedną niezmienną etykietę. [149]
Rozdział 19Historie życiowe: rozród, przeżywanie i wymiana pokoleń
Liczba jaj opisuje jeden etap. Pełny obraz powstaje dopiero po połączeniu rozrodu, wieku, przeżywania i wejścia młodych do populacji lęgowej.
Historia życiowa to rozłożenie wzrostu, dojrzewania, rozrodu i przeżywania w czasie. Porównując gatunki, warto pytać, kiedy osobnik może rozpocząć rozród, ile inwestuje w pojedynczą próbę oraz ile kolejnych okazji może mieć przed sobą. Zasoby wykorzystane w jednej funkcji nie są równocześnie dostępne dla wszystkich pozostałych. Tak rozumiany kompromis nie oznacza świadomego planu ptaka. Jest ramą do badania zależności między cechami i ich konsekwencjami dla pozostawienia potomstwa. [150]
Trzy konkretne przykłady zamiast jednej reguły dla wszystkich ptaków
Tabela 19. Parametry typowe wybranych gatunków według BTO BirdFacts
| Gatunek | Jaja w zniesieniu | Lęgi w sezonie | Typowy wiek rozpoczęcia rozrodu |
|---|---|---|---|
| Modraszka — Cyanistes caeruleus | 8–10 | 1; wyjątkowo 2 | 1 rok |
| Kos — Turdus merula | 3–4 | 2–3; wyjątkowo 5 | 1 rok |
| Burzyk północny — Puffinus puffinus | 1 | 1 | 5 lat |
Parametry typowe z zestawień BTO, odczyt 11.11.2026; wartości w rubryce lęgów obejmują typowe i podane przez źródło wyjątkowe liczby, z pominięciem lęgów zastępczych po niepowodzeniu. Nie są to pomiary polskich populacji w 2026 r. [151][152][153] Liczba lęgów nie obejmuje lęgów zastępczych po utracie wcześniejszego lęgu. [137]
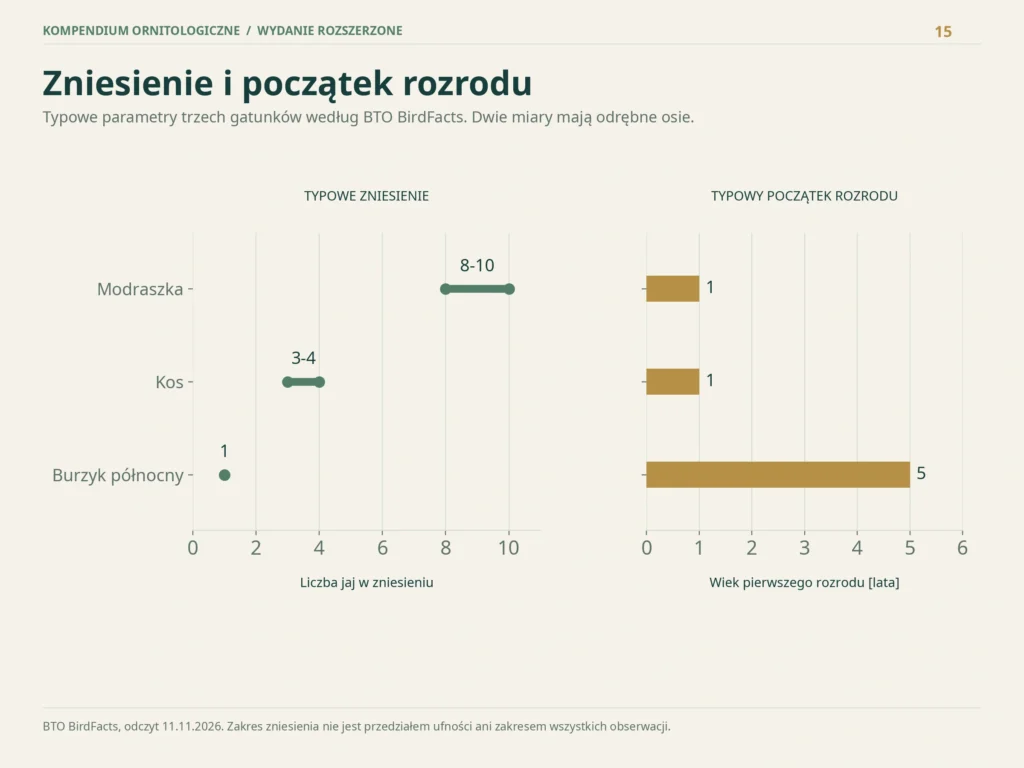
Tabela jest narzędziem porównania, nie kalkulatorem liczby młodych. U modraszki typowe zniesienie jest liczniejsze niż u kosa, ale kos może podejmować więcej lęgów w sezonie. Żadna z tych informacji sama nie daje liczby potomstwa dożywającego własnego rozrodu. Wartości typowe nie stanowią też granic fizjologicznie możliwych: źródło podaje osobno zakresy obserwowane i wartości wyjątkowe. Przepisując dane, trzeba zachować tę różnicę. Zestawienie „maksymalna liczba jaj × maksymalna liczba lęgów” nie opisuje przeciętnej samicy ani typowego roku. [151][152]
Burzyk północny ilustruje inną kombinację cech: pojedyncze jajo, późniejszy początek rozrodu i długi okres opieki. BTO podaje typowo 47–55 dni wysiadywania oraz 62–76 dni do opuszczenia gniazda. Nie wynika z tego, że każde złożone jajo stanie się samodzielnym młodym ani że wszystkie ptaki morskie mają identyczny cykl. Są to cechy konkretnego gatunku w przytoczonym zestawieniu. W analizie ochronnej ważne będzie również przeżywanie dorosłych, które mogą uczestniczyć w wielu kolejnych sezonach. [153]
Kompromis wykazuje się badaniem, a nie samym hasłem
W analizie porównawczej 123 północnoamerykańskich gatunków wróblowych i dzięciołowych Thomas Martin badał związki rozrodu i przeżywania z miejscem gniazdowania, drapieżnictwem i sposobem żerowania. Roczna płodność była odwrotnie związana z przeżywalnością dorosłych, a cechy lęgowe wyraźnie różniły się między typami miejsc gniazdowania. Nie była to próba całej awifauny świata. Wynik pokazuje, że wyjaśnianie rozrodu jedynie ilością pokarmu może pomijać inne składniki ekologii; nie ustanawia jednej zależności liczbowej dla każdego ptaka. [154]
Samo współwystępowanie wysokiej produktywności i wysokiego przeżywania nie obala możliwości kosztu rozrodu. Osobniki mogą różnić się jakością miejsca, doświadczeniem albo dostępem do zasobów. Dobre warunki mogą pozwalać jednocześnie wykarmić więcej młodych i lepiej przeżyć następny sezon. Dlatego trzeba odróżniać porównywanie różnych osobników od zmiany obciążenia u porównywalnych osobników. To logiczna różnica między obserwacją cech a testem skutków zwiększonego wysiłku.
Daan i współautorzy analizowali terminy śmierci 63 pustułek, które wcześniej wychowywały eksperymentalnie zmienioną liczbę piskląt i następnie zostały znalezione świeżo martwe. Wyniki wskazywały, że koszt dodatkowego wysiłku mógł ujawniać się dopiero w kolejnej zimie. Ten dobór danych pozwalał sprawdzać rozkład terminów śmierci i interpretację wcześniejszych wyników lokalnego przeżywania. Nie należy przedstawiać tej próby jako reprezentatywnego spisu losów wszystkich pustułek. Ogólna lekcja dotyczy opóźnionych następstw: zakończenie karmienia młodych nie musi kończyć okresu, w którym mierzy się koszt rozrodu. [155]
Długowieczność, przeżywalność i długość pokolenia
Nazwy tych miar brzmią podobnie, ale odpowiadają na inne pytania. W kartach BTO „typowa długość życia” jest warunkowana osiągnięciem wieku lęgowego. Przykładowo karta modraszki podaje trzy lata przy typowym początku rozrodu w wieku jednego roku. Nie oznacza to, że każde wyklute pisklę ma przed sobą trzy lata ani że większość osobników dożyje rekordu obrączkarskiego. Warunek wejścia do grupy, dla której podano wartość, jest częścią definicji, a nie drobnym przypisem. [151]
Długość pokolenia opisuje z kolei przeciętny wiek rodziców wytwarzających nowe pokolenie; nie jest po prostu wiekiem pierwszego lęgu. Bird i współautorzy opracowali w 2020 r. oszacowania dla ptaków, łącząc informacje o początku rozrodu, długowieczności i przeżywalności dorosłych. Braki danych uzupełniali modelowo. Takie wartości są użyteczne w ocenie tempa zmian populacji, lecz nie należy nazywać ich pełnym zbiorem bezpośrednich pomiarów terenowych. Długie pokolenie sprawia również, że ten sam okres kalendarzowy obejmuje mniej wymian pokoleń niż u gatunku o krótszej długości pokolenia. [156]
Tabela 20. Miary historii życiowej i granice ich użycia
| Miara | Jakie pytanie zadaje? | Czego nie zastępuje? |
|---|---|---|
| Wielkość zniesienia | Ile jaj obejmuje określona próba lęgowa? | Liczby podlotów ani potomstwa, które przystąpi do rozrodu. |
| Produktywność | Ile młodych przypada na wybraną jednostkę: próbę, parę lub sezon? | Przeżywalności po opuszczeniu gniazda. |
| Przeżywalność w przedziale czasu | Jaka część osobników przeżywa określony etap lub okres? | Rekordu wieku ani prawdopodobieństwa ponownego zobaczenia ptaka. |
| Rekrutacja do populacji lęgowej | Które młode lub przybyłe osobniki po raz pierwszy dołączają do lęgowych? | Samego wyklucia albo samego pojawienia się na stanowisku. |
| Długość pokolenia | Jaki jest przeciętny wiek rodziców nowej kohorty? | Wieku pierwszego lęgu i maksymalnej długowieczności. |
Definicje uporządkowane redakcyjnie na podstawie terminologii demograficznej i badań historii życiowych. Jednostkę produktywności oraz zakres rekrutacji trzeba wskazać w każdym badaniu. [150][157][156]
Starzeją się osobniki; zmienia się też skład populacji
Bouwhuis i współautorzy wykorzystali 49 lat danych o rozrodzie bogatek z Wytham. Rozdzielali pogarszanie wyników rozrodu z wiekiem osobnika od selektywnego znikania z próby ptaków o odmiennych cechach. Te procesy mogą dawać inny obraz w przekroju populacji niż w historii pojedynczej samicy. Starsza grupa może składać się z osobników, które już przeszły silną selekcję przeżycia. Dlatego prosty wykres „wynik rozrodu względem wieku” wymaga informacji, czy śledzono te same ptaki, jak traktowano ostatni lęg i czym mierzono sukces. Liczba młodych później rekrutujących do populacji jest bardziej odległym etapem niż liczba jaj w gnieździe. [157]
Dla oceny populacji najbardziej użyteczny jest zestaw miar połączonych wspólnym zakresem. Gdy liczba podlotów rośnie, a liczba par nie zmienia się, należy sprawdzić kolejne etapy: przeżywanie młodych, przemieszczanie się, wejście do lęgowej części populacji i dostępność miejsc. Można też zapytać, czy badanie objęło odpowiednio długi czas. Jest to plan dalszej diagnozy, nie gotowe wyjaśnienie wyniku. Profesjonalne opracowanie pozostawia miejsce na brakującą informację zamiast automatycznie dopisywać drapieżnika, chorobę lub niedobór pokarmu.
Rozdział 20Ptaki w ekosystemach: funkcje, korzyści i granice uogólnień
Znaczenie ptaków wynika z ich relacji z innymi organizmami. Sama lista gatunków nie opisuje wszystkich tych zależności.
Ptaki są konsumentami, ofiarami, rozsiewaczami nasion, zapylaczami i twórcami miejsc wykorzystywanych przez inne organizmy. Funkcja ekologiczna oznacza ich udział w procesie zachodzącym w ekosystemie. Usługa ekosystemowa opisuje korzyść tego procesu dla ludzi. Rozróżnienie jest potrzebne: zjadanie owadów może wpływać na sieć troficzną, lecz o ograniczaniu strat w uprawie można mówić dopiero po wykazaniu związku z rzeczywistymi szkodami. Samo liczenie ptaków nie zastępuje pomiaru efektu. [158]
Ile bezkręgowców zjadają ptaki?
Nyffeler, Şekercioğlu i Whelan oszacowali w 2018 r., że ptaki owadożerne na świecie konsumują rocznie około 400–500 mln ton biomasy ofiar. Synteza opierała się na 103 oszacowaniach konsumpcji, częściowo wyliczonych z zapotrzebowania energetycznego, oraz ekstrapolacji obejmującej siedem biomów. W tej kategorii uwzględniano nie tylko owady, lecz także inne stawonogi, w tym pająki. Autorzy wskazywali, że rzeczywista wartość prawdopodobnie leży bliżej dolnego końca przedziału. To modelowy szacunek wielkoskalowy, a nie bezpośrednie ważenie wszystkich zjedzonych zwierząt. [134]
Nie należy utożsamiać tej biomasy z masą szkodników rolniczych ani wyliczać z niej automatycznie wartości oszczędzonych pestycydów. Ptaki jedzą także bezkręgowce nieszkodliwe dla upraw i naturalnych wrogów innych organizmów. Efekt końcowy zależy od sieci zależności, fazy sezonu i sposobu gospodarowania. Światowe oszacowanie pokazuje skalę przepływu materii przez jedną grupę konsumentów; nie rozstrzyga bilansu konkretnego pola, sadu czy lasu. [134][158]
Rozsiewanie nasion i odnowienie roślinności
Ptak zjadający owoc może przemieścić nasiono z miejsca, w którym powstało, do innego fragmentu siedliska. Liczy się nie tylko odległość, lecz także to, czy nasiono przeżyje obróbkę i trafi do miejsca sprzyjającego kiełkowaniu. Badanie Rogers i współautorów na Guam oraz trzech pobliskich wyspach wykazało skutki utraty ptaków dla rozsiewania i odnawiania dwóch badanych gatunków drzew. To mocny przykład powiązania zaniku zwierząt z procesami roślinnymi, ale nie gotowy procent strat dla wszystkich tropikalnych lasów. [159]
Różne gatunki ptaków mogą częściowo zastępować się w jednej funkcji, a różnić się w innej. Dwa gatunki połykające te same owoce mogą przenosić nasiona w inne miejsca lub na inne odległości. Podobnie wykucie dziupli tworzy zasób, którego nie zastąpi samo zwiększenie liczby ptaków niewykuwających dziupli. Dlatego różnorodność funkcjonalna i dostępność odpowiednich struktur siedliska uzupełniają informację o liczbie gatunków. Przegląd neotropikalny Michel i współautorów pokazuje szeroki zakres takich relacji i luki w ich pomiarze. [160]
Padlinożercy i obieg materii
Sępy i inne padlinożerne ptaki usuwają część martwej materii zwierzęcej, ale skutki ich obecności zależą od środowiska i pozostałych konsumentów. Hill i współautorzy eksperymentalnie ograniczali dostęp sępników do padliny, sprawdzając reakcję fakultatywnych padlinożerców. Tego rodzaju badanie pozwala testować, czy inne zwierzęta przejmą utraconą funkcję. Nie uzasadnia jednak twierdzenia, że każdy spadek liczby sępów zawsze prowadzi do takiego samego wzrostu chorób u ludzi. Do takiego wniosku potrzebny jest oddzielny łańcuch danych. [161]
Tabela 21. Od funkcji ekologicznej do mierzalnego efektu
| Proces | Co można mierzyć | Czego nie zastępuje sama obecność ptaka |
|---|---|---|
| Zjadanie bezkręgowców | Tempo konsumpcji, uszkodzenia roślin, wynik doświadczeń wykluczających | Bilansu korzyści i kosztów dla danej uprawy. |
| Rozsiewanie nasion | Liczbę, odległość i miejsce depozycji; przeżycie siewek | Pomiaru skutecznego odnowienia lasu. |
| Usuwanie padliny | Czas znikania i udział różnych konsumentów | Badania częstości zachorowań. |
| Tworzenie dziupli | Liczbę i trwałość dziupli oraz ich późniejsze wykorzystanie | Oceny wszystkich potrzeb organizmów zależnych od drzew. |
Tabela przedstawia ramy oceny, nie uniwersalne wartości liczbowe. [160][159][161][158]
Wartość ochrony ptaków nie kończy się na usługach wycenianych w pieniądzu. W badaniu przyrodniczym trzeba jednak precyzyjnie rozdzielać wartość etyczną, kulturową, ekologiczną i ekonomiczną. Można jednocześnie doceniać gatunek, dokumentować szkody w określonym miejscu oraz szukać sposobu ograniczania konfliktu. Profesjonalny artykuł nie powinien zastępować złożonego bilansu prostym podziałem na ptaki „pożyteczne” i „szkodliwe”; role zależą od skali oraz pytania badawczego. [160][158]
Część IIIWystępowanie i obserwacja
Rozdział 21Dlaczego ptaki świata są rozmieszczone nierównomiernie?
Bogactwo gatunków, endemizm, zasięg i sezonowość opisują różne własności awifauny.
Wiedza o liczbie gatunków na świecie jest punktem wyjścia, ale nie mówi jeszcze, jak różnorodność jest rozmieszczona. Lista z niewielkiej wyspy, pasma górskiego i dużego kraju może mieć podobną długość, choć znaczenie ochronne tych miejsc będzie odmienne. Istotne jest również to, ile gatunków występuje tylko w danym obszarze, jak rozległe są ich zasięgi i czy lokalna fauna wymienia się między siedliskami. Bogactwo gatunkowe i unikatowość ewolucyjna nie są wymiennymi miarami. [162]
Region biogeograficzny to wynik przyjętego modelu
Podziały świata na krainy faunistyczne próbują uchwycić historyczne bariery i podobieństwo zespołów zwierząt. Nie są jedynym możliwym podziałem kontynentów. Holt i współautorzy połączyli dane o rozmieszczeniu oraz pokrewieństwie 21 037 gatunków płazów, ptaków i ssaków, uzyskując 20 regionów zgrupowanych w 11 większych jednostkach. To wynik konkretnej analizy trzech grup kręgowców, a nie informacja, że istnieje dokładnie 11 „rodzajów ptaków geograficznych”. Inny zestaw organizmów lub metoda może ujawnić inne granice. [162]
Dla czytelnika praktyczna jest przede wszystkim świadomość skali. Opis „ptak Europy” nie dowodzi, że gatunek występuje w całej Europie. Podobnie organizm o szerokim zasięgu może być silnie związany z wąskim pasem wysokościowym, konkretnym typem roślinności lub zaledwie niektórymi dolinami. Duża plama na mapie kontynentu może zawierać bardzo wiele miejsc niedostępnych dla danego gatunku. Dlatego ogólny zasięg należy czytać razem z opisem siedliska. [163]
Góry: więcej niż jedna prosta zależność
Góry łączą na krótkim dystansie różne temperatury, ekspozycje, piętra roślinności i bariery. Nie oznacza to jednak, że bogactwo ptaków rośnie monotonnie z wysokością. Quintero i Jetz wykazali w globalnej analizie, że pozorny szczyt bogactwa na pośrednich wysokościach zależy m.in. od udziału gatunków o szerokich zasięgach i od sposobu próbkowania przestrzeni. Odpowiedź na pytanie „na jakiej wysokości jest najwięcej ptaków?” wymaga doprecyzowania obszaru i metody. [164]
Badanie opublikowane w 2024 roku, obejmujące 134 regiony górskie i 9788 gatunków według przyjętej wówczas taksonomii, odróżniało lokalne bogactwo od wymiany składu gatunkowego między miejscami. Najwyższe wartości tych dwóch cech nie musiały przypadać na te same pasma. Dla ochrony oznacza to, że wybór tylko najbogatszego pojedynczego stanowiska może pomijać odrębne zespoły z innych fragmentów regionu. Liczba 9788 opisuje zakres tego badania; nie jest konkurencyjną aktualną liczbą wszystkich ptaków świata. [165]
Endemizm i mały zasięg
Endemit występuje naturalnie wyłącznie w określonym obszarze. Obszar trzeba nazwać: można mówić o endemizmie wyspy, archipelagu, kraju albo regionu. Endemit lęgowy może natomiast rozmnażać się tylko w jednym kraju, a poza okresem lęgowym przebywać także gdzie indziej. BirdLife oddziela tę sytuację od całorocznego ograniczenia zasięgu. W jego terminologii gatunek o ograniczonym zasięgu ma globalny zasięg nie większy niż 50 000 km²; przy migracji ograniczenie można analizować osobno dla etapów cyklu. [166]
Słowa „endemiczny” i „zagrożony” nie znaczą tego samego. Mały zasięg może zwiększać wrażliwość na zdarzenia obejmujące znaczną część środowiska, ale kategorię zagrożenia wyznacza się na podstawie właściwych kryteriów. Również szeroki zasięg nie gwarantuje bezpieczeństwa: gatunek może szybko tracić liczebność na bardzo dużej przestrzeni. Ocena wymaga danych o populacji, presjach i zmianach siedlisk, a nie tylko porównania powierzchni na mapie.
Tabela 22. Cztery informacje, które warto odczytać z mapy występowania
| Warstwa | Co opisuje | Typowa pułapka |
|---|---|---|
| Zasięg ogólny | Obszar obejmujący miejsca występowania w określonej skali | Traktowanie każdego punktu wewnątrz granicy jak zajętego stanowiska |
| Sezon | Występowanie lęgowe, pozalęgowe, na przelotach albo całoroczne | Łączenie wszystkich sezonów w jeden obraz obecności |
| Siedlisko odpowiednie | Fragmenty zasięgu spełniające wymagania środowiskowe | Uznanie modelu siedliska za potwierdzenie obecności osobnika |
| Brak predykcji | Miejsca bez wystarczających danych lub poza zakresem modelu | Interpretowanie pustej mapy jako dowodu nieobecności |
Opracowanie na podstawie informacji o produktach przestrzennych BirdLife i eBird Science. [163][167]
Mapy Area of Habitat zawężają zasięg do siedlisk odpowiednich dla gatunku, z wykorzystaniem informacji o pokryciu terenu i granicach wysokościowych. Nadal jest to produkt modelowy. Nie należy utożsamiać go z bezpośrednim pomiarem zajętości wszystkich stanowisk. [168]
Sezonowe mapy eBird rozdzielają okres lęgowy, pozalęgowy i wędrówki oraz odróżniają obszary przewidywanej nieobecności od obszarów bez możliwości predykcji. To ważna wskazówka redakcyjna: koloru i pustego miejsca na mapie nie wolno interpretować bez legendy. [167]
Szlak migracyjny jest siecią miejsc
Ptaki potrzebują nie tylko lęgowiska i zimowiska, lecz także miejsc odpoczynku, żerowania i bezpiecznego przejścia przez bariery. BirdLife rozróżnia w aktualnym opisie osiem szlaków dla ptaków lądowych i wodnych oraz sześć morskich. Są to szerokie systemy migracyjne, często nakładające się przestrzennie, a nie precyzyjne linie lotu każdego osobnika. Określenie „wschodnia trasa” lub „szlak afrykańsko-eurazjatycki” wymaga więc wskazania użytej konwencji. [169]
W praktyce ochrony znaczenie ma ciągłość funkcjonalna: utrata kluczowego miejsca postoju może pogorszyć warunki migracji mimo zachowania terenów lęgowych. W praktyce obserwacji warto natomiast pytać, czy widziane ptaki są miejscowe, przelotne, czy dopiero zatrzymały się na krótkie żerowanie. Jednorazowa obecność i regularne wykorzystywanie obszaru są odmiennymi informacjami, choć na prostej liście gatunków mogą wyglądać podobnie.
Rozdział 22Katalog terenowy: 60 przykładów ptaków spotykanych w Polsce
Nazwy, przynależność i najważniejsze punkty odniesienia. Zestawienie nie zastępuje pełnego klucza identyfikacyjnego.
Dobór poniższych 60 gatunków ma charakter edukacyjny. Łączy ptaki łatwo dostępne obserwatorowi z przykładami pokazującymi różne rzędy, siedliska i problemy identyfikacyjne. Nie jest rankingiem liczebności ani listą 60 najpospolitszych ptaków Polski. Wszystkie podane nazwy polskie i naukowe sprawdzono względem krajowej listy Komisji Faunistycznej z 1 czerwca 2026 r. Nazwy rodzin i rzędów służą orientacji w przyjętym porządku systematycznym. [4][3]
Cechy wyglądu opisano z myślą o ptakach dorosłych, chyba że zaznaczono wiek lub szatę. Siedlisko jest wskazówką, nie dowodem: osobniki wędrujące, spłoszone lub żerujące mogą pojawić się w innych miejscach. Wykorzystane brytyjskie opisy identyfikacyjne odnoszą się do tych samych gatunków, lecz ich kalendarzy występowania, krajowych statusów zagrożenia i danych populacyjnych nie przeniesiono na Polskę. Różnice nazw naukowych w nagłówkach niektórych starszych źródeł uwzględniono, zachowując w tabeli zapis KF.
Tabela 23. Katalog gatunków: pozycje 1–10
| Gatunek | Rząd / rodzina | Przykładowe środowisko | Wskazówki identyfikacyjne |
|---|---|---|---|
| modraszka Cyanistes caeruleus | Passeriformes Paridae | Zadrzewienia, parki i ogrody | Niebieska czapeczka i skrzydła, żółty spód, ciemna pręga przez oko. [170] |
| bogatka Parus major | Passeriformes Paridae | Lasy, parki i ogrody | Czarna głowa z białymi policzkami, ciemny pas przez żółty spód. [64] |
| wróbel Passer domesticus | Passeriformes Passeridae | Zabudowa i jej otoczenie | Samiec: szary wierzch głowy i czarny śliniak; samica bardziej jednolicie brązowa. [171] |
| mazurek Passer montanus | Passeriformes Passeridae | Zadrzewienia, wsie i obrzeża miast | Kasztanowy wierzch głowy, czarna plamka na białym policzku; płcie podobne. [172] |
| kos Turdus merula | Passeriformes Turdidae | Lasy, parki i ogrody | Dorosły samiec czarny, zwykle z żółtym dziobem; samica brązowa. [66] |
| śpiewak Turdus philomelos | Passeriformes Turdidae | Lasy, zadrzewienia i ogrody | Brązowy wierzch, plamkowany jasny spód; śpiew z powtarzanymi frazami. [173] |
| rudzik Erithacus rubecula | Passeriformes Muscicapidae | Zarośla, lasy i ogrody | Dorosły ma pomarańczową twarz i pierś; młody jest plamkowany, bez tej barwy. [174] |
| kopciuszek Phoenicurus ochruros | Passeriformes Muscicapidae | Zabudowa, tereny skaliste i przemysłowe | Rdzawy ogon; dorosły samiec zwykle ciemniejszy od samicy i młodych. [175] |
| zięba Fringilla coelebs | Passeriformes Fringillidae | Lasy, parki i ogrody | Wyraźne białe znaki na skrzydłach; samica spokojniej ubarwiona niż samiec. [176] |
| szczygieł Carduelis carduelis | Passeriformes Fringillidae | Mozaika zadrzewień i otwartych terenów | Żółty pas na skrzydle; czerwona maska u dorosłych, brak jej u młodych. [177] |
Nazwy: KF 2026. Źródła opisów wskazano w każdym wierszu; to cechy pomocnicze, nie pełny zestaw cech diagnostycznych. [4]
Tabela 24. Katalog gatunków: pozycje 11–20
| Gatunek | Rząd / rodzina | Przykładowe środowisko | Wskazówki identyfikacyjne |
|---|---|---|---|
| dzwoniec Chloris chloris | Passeriformes Fringillidae | Ogrody, parki i zadrzewienia | Mocny dziób, żółte partie skrzydła i ogona; samice mniej zielone. [178] |
| gil Pyrrhula pyrrhula | Passeriformes Fringillidae | Lasy, skraje zadrzewień i sady | Czarna czapeczka, biały kuper; samiec z różowoczerwonym spodem. [179] |
| kowalik Sitta europaea | Passeriformes Sittidae | Starsze zadrzewienia i parki | Krępa sylwetka, długi prosty dziób, ciemna pręga przez oko. [65] |
| pełzacz leśny Certhia familiaris | Passeriformes Certhiidae | Lasy i starsze zadrzewienia | Cienki zakrzywiony dziób, brązowy wzór grzbietu; odróżnienie od pełzacza ogrodowego wymaga szczegółów. [180] |
| strzyżyk Troglodytes troglodytes | Passeriformes Troglodytidae | Gęsty podszyt, zarośla i ogrody | Bardzo mały, brązowy; krótki ogon często uniesiony; donośny śpiew. [181] |
| mysikrólik Regulus regulus | Passeriformes Regulidae | Zadrzewienia, zwłaszcza z iglakami | Bardzo mały, oliwkowy; jasny pasek na ciemno obwiedzionym wierzchu głowy. [182] |
| szpak Sturnus vulgaris | Passeriformes Sturnidae | Mozaika otwartych terenów i miejsc z dziuplami | Krótki ogon, ostre skrzydła; połysk i plamkowanie zmienne sezonowo. [183] |
| sroka Pica pica | Passeriformes Corvidae | Krajobraz rolniczy, parki i zabudowa | Biało-czarna sylwetka, bardzo długi ogon, połysk widoczny z bliska. [184] |
| kawka Coloeus monedula | Passeriformes Corvidae | Zabudowa, skały i zadrzewienia z dziuplami | Niewielka krukowata, szarawy kark, jasna tęczówka u dorosłych. [185] |
| sójka Garrulus glandarius | Passeriformes Corvidae | Lasy, większe parki i ogrody | Różowobrązowa sylwetka, niebiesko prążkowany fragment skrzydła, biały kuper. [186] |
Nazwy: KF 2026. Źródła opisów wskazano w każdym wierszu; to cechy pomocnicze, nie pełny zestaw cech diagnostycznych. [4]
Tabela 25. Katalog gatunków: pozycje 21–30
| Gatunek | Rząd / rodzina | Przykładowe środowisko | Wskazówki identyfikacyjne |
|---|---|---|---|
| kruk Corvus corax | Passeriformes Corvidae | Rozmaite siedliska, w tym lasy i otwarte tereny | Duży dziób, długie skrzydła, klinowaty ogon widoczny w locie. [67] |
| gawron Corvus frugilegus | Passeriformes Corvidae | Pola, łąki, parki i zabudowa | Dorosły ma jasną, nieopierzoną nasadę dzioba; młode mogą przypominać wrony. [187] |
| krzyżówka Anas platyrhynchos | Anseriformes Anatidae | Różnorodne wody i ich brzegi | Samiec w szacie godowej z zieloną głową; samica brązowo plamkowana; fioletowe lusterko. [17] |
| łabędź niemy Cygnus olor | Anseriformes Anatidae | Jeziora, stawy i wolniejsze cieki | Dorosły biały, pomarańczowy dziób z czarną nasadą i guzem. [188] |
| gęgawa Anser anser | Anseriformes Anatidae | Mokradła, jeziora i tereny żerowania na lądzie | Duża, masywna gęś; porównuj proporcje i rysunek głowy z innymi gęsiami. [189] |
| czernica Aythya fuligula | Anseriformes Anatidae | Jeziora, stawy i zbiorniki zaporowe | Samiec kontrastowo czarno-biały, z czubkiem i żółtą tęczówką; samica brązowa. [18] |
| nurogęś Mergus merganser | Anseriformes Anatidae | Rzeki, jeziora i inne większe wody | Wąski piłkowany dziób; nurkująca kaczka rybożerna, wygląd zależy od płci. [19] |
| perkoz dwuczuby Podiceps cristatus | Podicipediformes Podicipedidae | Jeziora i inne zbiorniki wodne | Długa szyja; w szacie godowej wyraźne ozdobne pióra na głowie. [21] |
| łyska Fulica atra | Gruiformes Rallidae | Wody stojące i wolno płynące | Ciemne ciało, biały dziób i tarczka czołowa u dorosłych. [28] |
| kokoszka Gallinula chloropus | Gruiformes Rallidae | Zarośnięte brzegi stawów, kanałów i cieków | Czerwony dziób z żółtym końcem, biała linia na boku ciała. [29] |
Nazwy: KF 2026. Źródła opisów wskazano w każdym wierszu; to cechy pomocnicze, nie pełny zestaw cech diagnostycznych. [4]
Tabela 26. Katalog gatunków: pozycje 31–40
| Gatunek | Rząd / rodzina | Przykładowe środowisko | Wskazówki identyfikacyjne |
|---|---|---|---|
| czapla siwa Ardea cinerea | Pelecaniformes Ardeidae | Brzegi wód, mokradła i pola | Duża, szara; długie nogi i dziób, szyja często złożona w spoczynku. [34] |
| czapla biała Ardea alba | Pelecaniformes Ardeidae | Mokradła i płytkie wody | Duża biała czapla; ciemne stopy, żółty dziób poza szatą godową. [35] |
| kormoran Phalacrocorax carbo | Suliformes Phalacrocoracidae | Wody śródlądowe i wybrzeża | Duży, ciemny, z długą szyją; młode często wyraźnie jaśniejsze od dorosłych. [37] |
| bocian biały Ciconia ciconia | Ciconiiformes Ciconiidae | Otwarte żerowiska, łąki i okolice osiedli | Białe ciało z czarnymi lotkami; dorosły z czerwonym dziobem i nogami. [30][32] |
| bocian czarny Ciconia nigra | Ciconiiformes Ciconiidae | Lasy w sąsiedztwie wód i mokradła | Ciemna głowa, szyja i grzbiet kontrastują z jasnym brzuchem. [31] |
| żuraw Grus grus | Gruiformes Gruidae | Mokradła oraz otwarte tereny żerowiskowe | Duży, szary, z długą szyją i nogami; charakterystyczny donośny głos. [27] |
| czajka Vanellus vanellus | Charadriiformes Charadriidae | Pola, łąki i podmokłe otwarte tereny | Długi czubek, ciemny połyskujący wierzch i jasny spód. [23] |
| śmieszka Chroicocephalus ridibundus | Charadriiformes Laridae | Wody śródlądowe, wybrzeża i otwarte tereny | U dorosłych brązowy kaptur latem; poza szatą godową ciemna plamka przy uchu. [26] |
| rybitwa rzeczna Sterna hirundo | Charadriiformes Laridae | Wody śródlądowe i wybrzeża | Smukła, z rozwidlonym ogonem; u godowych dorosłych dziób czerwony z ciemnym końcem. [25] |
| piskliwiec Actitis hypoleucos | Charadriiformes Scolopacidae | Brzegi rzek, jezior i zbiorników | Brązowy wierzch i jasny spód; częste kołysanie tylną częścią ciała. [24] |
Nazwy: KF 2026. Źródła opisów wskazano w każdym wierszu; to cechy pomocnicze, nie pełny zestaw cech diagnostycznych. [4]
Tabela 27. Katalog gatunków: pozycje 41–50
| Gatunek | Rząd / rodzina | Przykładowe środowisko | Wskazówki identyfikacyjne |
|---|---|---|---|
| myszołów Buteo buteo | Accipitriformes Accipitridae | Mozaika terenów otwartych i zadrzewień | Szerokie skrzydła i stosunkowo krótki ogon; bardzo zmienne ubarwienie. [44] |
| krogulec Accipiter nisus | Accipitriformes Accipitridae | Lasy, parki i zabudowa z zielenią | Długi ogon i zaokrąglone skrzydła; samica wyraźnie większa od samca. [45] |
| pustułka Falco tinnunculus | Falconiformes Falconidae | Tereny otwarte i zabudowa | Spiczaste skrzydła, długi ogon; często zawisa nad żerowiskiem. [47] |
| sokół wędrowny Falco peregrinus | Falconiformes Falconidae | Skały, wybrzeża i wysokie budowle | Masywny sokół z ciemnym wąsem i spiczastymi skrzydłami; młode bardziej kreskowane. [48] |
| puszczyk Strix aluco | Strigiformes Strigidae | Lasy i parki ze starszymi drzewami | Okrągła głowa bez pęczków piór, ciemne oczy; szata od szarawej do rdzawej. [50] |
| uszatka Asio otus | Strigiformes Strigidae | Zadrzewienia w sąsiedztwie otwartych żerowisk | Pomarańczowe oczy, smukła sylwetka, widoczne pęczki piór na głowie. [51] |
| płomykówka Tyto alba | Strigiformes Tytonidae | Zabudowa przy otwartych żerowiskach | Sercowata szlara i ciemne oczy; spód ciała zmienny od jasnego do płowego. [52][53] |
| dzięcioł duży Dendrocopos major | Piciformes Picidae | Lasy, parki i większe ogrody | Czarno-biały wzór; samiec z czerwienią na potylicy, młody z czerwonym wierzchem głowy. [59] |
| dzięcioł zielony Picus viridis | Piciformes Picidae | Zadrzewienia z otwartymi miejscami żerowania | Zielony wierzch, żółtawy kuper i czerwień na głowie; często żeruje na ziemi. [60][61] |
| dudek Upupa epops | Bucerotiformes Upupidae | Otwarte tereny z rozproszonymi drzewami | Czub, długi zagięty dziób, wyraźne czarno-białe pasy skrzydeł. [75] |
Nazwy: KF 2026. Źródła opisów wskazano w każdym wierszu; to cechy pomocnicze, nie pełny zestaw cech diagnostycznych. [4]
Tabela 28. Katalog gatunków: pozycje 51–60
| Gatunek | Rząd / rodzina | Przykładowe środowisko | Wskazówki identyfikacyjne |
|---|---|---|---|
| zimorodek Alcedo atthis | Coraciiformes Alcedinidae | Cieki i zbiorniki z dostępną drobną zdobyczą | Niebieski wierzch, pomarańczowy spód i długi dziób; szybki lot nad wodą. [74] |
| kukułka Cuculus canorus | Cuculiformes Cuculidae | Mozaika zadrzewień, zarośli i otwartych terenów | Długi ogon i prążkowany spód; głos samca jest ważną wskazówką. [57] |
| jerzyk Apus apus | Apodiformes Apodidae | Przestrzeń nad różnymi siedliskami; często przy zabudowie | Ciemny, z długimi sierpowatymi skrzydłami i krótkim rozwidlonym ogonem. [69] |
| dymówka Hirundo rustica | Passeriformes Hirundinidae | Otwarte tereny, często przy zabudowaniach gospodarczych | Rdzawa twarz, ciemny wierzch, jasny spód; dorosłe z długimi skrajnymi sterówkami. [70] |
| oknówka Delichon urbicum | Passeriformes Hirundinidae | Zabudowa, skały i otwarte przestrzenie żerowania | Biały kuper i spód, krótki rozwidlony ogon; gniazda często pod okapami. [71] |
| skowronek Alauda arvensis | Passeriformes Alaudidae | Otwarte pola i łąki | Brązowe kreskowanie, mały czubek; długotrwały śpiew w locie. [190] |
| grzywacz Columba palumbus | Columbiformes Columbidae | Lasy, parki, miasta i pola | Duży gołąb; u dorosłych biała plama na szyi, białe pasy na skrzydłach. [55] |
| sierpówka Streptopelia decaocto | Columbiformes Columbidae | Zabudowa, ogrody i zadrzewienia | Jasna, szarobeżowa; u dorosłych wąska czarna półobroża na karku. [56] |
| bażant Phasianus colchicus | Galliformes Phasianidae | Krajobraz rolniczy i skraje zarośli | Bardzo długi ogon; samiec barwny, samica brązowo cętkowana. [41] |
| kuropatwa Perdix perdix | Galliformes Phasianidae | Otwarte pola, łąki i miedze | Krępa sylwetka, krótki ogon, rdzawa twarz; zwykle przebywa na ziemi. [42] |
Nazwy: KF 2026. Źródła opisów wskazano w każdym wierszu; to cechy pomocnicze, nie pełny zestaw cech diagnostycznych. [4]
Najtrudniejsze przypadki są często pospolite
Czarna sylwetka na tle nieba nie wystarcza do rozpoznania kruka, gawrona ani kawki. Z kolei młody szczygieł nie ma jeszcze charakterystycznej czerwonej maski, a młody rudzik pomarańczowej piersi. Pojedyncza rozpoznawalna cecha z podręcznikowej ilustracji bywa więc zawodna, jeśli nie uwzględni się wieku. Katalog celowo wskazuje te ograniczenia w wybranych wierszach. Oznaczenie powinno wytrzymywać porównanie z alternatywami, nie tylko pasować do pierwszego skojarzenia. [187][177][174]
Zauważ także, że ogólne cechy pełzacza leśnego nie wystarczają do odróżnienia go od pełzacza ogrodowego, a podstawowa sylwetka czapli białej wymaga porównania z innymi białymi czaplami. W takich sytuacjach przydaje się dokładniejszy atlas, nagranie głosu lub seria zdjęć pokazująca cechy diagnostyczne. Jeżeli źródło proponuje rozpoznanie oparte na szczególe, którego obserwator nie widział, ten szczegół nie może zostać domyślnie „uzupełniony”. Uczciwe pozostawienie niepewności chroni jakość danych terenowych.
Rozdział 23Rozpoznawanie ptaków: od pierwszego wrażenia do sprawdzalnego oznaczenia
Zamiast pojedynczej „magicznej cechy” potrzebny jest zestaw zgodnych przesłanek.
Najpierw warto opisać ptaka własnymi słowami, zanim wybierze się nazwę z atlasu. Zapis „mały, smukły, długi ogon, cienki dziób, porusza się przy brzegu wody” zawiera więcej użytecznych danych niż samo przekonanie „to chyba pliszka”. Pierwsza nazwa bywa pomocną hipotezą, ale może też skierować uwagę wyłącznie na cechy, które ją potwierdzają. Rzetelne oznaczenie powinno wyjaśniać również te elementy wyglądu, które do hipotezy nie pasują.
Pierwsza warstwa to proporcje i zachowanie: relacja głowy do tułowia, długość dzioba i nóg, sposób noszenia ogona, rytm lotu, sposób chodzenia lub żerowania. Następnie warto sprawdzić układ barw: pasy na skrzydle, kontrast kupra, brwi, policzka czy podogonia. Cornell Lab podkreśla, że ogólne cechy pozwalają najpierw zawęzić grupę, a szczegółowe znaki rozpoznawcze służą później do rozdzielenia podobnych gatunków. [1][191]
Sześć pytań w terenie
- Sylwetka: jaki jest ogólny kształt, wielkość względem znanego obiektu i proporcje poszczególnych części ciała?
- Dziób i nogi: czy ich budowa jest widoczna, czy tylko wydaje się określona z powodu pozy lub perspektywy?
- Upierzenie: gdzie znajdują się kontrastowe pola i czy barwa jest oceniana w równomiernym świetle?
- Zachowanie: czy ptak żeruje, odpoczywa, niesie pokarm, alarmuje lub przemieszcza się z grupą?
- Głos: jaki dźwięk został usłyszany, ile razy się powtórzył i czy da się powiązać go z obserwowanym osobnikiem?
- Kontekst: gdzie i kiedy odbyła się obserwacja, w jakim siedlisku i z jakiej odległości?
Powyższy zestaw jest autorskim uporządkowaniem notatki terenowej. Nie każdą cechę da się ustalić. Właśnie dlatego warto rozdzielać zapis „brak widocznego pasa na skrzydle” od „skrzydła nie udało się dobrze zobaczyć”. Pierwsze stwierdzenie jest obserwacją cechy, drugie opisuje ograniczenie. Gdy szczegół był niewidoczny, nie należy dopisywać go na podstawie atlasu ani propozycji aplikacji.
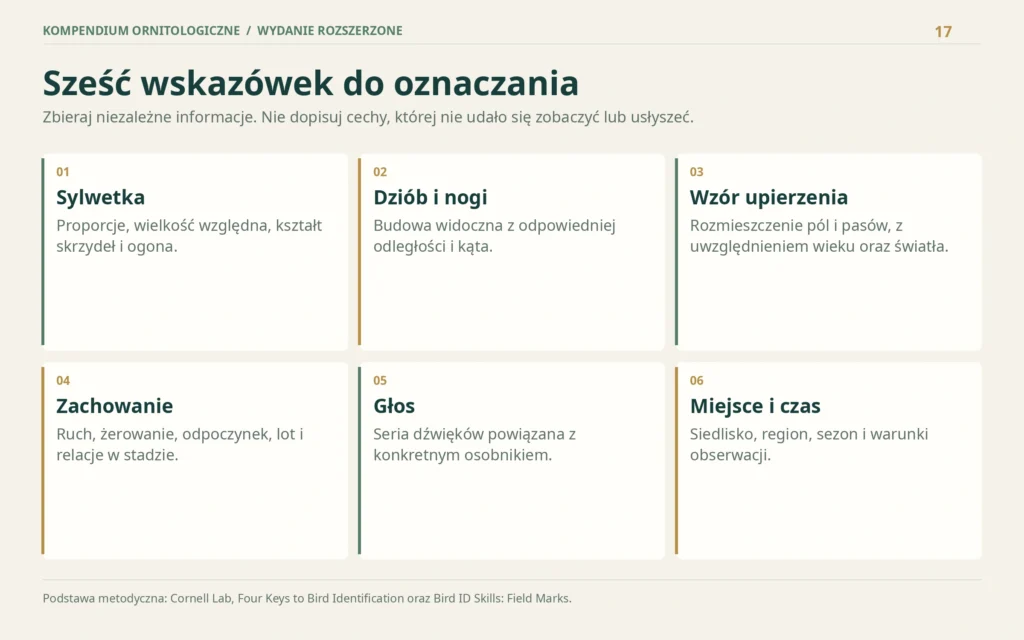
Wiek, płeć i pora roku
Zestawienie dorosłego samca w szacie godowej z młodym ptakiem innego gatunku może pozornie sugerować więcej podobieństw niż porównanie dwóch prawidłowo dobranych ilustracji. Dlatego przy trudnym oznaczaniu trzeba sprawdzić, jakie szaty i grupy wieku pokazuje źródło. U wróbla samice i młode różnią się od dorosłych samców; u młodych dymówek nie należy oczekiwać długich skrajnych sterówek typowych dla dorosłych. To konkretne przykłady, dlaczego rozpoznanie „braku charakterystycznej cechy” wymaga uwzględnienia wieku. [192][193]
Z koloru należy korzystać ostrożnie. Mocne słońce, cień, odbicia od wody i automatyczny balans bieli zmieniają wygląd zdjęcia. Lepiej najpierw porównać położenie ciemnych i jasnych pól oraz ich granice, a dopiero potem subtelne odcienie. Sam rozmiar na fotografii bez skali również nie jest pomiarem. Ptak bliżej obiektywu może wyglądać na większego od drugiego, nawet jeśli rzeczywista relacja jest odwrotna. To ograniczenia obrazu, które trzeba uwzględnić przed wyciągnięciem wniosku.
Aplikacja jako pomoc w sprawdzaniu hipotez
Rozpoznawanie dźwięku przez aplikację może wskazać kandydata, którego warto sprawdzić, ale nie stanowi automatycznego potwierdzenia. Cornell Lab zaleca przy Merlin Sound ID samodzielną weryfikację, porównanie dźwięku i, jeśli to możliwe, zobaczenie wydającego go ptaka. Niepewnych sugestii nie powinno się przepisywać do eBird jako potwierdzonych obserwacji. Ważne jest też prawidłowe ustawienie miejsca nagrania. [194]
Brak sugestii nie wyklucza gatunku. Oficjalna dokumentacja Sound ID zaznacza, że narzędzie nie rozpoznaje jeszcze wszystkich ptaków świata ani każdej możliwej wokalizacji. Dla redaktora oznacza to również, że nie należy podawać jednej uniwersalnej skuteczności aplikacji bez określenia wersji, regionu, warunków nagrania i sposobu testowania. W tym kompendium nie przypisano aplikacjom procentowej „pewności”, której nie dałoby się powiązać z konkretnym badaniem. [195]
Rozdział 24Siedem porównań, które uczą rozpoznawania
Przykłady pokazują sposób pracy z cechami. Nie są kompletnymi kluczami do wszystkich płci, szat i grup wieku.
1. Jerzyk, dymówka i oknówka
Jerzyk ma długie, wąskie, sierpowato wygięte skrzydła i przeważnie ciemną sylwetkę. Dymówka ma jasny spód, rdzawoczerwone gardło i u dorosłych wyraźnie wydłużone skrajne sterówki. Oknówka wyróżnia się białym kuprem i białym spodem. W szybkim locie żadna z tych cech nie musi być widoczna cały czas. Obserwacja powinna obejmować kilka zmian kierunku, ponieważ właśnie wtedy odsłaniają się kuper, ogon i spód skrzydeł. Nie wolno uznawać samego latania nad zabudową za cechę rozstrzygającą. [192]
2. Wróbel i mazurek
Dorosły mazurek ma kasztanową czapeczkę i ciemną plamkę na jasnym policzku. U dorosłego samca wróbla zwraca uwagę szara górna część głowy i czarny śliniak, natomiast samica jest znacznie skromniej ubarwiona. W mieszanym stadzie najpierw trzeba przyjrzeć się konkretnemu osobnikowi: przeniesienie cechy jednego ptaka na całą grupę jest częstym źródłem pomyłki. Pomaga fotografia, na której policzek i wierzch głowy są widoczne jednocześnie. [193]
3. Pierwiosnek i piecuszek
Oba są niewielkimi, subtelnie ubarwionymi ptakami, których oznaczanie ze słabego zdjęcia bywa trudne. Pierwiosnek ma charakterystyczny rytmiczny śpiew, piecuszek bardziej płynną, opadającą frazę. RSPB wskazuje głos jako ważny sposób rozdzielenia tych podobnych gatunków. Różnice w odcieniu nóg czy długości projekcji lotek mogą pomagać przy dobrej dokumentacji, lecz kolor nóg nie powinien samodzielnie zamykać oznaczenia. Cień potrafi zmienić jego odbiór. [196][197]
4. Sikora uboga i czarnogłówka
To porównanie dobrze pokazuje granice prostych porad. Oba gatunki mają ciemną czapeczkę i śliniak oraz stosunkowo spokojne ubarwienie. BTO zwraca uwagę na podobieństwo wyglądu i duże znaczenie głosu. Cechy takie jak połysk czapeczki, rozległość śliniaka i jasne pole na skrzydle wymagają ostrożności; nie należy traktować pojedynczego, słabo widocznego szczegółu jak nieomylnego testu. Siedlisko wspiera ocenę, ale nie zastępuje cech ptaka. Warto zachować nagranie serii głosów, a nie tylko przepisać ich umowne brzmienie. [198][199]
5. Łyska i kokoszka
U dorosłej łyski wyraźne są biały dziób i biała tarczka czołowa. U dorosłej kokoszki dziób jest czerwony z żółtą końcówką; dodatkowo zwracają uwagę białe elementy boków i podogonia. Łyska ma płatkowate obrzeżenia palców, które pomagają w pływaniu. Te cechy rozdzielają typowo wyglądające dorosłe osobniki, ale opis nie powinien być bez sprawdzenia przenoszony na małe pisklęta i młode ptaki. Sam ciemny kolor ciała oraz pływanie po stawie nie pozwalają dokonać oznaczenia. [28][29]
6. Grzywacz, siniak i sierpówka
Dorosły grzywacz ma białe elementy na szyi i skrzydłach. Siniak nie ma charakterystycznej białej plamy szyjnej grzywacza i prezentuje bardziej jednolitą sylwetkę. Sierpówka jest smuklejsza, piaskowoszara, z ciemną półobrożą na karku u dorosłych. W miastach porównanie komplikuje zmienność ubarwienia gołębi pochodzących od form udomowionych. Biała plama na przypadkowym miejskim gołębiu nie dowodzi, że jest to grzywacz. Trzeba ocenić jej położenie oraz pozostałe cechy. [200]
7. Gawron, kruk i kawka
U dorosłego gawrona widoczna jest jasna, nieopierzona okolica nasady dzioba; u młodego ptaka ta użyteczna cecha nie wygląda tak samo. Kruk ma masywny dziób i w locie często klinowaty zarys ogona. Dorosła kawka jest mniejsza i ma jaśniejszą okolicę karku oraz jasną tęczówkę. Obserwowanie ptaka pod światło zaciera te różnice, a odległość utrudnia ocenę wielkości. W takich warunkach warto porównać głos, kształt ogona w różnych fazach lotu i proporcje dzioba. [201]
Tabela 29. Co naprawdę zwiększa wiarygodność porównania
| Sytuacja | Najbardziej użyteczne uzupełnienie | Czego nie dopisywać |
|---|---|---|
| Nie widać głowy | Zdjęcie lub obserwacja z innego kąta | Koloru czapeczki zapamiętanego z atlasu |
| Podobne ptaki śpiewające | Czyste nagranie i porównanie kilku fraz | Nazwy zasugerowanej przez aplikację bez odsłuchu |
| Ptak młody | Materiał identyfikacyjny odpowiedniej grupy wieku | Cech dorosłego samca jako obowiązkowego wzorca |
| Ciemna sylwetka w locie | Proporcje, ogon, rytm lotu i głos | Dokładnych odcieni niewidocznego upierzenia |
| Mieszane stado | Opis konkretnych osobników i osobne liczenia | Jednego oznaczenia dla wszystkich ptaków |
Zalecenia metodyczne opracowania; przykłady gatunkowe udokumentowano powyżej.
Każde z tych porównań prowadzi do tego samego praktycznego wniosku: należy szukać zgodnego zestawu cech i znać warunki, w których dana wskazówka przestaje być rozstrzygająca. Uczciwe „nie udało się ustalić” nie obniża jakości notatki. Przeciwnie, pokazuje, gdzie kończy się obserwacja, a zaczynałoby zgadywanie.
Rozdział 25Jak przygotować wartościową notatkę terenową
Dokumentacja zachowuje warunki obserwacji i pozwala później oddzielić dane od interpretacji.
Notatka powinna umożliwić powrót do zdarzenia bez polegania wyłącznie na pamięci. Najlepiej zapisywać od razu datę, czas, miejsce, liczbę osobników i widoczne cechy. Informacja „dwa ptaki przez około minutę obserwowane z brzegu stawu” jest czymś innym niż „gatunek występuje na tym zbiorniku”. Pierwsze zdanie opisuje stwierdzenie, drugie jest szerszym wnioskiem o sposobie wykorzystywania terenu. Oddzielenie obu poziomów ułatwia późniejszą weryfikację.
W bazach obserwacyjnych znaczenie mają również wysiłek obserwatora i protokół: czas trwania, długość trasy, liczba osób oraz to, czy ptaków aktywnie szukano, czy zauważono je przypadkiem. eBird rozróżnia m.in. obserwacje stacjonarne, trasowe i przygodne. Te ostatnie są użyteczne jako stwierdzenia, lecz bez pełnych informacji o wysiłku słabiej nadają się do niektórych analiz ilościowych. Nie należy zmieniać ich po fakcie w pełne liczenie, jeśli nie wykonano odpowiednich obserwacji. [202]
Kompletna lista nie oznacza wykrycia wszystkiego
W metodologii eBird kompletność listy dotyczy zgłoszenia wszystkich ptaków, które obserwator potrafił zidentyfikować podczas danego zdarzenia, przy odpowiednim skupieniu na obserwowaniu. Nie jest deklaracją, że wykryto wszystkie osobniki obecne w okolicy. Ta różnica ma znaczenie: gatunek może być niewykryty z powodu milczenia, zasłonięcia roślinnością lub zbyt krótkiego czasu kontroli. Zaznaczenie kompletności na liście zawierającej wyłącznie najbardziej interesujące gatunki wprowadzałoby błąd. [203]
Tabela 30. Szablon rzetelnego zapisu obserwacji
| Pole | Co wpisać | Wskazówka jakościowa |
|---|---|---|
| Data i czas | Dzień oraz początek i koniec obserwacji | Nie odtwarzaj minut, których nie zapamiętano |
| Miejsce | Lokalizacja oraz krótki opis siedliska | Szczegóły miejsc wrażliwych udostępniaj rozważnie |
| Wysiłek | Rodzaj obserwacji, czas, trasa, liczba obserwatorów | Odróżnij spacer od liczenia według protokołu |
| Gatunek lub grupa | Najdokładniejsze uzasadnione oznaczenie | Dopuszczalne jest pozostanie przy rodzaju lub rodzinie |
| Liczba | Liczba policzona albo wyraźnie opisany szacunek | Unikaj pozornej dokładności w dużym, ruchliwym stadzie |
| Cechy | Wygląd, zachowanie, głos i warunki widoczności | Oddziel widziane cechy od cech niewidocznych |
| Materiały | Oryginalne zdjęcia, nagrania, nazwy plików | Zachowaj plik źródłowy obok kadrowanej kopii |
| Pewność i konsultacje | Co potwierdza oznaczenie; co pozostaje otwarte | Zmianę oznaczenia opisz, zamiast ukrywać poprzednią niepewność |
Autorski szablon dokumentacyjny, z uwzględnieniem pól wysiłku i zasad jakości eBird. [204][205]
Zdjęcie należy traktować jak część dokumentacji, nie całą obserwację. Warto zachować oryginalny plik i jego czas wykonania, a w opisie wskazać kadrowanie lub istotne korekty. Nadmierne odszumianie i wyostrzanie mogą tworzyć krawędzie przypominające detale upierzenia. Jeśli taki detal jest kluczowy, rozstrzygnięcie powinno opierać się również na ujęciach niezależnych i obserwacji w terenie. To zasada pracy z dowodem obrazowym, a nie ocena wartości artystycznej fotografii.
Weryfikacja danych nie ogranicza się do nazwy gatunku. eBird podkreśla rolę kontroli informacji na poziomie całej listy, w tym czasu, odległości i powielania wysiłku. Dwie osoby obserwujące ten sam równoczesny przelot nie powinny bezrefleksyjnie tworzyć w analizie dwóch niezależnych prób. Również wielokrotne fotografie tego samego osobnika nie oznaczają wielu ptaków. Dobre metadane pozwalają później rozpoznać te sytuacje. [204]
Najlepszym nawykiem jest krótki powrót do zapisów po obserwacji: uporządkowanie plików, zaznaczenie niepewności oraz zapisanie powodu późniejszej korekty oznaczenia. Taka praktyka pomaga również w uczeniu się. Można zobaczyć, czy pomyłki powtarzały się przy konkretnym gatunku, o określonej porze albo w słabym świetle. Rozwój umiejętności polega wtedy na doskonaleniu określonych elementów obserwacji, a nie wyłącznie na powiększaniu listy nazw.
Część IVDane, zagrożenia i ochrona
Rozdział 26Skąd wiemy, ile jest ptaków? Od obserwacji do monitoringu
Rzetelny wniosek zaczyna się od dobrze zadanego pytania, porównywalnej metody i właściwej jednostki pomiaru.
Lista ptaków widzianych podczas spaceru może być wartościowym zapisem przyrodniczym, lecz sama nie odpowiada na pytanie o zmianę liczebności populacji. Aby porównać dwa lata, trzeba wiedzieć nie tylko, ile ptaków zauważono, ale także gdzie, kiedy, jak długo i jaką metodą prowadzono obserwacje. Liczenie nie jest przezroczystym oknem na przyrodę: obserwator ma ograniczony słuch, widoczność zależy od roślinności, a aktywność ptaków zmienia się w ciągu dnia i sezonu. Dlatego monitoring wymaga protokołu, który pozwala oddzielać zmianę w przyrodzie od zmiany sposobu zbierania danych. [206]
Dopasowanie metody do pytania
W polskim systemie monitoringu różne grupy ptaków obserwuje się odmiennie. Gatunek kolonijny można liczyć na zajętych stanowiskach, rozproszone ptaki krajobrazu rolniczego na powierzchniach próbnych, a zimujące ptaki wodne na wyznaczonych akwenach. Nocne, skryte lub występujące w dużych terytoriach gatunki wymagają innych warunków pracy niż pospolite ptaki śpiewające. Nie istnieje jedna metoda terenowa równie skuteczna dla całej awifauny. Zmienienie jej w środku wieloletniego szeregu może utrudnić porównanie wyników, nawet gdy nowa technika wykrywa więcej ptaków. [207]
Monitoring Pospolitych Ptaków Lęgowych wykorzystuje powtarzane liczenia na losowo wybranych powierzchniach 1 × 1 km. W opisanej metodyce każdą powierzchnię kontroluje się dwukrotnie wiosną. Takie powroty do tych samych miejsc ograniczają wpływ przypadkowego wyboru lokalizacji i różnic fenologicznych. To nadal próba, a nie policzenie każdego osobnika w kraju. Jej wartość polega na powtarzalności i odpowiednim doborze stanowisk. Kilka starannie wykonanych kontroli według instrukcji może powiedzieć o trendzie więcej niż znacznie większa kolekcja rekordów zebranych bez informacji o wysiłku. [208]
Ptaki obecne i ptaki wykryte
Wykrywalność oznacza prawdopodobieństwo zauważenia lub usłyszenia ptaka, który rzeczywiście znajduje się w badanej przestrzeni. Głośny śpiewak na odsłoniętej gałęzi i milczący ptak w gęstym szuwarze nie mają takich samych szans trafienia do notatnika. BTO wykorzystuje między innymi zapis odległości od transektu, ponieważ wykrywalność zwykle maleje wraz z dystansem. Umożliwia to oszacowanie części osobników, których nie zarejestrowano. Nie jest to dowolne dopisywanie ptaków: model musi wynikać z projektu badania i danych oraz spełniać określone założenia. [209]
Z tego powodu niewykrycie nie dowodzi nieobecności. Modele zajętości stanowisk wykorzystują powtarzane kontrole do rozdzielania prawdopodobieństwa występowania od prawdopodobieństwa wykrycia. Opisują jednak zajętość, a nie automatycznie liczbę osobników. Jedno zajęte stanowisko może utrzymać jedną parę albo wiele ptaków. Wniosek o kolonizacji, zaniku stanowiska lub spadku liczebności wymaga zgodnej jednostki analizy. Przy skrytym gatunku pojedyncza cicha kontrola daje przede wszystkim informację o braku rejestracji podczas tej kontroli. [210]
Tabela 31. Co może oznaczać liczba w raporcie?
| Jednostka | Co opisuje | Czego nie wolno zakładać |
|---|---|---|
| Osobniki | Ptaki zarejestrowane albo oszacowane zgodnie z protokołem. | Nie są tym samym co pary lęgowe. |
| Pary / terytoria | Jednostki przypisane do rozrodu lub zajmowanej przestrzeni. | Nie należy mechanicznie przeliczać ich na wszystkie ptaki × 2. |
| Zajęte stanowiska | Miejsca ze stwierdzonym lub modelowanym występowaniem. | Stała liczba stanowisk nie zapewnia stałej liczebności. |
| Indeks liczebności | Względną zmianę względem przyjętego punktu odniesienia. | Wartość 100 nie oznacza 100 osobników. |
| Lista gatunków | Zestaw taksonów wykrytych w określonym zakresie. | Więcej gatunków na liście nie musi oznaczać więcej ptaków. |
Wartość nauki obywatelskiej
Dane ochotników są ważnym składnikiem współczesnej ornitologii, ale ich użyteczność zależy od opisu obserwacji. W eBird kompletna lista oznacza zapis wszystkich rozpoznanych gatunków podczas obserwacji, której głównym celem było obserwowanie ptaków. Nie oznacza gwarancji wykrycia wszystkiego, co znajdowało się w okolicy. Pozwala natomiast odróżnić świadome pominięcie pospolitych gatunków od sytuacji, w której ich nie odnotowano. Czas, długość trasy i liczba obserwatorów ułatwiają analizę wysiłku terenowego. [203]
W bazach obserwacji występują nierównomierności: popularne rezerwaty mogą mieć bardzo wiele wpisów, a podobne siedliska daleko od dróg niemal żadnych. Obserwatorzy częściej zgłaszają osobliwości i odwiedzają miejsca, w których oczekują ciekawych spotkań. Analiza musi uwzględniać taki dobór próby, a nie traktować surowej mapy zgłoszeń jak mapy liczebności. Naukowa wartość dobrze opisanej zwyczajnej obserwacji bywa większa niż rekordowej rzadkości pozbawionej daty, lokalizacji lub wiarygodnego oznaczenia. [212]
Powtarzalność wymaga dokumentowania zmian
Nieobecność liczenia nie powinna być kodowana jako wynik „zero ptaków”. Pierwszy zapis oznacza brak informacji, drugi — wykonaną kontrolę bez stwierdzeń. Podobnie zmiana obserwatora, przebiegu trasy albo pokrycia terenu jest informacją, którą należy zachować przy danych. W praktyce najcenniejszy protokół jest taki, który potrafi odtworzyć inna osoba: zawiera datę, granice obszaru, czas pracy, warunki i sposób liczenia. Dopiero wtedy brak rekordu można interpretować z odpowiednią ostrożnością, a różnicę wyniku porównać z rzeczywistym zakresem wysiłku. [206][203]
Zwykła suma zgłoszeń nie gwarantuje niezależności obserwacji. Przykład logiczny: pięć osób fotografujących to samo stado nie dokumentuje pięciu osobnych stad. Baza może zawierać wiele wiarygodnych zapisów tego samego zdarzenia. Ich wartość dokumentacyjna rośnie, ale nie uprawnia to do mnożenia liczebności. W analizie trzeba ustalić jednostkę próby i sposób ograniczania powtórzeń. Z tego samego powodu krótkie, precyzyjnie umiejscowione listy często pomagają lepiej niż jeden zbiorczy zapis z wielogodzinnej podróży przez różne siedliska. [212]
Rozdział 27Warsztat ornitologa: co naprawdę mierzą nowoczesne narzędzia?
Obrączka, satelita, radar i próbka pióra dostarczają różnych rodzajów informacji. Dobór metody zaczyna się od pytania.
W badaniach ptaków łatwo zachwycić się szczegółową mapą albo ogromną liczbą rejestracji. O wartości materiału decyduje jednak to, czy pomiar odpowiada postawionemu pytaniu. Warto rozróżnić trzy poziomy: sygnał z urządzenia, wielkość wyznaczoną z tego sygnału i interpretację biologiczną. Czas odebrania nadajnika nie jest jeszcze pełną trasą, pozycja nie dowodzi żerowania, a obecność głosu nie daje automatycznie liczby ptaków. Poniższy przegląd pokazuje te przejścia, dzięki czemu można czytać publikację bez mylenia techniki z gotowym wyjaśnieniem.
Indywidualne znakowanie: powrót do tego samego ptaka
Obrączka z unikatowym numerem pozwala połączyć kolejne spotkania z konkretnym osobnikiem. USGS wskazuje zastosowania obejmujące przemieszczanie, zachowanie, przeżywanie i rozród. Sam znak nie zapisuje drogi: wiadomość pojawia się przy odczycie, ponownym odłowie lub znalezieniu ptaka. Dwa udokumentowane miejsca nie ujawniają wszystkich przystanków pomiędzy nimi. Przy porównywaniu informacji trzeba zachować daty i okoliczności stwierdzeń. Osobnik zaobrączkowany jako pisklę ma inną pewność oznaczenia wieku niż ptak oznaczony po raz pierwszy jako dorosły. W badaniu ważny jest więc nie tylko numer, ale związana z nim historia spotkań. [213]
Dla czytelnika dobrym pytaniem kontrolnym jest: „Co w tym zbiorze oznacza pojedynczy wiersz?”. Może nim być ptak, odczyt znaku albo jeden pomiar podczas odłowu. Zsumowanie wszystkich wierszy bez rozpoznania tej jednostki może wielokrotnie policzyć tego samego osobnika. To nie wada znakowania; właśnie powtarzane spotkania tworzą jego wartość. Trzeba jedynie dopasować podsumowanie do pytania: osobno liczyć osobniki, osobno zdarzenia i osobno okresy obserwacji. Zależność pomiędzy tymi poziomami ma znaczenie także w danych automatycznych.
GPS, geolokator i przekazywanie danych
Rejestrator GPS wyznacza pozycje przy użyciu systemu nawigacji satelitarnej. Czym innym jest sposób przesłania zapisanych informacji do badacza: urządzenie może przechowywać dane albo przekazywać je odpowiednim łączem. Dlatego określenie „śledzony satelitarnie” bywa zbyt ogólne. Z opisu metod powinno wynikać, jak ustalano lokalizację, jak często urządzenie próbowało ją zapisać i jak odzyskiwano dane. Większa szczegółowość czasowa zwykle zmienia wymagania energetyczne projektu; parametrów jednego modelu nie należy przypisywać całej technologii. [214]
Geolokator świetlny rejestruje natężenie światła. Położenie odtwarza się na podstawie informacji związanych z czasem świtu, zmierzchu i długością dnia. Zacienienie urządzenia oraz geometria oświetlenia wpływają na oszacowanie. W pobliżu równonocy wyznaczanie szerokości geograficznej jest szczególnie problematyczne. Metoda służy przede wszystkim do pytań o większą skalę przemieszczania; nie należy zaznaczać wynikowej lokalizacji jako pewnego punktu na konkretnym polu. Wariant archiwalny wymaga odzyskania urządzenia lub zapisanych w nim danych. To ogranicza, które historie trafią do analizy. [214]
Movebank porządkuje dane, rozdzielając osobnika, urządzenie, okres jego założenia i zdarzenie pomiarowe. Ta pozornie techniczna różnica chroni interpretację: nadajnik może być używany kolejno u różnych ptaków, a jeden ptak może mieć kilka okresów śledzenia. Zdarzenie może zawierać lokalizację albo odczyt innego czujnika. Akcelerometr dostarcza informacji o przyspieszeniach, a przypisanie im zachowania jest kolejnym etapem analizy. Należy sprawdzić, czy etykiety „lot”, „odpoczynek” lub „żerowanie” zostały zweryfikowane względem niezależnych obserwacji, czy tylko zaproponowane na podstawie wzoru sygnału. [215]
Radiotelemetria: obserwacje tam, gdzie słucha sieć
Motus wykorzystuje kodowane nadajniki radiowe i współpracującą sieć stacji. Zapis powstaje po odebraniu sygnału przez odbiornik; danych nie trzeba odzyskiwać wyłącznie poprzez ponowne schwytanie ptaka. Można analizować obecność, przelot i czas opuszczenia obszaru. Interpretacja zależy jednak od rozmieszczenia i działania stacji oraz warunków odbioru. Linia łącząca kolejne detekcje nie jest bezpośrednim zapisem każdego fragmentu lotu. Brak sygnału może oznaczać pobyt poza zasięgiem, problem techniczny lub inną sytuację; sam w sobie nie dowodzi śmierci. Zanim porówna się dwa regiony, trzeba sprawdzić ich pokrycie odbiornikami. [216]
Tabela 32. Sygnał, wynik pośredni i wniosek: poziomy, których nie należy łączyć
| Narzędzie | Zapis dostępny do analizy | Co wymaga dalszego uzasadnienia |
|---|---|---|
| Obrączka | Odczyt oznaczonego osobnika w danym miejscu i czasie. | Przebieg drogi pomiędzy spotkaniami. [213] |
| GPS | Pozycja i czas wyznaczone przez urządzenie. | Cel przemieszczenia oraz zachowanie ptaka. [214][215] |
| Geolokator świetlny | Przebieg światła, z którego wyznacza się lokalizację. | Dokładność przestrzenna rekonstruowanej trasy. [214] |
| Radiotelemetria | Odbiór identyfikowalnego sygnału przez stację. | Ciągła pozycja poza obszarem odbioru. [216] |
| Akcelerometr | Przyspieszenia w osiach czujnika. | Biologiczna nazwa rozpoznanej aktywności. [215] |
Synteza funkcji pomiarowych. Nie jest rankingiem urządzeń ani instrukcją ich zakładania.

Radar i dźwięk: ruch zbiorowy oraz obecność głosu
Radar meteorologiczny odbiera energię rozproszoną przez obiekty w atmosferze. W analizie migracji trzeba oddzielić sygnał ptaków od opadów i innych źródeł odbić, a następnie przeliczyć go z przyjętymi założeniami. BirdCast wyjaśnia, że jest to pomiar zbiorczego obrazu ruchu, nie fotograficzne rozpoznawanie osobników. Większe ptaki mogą wnosić silniejszy sygnał niż mniejsze. Bez dodatkowego potwierdzenia dane radarowe nie identyfikują gatunków w chmurze migrantów. Rzetelny opis mapy powinien więc podawać, czy przedstawia natężenie przepływu, zagęszczenie, wysokość czy kierunek, oraz jaki obszar i przedział czasu obejmuje. [217]
Rejestratory akustyczne umożliwiają zachowanie nagrań, do których można powrócić i zastosować nową analizę. BirdNET jest przykładem rozpoznawania dźwięków przez model uczenia maszynowego; publikacja z 2021 r. sprawdzała jego działanie na odrębnych zbiorach, w tym nagraniach pojedynczych gatunków i wielogłosowych pejzażach dźwiękowych. Takie rozdzielenie warunków testu ma znaczenie: wynik uzyskany na czystym sygnale nie jest automatycznie wynikiem dla wiatru, hałasu i nakładających się głosów. W raporcie powinny być podane wersja modelu, sposób weryfikacji oznaczeń i reguły odrzucania błędów. Liczba wykrytych fragmentów dźwięku nie jest samodzielnym oszacowaniem liczby śpiewających ptaków. [218]
Próbka biologiczna: inna droga do historii osobnika
Pióro może przechowywać informację o warunkach, w których rosło. Badania izotopów stabilnych wodoru wykorzystują przestrzenne powiązania pomiędzy opadem, siecią pokarmową i tkanką. Hobson i współautorzy pokazali znaczenie czynników środowiskowych i sposobu życia ptaków dla takiego przypisania. Wynikiem jest prawdopodobny obszar pochodzenia tkanki, a nie odczyt współrzędnych porównywalny z GPS. Potrzebna jest informacja o pierzeniu: pióro znalezione zimą mogło wyrosnąć wcześniej i gdzie indziej. Mapa przypisania powinna pokazywać niepewność oraz założenia dotyczące gatunku i materiału odniesienia. Nie odtwarza automatycznie wszystkich miejsc odwiedzonych po wyrośnięciu pióra. [219]
DNA można pozyskiwać z różnych rodzajów materiału, ale próbki nie są równoważne. W porównaniu wykonanym u Egretta eulophotes badano między innymi krew, wymazy, pióra i odchody. Różniły się ilością materiału oraz podatnością na błędy oznaczania genotypu. Dla czytelnika wniosek jest metodyczny: informacja „wykonano badanie DNA” nie wystarcza. Trzeba zapytać o materiał, kontrolę jakości, powtórzenia i to, czy próbkę można wiarygodnie powiązać z osobnikiem. Metoda ograniczająca niepokojenie ptaka nadal wymaga walidacji laboratoryjnej. Wynik dla jednego gatunku i zestawu markerów nie dowodzi takiej samej skuteczności każdej analizy genetycznej. [220]
Tabela 33. Cztery źródła informacji bez ciągłego śledzenia osobnika
| Materiał | Przykładowe pytanie | Granica interpretacji |
|---|---|---|
| Radar | Kiedy i w jakim kierunku odbywa się intensywny przelot? | Skład gatunkowy wymaga dodatkowych danych. [217] |
| Nagranie | Jakie głosy wystąpiły w okresie rejestracji? | Wynik klasyfikatora wymaga sprawdzenia błędów. [218] |
| Izotopy pióra | Gdzie prawdopodobnie wyrosła badana tkanka? | Przypisanie obszaru nie odtwarza całej podróży. [219] |
| Materiał do analizy DNA | Czy materiał nadaje się do ustalonego badania genetycznego? | Jakość próbki i markerów ogranicza wniosek. [220] |
Każda metoda odpowiada na inny zestaw pytań; wspólna tabela nie oznacza wymienności wyników.
Czy pomiar zmienia badanego ptaka?
Dodatkowe urządzenie może wpływać na ptaka, więc ocena jego działania jest częścią jakości badania. Metaanaliza Brlíka i współautorów uwzględniała także nieopublikowane badania małych ptaków. Autorzy wykazali słaby ujemny wpływ geolokatorów na przeżywalność pozorną, przy czym wyniki modeli uwzględniających pokrewieństwo nie osiągały istotności statystycznej; znaczenie miały również cechy urządzenia i badanego gatunku. Taki obraz nie uzasadnia ani twierdzenia o jednakowej szkodliwości wszystkich znaczników, ani założenia, że każdy jest obojętny. Warto szukać informacji o odpowiednio dobranej grupie porównawczej i o ptakach, których zapisów nie odzyskano. [221]
Rozdział 28Jak czytać statystyki ornitologiczne bez błędnych wniosków
Gatunki, osobniki, indeksy i kategorie ryzyka opisują różne właściwości przyrody. Ich pomieszanie zmienia sens nawet poprawnie przepisanych liczb.
Przed zacytowaniem statystyki warto odtworzyć jej pełne zdanie: co mierzono, gdzie, w jakim okresie, w jakiej grupie i jaką metodą. „Spadek o 20%” bez tych informacji jest niepełny. Może oznaczać zmniejszenie liczby osobników jednego gatunku, wskaźnika wielogatunkowego albo liczby zajętych stanowisk. Żadna z tych wielkości nie jest automatycznie odsetkiem wymarłych gatunków. Równie ważna jest wersja danych: korekta historycznych indeksów może wynikać z uzupełnienia serii lub poprawy metod, a nie ze zmiany tego, co wydarzyło się w terenie. [222]
Indeks pokazuje relację do punktu odniesienia
W indeksie przyjmuje się umowną wartość bazową, na przykład 100. Późniejszy wynik 80 oznacza poziom o 20% niższy od bazy; wynik 120 — o 20% wyższy. Przykład rachunkowy, nie dane o ptakach: przejście z 100 do 80, a następnie do 100, to najpierw spadek o 20%, a później wzrost o 25%. Podstawą drugiego procentu jest 80. Dlatego równych procentowych zmian w przeciwnych kierunkach nie wolno po prostu znosić. Tak samo wzrost o 10 punktów indeksu nie musi oznaczać wzrostu o 10% względem roku poprzedniego.
Zmiana skumulowana między początkiem a końcem okresu nie opisuje przebiegu każdego roku. Przy dużym spadku wieloletniego wskaźnika nie należy rysować prostej, sugerować równomiernego corocznego spadku ani twierdzić, że co roku znikała taka sama część ptaków. Bez rocznych danych można pokazać wielkość zmiany w całym okresie; nie można uzupełniać brakujących punktów pozornie dokładnym wykresem. Roczne tempo równoważne dałoby się obliczyć przy założeniu stałej zmiany proporcjonalnej, lecz byłoby to przekształcenie matematyczne, a nie opis zaobserwowanej historii.
Wskaźnik wielogatunkowy nie jest prostym licznikiem
Wskaźniki wielogatunkowe łączą przebiegi indeksów wielu gatunków. Narzędzia MSI umożliwiają analizę wspólnego przebiegu oraz jego niepewności, również przy różnej długości szeregów. W interpretacji trzeba zachować rozróżnienie między przeciętną względną zmianą a sumą wszystkich osobników. Duży wzrost jednego pospolitego gatunku nie musi równoważyć biologicznie zaniku kilku specjalistów siedliskowych, nawet jeśli pewne zestawienie zbiorcze zmienia się słabo. Wskaźnik jest użytecznym skrótem; ocena konkretnych gatunków wymaga powrotu do danych składowych. [223]
Przy łączeniu szeregów używa się między innymi średnich geometrycznych, które operują zmianami proporcjonalnymi. Wyłącznie ilustracja matematyczna: gdy indeks jednego gatunku zmienia się z 100 na 200, a drugiego ze 100 na 50, ich średnia geometryczna pozostaje na poziomie 100. Oba przebiegi są jednak duże i przeciwne. Zbiorcza stabilność nie oznacza stabilności każdego elementu. To przykład rachunku, nie rekonstrukcja PECBMS ani model rzeczywistej populacji. W badaniach niepewność indeksów gatunkowych przenosi się do niepewności wyniku zbiorczego. [224]
Niepewność jest częścią wyniku
Estymata, czyli oszacowanie, powinna być odróżniona od bezbłędnie znanej wartości. Przedział ufności pomaga ocenić precyzję wyniku uzyskanego daną procedurą. W podejściu częstościowym poziom 95% odnosi się do długookresowej własności procedury tworzenia przedziałów, przy spełnionych założeniach; nie oznacza, że 95% ptaków mieści się między dwiema liczbami. Szeroki przedział może wskazywać, że dane słabo rozstrzygają o wielkości zmiany. Brak statystycznie rozpoznanego trendu nie jest sam w sobie dowodem idealnej stabilności. Wykres bez przedziału nie dowodzi, że niepewność nie istnieje. [224]
Tabela 34. Najczęstsze błędy interpretacji i poprawne odczytanie
| Skrót myślowy | Poprawna interpretacja |
|---|---|
| „Indeks spadł o połowę, więc wymarła połowa gatunków”. | Zmniejszył się wskaźnik względnej liczebności wybranej grupy; wymieranie jest inną miarą. |
| „45% to mniej niż 61%, więc nastąpiła poprawa”. | Najpierw trzeba sprawdzić zgodność grup, dat i sposobu oceny. |
| „Na mapie brak punktów, więc gatunku nie ma”. | Może brakować obserwacji, zgłoszeń albo warunków do wykrycia. |
| „Kategorie zagrożeń muszą sumować się do 100%”. | Ten sam gatunek może podlegać kilku presjom jednocześnie. |
| „Zmiana kategorii zawsze oznacza zmianę populacji”. | Możliwa jest nowa wiedza lub zmiana taksonomii. |
| „Duża baza obserwacji usuwa wszystkie błędy”. | Rozmiar próby nie usuwa automatycznie błędu systematycznego. |
Zasady odczytywania danych; synteza metod i definicji, bez nowego pomiaru terenowego. [212][225][226]

BirdLife odróżnia rzeczywiste zmiany stanu gatunku od zmian oceny wynikających z nowej wiedzy, korekt lub rewizji taksonomicznych. Dlatego porównując raporty, sprawdź historię oceny oraz zgodność definicji, zamiast interpretować każdą różnicę jako nowy proces w przyrodzie. [166]
Procenty, punkty procentowe i pozorna dokładność
Kolejny przykład rachunkowy: jeżeli udział pewnej kategorii zwiększyłby się z 10% do 15%, zmiana wyniosłaby 5 punktów procentowych, a wzrost względny 50%. To dwa poprawne opisy tej samej relacji, lecz nie można zamieniać ich nazw. Nie jest to wynik dotyczący konkretnej populacji. Podobną uwagę należy zachować wobec liczby miejsc po przecinku: wynik obliczony z zaokrąglonych danych wejściowych nie staje się bardziej wiarygodny dzięki zapisowi sześciu cyfr. Precyzja prezentacji powinna odpowiadać precyzji źródła.
Istotne jest również pytanie, czy trend oceniono dla całego szeregu, jego ostatnich lat czy oddzielnych odcinków. Populacja może być niższa niż kilkadziesiąt lat temu, a jednocześnie rosnąć w ostatniej dekadzie. Te stwierdzenia nie są sprzeczne. Narzędzia analityczne pozwalają badać punkty zmiany i porównywać przebiegi przed nimi oraz po nich. W artykule popularnonaukowym wystarczy nazwać oba okresy; ukrycie dat za ogólnym słowem „rośnie” zaciera ważną informację o skali odbudowy. [223]
Rozdział 29Trzy badania pod lupą: od pytania do ograniczonego wniosku
Uczenie się, ekspozycja na pestycyd i kolizje z budynkiem wymagają odmiennych projektów badań. Wspólna jest dyscyplina interpretacji.
Wartościowa lektura publikacji polega na odtworzeniu związku między pytaniem a zebranym materiałem. Przedstawione poniżej prace nie tworzą rankingu odkryć ani zestawienia porównywalnych „wyników ptaków”. Są przykładami trzech konstrukcji dowodu: wprowadzenia nowego zachowania do grupy, kontrolowanej ekspozycji połączonej z obserwacją migracji oraz modelowania wieloletnich zdarzeń. Przy każdej z nich trzeba oddzielić to, co zarejestrowano, od tego, co wynika z analizy. Zamiast pytać tylko, czy wynik jest efektowny, można sprawdzić, jakie alternatywne wyjaśnienia ograniczył projekt i których nadal nie wyklucza.
1. Bogatki: demonstrator, sieć społeczna i wiele rozwiązań zadania
W pracy opublikowanej w 2015 r. Aplin i współautorzy badali rozprzestrzenianie sposobów zdobywania pokarmu u bogatek Parus major. Projekt obejmował osiem subpopulacji: pięć z wytrenowanymi demonstratorami i trzy kontrolne. W każdej z pięciu grup doświadczalnych dwa ptaki znały jeden z dwóch sposobów rozwiązania zadania. Automatyczna rejestracja łączyła wizyty z oznakowanymi osobnikami. Łącznie odnotowano 414 ptaków potrafiących rozwiązać zadanie i 57 909 rozwiązań. Lokalne preferencje odpowiadały wprowadzonej technice i utrzymywały się w czasie. Jest to dowód społecznego przekazywania zachowania w określonym układzie, a nie pomiar uniwersalnego „ilorazu inteligencji” gatunku. [227]
Jak czytać ten wynik? Oddziel ptaka od zdarzenia i grupę doświadczalną od pojedynczej wizyty. Wielokrotne rozwiązania są informacją o powtarzalności i utrzymywaniu zachowania; nie stają się tysiącami niezależnych demonstracji uczenia u nowych osobników. Kontrola bez wytrenowanego demonstratora pomaga ocenić, ile rozwiązań może pojawić się przez samodzielne odkrycie zadania. Gdyby w popularnym opisie pozostała tylko duża liczba operacji, zniknąłby najważniejszy element badania: porównanie historii grup. To zastosowanie ogólnej zasady odróżniania powtórzeń pomiaru od niezależnych jednostek eksperymentalnych. [228]
2. Migranci: ekspozycja, odzyskiwanie zapasów i termin odlotu
Eng, Stutchbury i Morrissey połączyli w pracy z 2019 r. eksperymentalną ekspozycję ptaków Zonotrichia leucophrys na imidaklopryd z automatyczną radiotelemetrią podczas postoju migracyjnego. Obserwowali ograniczenie pobierania pokarmu oraz utratę masy i tłuszczu. W grupie otrzymującej większą dawkę mediana pobytu po ekspozycji była o 3,5 dnia dłuższa niż w grupie kontrolnej. Projekt połączył pomiar fizjologicznych następstw z późniejszą decyzją o odlocie. Nie jest to bezpośredni pomiar liczby ptaków, które zginęły wskutek pestycydów w skali kontynentu, ani dowód jednakowej reakcji każdego gatunku na każdy preparat. [229]
Jak czytać ten wynik? Rozdziel trzy pytania: czy ekspozycja wpływała na badany organizm, czy zmieniła termin odlotu i czy przełożyła się na przyszły sukces rozrodczy. Odpowiedź na wcześniejsze pytanie nie zastępuje automatycznie pomiaru kolejnego etapu. Nie należy również odwracać wniosku: zaobserwowany długi postój nie staje się rozpoznaniem zatrucia u przypadkowego ptaka. W opisie warto sprawdzić moment rozpoczęcia obserwacji, definicję odlotu i sposób traktowania utraconych sygnałów. Są to pytania o dowód, a nie założenie, że badanie popełniło błąd. Pozwalają dopasować język publikacji popularnej do rzeczywistego zakresu eksperymentu.
3. Kolizje: długi szereg, jeden budynek i model scenariusza
Van Doren i współautorzy połączyli dane o kolizjach przy McCormick Place Lakeside Center w Chicago z oświetleniem, warunkami atmosferycznymi i natężeniem migracji. Analiza opublikowana w 2021 r. obejmowała 21 lat, od 2000 do 2020 r., i 11 567 śmiertelnych kolizji. Model wskazywał znaczenie oświetlenia i warunków przelotu. Autorzy oszacowali, że ograniczenie rozświetlonej powierzchni okien do najniższych historycznie odnotowanych poziomów mogłoby zmniejszyć śmiertelność w tym miejscu o około 60%. Ten procent jest wynikiem konkretnego scenariusza modelowego, nie gwarantowanym efektem wyłączenia dowolnych świateł w każdym mieście. [230]
Jak czytać ten wynik? Trzeba rozróżnić obserwowane zdarzenia od przewidywania po zmianie warunków. Wieloletniość pomaga opisać zmienność, lecz jeden budynek pozostaje jednym miejscem o określonej bryle, otoczeniu i położeniu. Kolejny projekt może sprawdzać, czy zależność działa także w innych obiektach. Porównanie przed zmianą i po niej warto uzupełnić obszarami odniesienia oraz powtórzeniami w czasie: umożliwia to oddzielanie skutku interwencji od szerszej zmiany warunków. Właśnie taką potrzebę odpowiedniej replikacji przestrzennej rozwija metodologia badań oddziaływań środowiskowych. [231]
Tabela 35. Co jest wynikiem, a co byłoby nadmiernym uogólnieniem?
| Badanie | Jednostka i wynik | Nieuprawnione rozszerzenie |
|---|---|---|
| Aplin i in., 2015 | 414 osobników; 57 909 rozwiązań zadania. [227] | 57 909 niezależnych ptaków albo miara całej ptasiej inteligencji. |
| Eng i in., 2019 | Różnica median postoju: 3,5 dnia, większa dawka względem kontroli. [229] | Wszyscy migranci opóźniają podróż dokładnie o tyle samo. |
| Van Doren i in., 2021 | 21 lat jednego obiektu; około 60% redukcji w określonym scenariuszu. [230] | Taki sam efekt procentowy dla każdego budynku i każdej interwencji. |
Porównanie konstrukcji dowodu, a nie porównanie wielkości efektów biologicznych.
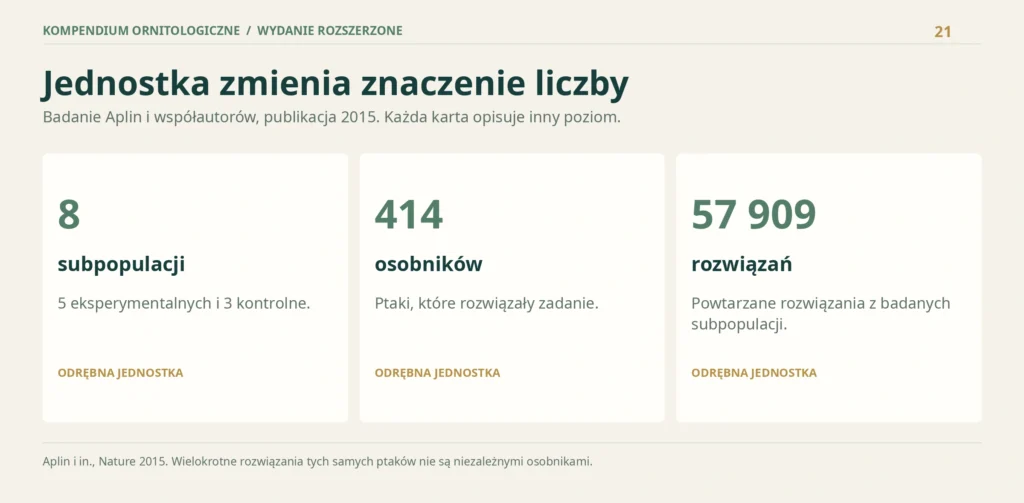
Dlaczego tych trzech prac nie da się sprowadzić do jednego procentu?
W pierwszym przykładzie osią analizy są jednostki społeczne i rozpowszechnianie zachowania, w drugim reakcja po przypisanej ekspozycji, w trzecim powtarzające się zdarzenia powiązane z warunkami. Każda liczba ma inną jednostkę. Próba zbudowania z nich zbiorczego wykresu „wpływu na ptaki” wytworzyłaby pozorną porównywalność. Użyteczniejsza jest wspólna karta odczytu: pytanie, sposób pomiaru, niezależna jednostka, porównanie, wynik, niepewność i granica przenoszenia wniosku. Taki układ pomaga także wtedy, gdy kolejna publikacja podaje inne wartości: najpierw sprawdza się różnice projektu, a dopiero potem ocenia zgodność biologicznego wyjaśnienia.
Rozdział 30Jak samodzielnie ocenić publikację ornitologiczną?
Praktyczna ścieżka od tytułu do metod, danych i wniosku. O jakości decyduje zgodność tych elementów, nie sama liczba statystycznych oznaczeń.
Przed lekturą warto zapisać jednym zdaniem, czego chcemy się dowiedzieć: czy dany gatunek wykorzystuje siedlisko, czy zmniejsza się jego liczebność, czy określone działanie poprawia wynik lęgu? Są to różne cele. Artykuł może być bardzo dobry w odpowiedzi na jedno z tych pytań i nie zawierać danych do pozostałych. Krytyczne czytanie nie polega na szukaniu powodu do odrzucenia każdej pracy. Polega na ustaleniu, jak daleko można bezpiecznie przenieść wniosek poza opisany materiał. Tę ocenę najlepiej rozpocząć przed porównywaniem efektownych liczb z abstraktu.
Najpierw jednostka analizy i sposób doboru próby
Jednostką eksperymentalną może być osobnik, gniazdo, grupa lub obszar, zależnie od tego, gdzie przypisano badany czynnik. Przykład dydaktyczny: wielokrotne nagrania z jednego karmnika dają wiele pomiarów, lecz nie wiele niezależnych karmników. Błąd pojawia się wtedy, gdy analizuje się je tak, jakby każde stanowiło niezależne powtórzenie całego doświadczenia. To podstawowy problem pseudoreplikacji opisany przez Hurlberta. Dla czytelnika praktyczne pytanie brzmi: które jednostki mogłyby otrzymać inny wariant badania i ile takich jednostek faktycznie porównano? [228]
Nie istnieje jedna liczebność próby, po której każdy wynik staje się wiarygodny. Lakens pokazuje, że uzasadnienie próby powinno odpowiadać celowi: oszacowaniu efektu z potrzebną precyzją, wykryciu interesującej różnicy albo rozpoznaniu granic informacji przy danych zasobach. Duża próba nie usuwa automatycznie błędnego doboru stanowisk. Mała próba nie jest bezwartościowa, jeśli opisuje rzadkie zdarzenie i zachowuje właściwy zakres. Należy jednak unikać mocnego twierdzenia o braku efektu, gdy przedział oszacowania pozostaje zgodny zarówno z niewielką zmianą, jak i z istotną biologicznie różnicą. [232]
Eksperyment, obserwacja i pytanie o przyczynę
Wytyczne ARRIVE 2.0 podkreślają raportowanie projektu, zasad włączenia i wyłączenia danych, randomizacji, zaślepienia i wyników. Randomizacja dotyczy sposobu przypisywania jednostek do porównywanych warunków; zaślepienie ogranicza możliwość dostosowania oceny do wiedzy o grupie. Nie każdą pracę terenową da się zaprojektować tak samo. W artykule obserwacyjnym warto natomiast szukać wyjaśnienia, jakie czynniki mogły łączyć się zarówno z ekspozycją, jak i z wynikiem. Samo dopisanie wielu zmiennych do modelu nie dowodzi, że wszystkie alternatywne wyjaśnienia zostały usunięte. [233]
Ilustracja logiczna, nie opis konkretnego badania: w miejscu, gdzie odtworzono mokradło, wzrosła liczba stwierdzeń ptaków. Czy zmiana wynika z prac, wyjątkowo dogodnego sezonu, większej liczby kontroli, czy połączenia tych przyczyn? Potrzebne są porównania odpowiadające temu pytaniu. Układ „przed i po” z obszarami odniesienia pozwala oddzielać część zmian wspólnych dla krajobrazu. Więcej niż jeden obszar odniesienia pomaga ocenić naturalne różnice między miejscami. Nie tworzy to automatycznie doskonałego eksperymentu, lecz wzmacnia podstawę porównania. [231]
Tabela 36. Pięć pytań, które warto zadać metodom
| Pytanie | Gdzie szukać odpowiedzi | Dlaczego ma znaczenie |
|---|---|---|
| Co było jednostką badania? | Opis próby i struktura analizy. | Zapobiega myleniu powtórzeń pomiaru z niezależnymi replikami. [228] |
| Dlaczego taka liczebność próby? | Uzasadnienie planu lub ograniczeń danych. | Pozwala ocenić precyzję i zakres możliwych wniosków. [232] |
| Jak przydzielano warunki i oceniano wynik? | Randomizacja, zaślepienie, protokół. | Ujawnia mechanizmy ograniczania stronniczości. [233] |
| Jakie dane odrzucono? | Kryteria włączenia i wyłączenia. | Umożliwia ocenę wpływu selekcji rekordów. [233] |
| Co działo się poza miejscem interwencji? | Obszary i okresy odniesienia. | Pomaga oddzielać lokalny efekt od szerszej zmiany. [231] |
Autorska karta czytania publikacji oparta na wskazanych zasadach projektowania i raportowania.

Przeżywalność pozorna: dlaczego brak powrotu nie zawsze oznacza śmierć
W danych ponownych spotkań osobnik może nie zostać wykryty, ponieważ zginął, wyemigrował lub pozostał niezauważony. Standardowy model Cormacka–Jolly’ego–Sebera rozdziela prawdopodobieństwo ponownego spotkania od przeżywalności pozornej, ale sama ta ostatnia łączy przeżycie z pozostaniem w badanym obszarze. Schaub i Royle pokazali, jak dodatkowa informacja przestrzenna może pomóc w rozdzielaniu procesów, z zachowaniem założeń modelu. Zdanie „przeżywalność wynosi…” wymaga więc sprawdzenia definicji parametru. Spadek lokalnych powrotów może być ważnym sygnałem zmiany, lecz nie powinien automatycznie stawać się procentem zmarłych ptaków. [234]
Wartość p, wielkość efektu i wynik nierozstrzygający
ASA przypomina, że wartość p opisuje zgodność danych z określonym modelem statystycznym; nie jest prawdopodobieństwem prawdziwości badanej hipotezy. Nie mierzy też wielkości ani biologicznego znaczenia efektu. Dlatego należy czytać oszacowanie wraz z jednostką, niepewnością i kontekstem. Niewielka różnica może uzyskać małą wartość p w obszernej próbie, a istotna praktycznie zmiana pozostawać słabo oszacowana w krótkim badaniu. Przekroczenie umownego progu nie zastępuje oceny jakości projektu. Brak jego przekroczenia nie stanowi samodzielnego dowodu identyczności porównywanych grup. [235]
Wynik nierozstrzygający może być użyteczny, jeśli pokazuje, czego dostępne dane nie potrafią odróżnić. Przed interpretacją „nie znaleziono związku” należy sprawdzić, czy analizowana skala odpowiada biologicznemu pytaniu. Sezonowy pomiar nie zawsze opisze krótkotrwałe zdarzenie, a średnia dla wielu miejsc może ukrywać odmienne kierunki lokalnych zmian. To pytania o dopasowanie podsumowania do celu, nie powód do dowolnego poszukiwania podgrupy z atrakcyjnym wynikiem. Jasne rozróżnienie analizy zaplanowanej i późniejszej eksploracji ułatwia uczciwą interpretację materiału. [235][232]
Czy da się przejść od publikacji do jej danych?
Zasady FAIR odnoszą się do odnajdywania danych, uzyskiwania dostępu, ich zgodnego odczytu oraz ponownego wykorzystania. W praktyce oznacza to potrzebę identyfikatora zbioru, opisu zmiennych, jednostek, wersji i warunków użycia. Sam załącznik z liczbami nie wystarcza, jeżeli nie wiadomo, co oznaczają puste pola albo które rekordy dotyczą tego samego osobnika. Dostęp może podlegać uzasadnionym ograniczeniom; FAIR nie oznacza, że wszystkie pliki muszą być publicznie dostępne bez warunków. Czytelny opis procedury dostępu i metadanych pozwala nadal ocenić, jaki materiał istnieje. [236]
Tabela 37. Karta lektury do własnego uzupełnienia
| Pole | Co zapisać po przeczytaniu publikacji |
|---|---|
| Pytanie | Jedno zdanie określające, co autorzy rzeczywiście sprawdzali. |
| Zakres | Gatunek lub grupa, miejsce, okres, etap życia i jednostka próby. |
| Pomiar | Rejestrowana wielkość oraz przekształcenia potrzebne do uzyskania wyniku. |
| Porównanie | Grupy, okresy lub modele, względem których oceniano różnicę. |
| Wynik | Wartość z jednostką i podaną przez autorów niepewnością. |
| Granica | Najważniejsze założenie i najbliższe nieuprawnione uogólnienie. |
| Sprawdzalność | Adres publikacji, korekt, danych i kodu, jeżeli je udostępniono. |
Własny formularz redakcyjny. Nie przypisuje publikacji punktowej oceny jakości.
Po wypełnieniu takiej karty można napisać własne podsumowanie bez dopisywania informacji, których praca nie zawiera. Jeśli nie podano przedziału, nie należy go rekonstruować z wyglądu wykresu. Jeśli opis metody jest niepełny, zapis „nie udało się ustalić” jest poprawnym wynikiem lektury. Przy pozornym konflikcie publikacji najpierw porównaj definicje: czy dotyczą tego samego gatunku, okresu, jednostki, dawki, środowiska i parametru? Dwie rzetelne prace mogą odpowiadać na różne pytania. Profesjonalna synteza zachowuje te różnice zamiast wygładzać je do jednego stanowczego zdania.
Rozdział 31Stan ptaków świata: trendy populacji i ryzyko wymarcia
Globalne oceny są syntezą tysięcy informacji. Warto odczytywać równolegle kierunek zmian i poziom zagrożenia.
W aktualizacji IUCN opublikowanej 10 października 2025 r. wskazano, że 61% gatunków ptaków ma malejące populacje, a 1256 gatunków jest globalnie zagrożonych wyginięciem. Komunikat dotyczy zakończenia ósmej kompleksowej oceny światowej awifauny przez BirdLife i używa zbioru 11 185 ocenionych gatunków. Nie jest to ta sama lista ani ta sama wersja taksonomii co AviList v2026. Liczba 1256 nie została więc podzielona przez liczbę gatunków z rozdziału taksonomicznego w celu stworzenia pozornie jednolitego odsetka. [237]
Kategoria IUCN opisuje ryzyko wymarcia, a trend — kierunek zmian liczebności. Ocena uwzględnia m.in. wielkość i tempo spadku populacji oraz zasięg. Lokalna obfitość nie przesądza o bezpieczeństwie gatunku. [238]
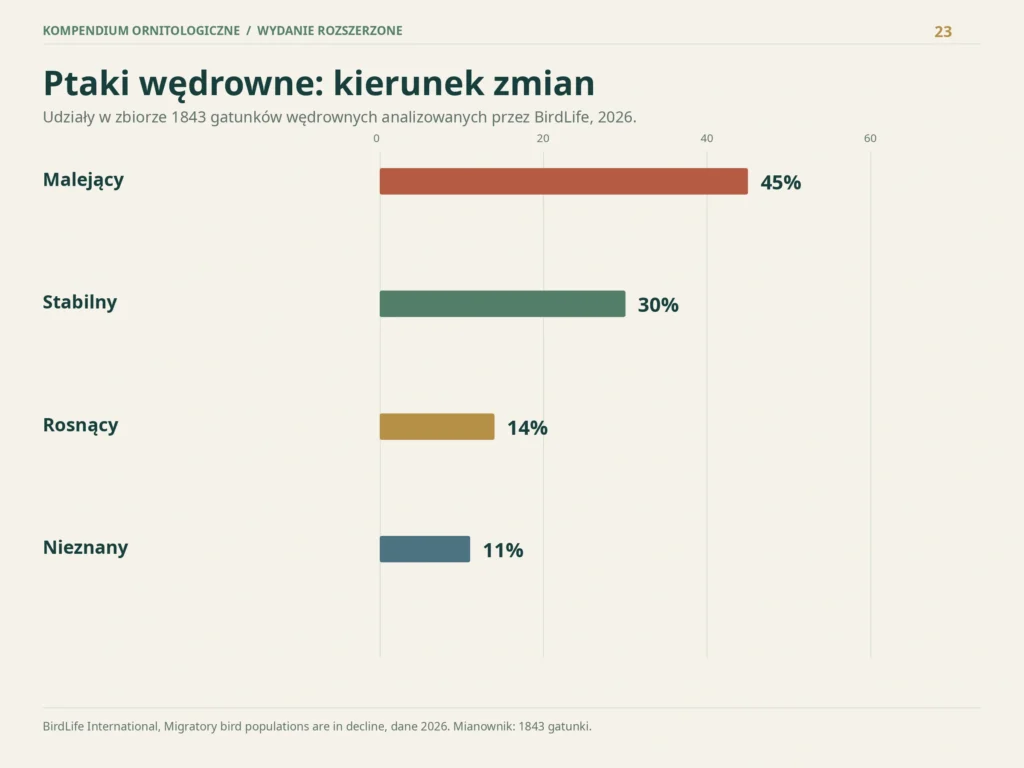
Gatunki wędrowne: odrębna analiza z 2026 roku
W syntezie BirdLife z 2026 r. analizowano 1843 gatunki wędrowne. Trend malejący przypisano 45%, stabilny 30%, rosnący 14%, a nieznany 11%. Ostatnia kategoria oznacza niedostatek wiedzy o kierunku zmian, nie ukryte założenie stabilności. Odsetki są zaokrąglone; mnożenie ich przez 1843 i zaokrąglanie wyniku nie odtworzy wiarygodnie dokładnej liczby gatunków w każdej kategorii. Mniejszy udział trendów malejących niż w globalnej ocenie wszystkich ptaków nie dowodzi poprawy między 2025 a 2026 r., ponieważ porównuje różne zbiory. [239]
Tabela 38. Trendy globalnych populacji gatunków wędrownych
| Kierunek trendu | Udział gatunków | Zakres |
|---|---|---|
| Malejący | 45% | 1843 gatunki wędrowne; synteza 2026 |
| Stabilny | 30% | Ten sam zbiór |
| Rosnący | 14% | Ten sam zbiór |
| Nieznany | 11% | Ten sam zbiór |
BirdLife International 2026; wartości zaokrąglone. [239]
Wędrówka łączy los populacji z wieloma regionami. Ptak może mieć dobrze chronione lęgowisko, lecz tracić żerowiska w czasie przelotu, ginąć w przyłowie albo napotykać degradację siedlisk poza okresem lęgowym. Ocena wyłącznie jednego kraju często nie obejmuje wszystkich ograniczeń. Ochrona szlaków wędrówkowych polega zatem na utrzymywaniu funkcjonalnej sieci miejsc rozrodu, postoju i pobytu pozalęgowego oraz na ograniczaniu presji między nimi. To wniosek dotyczący całego cyklu życia, a nie tylko odcinka drogi z widocznymi koncentracjami ptaków. [240]
Co oznaczają oznaczenia IUCN?
Tabela 39. Kategorie IUCN stosowane w globalnych ocenach gatunków
| Kod | Polska nazwa | Znaczenie w skrócie |
|---|---|---|
| LC | Najmniejszej troski | Nie kwalifikuje się do wyższych kategorii zagrożenia. |
| NT | Bliski zagrożenia | Blisko spełnienia kryteriów zagrożenia. |
| VU | Narażony | Wysokie ryzyko wymarcia na wolności. |
| EN | Zagrożony | Bardzo wysokie ryzyko wymarcia na wolności. |
| CR | Krytycznie zagrożony | Skrajnie wysokie ryzyko wymarcia na wolności. |
| EW | Wymarły na wolności | Przetrwał wyłącznie poza naturalnym dzikim występowaniem. |
| EX | Wymarły | Nie ma uzasadnionych wątpliwości, że zginął ostatni osobnik. |
| DD | Niedostateczne dane | Brak danych wystarczających do bezpośredniej lub pośredniej oceny. |
| NE | Nieoceniony | Nie poddano ocenie według kryteriów. |
Skrócone definicje IUCN; „zagrożone” zbiorczo oznacza VU, EN i CR. [238]

DD i NE nie są łagodnymi stopniami zagrożenia. Opisują stan wiedzy lub oceny. Przy obliczaniu udziałów trzeba sprawdzić, które kategorie weszły do mianownika i jak źródło traktuje niepewność. IUCN publikuje statystyki wraz z uwagami metodologicznymi właśnie po to, by ograniczać porównania niezgodnych zestawów. Brak oceny albo danych może uzasadniać dodatkowe badania, ale nie upoważnia do samodzielnego nadania kategorii na podstawie kilku obserwacji lub ogólnego wrażenia. [241]
Red List Index przedstawia zmianę zbiorczego ryzyka wymarcia z uwzględnieniem rzeczywistych zmian stanu gatunków. Pomija przesunięcia kategorii wywołane wyłącznie poprawą wiedzy lub rewizją taksonomii. Dzięki temu lepiej nadaje się do porównań czasowych niż prosta różnica między liczbą gatunków w kolejnych tabelach. Nadal jest inną miarą niż liczebność ptaków czy powierzchnia ich siedlisk. Użycie kilku miar pozwala dostrzec problemy, które jedna linia na wykresie mogłaby ukryć. [225]
Aktualizacja globalnej oceny nie jest jednoczesnym spisem każdego ptaka na Ziemi. W komunikacie z 2025 r. opisano ponowne oceny 1360 gatunków oraz zakończenie pełnego cyklu pracy obejmującego wszystkie gatunki, prowadzonego przez ekspertów przez dziewięć lat. Oznacza to syntezę dowodów o różnym charakterze i wieku. Data publikacji określa moment udostępnienia oceny, nie jedną wspólną datę pomiaru w terenie. Dobrze udokumentowana synteza pozostaje bardzo użyteczna, jeśli nie przypisujemy jej dokładności i jednoczesności, których nie deklaruje. [237]
Rozdział 32Europa i Polska: co mierzą regionalne raporty?
Wynik dla kontynentu, Unii Europejskiej i kraju może się różnić bez sprzeczności między badaniami.
Aktualizacja PECBMS z 2025 r. obejmuje europejskie wskaźniki pospolitych ptaków lęgowych do 2024 r., liczone osobno dla wszystkich uwzględnionych gatunków, ptaków krajobrazu rolniczego i ptaków leśnych. Są to wielogatunkowe miary względnej liczebności. Spadek wskaźnika nie oznacza wymarcia części gatunków ani identycznego spadku każdej populacji, a aktualne wartości publikuje PECBMS w zestawieniu wskaźników. [242]
Grupy siedliskowe są narzędziem analizy. Nie obejmują każdego ptaka, którego kiedykolwiek widziano w lesie albo na polu. Klasyfikację dobrano do budowania porównywalnych wskaźników, a zestaw wszystkich gatunków jest szerszy niż dwie wyróżnione grupy. Nie należy sumować liczby gatunków leśnych i rolniczych i uznawać wyniku za pełny skład awifauny kontynentu. W raportach trzeba również odróżniać liczbę gatunków z wyznaczonymi trendami od liczby gatunków ostatecznie włączonych do danego wskaźnika. [244]
Europa i Unia Europejska nie są zamiennymi etykietami. PECBMS publikuje oddzielne warianty geograficzne oraz szeregi regionalne. Różnica zasięgu analizy wpływa na zestaw danych krajowych, a niekiedy również na okres porównania. Informacja „europejskie ptaki” w tytule prasowym nie wystarcza więc do ustalenia, który wiersz tabeli przywołano. Podczas aktualizacji grafiki należy przepisać wspólnie wartość, okres i region, zamiast wymieniać samą liczbę. [222]
Polska: krajowy monitoring i krajowa czerwona lista
Monitoring Ptaków Polski obejmuje programy dostosowane do gatunków i środowisk, dlatego liczby z ich raportów nie zawsze są bezpośrednio porównywalne. Ten sam rok może przynieść informację o parach lęgowych jednego gatunku, osobnikach zimujących innego oraz indeksie liczebności trzeciego. Każdy z tych wyników jest użyteczny, jeżeli czytamy jego definicję. Porównanie wymaga zgodności sezonu i jednostki, a zestawianie ptaków lęgowych z przelotnymi może podwójnie liczyć biologicznie różne populacje. [211][207]
Czerwona lista ptaków Polski z 2020 r. wskazuje 47 gatunków zagrożonych, w tym 12 krytycznie zagrożonych. Opracowanie wykorzystywało około 1,4 mln obserwacji z lat 2010–2019, głównie z Monitoringu Ptaków Polski i portalu Ornitho.pl. Te liczby opisują konkretną opublikowaną ocenę. Nie przemianowano ich na „stan 2026” tylko dlatego, że kompendium sprawdzono w 2026 r. Ocena wskazuje też, że zagrożenie może dotyczyć gatunków dobrze znanych, a nie wyłącznie ptaków wyjątkowo rzadko spotykanych przez obserwatorów. [245]
Ocena regionalna odpowiada na pytanie o ryzyko zaniku w danym regionie. Gatunek może być zagrożony w Polsce, a globalnie należeć do kategorii najmniejszej troski. Może też mieć odwrotny układ: krajowe stanowiska pozostają ważną ostoją gatunku zagrożonego w szerszej skali. Regionalne wytyczne IUCN przewidują analizę relacji z populacjami poza granicami ocenianego obszaru. Dlatego obok kategorii zawsze należy podać zasięg i datę oceny. Sam skrót „EN” bez informacji „globalnie” albo „w Polsce” pozostawia istotną niejasność. [246]
Zestawienie tych raportów prowadzi do praktycznej zasady redakcyjnej: dobrze jest zachować kilka równoległych odpowiedzi zamiast szukać jednej liczby mówiącej, „ile ptaków zostało”. Lista krajowa opisuje stwierdzenia gatunków, monitoring śledzi populacje, czerwona lista porządkuje ryzyko, a wskaźnik siedliskowy podsumowuje reakcję wybranej grupy. Żaden z tych produktów nie zastępuje pozostałych. Rzetelne porównanie może wyjaśnić ich różnicę, bez przeliczania niezgodnych jednostek na wspólny, lecz biologicznie pusty procent.
Różnica między regionem a światem ma także wymiar praktyczny. Lokalna populacja może zależeć od osobników przybywających z zewnątrz; stan populacji źródłowych wpływa wtedy na perspektywę jej utrzymania. Granica administracyjna nie zamyka procesów demograficznych. Z drugiej strony zanik na skraju zasięgu nie oznacza automatycznie takiego samego zagrożenia dla całego gatunku. Regionalne wytyczne służą uporządkowaniu tych relacji. W profesjonalnym opisie unika się ocen typu „gatunek bezpieczny”, dopóki nie wskazano skali i kryterium, według których takie stwierdzenie miałoby być prawdziwe. [246]
Rozdział 33Dlaczego ptaki zanikają? Presje, mechanizmy i nakładanie zagrożeń
Zagrożenia działają poprzez utratę zasobów, ograniczenie rozrodu i wzrost śmiertelności. Zwykle współwystępują.
Analiza BirdLife opublikowana w aktualizacji z 2025 r. wskazuje pięć rozpowszechnionych presji na globalnie zagrożone ptaki; wartości podaje tabela. Kategorie nakładają się: opisują odsetki zagrożonych gatunków, nie udziały w śmiertelności. [226]
Tabela 41. Presje dotyczące globalnie zagrożonych gatunków
| Presja | Odsetek | Jak odczytywać |
|---|---|---|
| Rolnictwo | 73% | Udział zagrożonych gatunków dotkniętych presją |
| Pozyskiwanie drewna | 50% | Kategorie mogą się nakładać |
| Obce gatunki inwazyjne | 43% | Nie jest to odsetek wszystkich ptaków świata |
| Polowania i chwytanie | 41% | Nie jest to udział w całej śmiertelności |
| Zmiana klimatu | 37% | Analiza opublikowana w aktualizacji 2025 |
BirdLife International, State of the World’s Birds 2025 Update. [226]

Rolnictwo: ważny jest sposób gospodarowania
Zależność między ptakami a rolnictwem nie polega na tym, że każdy teren użytkowany przez człowieka jest bezwartościowy. Mozaika pól, miedz, łąk i zadrzewień może dostarczać różnych zasobów. Problemem jest między innymi intensyfikacja zmieniająca dostępność pokarmu i warunki rozrodu. Badanie Rigala i współautorów z 2023 r. zestawiło szeregi 170 gatunków z ponad 20 tys. stanowisk w 28 państwach europejskich, obejmujące 37 lat. Autorzy wskazali szczególnie silny negatywny wpływ intensywnego rolnictwa, opisywanego wysokim użyciem pestycydów i nawozów. [247]
Taki wynik nie jest pozwoleniem na przypisanie każdej lokalnej zmiany jednemu zabiegowi. Analiza kontynentalna identyfikuje wzorce i czynniki działające w dużej skali; diagnoza konkretnego stanowiska wymaga danych o uprawach, terminach prac, hydrologii, roślinności i demografii ptaków. Można zatem równocześnie uznać znaczenie intensyfikacji i zachować ostrożność wobec uproszczonej tezy „ten jeden oprysk spowodował cały regionalny spadek”. Skala wniosku powinna odpowiadać skali badania. [247]
Las i mokradło: powierzchnia nie mówi wszystkiego
Dla ptaków leśnych znaczenie ma struktura drzewostanu: obecność starych drzew, miejsc lęgowych, warstw roślinności i zasobów pokarmowych. Pozyskanie drewna może oddziaływać także wtedy, gdy teren formalnie nadal pozostaje lasem, a później pojawia się na nim nowe pokolenie drzew. Część gatunków nie toleruje nawet selektywnego usuwania ważnych elementów siedliska. Dlatego wzrost powierzchni pokrytej drzewami nie dowodzi automatycznie odtworzenia jakości starego lasu ani poprawy warunków wszystkich specjalistów. [248]
Na mokradłach kluczowe są warunki wodne i roślinność. Osuszenie może zmienić pokarm i ukrycie, a zaniechanie odpowiedniego użytkowania niektórych półnaturalnych siedlisk prowadzi do ich zarastania. Ochrona wodniczki pokazuje potrzebę dostosowania działań do konkretnego siedliska i fazy sezonu. Samo hasło „nie ingerować” nie rozwiązuje wszystkich problemów krajobrazu ukształtowanego przez długotrwałe użytkowanie. Równie nieskuteczna może być interwencja wykonana bez diagnozy, w złym terminie lub przy nieodpowiednim poziomie wody. [249]
Inwazje biologiczne i zmiana klimatu
Na odizolowanych wyspach wprowadzone ssaki drapieżne mogą silnie ograniczać przeżywalność i sukces rozrodu ptaków, które ewoluowały bez takiej presji. Oddziaływanie obcych organizmów nie ogranicza się do drapieżnictwa: obejmuje także zmianę siedlisk, konkurencję i choroby. „Obcy” i „inwazyjny” nie są jednak synonimami — decydują skutki i kontekst. Działania zapobiegawcze oraz odpowiednio zaplanowana kontrola muszą uwzględniać ryzyko dla gatunków rodzimych i późniejsze ponowne zawleczenie. [250]
Zmiana klimatu może przesuwać zasięgi, modyfikować warunki na zimowiskach i rozstrajać synchronizację lęgów z dostępnością pokarmu. Jej wpływ nie ma wszędzie tego samego kierunku: pojedyncze gatunki mogą rozszerzać zasięg, gdy inne tracą odpowiednie siedliska. Dla migrantów liczy się zgodność warunków w kilku częściach cyklu rocznego. Fragmentacja ogranicza możliwość przemieszczania się do nowo odpowiednich obszarów. Prognoz zależnych od scenariusza emisji nie należy przedstawiać jako pewnej liczby ptaków, która pozostanie w konkretnym roku. [251]
Presje mogą wzmacniać się wzajemnie. Wniosek mechanistyczny: utrata części żerowisk ogranicza możliwości przeniesienia się, gdy inne miejsca dotknie susza, a brak miejsc postoju utrudnia zmianę strategii podczas niekorzystnej pogody. Z tego powodu ochrona wyłącznie aktualnie najliczniej używanego stanowiska może pozostawić populację bez rezerwy w gorszym roku. Raporty klimatyczne BirdLife podkreślają współdziałanie zmian klimatu i fragmentacji. Ocena przyszłego ryzyka powinna obejmować dostępność alternatywnych siedlisk, a nie tylko dzisiejszą liczbę ptaków w najważniejszej ostoi. [251]
Przy inwazjach biologicznych liczy się trwałość rezultatu. Usunięcie presji z jednego miejsca nie zwalnia z monitorowania ponownego pojawienia się problemu ani z oceny innych ograniczeń populacji. Nie każdy projekt kontroli jest odpowiedni wszędzie, a zastosowana metoda może wymagać szczególnych kompetencji, organizacji i zgód. Dlatego informacja o skutecznej interwencji na odległej wyspie jest dowodem możliwości działania, lecz nie instrukcją samodzielnego postępowania wobec zwierząt w przydomowym ogrodzie. Najpierw potrzebna jest diagnoza lokalnego problemu i dobór legalnej, proporcjonalnej metody. [250]
Rozdział 34Trzy studia przypadków: jak środowisko zmienia losy ptaków
Synchronizacja sezonowa, ciągłość siedlisk i dostęp do pokarmu działają przez różne etapy życia. Skuteczność działania trzeba mierzyć na właściwym poziomie.
Praktyka ochrony staje się bardziej precyzyjna, kiedy łączy opis presji z mechanizmem oraz mierzalnym wynikiem. „Brakuje pokarmu” może znaczyć zbyt małą ilość w całym sezonie, zbyt krótki okres dostępności albo trudność w dotarciu do zasobu. „Fragmentacja” może zmieniać warunki wewnątrz pozostałego lasu i możliwość przemieszczania między płatami. Poniższe przypadki pokazują trzy odrębne drogi badania takich zależności. Nie są rankingiem najważniejszych zagrożeń na świecie, lecz zestawem przykładów, w których można prześledzić przejście od pytania do ograniczonego wniosku.
Przypadek 1. Muchołówka żałobna i niedopasowanie do szczytu pokarmu
Muchołówka żałobna Ficedula hypoleuca jest migrantem dalekodystansowym. Both i współautorzy porównali dziewięć populacji w Holandii, opisując w publikacji z 2006 r. związek zmian liczebności z terminem dostępności pokarmu dla piskląt. W miejscach z wczesnym szczytem pokarmu, gdzie lęgi były niedopasowane do tego okna, spadki w analizowanym okresie około dwóch dekad sięgały około 90%. Wynik nie oznacza, że o tyle zmalała cała światowa populacja gatunku, ani że taki procent opisuje dowolny las Europy. Zakres dziewięciu populacji i różnica między miejscami stanowią sedno interpretacji. [252]
Wcześniejsza praca Botha i Vissera z 2001 r. analizowała terminy przylotu i lęgów w holenderskiej populacji w latach 1980–2000. Ptaki przyspieszały składanie jaj, ale termin przylotu ograniczał zakres dostosowania. Mechanizm nie sprowadza się więc do stwierdzenia, że migrant „nie reaguje na temperaturę”. Poszczególne etapy jego cyklu mogą odpowiadać w różnym tempie. Po przylocie pozostaje ograniczony czas na przygotowanie lęgu, a zapotrzebowanie rosnących piskląt musi nałożyć się na dostępność odpowiedniego pokarmu. [253]
Z tych badań wynika ważne pytanie terenowe: czy należy mierzyć całosezonową ilość pożywienia, czy jego dostępność w konkretnym momencie rozwoju młodych? Dwie lokalizacje z podobną roczną produkcją bezkręgowców mogą różnić się terminem ich największej dostępności. To uzasadnienie zbierania danych o czasie, nie dowód na rzeczywiste wartości w niebadanym miejscu. Podobnie wcześniejsze złożenie jaj nie jest automatycznie pełnym wyrównaniem niedopasowania. Trzeba znać terminy pokarmu i etapy rozwoju. Bez nich wykres dat lęgów opisuje fenologię, ale nie mierzy bezpośrednio jakości synchronizacji.
Przypadek 2. Fragmenty Amazonii i znaczenie otoczenia
Ferraz i współautorzy wykorzystali trzynaście lat odłowów ptaków z wielkoskalowego eksperymentu krajobrazowego w brazylijskiej Amazonii. Dla 55 gatunków modelowali lokalny zanik i kolonizację, rozdzielając znaczenie powierzchni płata oraz izolacji. Było to silniejsze podejście niż jednorazowe porównanie list z małego i dużego lasu: dostępne były powtarzane obserwacje po zmianie krajobrazu. Jednocześnie wyniki odnosiły się do badanego zespołu i przyjętego modelu. „Lokalny zanik” oznacza zniknięcie gatunku z rozpatrywanego płata, a nie wymarcie na całym obszarze występowania. [254]
Stouffer i współautorzy opisali następnie zespoły ptaków podszytu w jedenastu fragmentach o powierzchniach 1–100 ha, śledzonych od okresu sprzed izolacji do 2007 r. Badanie pokazało zarówno lokalne zaniki, jak i ponowne pojawianie się gatunków w krajobrazie z odrastającą roślinnością. Spośród 101 gatunków odłowionych przed izolacją 97 stwierdzono w 2007 r. w przynajmniej jednym fragmencie. Nie znaczy to, że każdy fragment zachował 97 gatunków ani że odbudowano pierwotną liczebność. Wynik dotyczy łącznego zestawu stanowisk i wykrycia obecności, a nie pełnego odtworzenia wcześniejszego zespołu w każdym miejscu. [255]
Interpretując wynik, trzeba uwzględnić regenerację roślinności między fragmentami oraz sąsiedztwo dużych obszarów lasu. Autorzy wiązali odtwarzanie części zgrupowań z takim otoczeniem. Wniosek nie uprawnia do zastępowania starego lasu młodym zadrzewieniem ani do zakładania podobnego powrotu gatunków w krajobrazie pozbawionym populacji źródłowych. Ograniczenie przestrzenne jest częścią wyniku. [255]
Przypadek 3. Więcej podlotów wróbla nie musi oznaczać odbudowy populacji
W doświadczeniu opisanym przez Peacha i współautorów w 2015 r. wróblom Passer domesticus w podmiejskim Londynie podawano dodatkowy pokarm bezkręgowy przez dwa kolejne sezony lęgowe. Liczebność świeżych podlotów wzrosła o 62%, lecz wpływ na całkowitą liczbę terytorialnych samców był niewielki i dotyczył głównie małych kolonii. Autorzy uznali, że poprawa dostępności bezkręgowców może podnosić sukces rozrodu, ale sama prawdopodobnie nie wystarcza do odbudowy liczebności. Wskaźnik +62% opisuje określoną miarę młodych, a nie zmianę wszystkich ptaków, liczbę par czy wzrost przeżywalności o 62 punkty procentowe. [256]
W kolejnej pracy z 2018 r. badano podawanie bezkręgowców w sezonie lęgowym oraz wysokoenergetycznych nasion przez cały rok. Doświadczenie obejmowało 33 kolonie dokarmiane i 33 kontrolne przez dwa kolejne lata kalendarzowe. Ponownie zwiększała się liczebność podlotów, ale nie wykryto wpływu na przeżywanie zimą ani wielkość populacji. Ten wynik dotyczy badanego układu podmiejskiego. Nie uprawnia do stwierdzenia, że pokarm nigdy nie ogranicza żadnej populacji wróbla; pokazuje, że nawet sensowna interwencja może nie usuwać czynnika ograniczającego liczebność w danym miejscu. [257]
Przed interpretacją efektu podawania pokarmu należy sprawdzić również, czy obserwowany wzrost nie jest wyłącznie skupieniem ptaków przy karmniku i jak oszacowano rezultat rozrodu. W zespole tych badań osobna praca była poświęcona testowaniu założeń doświadczenia, w którym liczenia miały służyć ocenie wpływu karmienia na rozród i wielkość kolonii. To ważna kolejność: najpierw wiarygodność wskaźnika i sposobu porównania, dopiero potem ocena interwencji. Sam większy ruch przy miejscu wykładania pożywienia nie stanowi jeszcze dowodu poprawy demografii. [258]
Tabela 42. Co rzeczywiście porównują trzy studia przypadków?
| Studium | Dane i wynik | Granica wniosku |
|---|---|---|
| Muchołówka — Holandia | Porównanie 9 populacji; silne spadki w miejscach z wczesnym szczytem pokarmu. | Badanie zależności przestrzennych i czasowych, nie losowe przypisanie populacji do ocieplenia. |
| Ptaki podszytu — Amazonia | Wieloletnie odłowy po zmianie krajobrazu; modelowanie zaniku i kolonizacji. | Obecność gatunku w co najmniej jednym fragmencie nie dowodzi odtworzenia wszystkich stanowisk. |
| Wróbel — podmiejski Londyn | Doświadczenia z dodatkowym pokarmem; więcej podlotów bez odpowiedniej odbudowy liczebności. | Efekt na jeden etap nie jest równoważny efektowi na całą populację. |
Zestawienie badań o różnych projektach; ich wyników nie należy łączyć w jeden wspólny procent „skuteczności”. [252][254][255][256][257]

Tabela 43. Plan diagnozy dla konkretnego miejsca
| Etap | Pytanie do danych | Przykład brakującej informacji |
|---|---|---|
| Zdefiniowanie celu | Chodzi o przeżycie osobników, rozród, liczbę par czy odzyskanie stanowisk? | Brak rozróżnienia podlotów i ptaków lęgowych. |
| Rozpoznanie mechanizmu | Który etap cyklu może ograniczać wynik? | Nieznana dostępność pokarmu w czasie karmienia młodych. |
| Wybór porównania | Jak oddzielić zmianę po działaniu od zmiany, która zaszłaby bez niego? | Brak odpowiednich stanowisk kontrolnych lub pomiaru wyjściowego. |
| Sprawdzenie trwałości | Czy odpowiedź utrzymuje się i prowadzi do oczekiwanego efektu demograficznego? | Brak informacji o losach ptaków w kolejnym sezonie. |
Autorska synteza sposobu stawiania pytań na podstawie opisanych studiów; tabela nie jest protokołem konkretnego programu monitoringowego.
Profesjonalna rekomendacja może więc brzmieć warunkowo: zwiększyć zasób, jeżeli wykazano jego niedobór w odpowiednim okresie, a następnie sprawdzić losy ptaków na etapach, które mają się poprawić. Warunek nie osłabia rekomendacji. Informuje, kiedy oczekuje się efektu oraz co uznać za sygnał konieczności zmiany działania. Jeżeli wynik okaże się inny niż przewidywany, warto zachować dane i sprawdzić konkurencyjne wyjaśnienia. Powodzenie krótkiego etapu i powodzenie całego programu ochronnego powinny pozostać oddzielnymi pozycjami w sprawozdaniu.
Rozdział 35Ochrona, która odpowiada na przyczyny: od diagnozy do oceny skuteczności
Dobra interwencja ma określony cel biologiczny, uzasadniony mechanizm i sposób sprawdzenia rezultatu.
Wzrost liczby powieszonych budek, posadzonych krzewów albo hektarów objętych projektem opisuje wykonane działania. Nie jest jeszcze pełną miarą poprawy sytuacji ptaków. Ocena wymaga sprawdzenia, czy wzrosła dostępność ograniczających zasobów, sukces rozrodu, przeżywalność lub liczebność. Należy też zapytać, co prawdopodobnie wydarzyłoby się bez interwencji. Poprawa w roku wyjątkowo korzystnej pogody może objąć zarówno miejsce działań, jak i obszary porównawcze. Przypisanie całego wzrostu projektowi bez odpowiedniego porównania zawyżałoby jego skuteczność. [259]
Najpierw rozpoznanie etapu, na którym powstaje problem
Zintegrowany monitoring populacji łączy informacje o liczebności, rozrodzie, przeżywalności i przemieszczaniu się. Jeżeli populacja maleje mimo dobrego sukcesu lęgowego, dodatkowe miejsca gniazdowania mogą nie usuwać głównego ograniczenia. Problem może pojawiać się po wylocie młodych, zimą albo w trakcie wędrówki. Odwrotnie, liczna obecność dorosłych na początku sezonu nie zapewnia odtwarzania pokolenia. BTO wykorzystuje łączenie programów właśnie po to, aby kierować dalsze badania i ochronę do odpowiedniego etapu cyklu życiowego. [260]
Tabela 44. Od problemu do weryfikowalnego celu ochrony
| Rozpoznany problem | Przykładowy kierunek działania | Co warto mierzyć |
|---|---|---|
| Brak bezpiecznych miejsc lęgowych | Zachowanie naturalnych miejsc lub właściwie dobrane konstrukcje. | Zajęcie, powodzenie lęgów i możliwe zagrożenia nowych miejsc. |
| Utrata pokarmu lub siedlisk żerowania | Odtwarzanie zasobów i odpowiedniego użytkowania siedliska. | Dostępność zasobów, kondycję i rozród; nie tylko powierzchnię prac. |
| Wysoka śmiertelność w rybołówstwie | Ograniczenie przyłowu dopasowane do rodzaju połowu. | Przyłów na porównywalną jednostkę wysiłku połowowego. |
| Przerwanie sieci miejsc postoju | Zabezpieczenie i odtwarzanie kluczowych miejsc na trasie. | Stan siedlisk i wykorzystanie całej sieci, nie pojedynczego obiektu. |
| Nieznana przyczyna spadku | Badania demografii i ukierunkowany monitoring. | Przeżywalność, rozród, ruchy i niepewność oszacowań. |
Synteza mechanizmów ochrony i monitoringu. Przykłady nie zastępują planu dla konkretnego gatunku. [261][260][240]
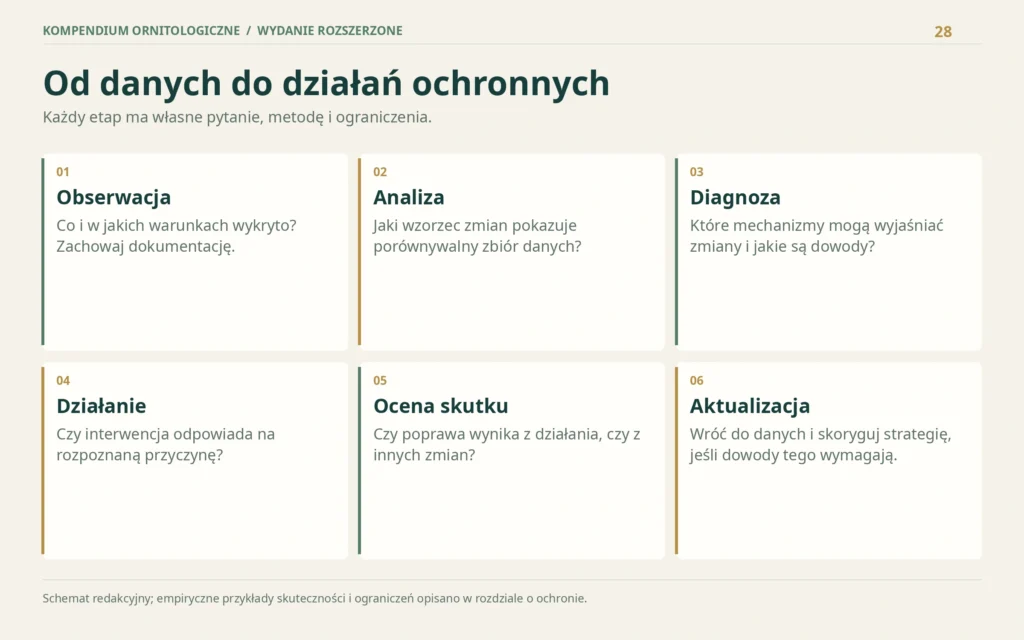
Ochrona miejsc i ochrona procesów
Kluczowe Obszary Różnorodności Biologicznej — KBA wyznacza się przy użyciu uzgodnionych kryteriów naukowych. To sposób rozpoznawania miejsc szczególnie istotnych dla zachowania bioróżnorodności. Miejsce może mieć znaczenie z powodu zagrożonych albo ograniczonych geograficznie organizmów, wyjątkowych procesów ekologicznych lub innych kryteriów standardu. Informacja o spełnieniu kryterium nie mówi jednak sama, czy teren jest skutecznie zarządzany, czy zachował jakość siedlisk i czy zagrożenie ustało. [262]
Identyfikacja KBA jest odrębna od nadania mu określonego statusu prawnego. Również kategoria IUCN nie działa automatycznie jak krajowy zakaz albo pozwolenie. Naukowa ocena ryzyka, wyznaczenie ważnego miejsca i przepisy ochronne pełnią różne funkcje. Przy planowaniu robót, dostępu do stanowiska lub działań przy gniazdach konieczne jest sprawdzenie właściwych regulacji i warunków terenowych. W kompendium nie podajemy jednej odległości od gniazda jako uniwersalnej strefy ochrony wszystkich gatunków. [263]
Dowody skuteczności — z zachowaniem właściwej skali
Analiza Bolam i współautorów oszacowała, że działania ochronne zapobiegły wymarciu 21–32 gatunków ptaków w latach 1993–2020. Jest to ocena kontrfaktyczna oparta na uporządkowanej pracy ekspertów: rozważano prawdopodobny los gatunków, gdyby działań nie podjęto. Przedział nie jest bezpośrednim wynikiem eksperymentu, w którym celowo pozostawiono część gatunków bez ochrony. Badanie pokazuje, że wysiłek może zmieniać los gatunków, a jednocześnie uczciwie ujawnia niepewność pytania o alternatywną historię. [264]
W rybołówstwie można oceniać zmianę śmiertelności w konkretnych flotach i porównywalnych jednostkach wysiłku. Badanie z Namibii analizowało sytuację przed wprowadzeniem i po wprowadzeniu regulacji ograniczających przyłów ptaków morskich. Takie prace łączą technikę połowową, obserwacje na jednostkach i rzeczywiste wdrożenie wymagań. Ich wynik nie powinien być bezpośrednio przenoszony na każdy kraj, typ statku czy sposób połowu. Skuteczna technologia wymaga właściwego użycia, a ocena musi uwzględniać warunki, w których została sprawdzona. [261]
Szersza metaanaliza Langhammer i współautorów z 2024 r. obejmowała 186 badań i 665 prób porównujących zmiany bioróżnorodności przy działaniach ochronnych i odpowiednim scenariuszu bez działań. Dotyczyła różnych składników przyrody, więc nie należy przedstawiać jej jako analizy wyłącznie ptaków. Jej znaczenie metodologiczne polega na porównywaniu rezultatów z punktem odniesienia. Dobry program zapisuje warunki wyjściowe, sposób prowadzenia prac, kryteria sukcesu i termin ponownej oceny. Dopiero wtedy można rozsądnie zdecydować, czy działanie kontynuować, poprawić lub zastąpić. [259]
Spadek liczebności po wdrożeniu działań nie wyklucza efektu: bez działań spadek mógłby być większy. Również wzrost nie rozstrzyga sam, że projekt spowodował całą poprawę. Ocenę skuteczności wzmacnia porównanie przebiegów, zachowanie informacji o warunkach i jawne wyjaśnienie ograniczeń. To rozumowanie pozwala unikać zarówno nadmiernej reklamy sukcesu, jak i pochopnego odrzucania działań, które ograniczyły stratę. [259]
Rozdział 36Odpowiedzialna obserwacja i praktyczna pomoc ptakom
Dobra obserwacja pozostawia ptakom możliwość normalnego żerowania, odpoczynku i opieki nad młodymi.
W terenie pierwszeństwo powinno mieć zachowanie ptaków. Jeżeli dorosły wielokrotnie alarmuje, wstrzymuje karmienie albo stado odrywa się od żerowania, trzeba zwiększyć dystans lub odejść. Ta sama krótka ingerencja, powtarzana przez wiele osób, może tworzyć długotrwałą presję. Kodeks OTOP zaleca szczególną ostrożność przy gniazdach, tokowiskach, noclegowiskach i ważnych żerowiskach. Ogranicza też stosowanie stymulacji głosowej, zwłaszcza wobec rzadkich lub zagrożonych gatunków i w miejscach intensywnie odwiedzanych. [265]
Dokładna lokalizacja rzadkiego lęgu nie musi być publikowana szeroko, aby obserwacja miała wartość. Można zachować pełną dokumentację i przekazać ją właściwym ekspertom lub instytucjom, ograniczając ryzyko dodatkowych wizyt. W fotografii warto oceniać drogę dojścia i czas pracy, nie tylko odległość aparatu. Zasłonięcie widoku roślinnością nie usprawiedliwia odsłaniania gniazda. Uczciwy opis obserwacji powinien zachować także wątpliwości oznaczenia — prestiż rzadkiego stwierdzenia nie jest powodem, by zmieniać hipotezę w pewność. [265]
Otoczenie domu: zasoby i ograniczanie zagrożeń
Pomoc zaczyna się od siedliska. Dobór rodzimych roślin do warunków miejsca może dostarczać owoców, nasion, bezkręgowców i osłony. Urozmaicona struktura roślinności daje więcej możliwości niż jednolita, krótko utrzymywana powierzchnia. Równocześnie kot mający niekontrolowany dostęp do otoczenia może polować także wtedy, gdy jest najedzony. Rozwiązaniami ograniczającymi tę presję są bezpieczne przebywanie w domu, zabezpieczona woliera lub nadzorowane wyjścia. Amerykańskich szacunków liczby ofiar nie należy przy tym bezpośrednio przedstawiać jako danych dla Polski. [266]
Szyby wymagają oznaczeń widocznych od zewnątrz. USGS zaleca gęsty wzór o odstępach około 2 × 2 cale, czyli około 5 × 5 cm, po zewnętrznej stronie powierzchni. Istotna jest cała niebezpieczna tafla, ponieważ ptak może próbować przelotu przez nieoznaczony fragment. Sam fakt naklejenia jednego dużego elementu nie zapewnia pokrycia. Rozwiązanie należy dopasować do rodzaju szkła i utrzymywać w dobrym stanie; odbicia roślinności i widoczny przez budynek dalszy krajobraz mogą tworzyć podobne złudzenie bezpiecznej drogi. [267]
Oświetlenie nocne stanowi osobny problem, zwłaszcza w okresach migracji. Można wyłączać zbędne światła, ograniczać emisję ponad horyzont, zasłaniać oświetlone wnętrza i stosować uruchamianie światła wtedy, gdy jest potrzebne. Zabezpieczenie szyby w dzień i ograniczenie oświetlenia nocą uzupełniają się. Amerykańskie narzędzia prognozowania migracji mają własny zasięg geograficzny; nie należy przedstawiać ich map jako prognozy dla polskiego miasta. Ogólna zasada ograniczania niepotrzebnego światła nie wymaga jednak czekania na precyzyjny model lokalny. [268]
Dokarmianie: jakość i higiena
Jeśli prowadzimy dokarmianie, pokarm powinien odpowiadać potrzebom odwiedzających gatunków, pozostawać świeży i być zabezpieczony przed zawilgoceniem. Pieczywo, resztki słonych potraw i zepsuta żywność nie są właściwym sposobem pomocy. W karmniku trzeba regularnie usuwać zabrudzenia i niezjedzone resztki. Miejsce powinno umożliwiać swobodny odlot i ograniczać ryzyko ataku kotów oraz kolizji z szybą. Dokarmianie nie zastępuje zróżnicowanego siedliska; skupianie ptaków przy jednym źródle pokarmu wymaga stałej troski o higienę. [269]
Nie ma jednego zestawu karmy odpowiedniego dla każdego ptaka ani uniwersalnego harmonogramu dla wszystkich warunków. Ciepła, wilgotna pogoda zwiększa ryzyko psucia się niektórych produktów. Dlatego odpowiedzialność nie kończy się na wysypaniu ziarna: trzeba obserwować stan miejsca i reagować na problemy. Jeżeli przy karmniku pojawiają się ptaki wyraźnie chore, właściwe są aktualne zalecenia miejscowej organizacji ornitologicznej lub specjalisty, zamiast samodzielnego stosowania leków czy uniwersalnej recepty znalezionej w internecie. [269]
Podlot, ptak ranny i sytuacja niejasna
Opierzony młody ptak poza gniazdem nie musi być osierocony. U wielu gatunków podloty opuszczają gniazdo przed osiągnięciem sprawności lotu, a dorosłe nadal się nimi opiekują. Najpierw należy obserwować z dystansu i ocenić bezpośrednie zagrożenie. Nie wolno na tej podstawie tworzyć reguły, że każdy ptak siedzący na ziemi jest zdrowym podlotem: ważny jest gatunek, wiek, zachowanie i ewentualne obrażenia. Wątpliwość najlepiej rozstrzygnąć przez konsultację ze specjalistą, zamiast zabierać ptaka „na wychowanie”. [270]
Przy rannym lub chorym dzikim ptaku należy skontaktować się z właściwą gminą, strażą miejską lub gminną, lekarzem weterynarii albo odpowiednim ośrodkiem rehabilitacji. GDOŚ podkreśla, że dyrekcje ochrony środowiska nie są służbami odbioru i transportu takich zwierząt. Przed przewiezieniem warto potwierdzić, że placówka przyjmuje dany gatunek i uzgodnić sposób postępowania. Nie należy zakładać, że dowolny ogród zoologiczny, urząd lub organizacja odbierze ptaka bez wcześniejszego kontaktu. [271]
Kontaktując się z placówką, przygotuj konkretny opis: miejsce znalezienia, przybliżoną wielkość ptaka, widoczne obrażenia, zdolność poruszania się i okoliczności zdarzenia. Zdjęcie wykonane bez dodatkowego niepokojenia może pomóc w rozpoznaniu. Taka informacja ułatwia ustalenie, kto może udzielić pomocy i czy potrzebny jest transport. Sam fakt, że ptak nie odlatuje podczas krótkiej obserwacji, nie określa jeszcze przyczyny ani właściwego sposobu działania. Wybór interwencji powinien wynikać z konsultacji i aktualnego stanu zwierzęcia. [271]
Część VPytania, słownik i aneksy
Rozdział 37Pytania, które wymagają precyzyjnej odpowiedzi
Szybkie odpowiedzi bez pomijania istotnych zastrzeżeń.
Czy istnieje jedna niezmienna liczba gatunków ptaków?
Nie. Liczba zależy od wersji klasyfikacji i zakresu listy. Zmiana może wynikać z rozdzielenia lub połączenia taksonów, a nie z nagłego powstania albo wymarcia ptaków między publikacjami. Do porównań należy zachować jedną podstawę taksonomiczną lub jawnie uzgodnić różnice. Dokładne liczby i wersję listy wykorzystaną w tym wydaniu podano w rozdziale o różnorodności oraz w aneksie rzędów.
Czy ptaki wodne tworzą jeden rząd?
Nie. To określenie ekologiczne, które obejmuje ptaki z różnych linii ewolucyjnych. Podobna funkcja środowiskowa nie jest równoważna bliskiemu pokrewieństwu. W przeglądzie grup zestawiono osobno kaczki, perkozy, nury, chruściele, siewkowe, kormorany i inne grupy związane z wodą. Takie rozdzielenie pomaga zrozumieć podobieństwa funkcjonalne bez tworzenia nieistniejącej kategorii systematycznej.
Czy wszystkie ptaki latają?
Nie. Współczesne ptaki obejmują także linie, które utraciły zdolność lotu powietrznego. Skrzydło może pełnić inną funkcję, na przykład uczestniczyć w poruszaniu się pod wodą. Natural History Museum omawia nielotność strusi i pingwinów w kontekście ewolucji od latających przodków. Brak lotu nie odbiera organizmowi cech ptaka ani nie oznacza „mniejszego stopnia rozwoju”. [14]
Czy pióra powstały wyłącznie do latania?
Nie. Znaleziska struktur pióropodobnych u dinozaurów i złożonych piór u form nielatających wskazują, że historia tych struktur jest szersza niż historia aktywnego lotu ptaków. Nadal istnieją jednak otwarte pytania o najwcześniejszy etap ich ewolucji i o interpretację części skamieniałości. Pewnego związku ptaków z opierzonymi dinozaurami nie należy mylić z pełną znajomością każdej fazy powstania pióra. [272]
Czy rekord długości życia opisuje typowego osobnika?
Nie. Rekord jest najdłuższym udokumentowanym wynikiem w danym zbiorze danych. USGS przedstawia rekordy potwierdzane na podstawie znakowania i ponownych stwierdzeń. EURING dodatkowo zaznacza, że wiek ptaka zaobrączkowanego już jako dorosły bywa minimalnym wiekiem: mógł on żyć wcześniej dłużej, niż wiadomo. Rekord, średnia długość życia i roczne przeżycie są różnymi wielkościami. [273][274]
Czy śpiewają tylko samce?
Nie należy przyjmować takiej reguły dla wszystkich ptaków. Różnice między płciami i funkcjami wokalizacji zależą od gatunku oraz kontekstu. W części biologicznej omówiono badania śpiewu samic wraz z zakresem analizowanej próby. Ich procentowych wyników nie przeniesiono automatycznie na wszystkie gatunki świata.
Czy ptak widoczny zimą jest osiadły?
Nie musi tak być. Mógł przybyć z innej populacji, a miejscowe osobniki tego samego gatunku mogły odlecieć. Występowanie gatunku przez cały rok w danym kraju nie dowodzi, że wszystkie widziane osobniki pozostają na miejscu. BirdLife rozróżnia obecność całoroczną, lęgową, pozalęgową i przelotną; te etykiety opisują sposób występowania w obszarze, a nie tożsamość poszczególnych ptaków. [166]
Czy barwa dzioba lub piór wystarcza do oznaczenia?
Czasem wyraźnie zawęża wybór, ale zwykle należy sprawdzić więcej cech i uwzględnić wiek, płeć, szatę oraz światło. W rozdziale porównań pokazano sytuacje, w których brak cechy dorosłego ptaka nie wyklucza danego gatunku. Warto opisywać układ barwnych pól, a nie tylko nazywać ich odcienie.
Czy rzadki w Polsce gatunek musi być globalnie zagrożony?
Nie. Może być pospolity w innym obszarze, a do Polski docierać wyjątkowo. Odwrotnie, gatunek nadal łatwy do zobaczenia w jednym regionie może mieć niekorzystny trend globalny. Rzadkość obserwacji, krajowy status lęgowy, trend i kategoria ryzyka wymarcia wymagają oddzielnych danych. Ich relacje opisano w rozdziałach o monitoringu i ochronie.
Czy brak czerwonej kategorii oznacza brak problemu?
Nie. Ocena ryzyka wymarcia nie wyczerpuje wszystkich celów ochrony. Znaczenie mogą mieć lokalne spadki, utrata siedlisk, rola ekologiczna albo ochrona wynikająca z przepisów. Również kategorie nieocenienia lub niedostatecznych danych nie są dowodem bezpieczeństwa. Schemat kategorii w kompendium rozdziela te sytuacje.
Czy zdjęcie lub wynik aplikacji potwierdza nowy gatunek w kraju?
Samo wygenerowanie propozycji nie wystarcza. Ważne są jakość dokumentacji, cechy wykluczające podobne gatunki oraz procedura właściwej komisji faunistycznej. Własna lista obserwatora i zatwierdzona krajowa lista są odmiennymi zbiorami. Należy zachować oryginały materiałów i opisać, na czym opiera się oznaczenie, zamiast traktować popularność fotografii jako potwierdzenie.
Czy można porównać dwa procenty bez sprawdzania mianownika?
Nie. Procent gatunków o malejącym trendzie, procentowy spadek indeksu liczebności i procent gatunków objętych określoną presją opisują inne wielkości. Wspólny znak „%” nie daje podstaw do łączenia ich na jednym wykresie jako równoważnych pomiarów. Przy każdym wykorzystaniu procentu trzeba odtworzyć pytanie: procent czego, na jakim obszarze i w jakim okresie?
Dalej w atlasieGatunki i tematy z tego opracowania
Hasła gatunków omawianych w kompendium, z wymiarami, występowaniem i mapą.

Wróbel domowy
Passer domesticus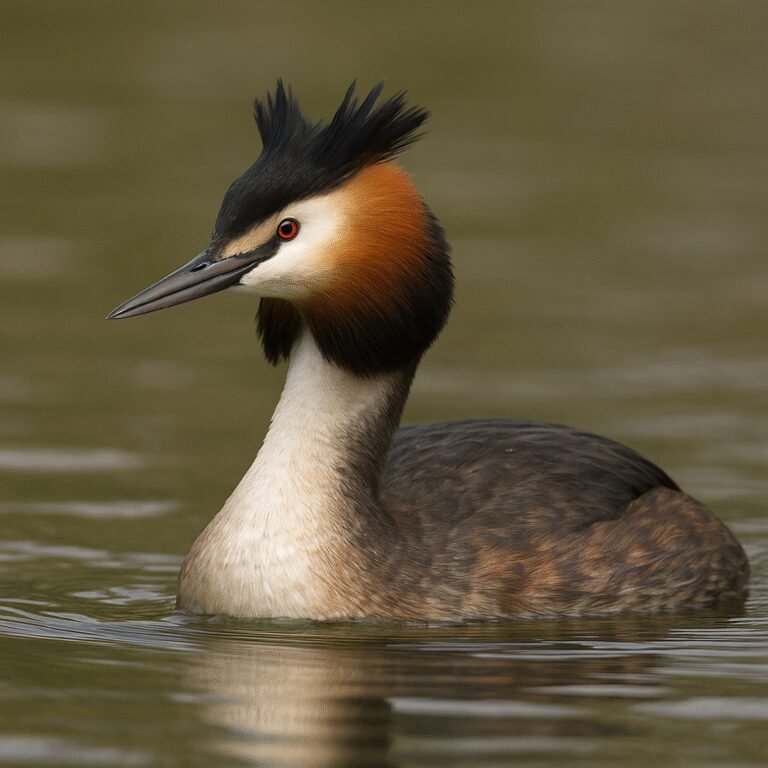
Perkoz dwuczuby
Podiceps cristatus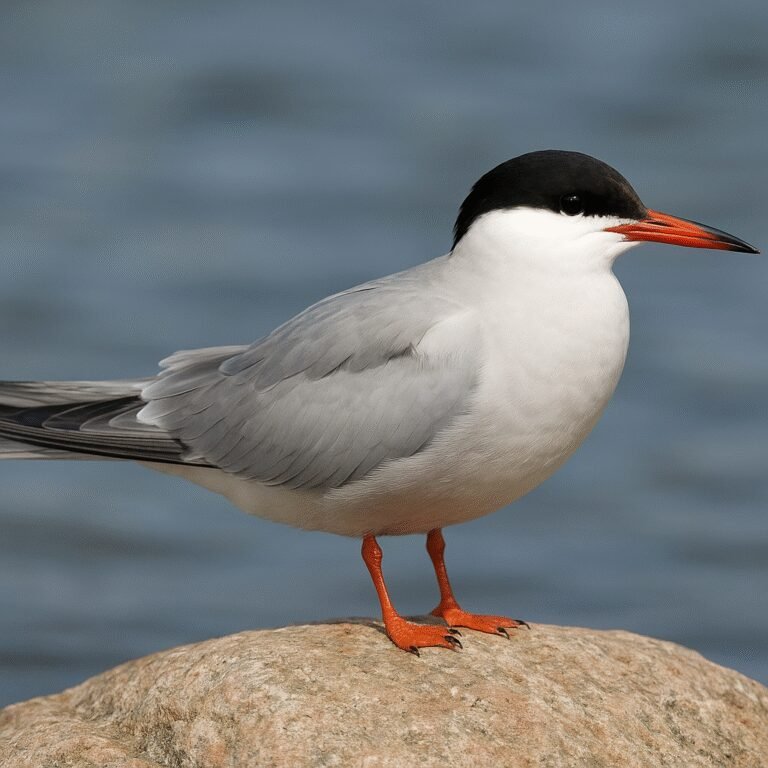
Rybitwa rzeczna
Sterna hirundo
Bocian biały
Ciconia ciconia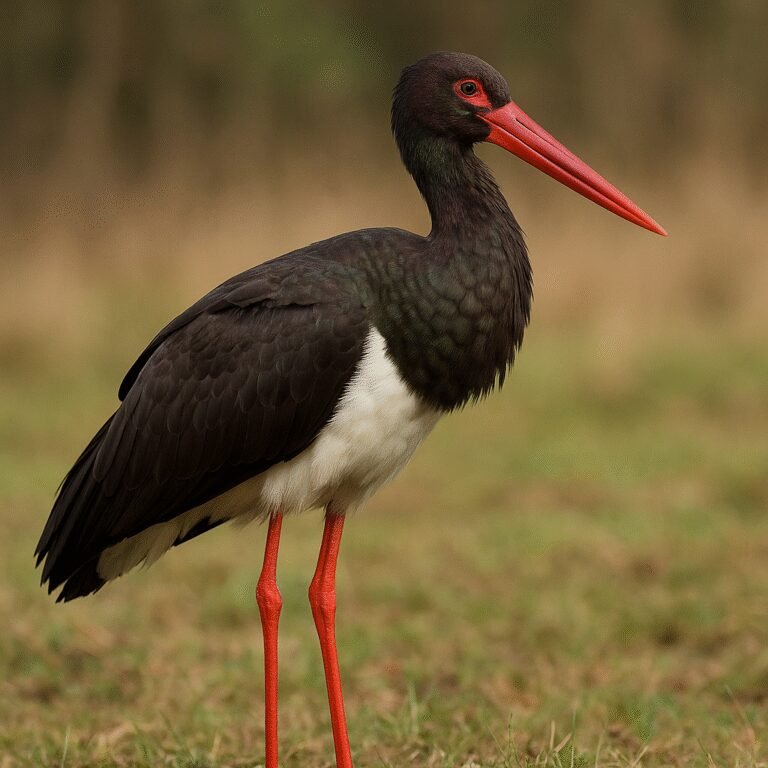
Bocian czarny
Ciconia nigra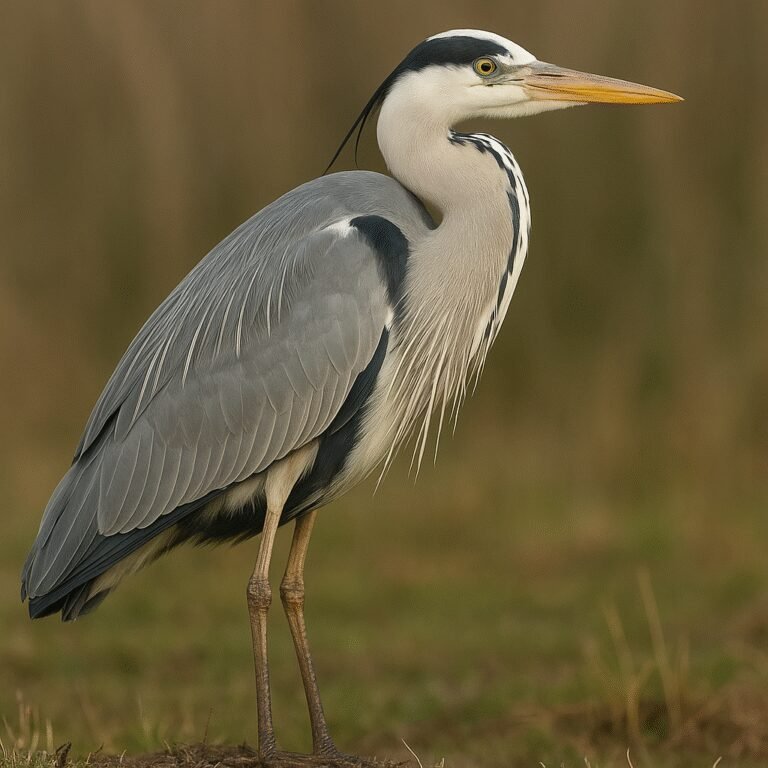
Czapla siwa
Ardea cinerea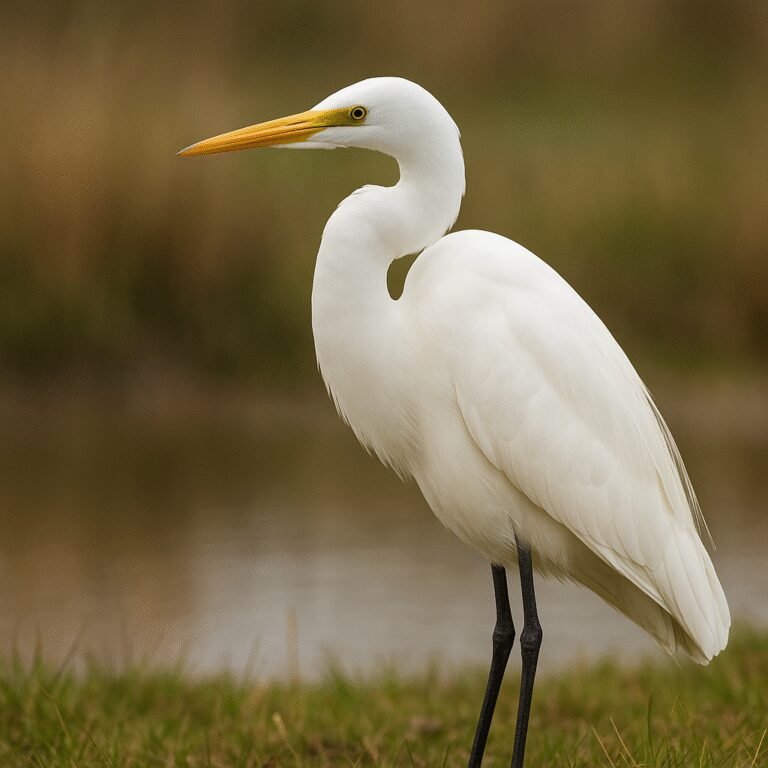
Czapla biała
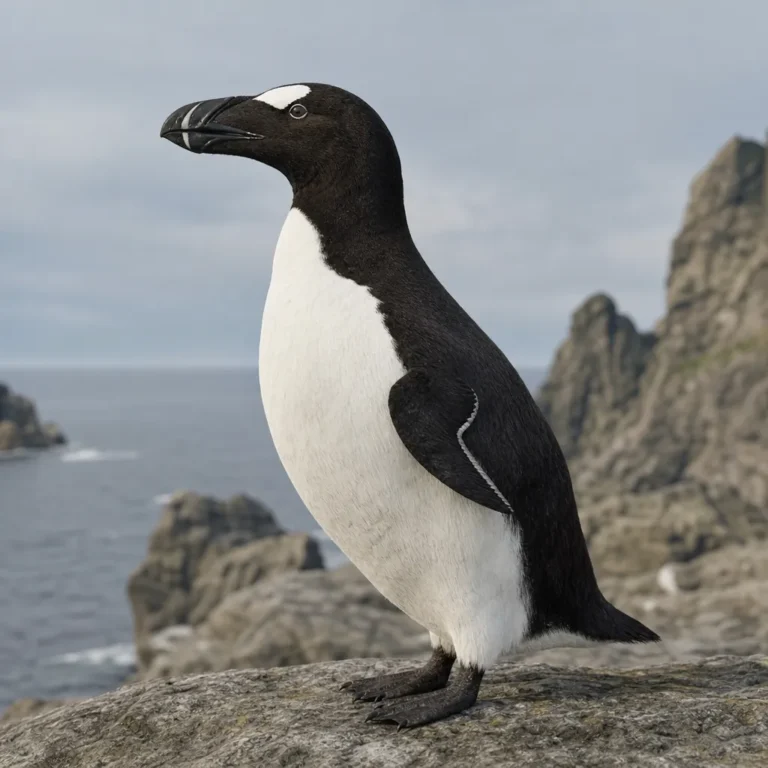
Alka olbrzymia
Pinguinus impennisRodziny w atlasie
Przeglądaj dalej
- Wszystkie hasła: ptaki
- Ptaki występujące w Polsce
- Quiz: ptaki
- Oś czasu: dinozaury i zwierzęta wymarłe
- Porównaj dwa gatunki
Inne kompendia
Rozdział 38Słownik pojęć potrzebnych do świadomego czytania
Krótkie definicje odnoszą się do sposobu użycia terminów w tym kompendium; szczegóły i wyjątki znajdują się w rozdziałach tematycznych.
Tabela 45. Najważniejsze terminy
| Termin | Znaczenie w opracowaniu |
|---|---|
| Adaptacja | Cecha ukształtowana w toku ewolucji, której funkcja zwiększała dostosowanie w określonych warunkach; nie jest świadomym planem organizmu. |
| Awifauna | Zespół gatunków ptaków danego obszaru lub środowiska, opisywany w przyjętych granicach przestrzennych i czasowych. |
| Długość pokolenia | Przeciętny wiek rodziców wytwarzających nowe pokolenie. Nie jest tożsamy z wiekiem pierwszego lęgu ani maksymalną długowiecznością. [156] |
| Dymorfizm płciowy | Różnice cech między płciami, na przykład rozmiaru lub upierzenia. Nie u każdego gatunku są widoczne w terenie. |
| Echolokacja | Uzyskiwanie informacji o otoczeniu z echa własnych sygnałów dźwiękowych. U tłuszczaka pomaga w orientacji w ciemnych miejscach; nie jest cechą wszystkich ptaków nocnych. [92] |
| Endemit | Gatunek ograniczony naturalnym występowaniem do nazwanego obszaru; zakres tego obszaru musi być podany. |
| Fenologia | Badanie terminów cyklicznych zdarzeń biologicznych, np. przylotów, lęgów lub pierzenia, i ich zależności od warunków. |
| Fermentacja przedżołądkowa | Rozkład składników pokarmu przez mikroorganizmy w przedniej części przewodu pokarmowego; u hoacyna zachodzi w rozbudowanym wolu. Podobna funkcja może występować w narządach o odmiennym pochodzeniu. [84] |
| Filogeneza | Historia pokrewieństwa ewolucyjnego. Drzewo filogenetyczne jest hipotezą opisującą tę historię na podstawie danych. |
| Gatunek | Podstawowa jednostka klasyfikacji. Kryteria wyznaczania granic gatunków mogą wymagać różnych rodzajów dowodów. |
| Generalista | Gatunek wykorzystujący stosunkowo szeroki zakres zasobów lub warunków w rozpatrywanym wymiarze ekologicznym. |
| Geolokator świetlny | Rejestrator światła umożliwiający oszacowanie położenia z przebiegu dnia i nocy, z ograniczeniami zależnymi od warunków i sezonu. [214] |
| Gildia ekologiczna | Zbiór gatunków wykorzystujących podobny rodzaj zasobu w zbliżony sposób; nie jest jednostką taksonomiczną. |
| Gniazdownik | Ptak, którego młode po wykluciu wymagają intensywnej opieki i rozwoju w gnieździe; cechy rozwoju tworzą szersze spektrum. |
| Indeks liczebności | Względna miara zmiany liczebności wobec przyjętego poziomu odniesienia. Nie musi podawać liczby osobników. |
| Jednostka eksperymentalna | Jednostka niezależnie przydzielana do wariantu eksperymentu; zależnie od projektu może nią być osobnik, gniazdo, grupa lub obszar. [233] |
| Kamuflaż | Cechy wyglądu i zachowania utrudniające wykrycie albo rozpoznanie organizmu. U Nyctibius griseus obejmuje również nieruchomą postawę upodabniającą ptaka do fragmentu gałęzi. [93] |
| Kohorta | Grupa osobników wyklutych w tym samym przedziale czasu, zwykle w jednym roku; pozwala porównywać losy danego rocznika. [150] |
| Kolonia lęgowa | Skupienie miejsc rozrodu wielu par lub osobników. Sąsiedztwo gniazd samo nie oznacza wspólnego wychowywania potomstwa. [146] |
| Konwergencja | Niezależne powstawanie podobnych rozwiązań ewolucyjnych u odleglej spokrewnionych organizmów. |
| Lęgowisko | Obszar wykorzystywany do rozmnażania. Samo pojawienie się ptaka w sezonie lęgowym nie zawsze potwierdza lęg. |
| Lotki | Pióra skrzydła istotne dla tworzenia powierzchni aerodynamicznej. Ich kształt i stan mogą pomagać w oznaczaniu wieku lub gatunku. |
| Metadane | Informacje objaśniające dane, na przykład jednostki, identyfikatory osobników, urządzenia, okresy pomiaru i sposób powstania zapisu. [215] |
| Migracja częściowa | Sytuacja, w której część osobników lub populacji przemieszcza się sezonowo, podczas gdy inne pozostają bardziej osiadłe. |
| Monitoring | Powtarzane gromadzenie danych według określonej metody, pozwalające oceniać zmiany w czasie. |
| Nisza ekologiczna | Zestaw relacji organizmu ze środowiskiem, obejmujący wymagania, wykorzystywane zasoby i funkcjonowanie w ekosystemie. |
| Noclegowisko | Miejsce wykorzystywane do odpoczynku, często przez wiele osobników. Wspólne nocowanie nie dowodzi wspólnego dziennego żerowania. [144] |
| Osobnik dojrzały | W ocenach populacyjnych osobnik zdolny do rozrodu; szczegółowe kryteria stosowania zależą od przyjętej metody. |
| Pierzenie | Wymiana piór. Jej zakres, tempo i umiejscowienie w cyklu rocznym zależą od gatunku i sytuacji osobnika. |
| Populacja | Zbiór osobników tego samego gatunku rozpatrywany w określonych granicach; granice biologiczne i administracyjne nie muszą się pokrywać. |
| Presja | Czynnik oddziałujący na populację lub siedlisko, np. przekształcenie środowiska; samo współwystępowanie nie dowodzi siły wpływu. |
| Przedział ufności | Miara niepewności oszacowania wynikająca z zastosowanej procedury statystycznej; nie obejmuje automatycznie wszystkich błędów danych. |
| Przeżywalność | Prawdopodobieństwo lub udział osobników przeżywających określony przedział czasu, zgodnie z definicją modelu. |
| Przeżywalność pozorna | Parametr łączący przeżycie osobnika z pozostaniem w badanym obszarze; utrata osobnika może oznaczać śmierć lub trwałą emigrację. [234] |
| Pseudoreplikacja | Wnioskowanie o efekcie doświadczenia z analizy, która traktuje zależne pomiary lub niereplikowane warunki jak niezależne powtórzenia. [228] |
| Rekrutacja | Wejście nowych osobników do określonej części populacji, np. lęgowej. Kryterium wejścia i obszar badania wymagają podania. [157] |
| Rodzaj | Jednostka systematyczna zawierająca jeden lub więcej gatunków; pierwszy człon dwuczłonowej nazwy naukowej. |
| Rodzina | Jednostka systematyczna grupująca rodzaje. Podobne określenie potoczne nie musi odpowiadać jednej rodzinie. |
| Rozród kooperatywny | System, w którym w opiece nad potomstwem uczestniczą dodatkowe osobniki, poza parą rodzicielską; funkcje pomocników mogą się różnić. [141] |
| Rząd | Jednostka systematyczna obejmująca rodziny; przyjęty wykaz wszystkich rzędów przedstawiono w aneksie. |
| Specjalista | Gatunek silniej związany z określonym zasobem lub warunkami; specjalizacja może dotyczyć jednego wymiaru, a nie całego sposobu życia. |
| Starzenie rozrodcze | Pogarszanie się wyników rozrodu wraz z wiekiem danego osobnika; wymaga odróżnienia od zmian składu badanej populacji. [157] |
| Sterówki | Pióra ogona, uczestniczące m.in. w kontroli lotu i w sygnalizacji; ich liczba i kształt są zróżnicowane. |
| Sukces lęgowy | Wynik rozrodu, którego miara musi być zdefiniowana: np. udział udanych gniazd albo liczba odchowanych młodych. |
| Szata | Zespół cech upierzenia osobnika w określonym wieku i etapie cyklu; może zmieniać się przez pierzenie i zużycie piór. |
| Takson | Nazwana jednostka klasyfikacji dowolnej rangi, np. gatunek, rodzaj lub rodzina. |
| Terytorium | Obszar broniony przed innymi osobnikami w określonym kontekście. Nie jest tożsamy z całym obszarem aktywności ptaka. |
| Trend | Kierunek i często tempo długoterminowej zmiany analizowanej cechy; wymaga wskazania okresu i metody. |
| Walidacja modelu | Sprawdzenie przewidywań modelu względem odpowiednich danych odniesienia; ocena błędów i zakresu zastosowania, a nie samo dopasowanie do danych uczących. [218] |
| Wykrywalność | Szansa zarejestrowania ptaka obecnego w badanym miejscu. Zależy m.in. od zachowania, warunków i metody obserwacji. |
| Zagniazdownik | Ptak, którego młode są po wykluciu relatywnie rozwinięte i zdolne do wczesnego opuszczania gniazda; nadal mogą wymagać opieki. |
| Zasięg | Przestrzenny obraz występowania w określonym sezonie i skali. Nie oznacza jednakowej liczebności w całym obszarze. |
| Zimowisko | W kontekście migracji z Eurazji: obszar pobytu w części pozalęgowej cyklu; lokalnie może w tym czasie trwać inna pora roku. |
Definicje redakcyjne stanowią skrót pojęć rozwiniętych i udokumentowanych w rozdziałach tematycznych. Nie zastępują formalnych definicji kryteriów IUCN ani instrukcji programów monitoringowych. Dodatkowe źródła pojęć specjalistycznych wskazano przy definicjach.
Rozdział 39Aneks: wszystkie 45 rzędów w AviList v2026
Jedna lista odniesienia, jedna data wydania i sumy kontrolne.
Nazwy naukowe rzędów w poniższej tabeli są aktywnymi odsyłaczami do ich głównych opisów w tym kompendium. Indeks obejmuje wszystkie 45 rzędów; pięć rzędów paleognatów ma wspólny profil.
Poniższa tabela odtwarza zestawienie liczby gatunków, rodzajów i rodzin z przyjętej wersji globalnej listy. Kolejność odpowiada źródłu. Etykiety polskie mają charakter pomocniczy i nie są deklaracją oficjalnej polskiej nomenklatury AviList. W liczbie gatunków uwzględniono taksony wymarłe, jeżeli znalazły się na tej liście; nie jest to katalog wszystkich ptaków kopalnych. [3][7]
Tabela 46. Pełne zestawienie rzędów
| Rząd | Polska etykieta | Gatunki | Rodzaje | Rodziny |
|---|---|---|---|---|
| Struthioniformes | strusie | 2 | 1 | 1 |
| Casuariiformes | kazuarowe | 4 | 2 | 1 |
| Apterygiformes | kiwi | 5 | 1 | 1 |
| Rheiformes | nandu | 2 | 1 | 1 |
| Tinamiformes | kusacze | 47 | 9 | 1 |
| Anseriformes | blaszkodziobe | 176 | 56 | 3 |
| Galliformes | grzebiące | 307 | 86 | 5 |
| Phoenicopteriformes | flamingi | 6 | 3 | 1 |
| Podicipediformes | perkozy | 22 | 6 | 1 |
| Musophagiformes | turakowe | 23 | 5 | 1 |
| Otidiformes | dropie | 26 | 12 | 1 |
| Cuculiformes | kukułkowe | 157 | 36 | 1 |
| Mesitornithiformes | madagaskarniki | 3 | 2 | 1 |
| Pterocliformes | stepówki | 16 | 2 | 1 |
| Columbiformes | gołębiowe | 351 | 52 | 1 |
| Opisthocomiformes | hoacyn | 1 | 1 | 1 |
| Gruiformes | żurawiowe | 185 | 50 | 6 |
| Charadriiformes | siewkowe | 393 | 91 | 19 |
| Eurypygiformes | — | 2 | 2 | 2 |
| Phaethontiformes | faetony | 3 | 1 | 1 |
| Gaviiformes | nury | 5 | 1 | 1 |
| Sphenisciformes | pingwiny | 19 | 6 | 1 |
| Procellariiformes | rurkonose | 146 | 26 | 4 |
| Ciconiiformes | bocianowe | 20 | 6 | 1 |
| Suliformes | głuptakowe | 54 | 12 | 4 |
| Pelecaniformes | pelikanowe | 120 | 34 | 5 |
| Caprimulgiformes | lelkowe | 98 | 22 | 1 |
| Steatornithiformes | tłuszczak | 1 | 1 | 1 |
| Nyctibiiformes | — | 7 | 2 | 1 |
| Podargiformes | paszczaki | 16 | 3 | 1 |
| Aegotheliformes | — | 10 | 1 | 1 |
| Apodiformes | krótkonogie | 470 | 132 | 3 |
| Strigiformes | sowy | 246 | 25 | 2 |
| Cathartiformes | kondory i sępniki | 7 | 5 | 1 |
| Accipitriformes | szponiaste | 252 | 76 | 3 |
| Coliiformes | czepigi | 6 | 2 | 1 |
| Leptosomiformes | kurol | 1 | 1 | 1 |
| Trogoniformes | trogony | 47 | 7 | 1 |
| Bucerotiformes | dzioborożcowe | 75 | 19 | 3 |
| Coraciiformes | kraskowe | 192 | 34 | 6 |
| Piciformes | dzięciołowe | 440 | 75 | 9 |
| Cariamiformes | kariamy | 2 | 2 | 1 |
| Falconiformes | sokołowe | 65 | 10 | 1 |
| Psittaciformes | papugowe | 407 | 93 | 4 |
| Passeriformes | wróblowe | 6735 | 1365 | 143 |
| RAZEM | 45 rzędów | 11 172 | 2379 | 250 |
AviList Core Team 2026; CC BY 4.0. Suma wierszy sprawdzona arytmetycznie. [3]
Rozdział 40Metodologia, jakość źródeł i zasady aktualizacji
Rzetelność wynika z możliwości sprawdzenia twierdzeń, a nie z samej liczby odsyłaczy.
To opracowanie popularnonaukowe o rozbudowanej dokumentacji. Nie jest artykułem przedstawiającym własne badania terenowe ani publikacją, która przeszła zewnętrzną recenzję naukową. Jego zadaniem jest uporządkowanie sprawdzalnych danych i wiedzy biologicznej oraz wyjaśnienie, jak z nich korzystać. Data weryfikacji materiałów to 11 listopada 2026 roku. Nie oznacza ona, że każda obserwacja źródłowa pochodzi z 2026 roku.
Hierarchia i funkcja źródeł
W pierwszej kolejności wykorzystano oficjalne listy taksonomiczne i krajowe, dokumentację programów monitoringowych, źródła IUCN i BirdLife oraz publikacje naukowe. Instytucjonalne materiały edukacyjne służą przede wszystkim do objaśniania cech biologicznych i identyfikacji. Starsza strona opisująca budowę lub zachowanie nie jest automatycznie podstawą aktualnej klasyfikacji. Jeżeli jej nazewnictwo różni się od przyjętej listy, pierwszeństwo w nazewnictwie ma wskazana podstawa taksonomiczna.
Komunikat prasowy może być użyteczny do ustalenia daty i głównego wyniku, ale przy szczegółach badania preferowano publikację pierwotną. Jeśli wynik jest oszacowaniem modelowym, zachowano to określenie. Jeśli pochodzi z eksperymentu laboratoryjnego, nie przedstawiono go jako bezpośredniego pomiaru zachowania ptaka na swobodzie. Brak dostępu do pełnych danych nie został zastąpiony szacowaniem z wyglądu wykresu.
Tabela 47. Poziom twierdzenia a potrzebny rodzaj potwierdzenia
| Typ twierdzenia | Przykładowy dowód | Granica interpretacji |
|---|---|---|
| Nazwa i ranga taksonomiczna | Wskazana wersja listy i decyzje taksonomiczne | Nie każda baza jest już zsynchronizowana z tą samą wersją |
| Krajowe stwierdzenie | Oficjalna lista z datą i kategorią | Nie jest automatycznie dowodem regularnych lęgów |
| Trend populacji | Program monitoringowy, zakres próby i metoda | Nie obejmuje wszystkich ptaków ani wszystkich miejsc |
| Mechanizm biologiczny | Badanie eksperymentalne lub odpowiednia synteza | Model laboratoryjny może nie obejmować pełnego zachowania w przyrodzie |
| Rekord lub niezwykła obserwacja | Dokumentowany wynik i warunki pomiaru | Rekord nie jest średnią ani normą dla gatunku |
| Wskazówka identyfikacyjna | Źródło opisujące właściwy gatunek i szatę | Jedna cecha może być niewidoczna, zmienna lub wspólna z innymi gatunkami |
Zasady redakcyjne zastosowane w tym wydaniu.
Liczby, obliczenia i brakujące informacje
Sumy liczebności taksonów sprawdzono arytmetycznie. Udziały wyprowadzone z takich sum opisano jako obliczenia własne na podstawie wskazanego zbioru. Zaokrąglonych procentów nie przeliczano na pozornie dokładne liczby gatunków. Nie tworzono rocznych szeregów czasowych z dwóch wartości końcowych. Przedziały, błędy i informacje o próbie przytoczono tam, gdzie były dostępne w wykorzystanym materiale; ich braku nie potraktowano jako dowodu pełnej pewności.
Grafiki i dokumentacja
Grafiki statystyczne przygotowano z jawnie podanych wartości. Schematy objaśniają relacje pojęciowe i procesy, dlatego nie mają udawać fotografii, precyzyjnych map ani skalowanych tablic anatomicznych. Każda grafika ma opis alternatywny i podpis. Do samodzielnego oznaczania należy korzystać z odpowiednio opisanych fotografii i atlasów dokumentacyjnych.
Dane zewnętrzne zachowują warunki wykorzystania określone przez ich dostawców. Szczególną uwagę należy zwrócić na PECBMS, którego polityka danych przewiduje licencję CC BY-NC 4.0. Samodzielne narysowanie wykresu nie znosi warunków dotyczących wykorzystanych danych.
Jak aktualizować bez psucia porównań
Aktualizację należy rozpocząć od sprawdzenia nowej wersji podstawy taksonomicznej i jej zmian. Następnie trzeba skontrolować krajową listę, najnowsze oceny zagrożenia i aktualizacje monitoringu. Zmienione wartości wprowadza się równocześnie do tekstu, tabel i wykresów. Jeśli nowsze źródło dotyczy innego okresu lub zbioru gatunków, starego wyniku nie należy po prostu podmienić bez zmiany podpisu. Historia i definicja wskaźnika są częścią informacji.
Każda istotna korekta powinna wskazywać, co zmieniono i dlaczego: nowy wynik badań, korekta oznaczenia, zmiana taksonomiczna czy naprawa błędu redakcyjnego. To różne przyczyny. Dzięki temu kolejne wydanie pozostaje czytelne także dla osoby, która wcześniej korzystała z innej wersji danych. Profesjonalne opracowanie nie obiecuje nieomylności; umożliwia sprawdzenie i odpowiedzialne poprawienie swoich twierdzeń.
Bibliografia i źródła
Numeracja odpowiada odsyłaczom w tekście. Weryfikacja: 11 listopada 2026. „b.d.” oznacza brak potwierdzonej daty publikacji. Szczegóły zakresów danych zachowano przy wynikach.
[1] Źródło instytucjonalneCornell Lab of Ornithology. Four Keys to Bird Identification. b.d.https://www.allaboutbirds.org/news/four-keys-to-bird-identification/
[2] Źródło instytucjonalneInternational Commission on Zoological Nomenclature. Frequently Asked Questions. b.d.https://www.iczn.org/outreach/faqsRozróżnienie nomenklatury i taksonomii.
[3] Baza / lista / zbiór danychAviList Core Team. AviList: The Global Avian Checklist, v2026. 2026-10-20.https://www.avilist.org/checklist/v2026/Pełna tabela 45 rzędów; liczby gatunków, rodzajów i rodzin. CC BY 4.0. Dane obejmują uwzględnione taksony historycznie wymarłe; bez ponownego liczenia według innego standardu.
[4] Baza / lista / zbiór danychKomisja Faunistyczna Sekcji Ornitologicznej PTZool. Lista awifauny krajowej. 2026-06-01.https://komisjafaunistyczna.pl/lista/Oficjalne nazwy polskie i naukowe gatunków stwierdzonych w Polsce. Lista kończy się pozycją 475. Jej data poprzedza październikowe wydanie AviList v2026.
[5] Źródło instytucjonalneInternational Commission on Zoological Nomenclature. Article 5. Principle of Binominal Nomenclature. b.d.https://code.iczn.org/chapter-2-the-number-of-words-in-the-scientific-names-of-animals/article-5-principle-of-binominal-nomenclature/Reguły budowy nazwy gatunkowej i podgatunkowej.
[6] Źródło instytucjonalneCornell Lab of Ornithology. AviList: A Unified Global Checklist of the World’s Birds is Now Available. 2025.https://www.birds.cornell.edu/home/avilist-unified-global-checklist/Opis integracyjnego podejścia do wyznaczania gatunków. Podane tam liczby dotyczą pierwszego wydania 2025 i nie są liczbami używanymi dla v2026.
[7] Źródło instytucjonalneAviList Core Team. Components of the AviList Checklist. b.d.https://www.avilist.org/checklist/components-of-the-avilist-checklist/Część opisów wciąż odnosi się wprost do v2025. Wykorzystano wyjaśnienie rang, sekwencji i zakresu historycznie wymarłych taksonów, bez traktowania całej strony jako zaktualizowanej dokumentacji v2026.
[8] Źródło instytucjonalneAlaine Camfield / Animal Diversity Web, University of Michigan. Apodidae. b.d.https://animaldiversity.org/accounts/Apodidae/Wykorzystano opis biologii. Historyczne liczby taksonów i stare umieszczenie rodzin w rzędach zastąpiono danymi AviList v2026.
[9] Źródło instytucjonalneBTO. Alcidae – Auks. b.d.https://www.bto.org/learn/about-birds/bird-families/alcidae-auksEkologia nurkowania i porównanie alek z pingwinami; klasyfikację rzędową przyjęto za AviList.
[10] Źródło instytucjonalneAviList Core Team. Annual AviList Update (v2026). 2026.https://www.avilist.org/annual-avilist-update-v2026/Komunikat o aktualizacji i stopniowym dostosowaniu partnerów; nie dowodzi identyczności wszystkich baz w dniu publikacji.
[11] Źródło instytucjonalneNatural History Museum, Londyn. How dinosaurs evolved into birds. b.d.https://www.nhm.ac.uk/discover/how-dinosaurs-evolved-into-birds.html
[12] Publikacja naukowaBrusatte S.L., O’Connor J.K., Jarvis E.D.. The Origin and Diversification of Birds. 2015.https://pubmed.ncbi.nlm.nih.gov/26439352/Current Biology 25: R888–R898. DOI: 10.1016/j.cub.2015.08.003. Przegląd naukowy.
[13] Publikacja naukowaXu X., Barrett P.M.. The origin and early evolution of feathers: implications, uncertainties and future prospects. 2025.https://pmc.ncbi.nlm.nih.gov/articles/PMC11837858/Biology Letters 21: 20240517. DOI: 10.1098/rsbl.2024.0517. Przegląd; wyraźnie omawia nierozstrzygnięte hipotezy.
[14] Źródło instytucjonalneNatural History Museum, London. How did birds and other dinosaurs learn to fly?. b.d.https://www.nhm.ac.uk/discover/how-did-birds-and-other-dinosaurs-learn-to-fly.html
[15] Publikacja naukowaStiller J. i współautorzy. Complexity of avian evolution revealed by family-level genomes. 2024.https://www.nature.com/articles/s41586-024-07323-1Nature 629: 851–860. Analiza genomów 363 gatunków; 218 rodzin według zakresu systematycznego badania.
[16] Źródło instytucjonalneLaura Howard / Animal Diversity Web, University of Michigan. Anseriformes. b.d.https://animaldiversity.org/accounts/Anseriformes/Wykorzystano opis biologii. Historyczne liczby taksonów i stare umieszczenie rodzin w rzędach zastąpiono danymi AviList v2026.
[17] Źródło instytucjonalneRSPB. Mallard — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/mallardWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[18] Źródło instytucjonalneRSPB. Tufted Duck — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/tufted-duckWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[19] Źródło instytucjonalneRSPB. Goosander — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/goosanderWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[20] Źródło instytucjonalneLaura Howard / Animal Diversity Web, University of Michigan. Podicipediformes. b.d.https://animaldiversity.org/accounts/Podicipediformes/Wykorzystano opis biologii. Historyczne liczby taksonów i stare umieszczenie rodzin w rzędach zastąpiono danymi AviList v2026.
[21] Źródło instytucjonalneRSPB. Great Crested Grebe — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/great-crested-grebeWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[22] Źródło instytucjonalneCornell Lab of Ornithology. Common Loon: Overview. b.d.https://www.allaboutbirds.org/guide/Common_LoonOpis lokomocji nura lodowca; nie rozszerzano szczegółów lęgowych na wszystkie nury.
[23] Źródło instytucjonalneBTO. BirdFacts: Lapwing. b.d.https://www.bto.org/learn/about-birds/birdfacts/lapwingCechy wyglądu. Brytyjskich trendów i liczebności nie przenoszono na Polskę.
[24] Źródło instytucjonalneRSPB. Common Sandpiper — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/common-sandpiperWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[25] Źródło instytucjonalneRSPB. Common Tern — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/common-ternWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[26] Źródło instytucjonalneRSPB. Black Headed Gull — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/black-headed-gullWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[27] Źródło instytucjonalneRSPB. Crane Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/craneCechy wyglądu, głos i zachowanie. Dane o występowaniu w UK nie są danymi dla Polski.
[28] Źródło instytucjonalneRSPB. Eurasian Coot: identification. b.d.https://www.rspb.org.uk/birds-and-wildlife/eurasian-coot
[29] Źródło instytucjonalneRSPB. Moorhen: identification. b.d.https://www.rspb.org.uk/birds-and-wildlife/moorhen
[30] Źródło instytucjonalneTanya Dewey / Animal Diversity Web, University of Michigan. Ciconia ciconia. b.d.https://animaldiversity.org/accounts/Ciconia_ciconia/Wykorzystano opis biologii. Historyczne liczby taksonów i stare umieszczenie rodzin w rzędach zastąpiono danymi AviList v2026.
[31] Źródło instytucjonalneNaseem Mazloom / Animal Diversity Web, University of Michigan. Ciconia nigra. b.d.https://animaldiversity.org/accounts/Ciconia_nigra/Wykorzystano opis biologii. Historyczne liczby taksonów i stare umieszczenie rodzin w rzędach zastąpiono danymi AviList v2026.
[32] Źródło instytucjonalneBTO. BirdFacts: White Stork. b.d.https://www.bto.org/learn/about-birds/birdfacts/white-storkCechy wyglądu i odmienność zachowań migracyjnych między populacjami.
[33] Źródło instytucjonalneJustin Bower i Daniel Rabago / Animal Diversity Web, University of Michigan. Ardea cinerea. b.d.https://animaldiversity.org/accounts/Ardea_cinerea/Wykorzystano opis biologii. Historyczne liczby taksonów i stare umieszczenie rodzin w rzędach zastąpiono danymi AviList v2026.
[34] Źródło instytucjonalneRSPB. Grey Heron — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/grey-heronWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[35] Źródło instytucjonalneRSPB. Great White Egret — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/great-white-egretWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[36] Źródło instytucjonalneLaura Howard / Animal Diversity Web, University of Michigan. Phalacrocoracidae. b.d.https://animaldiversity.org/accounts/Phalacrocoracidae/Wykorzystano opis biologii. Historyczne liczby taksonów i stare umieszczenie rodzin w rzędach zastąpiono danymi AviList v2026.
[37] Źródło instytucjonalneRSPB. Cormorant — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/cormorantWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[38] Źródło instytucjonalneDepartment of Conservation, New Zealand. Albatross. b.d.https://www.doc.govt.nz/nature/native-animals/birds/birds-a-z/albatrosses/Wykorzystano opis morskiego trybu życia i niskiej produktywności; liczby gatunków z tej strony nie są zgodne z przyjętą tu listą i nie zostały użyte.
[39] Źródło instytucjonalneLaura Howard / Animal Diversity Web, University of Michigan. Sphenisciformes. b.d.https://animaldiversity.org/accounts/Sphenisciformes/Wykorzystano opis biologii. Historyczne liczby taksonów i stare umieszczenie rodzin w rzędach zastąpiono danymi AviList v2026.
[40] Źródło instytucjonalneLaura Howard / Animal Diversity Web, University of Michigan. Galliformes. b.d.https://animaldiversity.org/accounts/Galliformes/Wykorzystano opis biologii. Historyczne liczby taksonów i stare umieszczenie rodzin w rzędach zastąpiono danymi AviList v2026.
[41] Źródło instytucjonalneRSPB. Pheasant — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/pheasantWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[42] Źródło instytucjonalneRSPB. Grey Partridge — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/grey-partridgeWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[43] Źródło instytucjonalneKari Kirschbaum / Animal Diversity Web, University of Michigan. Accipitridae. b.d.https://animaldiversity.org/accounts/Accipitridae/Wykorzystano opis biologii. Historyczne liczby taksonów i stare umieszczenie rodzin w rzędach zastąpiono danymi AviList v2026.
[44] Źródło instytucjonalneRSPB. Buzzard — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/buzzardWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[45] Źródło instytucjonalneRSPB. Sparrowhawk — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/sparrowhawkWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[46] Źródło instytucjonalneKari Kirschbaum / Animal Diversity Web, University of Michigan. Falconidae. b.d.https://animaldiversity.org/accounts/Falconidae/Wykorzystano opis biologii. Historyczne liczby taksonów i stare umieszczenie rodzin w rzędach zastąpiono danymi AviList v2026.
[47] Źródło instytucjonalneRSPB. Kestrel — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/kestrelWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[48] Źródło instytucjonalneRSPB. Peregrine Falcon — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/peregrine-falconWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[49] Źródło instytucjonalneDanielle Cholewiak / Animal Diversity Web, University of Michigan. Strigiformes. b.d.https://animaldiversity.org/accounts/Strigiformes/Wykorzystano opis biologii. Historyczne liczby taksonów i stare umieszczenie rodzin w rzędach zastąpiono danymi AviList v2026.
[50] Źródło instytucjonalneRSPB. Tawny Owl — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/tawny-owlWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[51] Źródło instytucjonalneRSPB. Long Eared Owl — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/long-eared-owlWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[52] Źródło instytucjonalneRSPB. Barn Owl — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/barn-owlWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[53] Źródło instytucjonalneThe Barn Owl Trust. Barn Owl distribution. b.d.https://www.barnowltrust.org.uk/barn-owl-facts/barn-owl-distribution-uk/Wykorzystano wyłącznie informację o geograficznej zmienności barwy płomykówki; dawnego światowego zakresu gatunku i liczby podgatunków nie przenoszono do klasyfikacji.
[54] Źródło instytucjonalneAlaine Camfield / Animal Diversity Web, University of Michigan. Columbidae. b.d.https://animaldiversity.org/accounts/Columbidae/Wykorzystano opis biologii. Historyczne liczby taksonów i stare umieszczenie rodzin w rzędach zastąpiono danymi AviList v2026.
[55] Źródło instytucjonalneRSPB. Woodpigeon — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/woodpigeonWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[56] Źródło instytucjonalneRSPB. Collared Dove — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/collared-doveWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[57] Źródło instytucjonalneRSPB. Cuckoo — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/cuckooWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[58] Źródło instytucjonalneCornell Lab of Ornithology. Yellow-billed Cuckoo: Life History. b.d.https://www.allaboutbirds.org/guide/yellow-billed_cuckoo/lifehistoryBudowa własnego gniazda u Coccyzus americanus jako przykład, że pasożytnictwo lęgowe nie obejmuje wszystkich kukułkowych.
[59] Źródło instytucjonalneRSPB. Great Spotted Woodpecker — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/great-spotted-woodpeckerWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[60] Źródło instytucjonalneRSPB. Green Woodpecker — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/green-woodpeckerWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[61] Źródło instytucjonalneBTO. BirdFacts: Green Woodpecker. b.d.https://www.bto.org/learn/about-birds/birdfacts/green-woodpeckerŻerowanie na mrówkach na ziemi oraz cechy upierzenia; bez przenoszenia brytyjskich danych populacyjnych.
[62] Źródło instytucjonalneSmithsonian’s National Zoo and Conservation Biology Institute. Ostrich. b.d.https://nationalzoo.si.edu/animals/ostrichCechy strusia jako ptaka naziemnego.
[63] Publikacja naukowaHarshman J. i in.. Phylogenomic evidence for multiple losses of flight in ratite birds. 2008.https://pmc.ncbi.nlm.nih.gov/articles/PMC2533212/PNAS 105:13462–13467; DOI 10.1073/pnas.0803242105. Wniosek o wielokrotnym zaniku lotu, nie kompletny współczesny katalog ptaków.
[64] Źródło instytucjonalneRSPB. Great Tit — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/great-titWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[65] Źródło instytucjonalneRSPB. Nuthatch — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/nuthatchWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[66] Źródło instytucjonalneRSPB. Blackbird — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/blackbirdWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[67] Źródło instytucjonalneRSPB. Raven — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/ravenWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[68] Źródło instytucjonalneAlaine Camfield / Animal Diversity Web, University of Michigan. Trochilidae. b.d.https://animaldiversity.org/accounts/Trochilidae/Wykorzystano opis biologii. Historyczne liczby taksonów i stare umieszczenie rodzin w rzędach zastąpiono danymi AviList v2026.
[69] Źródło instytucjonalneRSPB. Swift — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/swiftWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[70] Źródło instytucjonalneRSPB. Swallow — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/swallowWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[71] Źródło instytucjonalneRSPB. House Martin — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/house-martinWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[72] Źródło instytucjonalneRSPB. Nightjar Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/nightjarCechy wyglądu i aktywność; bez przenoszenia brytyjskiej kategorii ochronnej.
[73] Źródło instytucjonalneKari Kirschbaum / Animal Diversity Web, University of Michigan. Alcedinidae. b.d.https://animaldiversity.org/accounts/Alcedinidae/Wykorzystano opis biologii. Historyczne liczby taksonów i stare umieszczenie rodzin w rzędach zastąpiono danymi AviList v2026.
[74] Źródło instytucjonalneRSPB. Kingfisher — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/kingfisherWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[75] Źródło instytucjonalneRSPB. Hoopoe Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/hoopoeCechy wyglądu; status w Polsce ustalono odrębnie na podstawie KF.
[76] Źródło instytucjonalneDepartment of Conservation, New Zealand. Kākāpō. b.d.https://www.doc.govt.nz/nature/native-animals/birds/birds-a-z/kakapo/Wykorzystano informacje o nocnym trybie życia i nielotności; nie przenoszono dynamicznego licznika populacji.
[77] Źródło instytucjonalneDepartment of Conservation, New Zealand. Kākā. b.d.https://www.doc.govt.nz/nature/native-animals/birds/birds-a-z/kakaZróżnicowany pokarm papugi Nestor meridionalis; nie jest to opis wszystkich papug.
[78] Źródło instytucjonalneKomisja Faunistyczna Sekcji Ornitologicznej PTZool. Objaśnienia do listy awifauny krajowej. b.d.https://komisjafaunistyczna.pl/objasnienia/Kategorie pochodzenia A–E i statusy występowania; lista krajowa obejmuje A+B+C.
[79] Źródło instytucjonalneSan Diego Zoo Wildlife Alliance. Flamingo. b.d.https://animals.sandiegozoo.org/animals/flamingo?qt-animals_page_content_tabs=1Wykorzystano mechanikę filtrowania pokarmu. Nie przejęto nieaktualnego zdania o statusie P. ruber jako podgatunku ani ocen zagrożenia.
[80] Źródło instytucjonalneCornell Lab of Ornithology. White-tailed Tropicbird — Overview. b.d.https://www.allaboutbirds.org/guide/whttroOpis Phaethon lepturus. Cech dorosłych nie przenoszono na osobniki młode.
[81] Źródło instytucjonalneSan Diego Zoo Wildlife Alliance. Kagu. b.d.https://animals.sandiegozoo.org/animals/kaguWykorzystano pochodzenie, naziemne żerowanie i funkcje skrzydeł; bez przytaczania niedatowanych wielkości populacji.
[82] Źródło instytucjonalneSmithsonian’s National Zoo and Conservation Biology Institute. Sunbittern. b.d.https://nationalzoo.si.edu/animals/sunbitternWykorzystano opis zachowania Eurypyga helias. Nie przejęto dawnego przypisania do Gruiformes; rząd według AviList v2026.
[83] Źródło instytucjonalneLos Angeles Zoo and Botanical Gardens. Turaco. b.d.https://lazoo.org/explore-your-zoo/our-animals/birds/turaco/Opis nadrzewnego ruchu i diety wybranych turaków. Nie uogólniono szczegółów na wszystkie gatunki Musophagiformes.
[84] Publikacja naukowaGodoy-Vitorino F. i in.. Comparative analyses of foregut and hindgut bacterial communities in hoatzins and cows. 2012.https://www.researchwithrutgers.org/en/publications/comparative-analyses-of-foregut-and-hindgut-bacterial-communities/ISME Journal 6: 531–541; DOI 10.1038/ismej.2011.131. Rekord instytucjonalny z abstraktem; wykorzystano mechanizm fermentacji i porównanie funkcji, bez ilościowej ekstrapolacji mikrobiomu.
[85] Źródło instytucjonalneOregon Zoo. Speckled mousebird. b.d.https://www.oregonzoo.org/animals/speckled-mousebirdOpis Colius striatus: wspinanie, dieta i społeczność. Nie wykorzystano niedatowanych wartości długości życia.
[86] Źródło instytucjonalneMiller E., Cornell Lab of Ornithology. Add Flair to Your Life List By Tracking Down Evolution’s Most Distinctive Birds. 2018-09-19.https://www.allaboutbirds.org/news/add-flair-to-your-life-list-by-tracking-down-evolutions-most-distinctive-birds/Wykorzystano informacje o odrębności i wyspowym występowaniu Leptosomus discolor; bez rekonstruowania pełnej filogenezy z ilustracji.
[87] Źródło instytucjonalneCornell Lab of Ornithology. Coppery-tailed Trogon — Life History. b.d.https://www.allaboutbirds.org/guide/Elegant_Trogon/lifehistoryAktualny nagłówek dotyczy Trogon ambiguus, mimo zachowanego dawnego adresu Elegant_Trogon. Nie użyto oszacowania populacji sprzed podziału gatunków.
[88] Źródło instytucjonalneSmithsonian’s National Zoo and Conservation Biology Institute. Kori bustard. b.d.https://www.nationalzoo.si.edu/animals/kori-bustardOpis Ardeotis kori: siedlisko, dieta i opieka lęgowa. Bez rekordów masy i niedatowanych trendów.
[89] Publikacja naukowaSeddon N., Tobias J. A., Butchart S. H. M.. Group living, breeding behaviour and territoriality in the Subdesert Mesite Monias benschi. 2003.https://www.tobiaslab.net/wp-content/uploads/2020/05/Seddon-et-al.-2003-Group-living-breeding-behaviour-and-territoriality-in-the-Subdesert-Mesite-Monias-benschi.-Ibis.pdfIbis 145: 277–294. Badania z lat 1997–2000; zachowano zakres gatunkowy. Klasyfikację rzędową zaktualizowano według AviList.
[90] Źródło instytucjonalneRoyal Society; rozmowa z Jochenem Muellerem i Lorną J. Gibson. How the Namaqua Sandgrouse defies the desert with its water-carrying capabilities. 2023-05-04.https://royalsociety.org/blog/2023/05/how-the-namaqua-sandgrouse-defies-the-desert-with-its-water-carrying-capabilities/Autorzy objaśniają własne badanie piór dorosłych samców Pterocles namaqua, Journal of the Royal Society Interface, DOI 10.1098/rsif.2022.0878.
[91] Źródło instytucjonalneThe Peregrine Fund. Red-legged Seriema. b.d.https://peregrinefund.org/explore-raptors-species/seriema/red-legged-seriemaOpis Cariama cristata. Nie wykorzystano rekordowej prędkości; porównanie z sekretarzem dotyczy funkcji ekologicznej.
[92] Publikacja naukowaBrinkløv S., Elemans C. P. H., Ratcliffe J. M.. Oilbirds produce echolocation signals beyond their best hearing range and adjust signal design to natural light conditions. 2017.https://pure.au.dk/portal/en/publications/oilbirds-produce-echolocation-signals-beyond-their-best-hearing-r/Royal Society Open Science 4: 170255, DOI 10.1098/rsos.170255. Obserwacje sygnałów dzikich tłuszczaków przy wlocie i wylocie z kryjówek; nie jest opisem wszystkich ptaków nocnych.
[93] Źródło instytucjonalneDeGroote L. W.. Chasing the ghost bird. 2021-01-04.https://bou.org.uk/blog-degroote-chasing-ghost-bird/Komentarz autora badania Citizen science data reveals the cryptic migration of the Common Potoo Nyctibius griseus in Brazil, DOI 10.1111/ibi.12904. Wykorzystano opis kamuflażu i zakresu badania; nie ekstrapolowano migracji na całą rodzinę.
[94] Źródło instytucjonalneAustralian Museum. Tawny Frogmouth. b.d.https://australian.museum/learn/animals/birds/tawny-frogmouth/Opis Podargus strigoides: czatowanie, pokarm, dzienny kamuflaż i gniazdo. Bez przenoszenia kalendarza australijskiego na inne regiony.
[95] Źródło instytucjonalneBirdLife Australia. June’s bird of the month: Australian Owlet-nightjar. 2024-06-01.https://birdlife.org.au/news/june-bird-of-the-month-australian-owlet-nightjar/Opis Aegotheles cristatus. Rangę rzędu przyjęto z AviList; nie powtórzono niepewnych sformułowań o dokładnym pokrewieństwie.
[96] Źródło instytucjonalneCornell Lab of Ornithology. Turkey Vulture — Life History. b.d.https://www.allaboutbirds.org/guide/Turkey_Vulture/lifehistoryWykorzystano dietę i wykrywanie padliny u Cathartes aura, nie jako uniwersalną cechę wszystkich padlinożerców.
[97] Źródło instytucjonalneCornell Lab of Ornithology. Black Vulture — Life History. b.d.https://www.allaboutbirds.org/guide/Black_Vulture/lifehistoryPorównanie wykorzystania wzroku i obserwowania innych padlinożerców u Coragyps atratus. Nie przytoczono niedatowanej populacji globalnej.
[98] Źródło instytucjonalneOpenStax. Biology 2e, 29.5: Birds. 2018.https://openstax.org/books/biology-2e/pages/29-5-birdsPodręcznik biologii. Data odnosi się do wydania Biology 2e.
[99] Publikacja naukowaMoore A.J., Schachner E.R.. When the lung invades: a review of avian postcranial skeletal pneumaticity. 2025.https://pmc.ncbi.nlm.nih.gov/articles/PMC12077225/Philosophical Transactions B 380: 20230427. DOI: 10.1098/rstb.2023.0427.
[100] Publikacja naukowaMaina J.N.. Structure and function of the avian respiratory system. 2025.https://pmc.ncbi.nlm.nih.gov/articles/PMC11864839/Philosophical Transactions B 380: 20230435. DOI: 10.1098/rstb.2023.0435. Źródło opisu anatomii i wentylacji.
[101] Źródło instytucjonalneSmithsonian National Air and Space Museum. How do birds fly? — How Things Fly. b.d.https://howthingsfly.si.edu/ask-an-explainer/how-do-birds-fly
[102] Źródło instytucjonalneNASA Glenn Research Center. Bernoulli and Newton. b.d.https://www1.grc.nasa.gov/beginners-guide-to-aeronautics/bernoulli-and-newton/Objaśnienie siły nośnej i błędu teorii jednakowego czasu przepływu.
[103] Źródło instytucjonalneBritish Trust for Ornithology. Bird migration — a masterclass. b.d.https://www.bto.org/learn/about-birds/articles/bird-migration-masterclass
[104] Publikacja naukowaSachs G., Traugott J., Nesterova A.P., Bonadonna F.. Experimental verification of dynamic soaring in albatrosses. 2013.https://pubmed.ncbi.nlm.nih.gov/24172888/Journal of Experimental Biology 216: 4222–4232.
[105] Publikacja naukowaHedenström A., Norevik G., Warfvinge K., Andersson A., Bäckman J., Åkesson S.. Annual 10-Month Aerial Life Phase in the Common Swift Apus apus. 2016.https://pubmed.ncbi.nlm.nih.gov/28094028/Current Biology. DOI: 10.1016/j.cub.2016.09.014. Dotyczy monitorowanych osobników i okresu pozalęgowego.
[106] Publikacja naukowaRattenborg N.C. i współautorzy. Evidence that birds sleep in mid-flight. 2016.https://www.nature.com/articles/ncomms12468Nature Communications 7: 12468. Bezpośredni zapis aktywności mózgu fregat.
[107] Źródło instytucjonalneCornell Lab of Ornithology, Bird Academy. Everything You Need To Know About Feathers. b.d.https://academy.allaboutbirds.org/feathers-article/
[108] Źródło instytucjonalneAmerican Museum of Natural History. Fur and Feathers: Composition and Structure. b.d.https://www.amnh.org/research/science-conservation/material-type/feathers-and-fur/composition-structure
[109] Źródło instytucjonalneCornell Lab of Ornithology. The Basics: Feather Molt. b.d.https://www.allaboutbirds.org/news/the-basics-feather-molt/
[110] Źródło instytucjonalneBritish Trust for Ornithology. Moult in Birds. b.d.https://www.bto.org/sites/default/files/moult-in-birds-web.pdfMateriał PDF. Nie przypisano daty wydania na podstawie daty indeksowania pliku.
[111] Źródło instytucjonalneCornell Lab of Ornithology, Bird Academy. How Birds Make Colorful Feathers. b.d.https://academy.allaboutbirds.org/how-birds-make-colorful-feathers/
[112] Publikacja naukowaMcKechnie A.E., Freeman M.T., Brigham R.M.. Avian Heterothermy: A Review of Patterns and Processes. 2023.https://pubmed.ncbi.nlm.nih.gov/37156524/Integrative and Comparative Biology 63: 1028–1038. DOI: 10.1093/icb/icad029.
[113] Publikacja naukowaWolf B.O. i współautorzy. Extreme and variable torpor among high-elevation Andean hummingbird species. 2020.https://pmc.ncbi.nlm.nih.gov/articles/PMC7532710/Biology Letters 16: 20200428. 26 osobników, sześć gatunków; nocne pomiary w niewoli przy naturalnym przebiegu temperatury.
[114] Publikacja naukowaTattersall G.J., Andrade D.V., Abe A.S.. Heat exchange from the toucan bill reveals a controllable vascular thermal radiator. 2009.https://pubmed.ncbi.nlm.nih.gov/19628866/Science 325: 468–470. Badanie tukana wielkiego, nie wszystkich ptaków.
[115] Publikacja naukowaHughes M.R.. Regulation of salt gland, gut and kidney interactions. 2003.https://pubmed.ncbi.nlm.nih.gov/14613781/Comparative Biochemistry and Physiology A 136: 507–524. DOI: 10.1016/j.cbpb.2003.09.005.
[116] Publikacja naukowaNavalón G., Bright J.A., Marugán-Lobón J., Rayfield E.J.. The evolutionary relationship among beak shape, mechanical advantage, and feeding ecology in modern birds. 2019.https://pubmed.ncbi.nlm.nih.gov/30537045/Evolution 73: 422–435. DOI: 10.1111/evo.13655; publikacja online 2018, tom czasopisma 2019.
[117] Publikacja naukowaBright J.A., Marugán-Lobón J., Cobb S.N., Rayfield E.J.. The shapes of bird beaks are highly controlled by nondietary factors. 2016.https://pmc.ncbi.nlm.nih.gov/articles/PMC4868483/PNAS 113: 5352–5357. DOI: 10.1073/pnas.1602683113. Analiza ptaków drapieżnych.
[118] Źródło instytucjonalneDucks Unlimited. Understanding Waterfowl: Duck Digestion. b.d.https://www.ducks.org/conservation/waterfowl-research-science/understanding-waterfowl-duck-digestion
[119] Publikacja naukowaRico-Guevara A., Fan T.-H., Rubega M.A.. Hummingbird tongues are elastic micropumps. 2015.https://pmc.ncbi.nlm.nih.gov/articles/PMC4632618/Proceedings of the Royal Society B 282: 20151014. DOI: 10.1098/rspb.2015.1014.
[120] Źródło instytucjonalneCornell Lab of Ornithology. Do all birds have gizzards?. b.d.https://www.allaboutbirds.org/news/do-all-birds-have-gizzards/
[121] Publikacja naukowavon Bayern A.M.P. i współautorzy. Compound tool construction by New Caledonian crows. 2018.https://www.nature.com/articles/s41598-018-33458-zScientific Reports 8: 15676. Zadanie eksperymentalne z ośmioma dziko schwytanymi osobnikami.
[122] Publikacja naukowaLind O., Mitkus M., Olsson P., Kelber A.. Ultraviolet vision in birds: the importance of transparent eye media. 2014.https://pmc.ncbi.nlm.nih.gov/articles/PMC3843830/Proceedings of the Royal Society B 281: 20132209; publikacja online 2013. DOI: 10.1098/rspb.2013.2209.
[123] Publikacja naukowaStoddard M.C. i współautorzy. Wild hummingbirds discriminate nonspectral colors. 2020.https://pmc.ncbi.nlm.nih.gov/articles/PMC7334476/PNAS 117: 15112–15122. DOI: 10.1073/pnas.1919377117. Testy behawioralne z karmnikami i bodźcami świetlnymi.
[124] Publikacja naukowaOlkowicz S., Kocourek M., Lučan R.K., Porteš M., Fitch W.T., Herculano-Houzel S., Němec P.. Birds have primate-like numbers of neurons in the forebrain. 2016.https://pmc.ncbi.nlm.nih.gov/articles/PMC4932926/PNAS 113: 7255–7260. DOI: 10.1073/pnas.1517131113. Porównawcze liczenie komórek, nie uniwersalny test inteligencji.
[125] Źródło instytucjonalneCornell Lab of Ornithology, Bird Academy. Bird Song. b.d.https://academy.allaboutbirds.org/birdsong/
[126] Publikacja naukowaOdom K.J., Hall M.L., Riebel K., Omland K.E., Langmore N.E.. Female song is widespread and ancestral in songbirds. 2014.https://www.nature.com/articles/ncomms4379Nature Communications 5: 3379. 229 z 323 gatunków z jednoznacznymi danymi; próba nie obejmowała całej światowej awifauny.
[127] Publikacja naukowaNevitt G.A., Losekoot M., Weimerskirch H.. Evidence for olfactory search in wandering albatross, Diomedea exulans. 2008.https://pmc.ncbi.nlm.nih.gov/articles/PMC2290754/PNAS 105: 4576–4581. DOI: 10.1073/pnas.0709047105.
[128] Publikacja naukowaKettler L., Griebel H., Ferger R., Wagner H.. Combination of Interaural Level and Time Difference in Azimuthal Sound Localization in Owls. 2017.https://pmc.ncbi.nlm.nih.gov/articles/PMC5779116/eNeuro 4: ENEURO.0238-17.2017. DOI: 10.1523/ENEURO.0238-17.2017. Eksperyment dotyczący łączenia wskazówek słuchowych u płomykówek.
[129] Źródło instytucjonalneCornell Lab of Ornithology. The Basics of Bird Migration: How, Why, When, and Where. b.d.https://www.allaboutbirds.org/news/the-basics-how-why-and-where-of-bird-migration/
[130] Źródło instytucjonalneU.S. Fish & Wildlife Service. Migration: It’s a Risky Journey!. b.d.https://www.fws.gov/story/migration-its-risky-journey
[131] Źródło instytucjonalneCornell Lab of Ornithology. Navigation: How Birds Find Their Way When They Migrate. b.d.https://www.allaboutbirds.org/news/the-basics-migration-navigation/
[132] Publikacja naukowaXu J., Jarocha L.E., Zollitsch T. i współautorzy. Magnetic sensitivity of cryptochrome 4 from a migratory songbird. 2021.https://www.nature.com/articles/s41586-021-03618-9Nature 594: 535–540. Badanie białka in vitro; nie pełna demonstracja działania nawigacji w mózgu ptaka.
[133] Publikacja naukowaEgevang C., Stenhouse I.J., Phillips R.A., Petersen A., Fox J.W., Silk J.R.D.. Tracking of Arctic terns Sterna paradisaea reveals longest animal migration. 2010.https://pmc.ncbi.nlm.nih.gov/articles/PMC2836663/PNAS 107: 2078–2081. DOI: 10.1073/pnas.0909493107. Tytuł historyczny; artykuł nie traktuje go jako rankingu rekordów aktualnego w 2026 r.
[134] Publikacja naukowaNyffeler M., Şekercioğlu Ç.H., Whelan C.J.. Insectivorous birds consume an estimated 400–500 million tons of prey annually. 2018.https://pmc.ncbi.nlm.nih.gov/articles/PMC6061143/The Science of Nature 105: 47. DOI: 10.1007/s00114-018-1571-z. Ekstrapolacja 103 oszacowań konsumpcji, siedem biomów; nie 103 niezależne eksperymenty.
[135] Źródło instytucjonalneCornell Lab of Ornithology, NestWatch. Nesting Cycle. b.d.https://nestwatch.org/learn/general-bird-nest-info/nesting-cycle/
[136] Źródło instytucjonalneBritish Trust for Ornithology. Incubation. b.d.https://www.bto.org/learn/about-birds/behaviour/incubation
[137] Źródło instytucjonalneBritish Trust for Ornithology. BirdFacts: Biology. b.d.https://www.bto.org/learn/about-birds/birdfacts/about-birdfacts/biology
[138] Źródło instytucjonalneBritish Trust for Ornithology. Infidelity in breeding birds. b.d.https://www.bto.org/learn/about-birds/behaviour/infidelityWykorzystano rozróżnienie monogamii społecznej i genetycznej; nie przejmowano globalnych procentów bez zakresu próby.
[139] Źródło instytucjonalneCornell Lab of Ornithology. Acorn Woodpecker — Life History. b.d.https://www.allaboutbirds.org/guide/Acorn_Woodpecker/lifehistory
[140] Publikacja naukowaStoddard M.C., Hauber M.E.. Colour, vision and coevolution in avian brood parasitism. 2017.https://pmc.ncbi.nlm.nih.gov/articles/PMC5444060/Philosophical Transactions B 372: 20160339. DOI: 10.1098/rstb.2016.0339.
[141] Źródło instytucjonalneFlorida Fish and Wildlife Conservation Commission. Florida Scrub-Jay. b.d.https://myfwc.com/wildlifehabitats/profiles/birds/songbirds/florida-scrub-jay/Oficjalny opis gatunku i grup rodzinnych.
[142] Publikacja naukowaBallerini M. i in.. Interaction ruling animal collective behavior depends on topological rather than metric distance: Evidence from a field study. 2008.https://pmc.ncbi.nlm.nih.gov/articles/PMC2234121/Badanie przestrzennej organizacji stad szpaków; nie uniwersalna reguła wszystkich stad.
[143] Publikacja naukowaBrown C. R. i in.. Social foraging and the associated benefits of group-living in Cliff Swallows decrease over 40 years. 2024.https://pmc.ncbi.nlm.nih.gov/articles/PMC11469590/Długoterminowe badania w zachodniej Nebrasce; przyczyna zmiany zachowania pozostała nierozstrzygnięta.
[144] Publikacja naukowaLowney A. M., Bolopo D., Krochuk B. A., Thomson R. L.. The Large Communal Nests of Sociable Weavers Provide Year-Round Insulated Refuge for Weavers and Pygmy Falcons. 2020.https://www.frontiersin.org/journals/ecology-and-evolution/articles/10.3389/fevo.2020.570006/fullPomiary mikroklimatu wspólnych konstrukcji gniazdowych w Kalahari.
[145] Publikacja naukowaCardas A., Hewett Ragheb E. L., Miller K. E., Powell A. N.. Evidence of a load-lightening helper effect in Florida Scrub-Jays: implications for translocation. 2023.https://ace-eco.org/vol18/iss2/art17/Ocala National Forest, 111 grup rodzinnych; rozdzielenie wysiłku rodziców od liczby wychowanych młodych.
[146] Publikacja naukowaBrown C. R., Brown M. B.. Ectoparasitism as a Cost of Coloniality in Cliff Swallows (Hirundo Pyrrhonota). 1986.https://esajournals.onlinelibrary.wiley.com/doi/10.2307/1938676Doświadczenia w koloniach jaskółek w Nebrasce; obecna nazwa gatunku: Petrochelidon pyrrhonota.
[147] Publikacja naukowaCresswell W.. Flocking is an effective anti-predation strategy in redshanks, Tringa totanus. 1994.https://research-portal.st-andrews.ac.uk/en/publications/flocking-is-an-effective-anti-predation-strategy-in-redshanks-tri/Zimujące krwawodzioby w estuarium w południowo-wschodniej Szkocji.
[148] Publikacja naukowaQuinn J. L., Cresswell W.. Testing domains of danger in the selfish herd: sparrowhawks target widely spaced redshanks in flocks. 2006.https://pmc.ncbi.nlm.nih.gov/articles/PMC1634896/Badanie naturalnych ataków krogulców; zależność ryzyka od rozmieszczenia wewnątrz stada.
[149] Źródło instytucjonalneNatural History Museum, Londyn. Robin (Erithacus rubecula). b.d.https://www.nhm.ac.uk/discover/robin-erithacus-rubecula.htmlPrzykład sezonowej zmiany organizacji terytorialnej.
[150] Źródło instytucjonalneCornell Lab of Ornithology, Bird Academy. Bird Academy’s A-to-Z Glossary of Bird Terms. b.d.https://academy.allaboutbirds.org/bird-academys-a-to-z-glossary-of-bird-terms/Wykorzystano pojęcia demografii i alokacji zasobów, nie historyczne liczby gatunków z haseł systematycznych.
[151] Baza / lista / zbiór danychBritish Trust for Ornithology. Blue Tit — BirdFacts. b.d.https://www.bto.org/learn/about-birds/birdfacts/blue-titParametry typowe według zestawienia BTO; nie dane o polskiej populacji w 2026 roku.
[152] Baza / lista / zbiór danychBritish Trust for Ornithology. Blackbird — BirdFacts. b.d.https://www.bto.org/learn/about-birds/birdfacts/blackbirdParametry typowe według zestawienia BTO; lęgi zastępcze nie są podstawą prostego mnożenia liczby lęgów.
[153] Baza / lista / zbiór danychBritish Trust for Ornithology. Manx Shearwater — BirdFacts. b.d.https://www.bto.org/learn/about-birds/birdfacts/manx-shearwaterParametry typowe burzyka północnego; wartości nie opisują wszystkich ptaków morskich.
[154] Publikacja naukowaMartin T. E.. Avian Life History Evolution in Relation to Nest Sites, Nest Predation, and Food. 1995.https://esajournals.onlinelibrary.wiley.com/doi/10.2307/2937160Analiza porównawcza 123 północnoamerykańskich gatunków wróblowych i dzięciołowych.
[155] Publikacja naukowaDaan S., Deerenberg C., Dijkstra C.. Increased daily work precipitates natural death in the kestrel. 1996.https://research.rug.nl/en/publications/increased-daily-work-precipitates-natural-death-in-the-kestrel/Analiza terminów śmierci 63 pustułek po manipulacjach wielkością lęgu; nie ogólny wskaźnik śmiertelności gatunku.
[156] Publikacja naukowaBird J. P. i in.. Generation lengths of the world's birds and their implications for extinction risk. 2020.https://pubmed.ncbi.nlm.nih.gov/32058610/Długości pokolenia oszacowane z danych i modeli; nie bezpośrednie pomiary wszystkich gatunków.
[157] Publikacja naukowaBouwhuis S., Sheldon B. C., Verhulst S., Charmantier A.. Great tits growing old: selective disappearance and the partitioning of senescence to stages within the breeding cycle. 2009.https://research.rug.nl/en/publications/great-tits-growing-old-selective-disappearance-and-the-partitioni/Długoterminowe dane bogatek z Wytham; starzenie osobników i zmiana składu próby to różne procesy.
[158] Publikacja naukowaWenny D.G. i współautorzy. The Need to Quantify Ecosystem Services Provided By Birds. 2011.https://academic.oup.com/auk/article/128/1/1/5148456The Auk 128: 1–14. Zasady pomiaru i interpretowania usług ekosystemowych.
[159] Publikacja naukowaRogers H.S. i współautorzy. Effects of an invasive predator cascade to plants via mutualism disruption. 2017.https://pmc.ncbi.nlm.nih.gov/articles/PMC5344968/Nature Communications 8: 14557. Porównanie Guam i trzech pobliskich wysp; dwa gatunki drzew o mięsistych owocach.
[160] Publikacja naukowaMichel N.L., Whelan C.J., Verutes G.M.. Ecosystem services provided by Neotropical birds. 2020.https://academic.oup.com/condor/article/122/3/duaa022/5820545The Condor 122: duaa022. DOI: 10.1093/condor/duaa022. Przegląd regionalny; wnioski nie są jednolitym oszacowaniem świata.
[161] Publikacja naukowaHill J.E., DeVault T.L., Beasley J.C., Rhodes O.E. Jr, Belant J.L.. Effects of vulture exclusion on carrion consumption by facultative scavengers. 2018.https://pmc.ncbi.nlm.nih.gov/articles/PMC5838040/Ecology and Evolution. DOI: 10.1002/ece3.3840. Eksperyment terenowy; nie uniwersalny pomiar wszystkich usług padlinożerców.
[162] Publikacja naukowaHolt B.G. i in.. An update of Wallace’s zoogeographic regions of the world. 2013.https://pubmed.ncbi.nlm.nih.gov/23258408/Science 339:74–78; DOI 10.1126/science.1228282. Analiza obejmuje płazy, ptaki i ssaki; nie tylko ptaki.
[163] Baza / lista / zbiór danychBirdLife International. Information about datasets: distribution maps and Area of Habitat. b.d.https://datazone.birdlife.org/dataset-information
[164] Publikacja naukowaQuintero I., Jetz W.. Global elevational diversity and diversification of birds. 2018.https://www.nature.com/articles/nature25794Nature 555:246–250; DOI 10.1038/nature25794.
[165] Publikacja naukowaSonne J., Rahbek C.. Idiosyncratic patterns of local species richness and turnover define global biodiversity hotspots. 2024.https://pubmed.ncbi.nlm.nih.gov/38190521/PNAS 121:e2313106121; DOI 10.1073/pnas.2313106121. Badanie 134 regionów górskich, z zastosowaniem ówczesnej taksonomii IOC v10.2.
[166] Źródło instytucjonalneBirdLife International. Terms and definitions. b.d.https://datazone.birdlife.org/about-our-science/terms-and-definitionsTerminologia zakresu występowania, sezonowości i endemizmu. Definicje nie są osobnymi spisami gatunków.
[167] Baza / lista / zbiór danychCornell Lab of Ornithology / eBird Science. Range maps. b.d.https://science.ebird.org/en/atlasny/use-ebird-data/atlasny/range-maps
[168] Publikacja naukowaBrooks T.M. i in.. Measuring Terrestrial Area of Habitat (AOH) and Its Utility for the IUCN Red List. 2019.https://pubmed.ncbi.nlm.nih.gov/31324345/Trends in Ecology & Evolution 34:977–986; DOI 10.1016/j.tree.2019.06.009.
[169] Źródło instytucjonalneBirdLife International. Flyways. b.d.https://datazone.birdlife.org/about-our-science/flyways
[170] Źródło instytucjonalneRSPB. Blue Tit — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/blue-titWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[171] Źródło instytucjonalneRSPB. House Sparrow — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/house-sparrowWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[172] Źródło instytucjonalneRSPB. Tree Sparrow — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/tree-sparrowWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[173] Źródło instytucjonalneRSPB. Song Thrush — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/song-thrushWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[174] Źródło instytucjonalneRSPB. Robin — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/robinWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[175] Źródło instytucjonalneRSPB. Black Redstart — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/black-redstartWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[176] Źródło instytucjonalneRSPB. Chaffinch — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/chaffinchWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[177] Źródło instytucjonalneRSPB. Goldfinch — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/goldfinchWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[178] Źródło instytucjonalneRSPB. Greenfinch — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/greenfinchWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[179] Źródło instytucjonalneRSPB. Bullfinch — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/bullfinchWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[180] Źródło instytucjonalneRSPB. Treecreeper — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/treecreeperWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[181] Źródło instytucjonalneRSPB. Wren — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/wrenWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[182] Źródło instytucjonalneRSPB. Goldcrest — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/goldcrestWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[183] Źródło instytucjonalneRSPB. Starling — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/starlingWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[184] Źródło instytucjonalneRSPB. Magpie — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/magpieWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[185] Źródło instytucjonalneRSPB. Jackdaw — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/jackdawWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[186] Źródło instytucjonalneRSPB. Jay — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/jayWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[187] Źródło instytucjonalneRSPB. Rook — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/rookWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[188] Źródło instytucjonalneRSPB. Mute Swan — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/mute-swanWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[189] Źródło instytucjonalneRSPB. Greylag Goose — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/greylag-gooseWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[190] Źródło instytucjonalneRSPB. Skylark — Bird Facts. b.d.https://www.rspb.org.uk/birds-and-wildlife/skylarkWyłącznie cechy identyfikacyjne i ogólne siedlisko. Brytyjskie statusy, trendy i kalendarz nie zostały przeniesione na Polskę; nazwa naukowa w artykule odpowiada KF, nawet gdy nagłówek źródła stosuje starszy synonim.
[191] Źródło instytucjonalneCornell Lab of Ornithology. Bird ID Skills: Field Marks. b.d.https://www.allaboutbirds.org/news/bird-id-skills-field-marks/
[192] Źródło instytucjonalneRSPB. House Martin, Swift or Swallow? How to tell the difference. b.d.https://www.rspb.org.uk/birds-and-wildlife/identifying-birds/swift-swallow-or-martin-a-handy-id-guideWykorzystano cechy rozpoznawcze. Brytyjskich terminów przylotów i statusów nie przenoszono na Polskę.
[193] Źródło instytucjonalneRSPB. Small brown birds and how to identify them. b.d.https://www.rspb.org.uk/birds-and-wildlife/identifying-birds/small-brown-birds-you-might-see-in-your-garden
[194] Źródło instytucjonalneCornell Lab of Ornithology. Merlin Sound ID Best Practices. b.d.https://support.ebird.org/en/support/solutions/articles/48001214056-merlin-sound-id-best-practices
[195] Źródło instytucjonalneCornell Lab of Ornithology. Sound ID: help and limitations. b.d.https://support.ebird.org/en/support/solutions/articles/48001185783-sound-id
[196] Źródło instytucjonalneRSPB. Willow Warbler: identification. b.d.https://www.rspb.org.uk/birds-and-wildlife/willow-warbler
[197] Źródło instytucjonalneRSPB. Chiffchaff: identification. b.d.https://www.rspb.org.uk/birds-and-wildlife/chiffchaff/
[198] Źródło instytucjonalneBritish Trust for Ornithology. Marsh Tit: BirdFacts. b.d.https://www.bto.org/learn/about-birds/birdfacts/marsh-tit
[199] Źródło instytucjonalneBritish Trust for Ornithology. Willow Tit: BirdFacts. b.d.https://www.bto.org/learn/about-birds/birdfacts/willow-tit
[200] Źródło instytucjonalneRSPB. Doves vs Pigeons. What’s the difference?. 26.02.2025.https://www.rspb.org.uk/birds-and-wildlife/identifying-birds/pigeons-and-doves-an-id-guide
[201] Źródło instytucjonalneBritish Trust for Ornithology. Crow identification. 2022.https://www.bto.org/sites/default/files/crow_id.pdfBird Table, Autumn 2022, s.18–19; materiał identyfikacyjny. Ilustracji źródłowych nie reprodukowano.
[202] Źródło instytucjonalneCornell Lab of Ornithology. eBird Protocols. b.d.https://support.ebird.org/en/support/solutions/articles/48000950859Zasady dla obserwacji stacjonarnych, trasowych i przygodnych.
[203] Źródło instytucjonalneCornell Lab of Ornithology. Complete Checklists and Birding as Your Primary Purpose. b.d.https://ebird.freshdesk.com/en/support/solutions/articles/48000967748-birding-as-your-primary-purpose-and-complete-checklists
[204] Źródło instytucjonalneCornell Lab of Ornithology. eBird Data Quality. b.d.https://ebird.freshdesk.com/en/support/solutions/articles/48000795278-ebird-data-quality
[205] Źródło instytucjonalneCornell Lab of Ornithology. Enter sightings on the eBird Website. b.d.https://support.ebird.org/en/support/solutions/articles/48000957911
[206] Źródło instytucjonalneGłówny Inspektorat Ochrony Środowiska / Monitoring Ptaków Polski. Metodyka. b.d.https://monitoringptakow.gios.gov.pl/metodyka.html
[207] Źródło instytucjonalneGłówny Inspektorat Ochrony Środowiska / Monitoring Ptaków Polski. Programy monitoringu. b.d.https://monitoringptakow.gios.gov.pl/struktura.html
[208] Źródło instytucjonalneGłówny Inspektorat Ochrony Środowiska / Monitoring Ptaków Polski. Zagregowane wskaźniki liczebności pospolitych ptaków lęgowych. 2025.https://monitoringptakow.gios.gov.pl/app.php/aktualnosci/zagregowane-wskazniki-liczebnosci-fbi-forbi.html
[209] Źródło instytucjonalneBritish Trust for Ornithology. The importance of detectability. b.d.https://www.bto.org/get-involved/volunteer/projects/bbs/research-conservation/importance-detectability
[210] Publikacja naukowaMacKenzie D.I., Nichols J.D., Lachman G.B., Droege S., Royle J.A., Langtimm C.A.. Estimating site occupancy rates when detection probabilities are less than one. 2002.https://pubs.usgs.gov/publication/5224176Ecology 83: 2248–2255. Odróżnienie niewykrycia od nieobecności.
[211] Źródło instytucjonalneGłówny Inspektorat Ochrony Środowiska / Monitoring Ptaków Polski. Agregacja danych. b.d.https://monitoringptakow.gios.gov.pl/agregacja-danych.htmlJednostki i zasady agregowania danych zależą od programu.
[212] Źródło instytucjonalneCornell Lab of Ornithology / eBird Science. Best Practices for Using eBird Data: eBird Data. b.d.https://ebird.github.io/ebird-best-practices/ebird.html
[213] Źródło instytucjonalneU.S. Geological Survey, Bird Banding Laboratory. Why We Band Birds. b.d.https://www.usgs.gov/labs/bird-banding-laboratory/science/why-we-band-birdsIndywidualne znakowanie oraz zastosowania danych obrączkarskich; bez przenoszenia amerykańskich procedur na Polskę.
[214] Źródło instytucjonalneBritish Trust for Ornithology. Chapter 8 — Special Methods (including colour ringing). aktualizacja 16.12.2025.https://www.bto.org/get-involved/volunteer/projects/bird-ringing-scheme/taking-part/resources-ringers/hub/guidance-materials/ringing-guidance/chapter-8Opis zasad działania urządzeń. Nie przytoczono uniwersalnych limitów masy ani brytyjskich wymagań prawnych jako zasad obowiązujących w Polsce.
[215] Źródło instytucjonalneMovebank. The Movebank data model. b.d.https://www.movebank.org/cms/movebank-content/mb-data-modelRozróżnienie osobnika, urządzenia, okresu jego założenia, czujnika i zdarzenia pomiarowego.
[216] Źródło instytucjonalneBirds Canada — Motus Wildlife Tracking System. Information for Researchers. b.d.https://motus.org/get-involved/information-for-researchers/Automatyczna radiotelemetria i zależność rejestracji od rozmieszczenia odbiorników.
[217] Źródło instytucjonalneBirdCast, Cornell Lab of Ornithology i partnerzy. FAQ. b.d.https://birdcast.org/faq/Wyjaśnienie interpretacji danych radarowych; nie przedstawiono produktu amerykańskiego jako pomiaru migracji w Polsce.
[218] Publikacja naukowaKahl S., Wood C.M., Eibl M., Klinck H.. BirdNET: A deep learning solution for avian diversity monitoring. 2021.https://doi.org/10.1016/j.ecoinf.2021.101236Publikacja o modelu z 2021 r.; nie jest opisem aktualnej listy gatunków ani parametrów każdej późniejszej wersji BirdNET.
[219] Publikacja naukowaHobson K.A., Van Wilgenburg S.L., Wassenaar L.I., Larson K.. Linking Hydrogen (δ²H) Isotopes in Feathers and Precipitation: Sources of Variance and Consequences for Assignment to Isoscapes. 2012.https://pmc.ncbi.nlm.nih.gov/articles/PMC3324428/Probabilistyczne przypisywanie miejsca wzrostu piór; nie rekonstrukcja pełnej trasy.
[220] Publikacja naukowaDai Y., Lin Q., Fang W., Zhou X., Chen X.. Noninvasive and nondestructive sampling for avian microsatellite genotyping: a case study on the vulnerable Chinese Egret (Egretta eulophotes). 2015.https://link.springer.com/article/10.1186/s40657-015-0034-xPorównanie próbek w badaniu Egretta eulophotes; wydajność i błędy nie są uniwersalnymi parametrami wszystkich gatunków lub analiz DNA.
[221] Publikacja naukowaBrlík V. i in.. Weak effects of geolocators on small birds: A meta-analysis controlled for phylogeny and publication bias. 2020; publikacja internetowa 2019.https://pubmed.ncbi.nlm.nih.gov/30771254/Metaanaliza wpływu geolokatorów; różnice między modelami i gatunkami nie pozwalają przyjąć zerowego wpływu urządzeń w każdym projekcie.
[222] Źródło instytucjonalnePECBMS. 3. Multispecies indicators. b.d.https://pecbms.info/methods/pecbms-methods/3-multispecies-indicators/
[223] Źródło instytucjonalneStatistics Netherlands (CBS). MSI-tool. b.d.https://www.cbs.nl/en-gb/society/nature-and-environment/indices-and-trends--trim--/msi-tool
[224] Publikacja naukowaSoldaat L.L., Pannekoek J., Verweij R.J.T., van Turnhout C.A.M., van Strien A.J.. A Monte Carlo method to account for sampling error in multi-species indicators. 2017.https://pecbms.info/wp-content/uploads/2020/04/soldaat-et-al-2017.pdfEcological Indicators 81: 340–347. DOI: 10.1016/j.ecolind.2017.05.033.
[225] Źródło instytucjonalneBirdLife International. The IUCN Red List. b.d.https://datazone.birdlife.org/about-our-science/the-iucn-red-list
[226] Źródło instytucjonalneBirdLife International. State of the World’s Birds 2025 Update. 2025.https://datazone.birdlife.org/articles/state-of-the-worlds-birds-2025-annual-updatePięć presji dotyczy odsetków globalnie zagrożonych gatunków. Kategorie nakładają się; nie ustalono jednej wspólnej daty danych bazowych.
[227] Publikacja naukowaAplin L.M. i in.. Experimentally induced innovations lead to persistent culture via conformity in wild birds. 2015.https://www.nature.com/articles/nature13998Eksperyment u bogatek: osiem subpopulacji, w tym pięć z wytrenowanymi demonstratorami i trzy kontrolne. Liczba rozwiązań zadania nie jest liczbą osobników.
[228] Publikacja naukowaHurlbert S.H.. Pseudoreplication and the Design of Ecological Field Experiments. 1984.https://doi.org/10.2307/1942661Zasady rozpoznawania jednostki eksperymentalnej i niezależnych powtórzeń; przykłady ptasie w kompendium są własną ilustracją dydaktyczną.
[229] Publikacja naukowaEng M.L., Stutchbury B.J.M., Morrissey C.A.. A neonicotinoid insecticide reduces fueling and delays migration in songbirds. 2019.https://pubmed.ncbi.nlm.nih.gov/31515394/Eksperymentalna ekspozycja Zonotrichia leucophrys i radiotelemetria. Różnica median postoju nie jest bezpośrednim oszacowaniem śmiertelności populacji.
[230] Publikacja naukowaVan Doren B.M. i in.. Drivers of fatal bird collisions in an urban center. 2021.https://pmc.ncbi.nlm.nih.gov/articles/PMC8214683/McCormick Place Lakeside Center, Chicago, lata 2000–2020; jeden budynek. Około 60% jest wynikiem modelowego scenariusza ograniczenia oświetlenia do historycznego minimum.
[231] Publikacja naukowaUnderwood A.J.. On Beyond BACI: Sampling Designs that Might Reliably Detect Environmental Disturbances. 1994.https://doi.org/10.2307/1942110Znaczenie powtórzeń w czasie i wielu obszarów odniesienia przy ocenie zmian środowiskowych.
[232] Publikacja naukowaLakens D.. Sample Size Justification. 2022.https://online.ucpress.edu/collabra/article/8/1/33267/120491/Sample-Size-JustificationUzasadnienie liczebności próby względem celu wnioskowania; bez uniwersalnego progu dostatecznej próby.
[233] Publikacja naukowaPercie du Sert N. i in.. The ARRIVE guidelines 2.0: Updated guidelines for reporting animal research. 2020.https://journals.plos.org/plosbiology/article?id=10.1371/journal.pbio.3000410Wytyczne raportowania badań na zwierzętach. W kompendium użyto ich do objaśnienia pytań o projekt eksperymentu, nie jako jednolitego wymogu dla wszystkich obserwacji terenowych.
[234] Publikacja naukowaSchaub M., Royle J.A.. Estimating true instead of apparent survival using spatial Cormack–Jolly–Seber models. 2014; publikacja internetowa 2013.https://pubs.usgs.gov/publication/70138832Rozróżnienie przeżywalności rzeczywistej, pozornej i wierności obszarowi badania. Rok wydania czasopisma 2014, pierwsza publikacja online 28.10.2013.
[235] Źródło instytucjonalneAmerican Statistical Association. American Statistical Association Releases Statement on Statistical Significance and P-Values. 2016.https://www.amstat.org/asa/files/pdfs/p-valuestatement.pdfOficjalny dokument ASA z 7 marca 2016 r. o interpretacji wartości p.
[236] Publikacja naukowaWilkinson M.D. i in.. The FAIR Guiding Principles for scientific data management and stewardship. 2016.https://doi.org/10.1038/sdata.2016.18Zasady opisywania danych i ich ponownego wykorzystania; FAIR nie oznacza automatycznie braku ograniczeń dostępu.
[237] Źródło instytucjonalneIUCN. Arctic seals threatened by climate change, birds decline globally – IUCN Red List. 10.10.2025.https://iucn.org/press-release/202510/arctic-seals-threatened-climate-change-birds-decline-globally-iucn-red-listGlobalna aktualizacja ocen ptaków w 2025 r.; nie jest listą taksonomiczną AviList v2026.
[238] Źródło instytucjonalneIUCN. IUCN Red List categories and criteria, version 3.1, second edition. 2012.https://iucn.org/resources/publication/iucn-red-list-categories-and-criteria-version-31-second-edition
[239] Źródło instytucjonalneBirdLife International. Migratory bird populations are in decline. 2026.https://datazone.birdlife.org/articles/migratory-bird-populations-are-in-declineUdziały trendów w grupie 1843 gatunków wędrownych; wartości zaokrąglone.
[240] Źródło instytucjonalneBirdLife International. Migratory birds. 2026.https://datazone.birdlife.org/topics/migratory-birds
[241] Źródło instytucjonalneIUCN. Summary Statistics. b.d.https://nrl.iucnredlist.org/resources/summary-statisticsZasady interpretacji statystyk; zmiany kategorii nie zawsze oznaczają rzeczywistą zmianę ryzyka.
[242] Baza / lista / zbiór danychPECBMS / EBCC, BirdLife International, RSPB, CSO. European Indicators: Wild Bird Indices, Europe. aktualizacja 2025; dane 1980–2024.https://pecbms.info/trends-and-indicators/indicators/Wybrano wiersze Europe; wskaźniki EU mają inne wartości. Dane CC BY-NC 4.0.
[243] Źródło instytucjonalnePECBMS. Data access policy. b.d.https://pecbms.info/use-of-the-results/data-access-policy/Licencja danych CC BY-NC 4.0; wykorzystanie komercyjne wymaga uwzględnienia warunków właścicieli danych.
[244] Źródło instytucjonalnePECBMS. European Wild Bird Indices, 2025 update. 2025.https://pecbms.info/european-wild-bird-indices-2025-update/Opis zakresu wskaźników wielogatunkowych.
[245] Źródło instytucjonalneOgólnopolskie Towarzystwo Ochrony Ptaków. Czerwona lista ptaków Polski. 2020.https://otop.org.pl/naszeprojekty/chronimy/czerwona-lista-ptakow-polski/Wyniki oceny krajowej z 2020 r., wykorzystującej głównie obserwacje z lat 2010–2019. Nie aktualizowano jej daty do 2026 r.
[246] Źródło instytucjonalneIUCN. Guidelines for application of IUCN Red List criteria at regional and national levels: version 4.0. 2012.https://iucn.org/resources/publication/guidelines-application-iucn-red-list-criteria-regional-and-national-levels
[247] Publikacja naukowaRigal S. i współautorzy. Farmland practices are driving bird population decline across Europe. 2023.https://pmc.ncbi.nlm.nih.gov/articles/PMC10214186/PNAS 120(21): e2216573120. DOI: 10.1073/pnas.2216573120.
[248] Źródło instytucjonalneBirdLife International. Logging threatens migratory birds. 2026.https://datazone.birdlife.org/articles/logging-threatens-migratory-birds
[249] Źródło instytucjonalneOgólnopolskie Towarzystwo Ochrony Ptaków. Wodniczka. b.d.https://otop.org.pl/naszeprojekty/chronimy/wodniczka/Wykorzystano opis siedlisk i działań; nie traktowano dawnych liczb projektowych jako aktualnego stanu populacji.
[250] Źródło instytucjonalneBirdLife International. Invasive alien species and diseases threaten migratory birds. 2026.https://datazone.birdlife.org/articles/invasive-alien-species-and-diseases-threaten-migratory-birds
[251] Źródło instytucjonalneBirdLife International. Climate change threatens migratory birds. 2026.https://datazone.birdlife.org/articles/climate-change-threatens-migratory-birds
[252] Publikacja naukowaBoth C., Bouwhuis S., Lessells C. M., Visser M. E.. Climate change and population declines in a long-distance migratory bird. 2006.https://research.rug.nl/en/publications/climate-change-and-population-declines-in-a-long-distance-migrato/Dziewięć populacji holenderskich; około 90% spadku dotyczyło miejsc z wczesnym szczytem pokarmu.
[253] Publikacja naukowaBoth C., Visser M. E.. Adjustment to climate change is constrained by arrival date in a long-distance migrant bird. 2001.https://www.nature.com/articles/35077063Analiza terminów przylotu i lęgów muchołówki żałobnej w Holandii, 1980–2000.
[254] Publikacja naukowaFerraz G., Nichols J. D., Hines J. E., Stouffer P. C., Bierregaard R. O., Lovejoy T. E.. A large-scale deforestation experiment: Effects of patch area and isolation on Amazon birds. 2007.https://www.usgs.gov/publications/a-large-scale-deforestation-experiment-effects-patch-area-and-isolation-amazon-birdsTrzynastoletnie dane odłowów, 55 gatunków, brazylijska Amazonia; modele kolonizacji i lokalnego zaniku.
[255] Publikacja naukowaStouffer P. C., Johnson E. I., Bierregaard R. O. Jr, Lovejoy T. E.. Understory Bird Communities in Amazonian Rainforest Fragments: Species Turnover through 25 Years Post-Isolation in Recovering Landscapes. 2011.https://pmc.ncbi.nlm.nih.gov/articles/PMC3120763/Jedenaście fragmentów lasu o powierzchniach 1–100 ha; obserwacje do 2007 roku.
[256] Publikacja naukowaPeach W. J., Mallord J. W., Ockendon N., Orsman C. J., Haines W. G.. Invertebrate prey availability limits reproductive success but not breeding population size in suburban House Sparrows Passer domesticus. 2015.https://onlinelibrary.wiley.com/doi/abs/10.1111/ibi.12264Dwa kolejne sezony lęgowe, podmiejski Londyn; +62% dotyczy liczebności świeżych podlotów, nie całej populacji.
[257] Publikacja naukowaPeach W. J., Mallord J. W., Ockendon N., Orsman C. J., Haines W. G.. Depleted suburban house sparrow Passer domesticus population not limited by food availability. 2018.https://www.repository.cam.ac.uk/items/ccebed22-bf5b-4cbf-9568-64054aa38fc7Doświadczenie z 33 koloniami dokarmianymi i 33 kontrolnymi; nie uzyskano wzrostu liczebności populacji.
[258] Publikacja naukowaPeach W. J., Mallord J. W., Orsman C. J., Ockendon N., Haines W. G.. Testing assumptions of a supplementary feeding experiment aimed at suburban House Sparrows Passer domesticus. 2013.https://www.tandfonline.com/doi/full/10.1080/00063657.2013.809048Weryfikacja założeń terenowego eksperymentu z podawaniem dodatkowego pokarmu.
[259] Publikacja naukowaLanghammer P.F. i współautorzy. The positive impact of conservation action. 2024.https://pubmed.ncbi.nlm.nih.gov/38662833/Science 384: 453–458. DOI: 10.1126/science.adj6598. Metaanaliza dotyczy różnych składników bioróżnorodności, nie wyłącznie ptaków.
[260] Źródło instytucjonalneBritish Trust for Ornithology. Integrated Population Monitoring. b.d.https://www.bto.org/our-work/science/research-areas/population-dynamics/integrated-population-monitoring
[261] Publikacja naukowaDa Rocha N. i współautorzy. Reduction in seabird mortality in Namibian fisheries following the introduction of bycatch regulation. 2021.https://doi.org/10.1016/j.biocon.2020.108915Biological Conservation 253: 108915; badanie konkretnych flot rybackich, nie globalna skuteczność wszystkich rozwiązań.
[262] Źródło instytucjonalneKBA Partnership. Criteria: Key Biodiversity Areas. b.d.https://www.keybiodiversityareas.org/en/contribute-your-kba-network/assessment-and-monitoring/criteria
[263] Źródło instytucjonalneIUCN. A Global Standard for the Identification of Key Biodiversity Areas, version 1.0. 2016.https://app.ibat-alliance.org/pdf/global-standard-for-identification-of-kba.pdfIdentyfikacja KBA i status prawny obszaru są odrębnymi zagadnieniami.
[264] Publikacja naukowaBolam F.C. i współautorzy. How many bird and mammal extinctions has recent conservation action prevented?. 2021.https://doi.org/10.1111/conl.12762Conservation Letters 14: e12762. Opublikowano online w 2020 r.; rok wydania tomu 2021. Ocena kontrfaktyczna, okres 1993–2020.
[265] Źródło instytucjonalneOgólnopolskie Towarzystwo Ochrony Ptaków. Kodeks Osób Obserwujących Ptaki. redakcja: kwiecień 2025.https://otop.org.pl/wp-content/uploads/2025/04/Kodeks-Osob-Obserwujacych-Ptaki.pdfTen dokument jest również podlinkowany we wpisie OTOP z 29.04.2026; data redakcji samego PDF pozostaje 2025.
[266] Źródło instytucjonalneCornell Lab of Ornithology. Seven Simple Actions to Help Birds. b.d.https://www.birds.cornell.edu/home/seven-simple-actions-to-help-birds/Wykorzystano zalecenia dotyczące roślinności i kotów; amerykańskich oszacowań śmiertelności nie przenoszono na Polskę.
[267] Źródło instytucjonalneU.S. Geological Survey. Bird Window Collisions. b.d.https://www.usgs.gov/labs/bird-banding-laboratory/science/bird-window-collisions
[268] Źródło instytucjonalneU.S. Fish & Wildlife Service. Threats to Birds: Collisions (Nighttime Lighting). b.d.https://www.fws.gov/story/threats-birds-collisions-nighttime-lighting
[269] Źródło instytucjonalneOgólnopolskie Towarzystwo Ochrony Ptaków. Czym i jak dokarmiać?. b.d.https://otop.org.pl/ptasie-porady/dokarmianie/czym-i-jak-dokarmiac/
[270] Źródło instytucjonalneGeneralna Dyrekcja Ochrony Środowiska. Podlot poza gniazdem? Młode zwierzę bez opieki matki? Upewnij się czy na pewno trzeba działać. b.d.https://www.gov.pl/web/gdos/podlot-poza-gniazdem-mlode-zwierze-bez-opieki-matki-upewnij-sie-czy-na-pewno-trzeba-dzialac
[271] Źródło instytucjonalneGeneralna Dyrekcja Ochrony Środowiska. Jak postąpić w przypadku znalezienia rannych lub chorych dzikich zwierząt?. 2026.https://www.gov.pl/web/gdos/jak-postapic-w-przypadku-znalezienia-rannych-lub-chorych-dzikich-zwierzat
[272] Źródło instytucjonalneNatural History Museum, London. The origin of feathers remains a mystery. 2025.https://www.nhm.ac.uk/discover/news/2025/february/origin-feathers-remains-mystery.htmlKomentarz instytucji do badań nad wczesną ewolucją piór; odróżnia ustalone odkrycia od otwartych pytań.
[273] Baza / lista / zbiór danychU.S. Geological Survey, Bird Banding Laboratory. Longevity Records of North American Birds. b.d.https://www.pwrc.usgs.gov/BBL/longevity/longvrec.php
[274] Baza / lista / zbiór danychEURING. Longevity list 2023. 2023.https://euring.org/data-and-codes/longevity-list-2023